

目次
- 1 1. 染色分体(姉妹染色分体)とは ─ 複製された染色体の「2本のコピー」
- 2 2. 染色体・相同染色体との違い ─ 「何本」と数えるかの整理
- 3 3. 細胞周期で見る姉妹染色分体の一生 ─ つながり、そして一斉に離れる
- 4 4. コヒーシン ─ 姉妹染色分体をつなぐリングの仕組み
- 5 5. 減数分裂と姉妹染色分体 ─ 卵子の加齢と染色体の数の異常
- 6 6. 姉妹染色分体交換(SCE)と相同組換え ─ ブルーム症候群とのつながり
- 7 7. 接着の異常で起こる病気 ─ コヒーシン病とロバーツ症候群
- 8 8. 接着だけではないコヒーシンの仕事 ─ ループ押し出しと3Dゲノム
- 9 9. がんとコヒーシン ─ STAG2の変異と合成致死
- 10 10. 遺伝診療との接点 ─ 染色分体の知識が役立つ場面
- 11 11. よくある誤解
- 12 まとめ ─ 「コピーをつなぎ、正確に分ける」仕組みの中心
- 13 よくある質問(FAQ)
- 14 参考文献
- 15 関連記事

📍 クイックナビゲーション
細胞が分裂する前には、46本の染色体がすべてコピーされます。コピーされたばかりの2本は、中央のくびれ(セントロメア)付近でつながったまま、X字形の1本の染色体として並んでいます。この1本1本を染色分体(せんしょくぶんたい)、同じ染色体から複製されたペアを姉妹染色分体(しまいせんしょくぶんたい/sister chromatids)と呼びます。姉妹染色分体は、分裂の直前まで「コヒーシン」というリング状のタンパク質で束ねられ、決まったタイミングで一斉に切り離されます。この仕組みがずれると、染色体の数が変わる異数性(トリソミーなど)や、コルネリア・デ・ランゲ症候群、ブルーム症候群といった遺伝性の病気につながります。この記事では、染色分体の定義から、染色体との数え方の違い、卵子の加齢との関係、関連する病気までを、臨床遺伝専門医の視点で順に解説します。
Q. 染色分体(姉妹染色分体)とは何ですか?まず結論だけ知りたいです
A. 染色分体とは、DNA複製によってできた染色体の「2本のコピーのうちの1本」のことです。同じ1本の染色体から複製された2本は、中身(DNAの配列)が原則として同一なので、互いに姉妹染色分体と呼ばれます。姉妹染色分体はコヒーシンというリング状のタンパク質で分裂の直前まで束ねられ、分裂後期に一斉に離れて2つの娘細胞へ1本ずつ分配されます。この「つなぎ」と「切り離し」がずれると、染色体の数の異常(異数性)や、コヒーシン病・ブルーム症候群などの遺伝性疾患の原因になります。
- ➤正体 → DNA複製でできた、同じ配列をもつ2本のコピー。セントロメア付近でつながっている
- ➤数え方 → 複製後も「染色体は1本」と数え、「染色分体は2本」と数える。G2期のヒト細胞は染色体46本・染色分体92本
- ➤つなぐ仕組み → コヒーシン(SMC1A・SMC3・RAD21・STAG1/2)が姉妹を束ね、セパレースがRAD21を切って分離させる
- ➤卵子と年齢 → 卵子のコヒーシンは補充されにくく、加齢とともに姉妹染色分体が早く離れやすくなる
- ➤関連する病気 → コルネリア・デ・ランゲ症候群、ロバーツ症候群、ブルーム症候群など
🧬 染色分体(姉妹染色分体)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | せんしょくぶんたい(chromatid)/しまいせんしょくぶんたい(sister chromatids) |
| 定義 | DNA複製によってできた染色体の2本のコピーのそれぞれ。同じ染色体に由来する2本を姉妹染色分体と呼ぶ |
| いつ存在するか | S期(DNA合成期)の複製後から、M期(分裂期)の後期に分離するまで |
| つないでいるもの | コヒーシン(SMC1A・SMC3・RAD21・STAG1またはSTAG2からなるリング状複合体) |
| 切り離すもの | セパレース(タンパク質分解酵素)がRAD21を切断する |
| 医療との関わり | 異数性(トリソミーなど)、コヒーシン病、ブルーム症候群の姉妹染色分体交換(SCE)の増加など |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 染色分体(姉妹染色分体)とは ─ 複製された染色体の「2本のコピー」
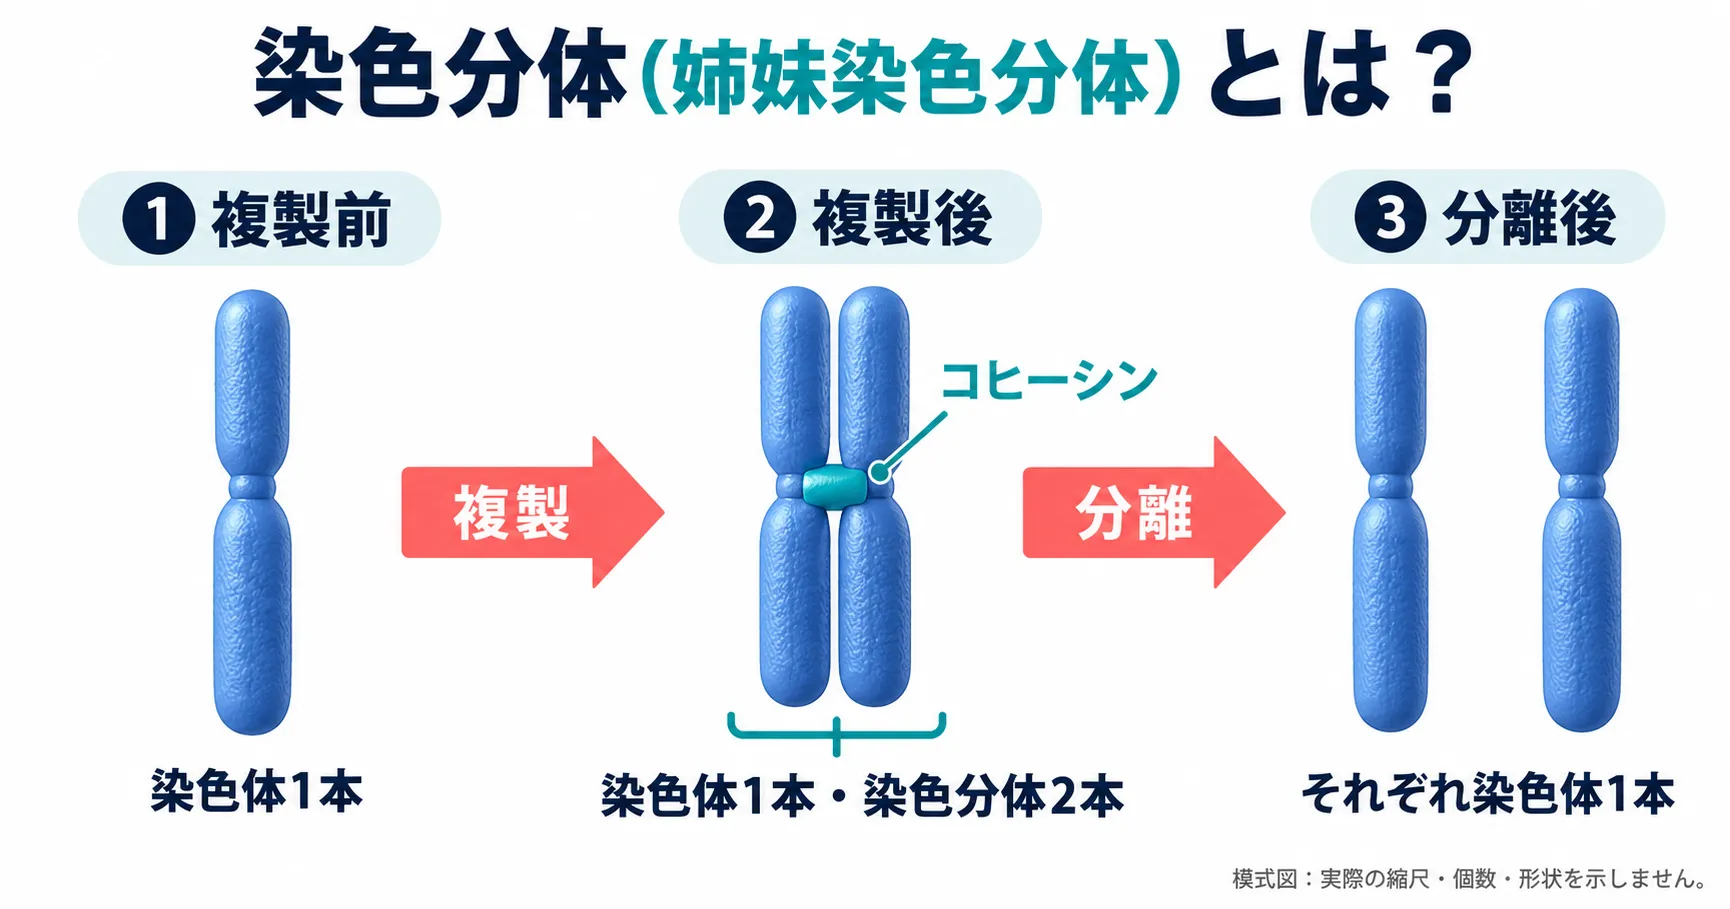
私たちの体の細胞には、両親から受け継いだ46本の染色体があります。細胞が2つに分かれるとき、新しくできる2つの細胞(娘細胞)にも46本ずつ同じ染色体を渡さなければなりません。そのため細胞は、分裂の前にDNA複製を行って、すべての染色体をいったん2倍にコピーします。このとき、1本の染色体からできた2本のコピーのそれぞれを染色分体といい、同じ親(元の染色体)から生まれた2本という意味で姉妹染色分体と呼びます。
DNAの複製は半保存的複製と呼ばれる方式で進みます。二重らせんの2本の鎖がほどけ、それぞれが鋳型になって新しい鎖がつくられるため、できあがった2本のDNAは、どちらも「古い鎖1本+新しい鎖1本」の組み合わせになります。つまり姉妹染色分体は、どちらが元でどちらがコピーという区別のない、対等な2本です。配列もほぼ同じです。
複製を終えた姉妹染色分体は、すぐにばらばらになるわけではありません。染色体の中央付近にあるセントロメアを中心に、全長にわたって寄り添った状態が保たれます。分裂期に染色体が凝縮すると、この2本が顕微鏡でも見分けられるようになり、教科書でおなじみの「X字形の染色体」の姿になります。X字形では、中心のセントロメアでつながる左右それぞれの半分が1本の姉妹染色分体です。各染色分体には中心から上下に伸びる腕があります。染色体の末端はテロメアという特殊な構造で守られています。
姉妹染色分体を分裂の直前まで束ねておく役目を担うのが、コヒーシンというリング状のタンパク質複合体です。コヒーシンは、複製された姉妹染色分体の間の接着を担い、正しい染色体分配に欠かせないことに加え、傷ついたDNAの修復や遺伝子の発現調節にも関わることが報告されています[1]。
💡 用語解説:染色体・染色分体・クロマチン
クロマチンは、DNAがヒストンというタンパク質に巻きついてできた「ひも」のような構造で、細胞の中でふだんはほどけた状態で存在しています。分裂期になるとクロマチンが強く折りたたまれ、形の見える染色体になります。染色分体はその染色体を構成する1本分の単位で、複製前の染色体は1本の染色分体、複製後の染色体は2本の姉妹染色分体からできていると考えると整理しやすくなります。
2. 染色体・相同染色体との違い ─ 「何本」と数えるかの整理
染色分体でいちばん混乱しやすいのが「数え方」です。遺伝学では、セントロメアの数=染色体の本数と数えるのが原則です。複製によってDNAの量が2倍になっても、姉妹染色分体はセントロメアを共有してつながっているため、染色体の数は増えません。つまり複製後の細胞は「染色体46本、染色分体92本」という状態になります。分裂後期に姉妹染色分体が離れた瞬間、それぞれが独立したセントロメアをもつことになり、以後は1本ずつが「染色体」と呼ばれます。
🔢 細胞周期で変わる「染色体の数」と「染色分体の数」(ヒト体細胞)
| 時期 | 染色体の本数 | 染色分体の本数 | 状態 |
|---|---|---|---|
| G1期 | 46本 | 46本 | 複製前。各染色体は1本の染色分体でできている |
| S期〜G2期 | 46本 | 92本 | 複製後。姉妹染色分体がコヒーシンで束ねられている |
| M期(中期) | 46本 | 92本 | 凝縮したX字形の染色体が赤道面に並ぶ |
| M期(後期以降) | 細胞1つあたり46本 | 46本 | 姉妹が離れ、それぞれが独立した染色体として両極へ |
※分裂後期の直後は、1つの細胞の中に一時的に92本の染色体が存在し、細胞質分裂で46本ずつに分かれます。
もう一つ混同しやすいのが相同染色体との違いです。相同染色体は、父親由来の1番染色体と母親由来の1番染色体のように、同じ番号の染色体のペアのことです。同じ遺伝子が同じ順番に並んでいますが、両親から来ているため、遺伝子の細かな型(アレル)は異なることがあります。これに対して姉妹染色分体は、1本の染色体がコピーされたものなので、中身は原則として同じです。
相同染色体の片方に属する染色分体と、もう片方に属する染色分体の関係は非姉妹染色分体と呼ばれます。この区別は、次の章以降で扱う減数分裂の「乗り換え(交叉)」や、ブルーム症候群で増える「姉妹染色分体交換」を理解するうえで大切です。乗り換えは非姉妹染色分体の間で起こるため、両親由来の遺伝子の組み合わせが混ぜ合わされます。一方、姉妹染色分体どうしの交換は、もともと同じ配列の間の交換なので、原則として遺伝情報そのものは変わりません。
Gバンド法(G分染法)による核型検査は、分裂中期で止めた細胞の染色体を観察するため、報告書の写真に写っている染色体は、どれも姉妹染色分体がそろったX字形の状態です。検査報告の「46本」も、セントロメアの数で数えた結果です。
💡 用語解説:相同染色体と姉妹染色分体の見分け方
「両親から1本ずつ受け継いだ同じ番号のペア」が相同染色体、「1本の染色体を複製してできた2本のコピー」が姉妹染色分体です。相同染色体は遺伝子の型が違うことがあり、姉妹染色分体は原則として同じ配列です。複製後の細胞では、相同染色体のペアそれぞれが姉妹染色分体をもつため、1組の相同染色体には合計4本の染色分体が含まれます。
🩺 院長コラム【「46本」の数え方で迷ったら】
遺伝の授業や検査の説明で、「複製したら染色体は92本になるのでは」という質問を受けることがあります。答えは、染色体はセントロメアの数で数えるので46本のまま、染色分体として数えれば92本、です。どちらも間違いではなく、何を単位にしているかの違いです。
この区別は、トリソミーのように「染色体が1本多い」状態を考えるときにも役に立ちます。卵子や精子ができる過程で、姉妹染色分体や相同染色体の分かれ方がずれると、受精卵の染色体の本数が変わります。数え方の基本を押さえておくと、出生前検査の説明もずっと理解しやすくなります。
3. 細胞周期で見る姉妹染色分体の一生 ─ つながり、そして一斉に離れる
姉妹染色分体が生まれてから分かれるまでの流れは、細胞周期の中で厳密にスケジュールされています。細胞周期は、準備期間のG1期、DNAをコピーするS期(DNA合成期)、分裂の準備をするG2期、そして実際に分かれるM期(分裂期)の4つの時期からなります。姉妹染色分体が存在するのは、S期でDNAが複製されてから、M期の後期に分離するまでの間です。
S期〜G2期:コピーと同時に「束ねる」
DNA複製が進むと、新しくできた2本のDNAは、その場でコヒーシンによって束ねられます。複製の直後から接着を始めることで、どの2本が姉妹なのかという対応関係が、分裂期まで崩れずに保たれます。G2期の間も接着は保たれ、この時期に起こったDNAの傷は、すぐ隣にある姉妹染色分体を「お手本」にして修復されます(第6章で詳しく扱います)。
M期前期〜中期:まず腕、最後にセントロメア
分裂期に入ると、染色体は強く凝縮して太く短くなります。このとき脊椎動物の細胞では、姉妹染色分体の腕の部分に付いていたコヒーシンの大部分が、切断されずに先に取り外されます。これを「前期経路」と呼び、X字形の腕が少し開いたように見えるのはこのためです。一方、セントロメア付近のコヒーシンは保護されて残り、姉妹染色分体はセントロメアの一点でつながったまま中期を迎えます。
中期には、細胞の両側から伸びた紡錘体の微小管が、姉妹染色分体それぞれのセントロメアにできる動原体(キネトコア)に結合します。姉妹の一方は右の極、もう一方は左の極から引っ張られ、綱引きのような張力がかかった状態で赤道面に並びます。これを二方向性結合(バイオリエンテーション)といいます。セントロメアのコヒーシンが残っているからこそ、この綱引きが成り立ちます。細胞には紡錘体形成チェックポイント(SAC)という監視役がいて、すべての染色体が正しくつながるまで次の段階へ進ませません。
M期後期:一斉に切って、正確に分ける
すべての染色体の準備が整うと、監視が解除され、セパレースというタンパク質分解酵素が働き始めます。セパレースはコヒーシンの一部を切断してリングを開き、姉妹染色分体は両極へ一斉に引き離されます。このときから、離れた1本1本がそれぞれ独立した染色体として数えられます。こうして2つの娘細胞は、元の細胞とまったく同じ46本の染色体を1組ずつ受け取ります。
💡 用語解説:動原体(キネトコア)と紡錘体
紡錘体は、分裂期に細胞の両端から伸びる微小管という細い管の束で、染色体を両側に引き分ける「綱」の役目をします。動原体(キネトコア)は、セントロメアの上に組み立てられるタンパク質の集まりで、紡錘体の微小管をつかむ「取っ手」にあたります。姉妹染色分体はそれぞれ自分の動原体をもち、反対側の極から伸びた微小管とつながることで、正確に引き分けられます。
4. コヒーシン ─ 姉妹染色分体をつなぐリングの仕組み
姉妹染色分体をつなぐコヒーシンは、4つのタンパク質でできたリング状の複合体です。2本の長い棒状のタンパク質(SMC1AとSMC3)がV字形に組み、その開いた口をRAD21というタンパク質が橋渡しして閉じ、さらにSTAG1またはSTAG2がリングに結合しています[1]。このリングがDNAを抱え込むことで、姉妹染色分体が束ねられると考えられています。なお、同じSMCファミリーのコンデンシンは、束ねるのではなく染色体を凝縮させる役割を担います。
接着の「確定」:SMC3のアセチル化とソロリン
コヒーシンはG1期から染色体に載っていますが、この時期のコヒーシンは、WAPLという解離因子によって付いたり外れたりを繰り返しています。姉妹染色分体の接着を「確定」させるのは、DNA複製と、それに伴うSMC3のアセチル化です。アセチル化は、アセチル基という小さな目印をタンパク質に付ける化学修飾で、ヒトではESCO1・ESCO2という酵素がこの反応を担います。
アセチル化されたコヒーシンには、ソロリンというタンパク質が結合します。研究では、DNA複製とコヒーシンのアセチル化がソロリンの結合を促し、ソロリンがWAPLをその結合相手PDS5から押しのけることで、コヒーシンがDNAから外されるのを防いでいることが示されています[2]。WAPLがない状態ではソロリンがなくても接着が保たれることから、ソロリンの本質的な役割は「WAPLに対抗すること」だと考えられています[2]。
前期の解除:リン酸化が合図になる
分裂期に入ると、接着を守っていた仕組みが順番に外されていきます。腕の部分のコヒーシンの大部分は、WAPLと、コヒーシンのSTAG2(SA2)のリン酸化に依存して、前期から前中期にかけて取り除かれます[3]。さらに、分裂期のリン酸化酵素であるAurora BとCdk1がソロリンをリン酸化すると、ソロリンとPDS5の結びつきが弱まり、アセチル化されたコヒーシンも腕から外れるようになります[3]。
💡 よく見かける説明との違い
ソロリンをリン酸化する酵素について、「Plk1やCdk1がソロリンをリン酸化する」とする解説を見かけることがあります。一次文献では、腕のコヒーシンの除去にはSTAG2(SA2)のリン酸化が関わり、ソロリンのリン酸化はAurora BとCdk1が担うと報告されています[3]。
セントロメアの保護:シュゴシンとPP2A
腕のコヒーシンが外れても、セントロメアのコヒーシンは中期まで残らなければなりません。これを守るのがシュゴシン(SGO1)です。シュゴシンという名前は日本語の「守護神」に由来し、日本の研究グループが命名しました。シュゴシンは、脱リン酸化酵素PP2Aの特定のタイプと結合してセントロメアに集まり、コヒーシンに付いたリン酸を外すことで、前期経路による取り外しからセントロメアのコヒーシンを保護しています[4]。ヒトのシュゴシン遺伝子についてはSGOL1(SGO1)遺伝子のページで解説しています。
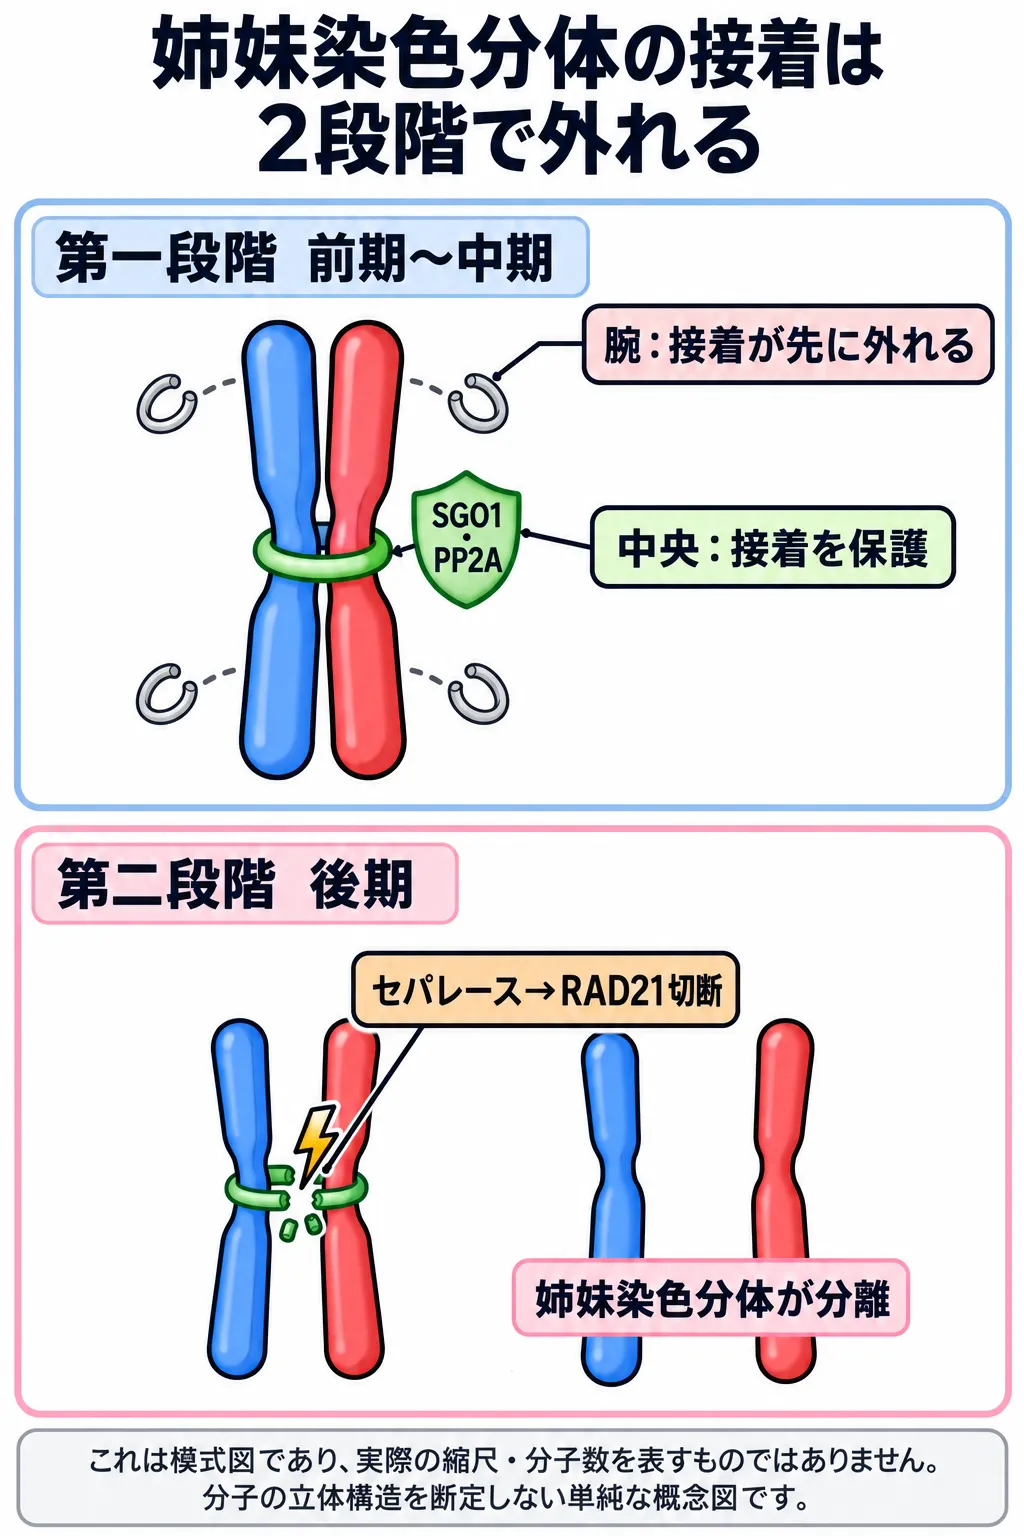
体細胞分裂では、染色体の腕の接着が先に外れ、セントロメアの接着は後期まで保たれます。後期にセパレースがコヒーシンのRAD21を切断すると、姉妹染色分体が分離します。模式図であり、実際の縮尺・分子数・立体構造を表したものではありません。
最後の一手:セパレースによる切断
すべての染色体が紡錘体に正しくつながると、後期促進複合体(APC/C)というユビキチン化の酵素が活性化され、セパレースの働きを抑えていたセキュリンが分解されます。自由になったセパレースは、コヒーシンのクレイシン(RAD21)を切断します。酵母を使った研究で、セパレースがクレイシンを切断することが姉妹染色分体の分離の引き金であることが示され[5]、同じ仕組みはヒトを含む多くの生物で保存されています。
STAG1とSTAG2の使い分けにも意味があります。ヒトの細胞を用いた研究では、STAG1を含むコヒーシンは主にテロメアの接着に、STAG2を含むコヒーシンは主にセントロメアの接着に必要であることが報告されています[6]。STAG2を含むコヒーシンは細胞内でより多く存在し、この違いは、がんでSTAG2の変異が多い理由を考えるうえでも手がかりになります(第9章)。
💡 用語解説:セパレースとセキュリン
セパレースは、特定のタンパク質を切断する酵素(プロテアーゼ)の一種で、コヒーシンのリングを切って姉妹染色分体を解放します。セキュリンは、分裂の準備が整うまでセパレースに結合して働かないようにしている「安全装置」です。準備が整うとセキュリンが分解され、セパレースが働き始めます。この順番が守られることで、染色体の分離が早すぎも遅すぎもしないタイミングで起こります。
5. 減数分裂と姉妹染色分体 ─ 卵子の加齢と染色体の数の異常
精子や卵子をつくる減数分裂では、1回のDNA複製のあとに2回の分裂が続き、染色体の数が46本から23本に半減します。ここで姉妹染色分体は、体細胞分裂とは違う特別な扱いを受けます。減数第一分裂では相同染色体のペアが分かれ、姉妹染色分体はつながったまま同じ側へ移動します。そして減数第二分裂で初めて姉妹染色分体が分かれます。つまり、姉妹の接着を2段階に分けて外す必要があります。
第一分裂の前には、相同染色体がぴったりと対合し、非姉妹染色分体の間で乗り換え(交叉)が起こります。交差した部分は顕微鏡でキアズマとして観察され、父親由来と母親由来の遺伝子の組み合わせを混ぜ合わせるとともに、相同染色体どうしをつなぎとめる役割も果たします。キアズマで結ばれた相同染色体のペアは、姉妹染色分体の腕の接着によって支えられています。そのため第一分裂では腕の接着だけを外して相同染色体を分け、セントロメアの接着は第二分裂まで守る、という2段階の制御が必要になります。
減数分裂専用のコヒーシンと「保護」の仕組み
減数分裂では、体細胞とは一部が入れ替わった専用のコヒーシンが使われます。クレイシンはRAD21の代わりにREC8、STAG1/2の代わりにSTAG3、SMC1Aの代わりにSMC1Bが加わります。STAG3と早発卵巣不全(POI)との関わりについては、STAG3遺伝子のページで解説しています。第一分裂でセントロメアのREC8を切断から守るのも、シュゴシンとPP2Aの組み合わせです。分裂酵母の研究では、減数分裂型のシュゴシンもPP2Aと結合し、セントロメアのREC8を含むコヒーシンを協調して守ることが示されています[4]。
卵子のコヒーシンは「作り直しがきかない」
ヒトの卵子のもとになる卵母細胞は、胎児期に減数第一分裂の途中まで進んだあと、排卵の直前まで長い停止状態に入ります。これをディクチオテン期停止と呼び、停止期間は十数年から40年以上に及びます。姉妹染色分体をつなぐコヒーシンは胎児期に装着されたあと、この長い停止期間中にうまく補充されず、年齢とともに少しずつ失われていくと考えられています[7]。
自然に加齢させたマウスの研究では、高齢マウスの卵母細胞で姉妹の動原体どうしの距離が広がり、染色体上のREC8が大きく減っていることが確認されました。卵子の分裂を生きたまま観察した結果、加齢に伴う異数性のおよそ9割は、セントロメアの接着の弱まりで説明できると報告されています[7]。
ヒトの卵子でも同様の傾向が示されています。9歳から43歳までの提供者から得た卵母細胞で染色体の分かれ方を追跡した研究では、卵子の異数性の頻度は年齢に対してU字形のカーブを描きました。若年では染色体丸ごとの不分離が多く、年齢が上がるとセントロメアの接着の喪失や、より広範な接着の喪失によるエラーが増えると報告されています[8]。
💡 用語解説:姉妹染色分体の早期分離(PSSC)
本来は減数第二分裂まで離れてはいけない姉妹染色分体が、第一分裂の時点で離れてしまう現象を、姉妹染色分体の早期分離(premature separation of sister chromatids)と呼びます。離れた1本がどちらの細胞に入るかが偶然に左右されるため、卵子の染色体が1本多い、または1本少ない状態が生じます。古典的な染色体不分離と並ぶ、異数性の重要な原因です。
トリソミーとのつながりと出生前検査
卵子の染色体の数がずれたまま受精すると、受精卵は染色体を1本多くもつトリソミーや、1本少ないモノソミーになります。母体年齢が上がるとトリソミーの頻度が高まることは古くから知られていましたが、その背景の一つに、姉妹染色分体をつなぐコヒーシンの加齢による減少があることがわかってきました。詳しい仕組みはなぜ卵子で染色体異常(異数性)が起こるのか、数の異常の全体像は染色体の数的異常で解説しています。
胎児の染色体の数の異常を調べる方法には、母体の血液を用いるNIPT(非侵襲性出生前検査)と、確定診断として行う羊水検査・絨毛検査があります。NIPTは非確定的検査であり、陽性の場合は羊水検査などで確認する必要があります。
🩺 院長コラム【年齢の話を「数字」だけで終わらせない】
出生前検査の説明では、母体年齢ごとのトリソミーの頻度を示す表がよく使われます。表は大切な情報ですが、数字だけを見ると「年齢が上がると何かが悪くなる」という漠然とした印象で終わりがちです。姉妹染色分体とコヒーシンの話を知ると、その数字の背景に、胎児期につくられたリングが何十年も使われ続けるという、卵子に特有の事情があることが見えてきます。
同時に、同じ研究は若い年齢でも一定の頻度でエラーが起こることを示しています。年齢は確率を動かす要因の一つであって、個々の妊娠の結果を決めるものではありません。検査の結果を読むときは、確率と個別の結果を区別して考えることが大切です。
6. 姉妹染色分体交換(SCE)と相同組換え ─ ブルーム症候群とのつながり
姉妹染色分体には、分配のための「コピー」という役目のほかに、もう一つ大切な役目があります。それは、DNAが傷ついたときの修復のお手本です。DNAの二本鎖が両方とも切れてしまう二本鎖切断は、細胞にとって最も危険な傷の一つです。S期からG2期にかけては、すぐ隣に同じ配列をもつ姉妹染色分体があるため、それを鋳型にして元どおりに修復する相同組換えが使われます。
相同組換えの最終段階では、修復中の2本のDNAが2か所で交差した「二重ホリデイ構造」という中間体ができます。この中間体のほどき方によって、交差した部分から先の腕がそっくり入れ替わる「乗り換え型」と、入れ替わらない「非乗り換え型」に分かれます。姉妹染色分体の間で腕が入れ替わることを姉妹染色分体交換(SCE)といいます。
💡 用語解説:姉妹染色分体交換(SCE)
SCE(sister chromatid exchange)は、姉妹染色分体どうしの間で、対応する部分が互いに入れ替わる現象です。姉妹染色分体はもともと同じ配列なので、入れ替わっても遺伝情報はほとんど変わりません。ただしSCEの頻度は、細胞の中で相同組換えがどれだけ乗り換え型に傾いているかを映す指標になり、細胞遺伝学的な検査で観察することができます。
BLMとTOP3Aによる「乗り換えを起こさない」ほどき方
細胞は、体細胞では乗り換え型の修復をなるべく避けるようにできています。体細胞で相同染色体どうしの乗り換えが起こると、両親由来の遺伝子の組み合わせが入れ替わり、ヘテロ接合性の喪失(LOH)という、がんの発生にもつながりうる変化を招くことがあるからです。この「乗り換えを起こさないほどき方」を担うのが、RecQファミリーのDNAヘリカーゼであるBLMと、トポイソメラーゼIIIα(TOP3A)です。BLMとTOP3Aは協力して二重ホリデイ構造を解消し、両側の配列が入れ替わるのを防ぐことが示されています[9]。この仕組みは「ディソリューション」と呼ばれ、BLM・TOP3A・RMI1・RMI2の4つでつくる複合体が担います[10]。
ブルーム症候群:SCEが著しく増える遺伝性疾患
BLM遺伝子の両方のアレルが働かなくなると、ブルーム症候群という常染色体潜性(劣性)遺伝の病気になります。主な特徴は、胎児期からの著しい成長障害、日光に当たると顔に出る赤い発疹、免疫の異常、インスリン抵抗性とそれに伴う糖尿病、そして若い年齢から多くの種類のがんが起こりやすいことです[10]。免疫の異常としては、IgMやIgAなどの免疫グロブリンが低いことが多いと報告されていますが、日和見感染のような重い感染症はまれとされています[10]。
ブルーム症候群の細胞では、SCEの頻度が1回の分裂中期あたり平均40〜100回と、通常(10回未満)に比べて著しく増えています[10]。これは、BLMが働かないために二重ホリデイ構造が乗り換え型に処理されやすくなるためで、SCEの増加はブルーム症候群を特徴づける所見です[9]。SCEは、BrdU(ブロモデオキシウリジン)という物質を含む培地で細胞を2回分裂させ、姉妹染色分体を染め分けることで観察できます。
ただし、SCEの増加はブルーム症候群だけに見られるものではありません。同じ複合体をつくるRMI2の欠失でもSCEが増え、ブルーム症候群に似た症状を示すことが報告されています[11]。TOP3Aの両アレルの変異をもつ人でも、胎児期からの成長障害や小頭症、SCEの増加がみられ、さらにミトコンドリアの機能障害を示す例があることがわかっています[12]。そのため、診断はBLMの遺伝子検査で確定し、SCE検査は補助的に位置づけられています[10]。
💡 遺伝診療の視点:保因者と家族計画
ブルーム症候群は常染色体潜性遺伝のため、両親がともに保因者の場合、子どもが発症する確率は妊娠ごとに25%です。保因者の方自身がブルーム症候群を発症することはありません。ブルーム症候群は多くの拡大保因者スクリーニングで対象疾患に含まれています[10]。対象疾患は検査ごとに異なるため、当院の拡大版保因者スクリーニングの内容はリンク先でご確認ください。家族内で原因となる変異がわかっている場合は、BLM遺伝子検査や、着床前遺伝学的検査(PGT-M)、出生前診断が選択肢になります。
7. 接着の異常で起こる病気 ─ コヒーシン病とロバーツ症候群
コヒーシンそのものや、コヒーシンを載せる・確定させる・外すといった調節に関わる遺伝子が生まれつき変化していると、発達や体の形づくりに影響する病気が起こります。これらをまとめてコヒーシン病(コヒーシノパチー)と呼びます。興味深いのは、同じ「姉妹染色分体の接着」に関わる遺伝子の病気でありながら、染色体検査で姉妹の接着異常がはっきり見えるものと、ほとんど見えないものがある点です。
コルネリア・デ・ランゲ症候群(CdLS)
コルネリア・デ・ランゲ症候群(CdLS)は、知的障害、特徴的な顔立ち、上肢の形の異常、成長の遅れなどを特徴とする先天性の症候群です[13]。原因としては、コヒーシンをDNAに載せる装着因子NIPBLの変化が古典的なCdLSの約60%を占め、コヒーシンの構成要素であるSMC1Aが約5%、SMC3が1%未満と報告されています[14]。さらに、分裂後に使い終わったコヒーシンのSMC3からアセチル基を外して再利用できるようにする酵素HDAC8の機能喪失も、CdLSの原因になることが示されました[14]。RAD21の変化による病型も知られています。
CdLSの患者さんの細胞では、染色体の数の異常や姉妹染色分体の早期の分離は、多くの場合はっきりとは見られません。HDAC8の研究では、HDAC8の機能喪失によってアセチル化されたままのSMC3が再びDNAに載り、コヒーシンが本来結合する場所での結合量が減ること、そしてその結果、NIPBL変異のCdLSとよく似た遺伝子発現の乱れが生じることが示されています[14]。つまりCdLSの症状は、姉妹染色分体の接着の不具合というよりも、コヒーシンが担う遺伝子発現の調節の乱れによって説明されると考えられています(第8章)。
ロバーツ症候群:顕微鏡で「接着の欠如」が見える病気
ロバーツ症候群は、顔や頭の形の異常と、四肢が短くなる重い四肢の形成異常を特徴とする常染色体潜性(劣性)遺伝の病気です。原因は、S期に姉妹染色分体の接着を確立するアセチル化酵素ESCO2の変異で、15家系でESCO2の変異が見つかったことから原因遺伝子として確立しました[15]。
ロバーツ症候群の特徴は、染色体検査で接着の異常が直接見えることです。患者さんの細胞では、セントロメアのヘテロクロマチン(凝縮したDNA領域)の部分で姉妹染色分体の接着が失われていることが報告されています[15]。そのため、分裂中期の染色体で本来くびれているセントロメアの部分が離れて見え、2本の姉妹染色分体が平行に並んだ「線路」のような形に観察されます。この所見は早期セントロメア分離(PCS)と呼ばれ、染色体検査(Gバンド法)の標本で確認できることがあります。
💡 用語解説:ヘテロクロマチン
ヘテロクロマチンは、DNAが特に強く折りたたまれて、遺伝子がほとんど働いていない領域のことです。セントロメアの周辺やY染色体の一部に多く存在します。ロバーツ症候群では、こうした領域で姉妹染色分体をつなぎとめる力が弱く、顕微鏡で見ると姉妹が離れているように見えます。
そのほかの関連疾患
姉妹染色分体の接着や分離の制御に関わる遺伝子の病気は、ほかにもいくつか知られています。当院では、ワルシャワ破壊症候群やCAID症候群、染色体標本で姉妹染色分体が早く離れて見える早期染色分体解離症候群、多くの細胞で染色体の数がばらばらになる多彩異数性モザイク症候群1についても解説しています。いずれも頻度の低い病気で、原因遺伝子や症状の詳細はそれぞれのページをご覧ください。
8. 接着だけではないコヒーシンの仕事 ─ ループ押し出しと3Dゲノム
コヒーシンは、姉妹染色分体が存在しないG1期の細胞にも、分裂しない神経細胞などにも存在します。これは、コヒーシンに「姉妹をつなぐ」以外の仕事があることを意味します。その代表が、DNAを輪(ループ)の形に折りたたむループ押し出しです。ヒトのコヒーシンは、装着因子NIPBL-MAU2の存在下で、ATPのエネルギーを使ってDNAを高速で輪の形に押し出す分子モーターとして働くことが、試験管内の実験で直接示されました[16]。
コヒーシンがDNAを押し出していくと、やがてCTCFというタンパク質が結合した場所で止まり、ループの根元が固定されます。こうしてできる区画はTAD(トポロジカル関連ドメイン)と呼ばれ、遠く離れた位置にあるエンハンサー(遺伝子の働きを強める配列)と遺伝子の入り口(プロモーター)を近づけたり、逆に隔てたりすることで、遺伝子発現を調節しています。染色体の立体構造の全体像は染色体の構造のページで解説しています。
興味深いことに、ループを押し出しているときのコヒーシンは、姉妹染色分体をつなぐときのようにDNAをリングの中に閉じ込めてはいないと考えられています[16]。同じ部品からできたコヒーシンが、「2本のDNAを束ねる」仕事と「1本のDNAを折りたたむ」仕事を、異なるやり方で使い分けているのです。前章のコルネリア・デ・ランゲ症候群で、染色体の見た目にほとんど異常がないのに発達に大きな影響が出るのは、この遺伝子発現の調節の仕組みが乱れるためだと考えられています。
💡 用語解説:エンハンサーとプロモーター
プロモーターは、遺伝子のすぐ手前にある「読み始めの合図」の配列です。エンハンサーは、遺伝子から遠く離れていることもある「読む量を増やす」配列で、DNAが折りたたまれてプロモーターの近くに来ることで働きます。コヒーシンがつくるループは、どのエンハンサーがどの遺伝子と出会えるかを決める、いわば配線の役割を担っています。
9. がんとコヒーシン ─ STAG2の変異と合成致死
コヒーシンの遺伝子の変化は、生まれつきの病気だけでなく、がん細胞に後から生じる変化(体細胞変異)としても見つかります。2011年の研究では、さまざまな種類の腫瘍でSTAG2の欠失や不活化変異が見つかり、正常に近い染色体をもつヒト細胞でSTAG2を働かなくすると、姉妹染色分体の接着の異常と染色体数の異常(異数性)が起こることが示されました[17]。STAG2はX染色体上にあるため、1回の変異だけで働きが失われうるという特徴があります[17]。
その後の研究で、コヒーシンはがんで最も変異の多いタンパク質複合体の一つであることがわかり、膀胱がん、小児の肉腫、白血病、脳腫瘍などで不活化変異がよく見られることが報告されています[18]。当初は染色体の分配の誤りががんの原因と考えられていましたが、現在では、コヒーシンがつくるDNAのループと遺伝子発現の調節の乱れに注目が移っています[18]。
治療の面では、合成致死という考え方が研究されています。STAG2を失ったがん細胞は、よく似た仲間のSTAG1に頼って姉妹染色分体の接着を保っているため、STAG1も働かなくすると細胞が生き延びられなくなります。この関係は、膀胱がんやユーイング肉腫の細胞株などで示されています[19]。ただし、これは細胞を使った研究段階の知見であり、STAG1を標的とする治療薬は現時点で実用化されていません。当院は遺伝診療を専門とし、がんの薬物療法は行っていないため、ここでは仕組みの紹介にとどめます。
10. 遺伝診療との接点 ─ 染色分体の知識が役立つ場面
姉妹染色分体は、それ自体を検査するというより、遺伝子診断・遺伝形式・遺伝カウンセリングのさまざまな場面で「結果を読み解くための前提知識」として関わってきます。臨床の場で関わりが深いのは、主に次の3つの場面です。
1つめは出生前検査と染色体の数の異常で、母体年齢とトリソミーの頻度の関係を理解する手がかりになります。2つめは染色体検査の所見の読み方で、ロバーツ症候群の早期セントロメア分離やブルーム症候群のSCEの増加のように、姉妹染色分体の状態そのものが診断の手がかりになる病気があります。3つめは保因者と遺伝形式で、ブルーム症候群やロバーツ症候群は常染色体潜性(劣性)遺伝、コルネリア・デ・ランゲ症候群は顕性(優性)の遺伝形式をとる病気として知られています[14]。原因遺伝子が姉妹染色分体の流れのどこを担うかがわかると、見つかった変化の意味を整理しやすくなります。
当院では、遺伝子や染色体に関わる検査の前後に、臨床遺伝専門医が遺伝カウンセリングを行っています。姉妹染色分体という概念そのものは、日常の診療で直接検査する対象ではなく、細胞生物学の基礎知見です。この記事では、検査の結果や遺伝のしくみを理解するための土台として位置づけています。
11. よくある誤解
誤解①「複製すると染色体は92本になる」
染色体はセントロメアの数で数えるため、複製後も46本のままです。92本になるのは染色分体の数です。姉妹が分かれて初めて、それぞれが独立した染色体として数えられます。
誤解②「姉妹染色分体と相同染色体は同じ」
相同染色体は父親由来と母親由来の同じ番号のペアで、遺伝子の型が違うことがあります。姉妹染色分体は1本の染色体のコピーで、配列は原則として同じです。
誤解③「姉妹の交換は遺伝情報を混ぜる」
遺伝情報を混ぜるのは、減数分裂で非姉妹染色分体の間に起こる乗り換えです。姉妹染色分体交換(SCE)は同じ配列どうしの交換なので、原則として遺伝情報は変わりません。
誤解④「コヒーシンの病気は必ず染色体の見た目に出る」
ロバーツ症候群のように見えるものもありますが、コルネリア・デ・ランゲ症候群では染色体の見た目の異常ははっきりしないことが多く、遺伝子発現の調節の乱れが主な背景と考えられています。
まとめ ─ 「コピーをつなぎ、正確に分ける」仕組みの中心
染色分体は、DNA複製でできた染色体の2本のコピーのそれぞれで、同じ染色体に由来する2本が姉妹染色分体です。複製後も染色体はセントロメアの数で46本と数え、染色分体としては92本になります。姉妹染色分体はコヒーシンというリングで束ねられ、S期のアセチル化とソロリンによって接着が確定し、分裂期には腕、セントロメアの順に接着が外され、最後にセパレースの切断によって一斉に分かれます[1]。
この仕組みは、減数分裂では2段階に分けて使われ、卵子では胎児期につくられたコヒーシンが長い年月をかけて失われていくことが、年齢とともに異数性が増える背景の一つになっています[8]。また、姉妹染色分体は傷ついたDNAを修復するお手本でもあり、その修復の後始末を担うBLMが働かないと、SCEが著しく増えるブルーム症候群になります[10]。コヒーシンはDNAのループによる遺伝子発現の調節も担っています。姉妹染色分体は、遺伝情報を「正確に複製し、正確に分ける」という細胞の基本の仕組みを理解するための、出発点になる概念です。
よくある質問(FAQ)
Q1. 染色分体(姉妹染色分体)とは何ですか?
染色分体とは、DNA複製によってできた染色体の2本のコピーのうちの1本のことです。同じ1本の染色体から複製された2本は、配列が原則として同じで、互いに姉妹染色分体と呼ばれます。姉妹染色分体はコヒーシンというリング状のタンパク質で分裂の直前まで束ねられ、分裂後期に一斉に離れて、2つの娘細胞に1本ずつ分配されます。
Q2. 染色体と染色分体は何が違うのですか?
染色体はセントロメアの数で数えるため、DNA複製の後も本数は変わりません。複製後の1本の染色体は、2本の姉妹染色分体がセントロメアでつながった状態です。ヒトの細胞では、複製後(G2期〜分裂中期)の染色体は46本、染色分体は92本になります。姉妹が分かれた時点で、それぞれが独立した染色体として数えられます。
Q3. 姉妹染色分体と相同染色体の違いは何ですか?
相同染色体は、父親由来と母親由来の同じ番号の染色体のペアで、遺伝子の型(アレル)が異なることがあります。姉妹染色分体は、1本の染色体を複製してできた2本のコピーで、配列は原則として同じです。減数分裂では、第一分裂で相同染色体が、第二分裂で姉妹染色分体が分かれます。
Q4. 年齢とともに卵子の染色体異常が増えるのは、姉妹染色分体と関係がありますか?
関係があると考えられています。卵子のもとになる細胞では、胎児期に装着されたコヒーシンが長い停止期間中にうまく補充されず、年齢とともに失われていきます。マウスの研究では加齢に伴う異数性の多くがセントロメアの接着の弱まりで説明され、ヒトの卵子の研究でも、年齢が上がるとセントロメアの接着の喪失によるエラーが増えると報告されています。ただし年齢は確率を変える要因の一つであり、個々の妊娠の結果を決めるものではありません。
Q5. 姉妹染色分体交換(SCE)とは何ですか?どんな病気と関係しますか?
SCEは、姉妹染色分体どうしの間で対応する部分が入れ替わる現象です。同じ配列どうしの交換なので、原則として遺伝情報は変わりません。BLM遺伝子が働かないブルーム症候群では、SCEが1回の分裂中期あたり平均40〜100回と、通常(10回未満)に比べて著しく増えます。RMI1・RMI2・TOP3Aの変化でもSCEが増えることがあるため、診断は遺伝子検査で確定します。
Q6. 姉妹染色分体の接着に関わる遺伝子の病気にはどのようなものがありますか?
代表的なものに、NIPBL・SMC1A・SMC3・RAD21・HDAC8などの変化によるコルネリア・デ・ランゲ症候群と、ESCO2の変化によるロバーツ症候群があります。これらはまとめてコヒーシン病と呼ばれます。ロバーツ症候群では染色体検査で姉妹染色分体の接着の欠如が見えることがありますが、コルネリア・デ・ランゲ症候群では見た目の異常ははっきりしないことが多く、遺伝子発現の調節の乱れが主な背景と考えられています。
🏥 染色分体(姉妹染色分体)について
染色分体は細胞生物学の基礎的な概念で、それ自体を検査するものではありません。
この記事は、遺伝や染色体の仕組みを正しく知っていただくための用語解説であり、特定の検査や診療をご案内するものではありません。
遺伝子や染色体の検査の結果について具体的な遺伝学的評価が必要な場合には、遺伝カウンセリングが関係することがあります。
参考文献
- [1] The cohesin complex and its roles in chromosome biology. Genes Dev. 2008. [PubMed 19056890]
- [2] Sororin mediates sister chromatid cohesion by antagonizing Wapl. Cell. 2010. [PubMed 21111234]
- [3] Aurora B and Cdk1 mediate Wapl activation and release of acetylated cohesin from chromosomes by phosphorylating Sororin. Proc Natl Acad Sci U S A. 2013. [PubMed 23901111]
- [4] Shugoshin collaborates with protein phosphatase 2A to protect cohesin. Nature. 2006. [PubMed 16541025]
- [5] Sister-chromatid separation at anaphase onset is promoted by cleavage of the cohesin subunit Scc1. Nature. 1999. [PubMed 10403247]
- [6] Differential regulation of telomere and centromere cohesion by the Scc3 homologues SA1 and SA2, respectively, in human cells. J Cell Biol. 2009. [PubMed 19822671]
- [7] Evidence that weakened centromere cohesion is a leading cause of age-related aneuploidy in oocytes. Curr Biol. 2010. [PubMed 20817534]
- [8] Chromosome errors in human eggs shape natural fertility over reproductive life span. Science. 2019. [PubMed 31604276]
- [9] The Bloom’s syndrome helicase suppresses crossing over during homologous recombination. Nature. 2003. [PubMed 14685245]
- [10] Bloom Syndrome. GeneReviews®. 2023. [NBK1398]
- [11] Loss of RMI2 Increases Genome Instability and Causes a Bloom-Like Syndrome. PLoS Genet. 2016. [PubMed 27977684]
- [12] Mutations in TOP3A Cause a Bloom Syndrome-like Disorder. Am J Hum Genet. 2018. [PubMed 30057030]
- [13] Diagnosis and management of Cornelia de Lange syndrome: first international consensus statement. Nat Rev Genet. 2018. [PubMed 29995837]
- [14] HDAC8 mutations in Cornelia de Lange syndrome affect the cohesin acetylation cycle. Nature. 2012. [PubMed 22885700]
- [15] Roberts syndrome is caused by mutations in ESCO2, a human homolog of yeast ECO1 that is essential for the establishment of sister chromatid cohesion. Nat Genet. 2005. [PubMed 15821733]
- [16] DNA loop extrusion by human cohesin. Science. 2019. [PubMed 31753851]
- [17] Mutational inactivation of STAG2 causes aneuploidy in human cancer. Science. 2011. [PubMed 21852505]
- [18] Emerging themes in cohesin cancer biology. Nat Rev Cancer. 2020. [PubMed 32514055]
- [19] Synthetic lethality between the cohesin subunits STAG1 and STAG2 in diverse cancer contexts. eLife. 2017. [eLife 26980]






