

目次

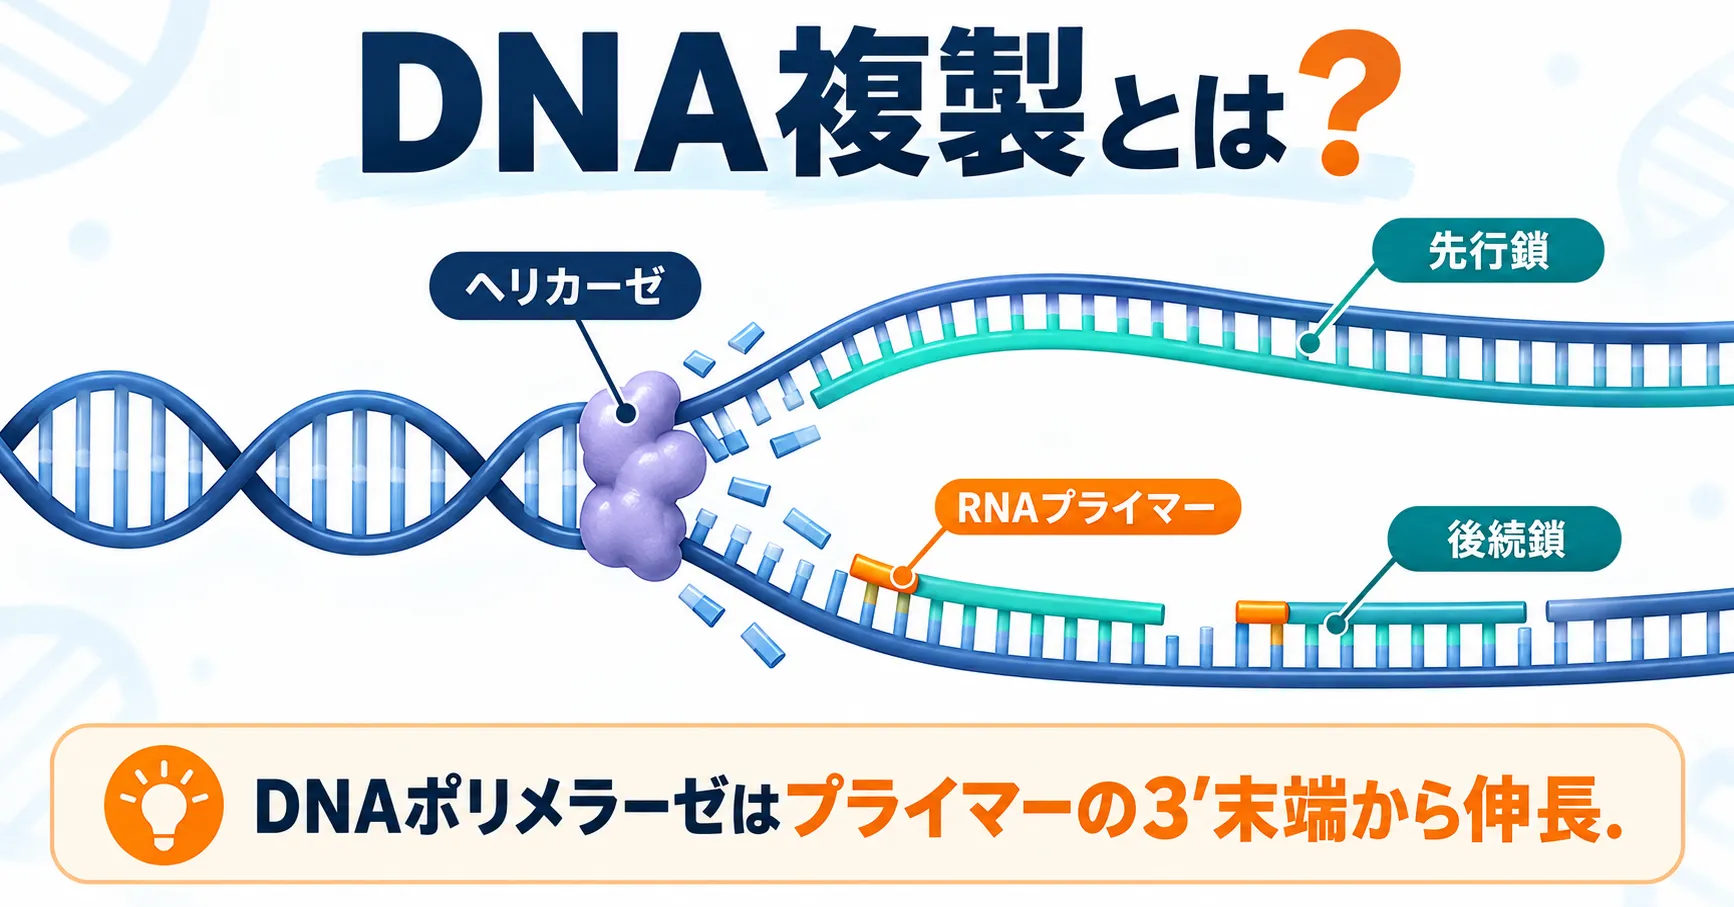
図:DNA複製の全体像。図中の「先行鎖」はリーディング鎖、「後続鎖」はラギング鎖と同じ意味です。ヘリカーゼが二重らせんをほどき、ほどけた2本の鎖を鋳型に新しい鎖が合成されます。
DNA複製とは、細胞が分裂する前に、二本鎖DNAをほどいてそれぞれの鎖を型紙(鋳型)にし、同じDNAを2組つくる仕組みです。言葉にすると単純ですが、実際にはヘリカーゼ、プライマーゼ、DNAポリメラーゼ、DNAリガーゼなど多くの酵素が順番に働きます。この記事では、DNA複製の仕組みと流れを7つのステップでわかりやすく図解し、試験でも問われやすい「酵素どうしの違い」「プライマーとは何か」「リーディング鎖とラギング鎖の違い」を整理します。最後に、複製のわずかなミスや複製の部品の異常が、遺伝性の病気とどうつながるのかを臨床遺伝専門医が解説します。
⏱️ 30秒でわかる要約
🌱 Q. DNA複製とは?簡単にいうと?
細胞分裂の前にDNAをまるごとコピーして2組にすることです。できたDNAは「元の鎖1本+新しい鎖1本」で、この様式を半保存的複製といいます。
🌱 Q. いつ・どこで起こる?
細胞周期のS期(DNA合成期)に、核の中で行われます。1回の細胞周期で1回だけです。
🌱 Q. 仕組みと流れは?
複製起点 → ヘリカーゼがほどく → プライマーゼが足場(プライマー)をつくる → DNAポリメラーゼが5’→3’方向に伸ばす → DNAリガーゼが断片をつなぐ、の順に進みます。
🌱 Q. ヘリカーゼ・ポリメラーゼ・リガーゼの違いは?
ヘリカーゼはほどく、DNAポリメラーゼは伸ばす、DNAリガーゼはつなぐ酵素です。
🌱 Q. リーディング鎖とラギング鎖の違いは?
リーディング鎖は途切れずに合成され、ラギング鎖は短い断片(岡崎フラグメント)をつないでつくられます。DNAポリメラーゼが5’→3’方向にしか伸ばせないためです。
🧬 DNA複製の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | ディーエヌエーふくせい/DNA replication |
| 定義 | 二本鎖DNAをほどき、それぞれの鎖を鋳型にして相補的な新しい鎖を合成し、同じDNAを2組つくる過程 |
| いつ(何期) | 細胞周期のS期(DNA合成期)。体細胞分裂の前にも、減数分裂の前にも1回ずつ行われる |
| どこで | 真核細胞では核の中(ミトコンドリアのDNAはミトコンドリアの中で別に複製される) |
| 複製の様式(名前) | 半保存的複製(できたDNAは元の鎖1本+新しい鎖1本) |
| 主な酵素 | ヘリカーゼ(ほどく)、プライマーゼ(足場をつくる)、DNAポリメラーゼ(伸ばす)、DNAリガーゼ(つなぐ)、トポイソメラーゼ(ねじれを取る) |
| 合成の方向 | 新しい鎖は必ず5’→3’の方向に伸びる |
| ヒトでの複製量 | ゲノム1セットは約30億塩基対(T2T-CHM13参照配列ではY染色体を除き約30.55億塩基対)[1]。体細胞は父母由来の2セットを持つため、1回の複製で約60億塩基対をコピーする |
| 関わる病気の例 | リンチ症候群(ミスマッチ修復)、マイヤー・ゴーリン症候群(複製開始の準備)、ブルーム症候群・ウェルナー症候群(ヘリカーゼ)など |
1. DNA複製とは?まず結論から
DNA複製の意味と目的
DNA複製とは、細胞が持つDNAをまるごとコピーし、同じDNAを2組そろえる働きです。DNAは、A(アデニン)・T(チミン)・G(グアニン)・C(シトシン)の4種類の塩基を持つヌクレオチドが鎖状につながったものです。2本の鎖が向かい合って二重らせんをつくっています。
向かい合う塩基は、AとT、GとCの組み合わせでしか結合しません。この決まりがあるため、片方の鎖の並びがわかれば、もう片方の並びは自動的に決まります。DNA複製は、この性質を利用して同じ並びを写し取る仕組みです。
では、なぜコピーが必要なのでしょうか。私たちの体は1個の受精卵から始まり、細胞分裂をくり返して数十兆個の細胞になります。分裂のたびにDNAを複製して均等に分けなければ、遺伝情報が分裂ごとに失われてしまいます。ヒトの場合、ゲノム1セットは約30億塩基対あり[1]、体細胞はこれを2セット持っています。そのため、1回の複製で約60億塩基対を写し取ることになります。
💡 用語解説:鋳型(いがた)と相補的
「鋳型」とは、新しい鎖をつくるときの型紙になる元の鎖のことです。「相補的」とは、AにはT、GにはCというように、決まった相手とだけ組になる性質を指します。DNA複製では、ほどけた1本の鎖を鋳型にして、相補的な塩基を持つヌクレオチドを1つずつ並べていきます。詳しくは相補性(相補的塩基対)で解説しています。
DNA複製はいつ(何期)・どこで起こる?
真核細胞では、DNA複製は細胞周期のS期(DNA合成期)に、核の中で行われます。細胞周期は、分裂の準備をするG1期、DNAを複製するS期、分裂に備えるG2期、実際に分裂するM期の順にめぐります。つまり複製は、分裂の「前」に済ませておく作業です。体細胞分裂の前にも、減数分裂の前にも、それぞれ1回ずつ行われます。
大切なのは、1回の細胞周期で複製は1回だけという点です。同じ領域を2回複製してしまうと、DNAの量に過不足が生じ、ゲノムが不安定になります。そのため細胞は、G1期に複製の準備を整え、S期に入ってから一度だけ開始させる二段階の制御を行っています(第6章で説明します)。
ヒト細胞では、ゲノム全体の複製におよそ10時間程度かかるとされていますが[2]、細胞の種類や状態によって長さは変わります。なお、ミトコンドリアも独自の小さなDNA(ミトコンドリアDNA)を持っており、核とは別の仕組みで複製されています。
DNAの複製方法の名前は「半保存的複製」
DNA複製は半保存的複製(semiconservative replication)という様式で行われます。2本の鎖がそれぞれ鋳型になるため、できあがった2組のDNAは、どちらも「元の鎖1本+新しく合成された鎖1本」の組み合わせになります。元の二本鎖の半分ずつが保存されるので「半保存的」と呼ばれます。
この様式は、1958年にメセルソンとスタールが、重い窒素(15N)で標識した大腸菌を使った実験で証明しました[3]。元の二本鎖がそのまま残る「保存的複製」の考え方は、この実験で否定されました。実験の手順や、n回目の分裂後の比率を求める計算問題の解き方は、半保存的複製の記事でまとめて解説しています。
2. DNA複製の仕組みと流れ【7ステップで図解】
DNA複製の流れは、細かな違いはあっても、大腸菌からヒトまで共通の骨組みを持っています。まず全体像を7つのステップで見てみましょう。
ステップ1:複製起点から始まる
DNA複製は、DNA上のどこからでも始まるわけではありません。複製起点(replication origin)と呼ばれる決まった場所から始まります。大腸菌ではDnaAというタンパク質が複製起点を認識し、真核生物ではORC(複製起点認識複合体)が起点に結合します。起点を最初に見つけるのはヘリカーゼではなく、こうした「開始因子」です。
真核生物では、ORCに続いてCdc6とCdt1が働き、ヘリカーゼの本体となるMCM複合体が起点に装着されます。この準備状態を複製前複合体(pre-RC)といい、G1期のうちに整えられます。S期に入ると、MCMにCdc45とGINSが加わったCMGヘリカーゼとしてDNAをほどき始めます[4]。ORCを構成するタンパク質の一つはORC1遺伝子のページで解説しています。
ステップ2:ヘリカーゼが二重らせんをほどく
複製が始まると、DNAヘリカーゼがATPのエネルギーを使い、塩基どうしの水素結合を切りながら二重らせんをほどいていきます。ほどけた一本鎖は、そのままでは再びくっついたり、からまったりします。そこで一本鎖結合タンパク質(大腸菌ではSSB、真核生物ではRPA)が一本鎖を覆って守ります。
らせんをほどき続けると、その先のDNAには強いねじれ(超らせん)がたまります。これを解消するのがトポイソメラーゼで、DNA鎖をいったん切ってねじれを戻し、再びつなぎます。ヒトでヘリカーゼとして働くタンパク質の遺伝子はDNAヘリカーゼに分類される遺伝子にまとめています。こうしてほどけた部分は、二重らせんがY字形に開いた形になります。
💡 用語解説:複製フォーク・複製バブル
複製フォークとは、二重らせんがほどけて2本の一本鎖に分かれている、Y字形の分かれ目のことです。形が食事用のフォークに似ていることから名づけられました。1つの複製起点からは両方向に2つの複製フォークが進むため、複製は起点から左右に広がる「泡(複製バブル)」のような形で進みます。
ステップ3:プライマーゼがプライマーをつくる
ほどけた一本鎖に、いきなりDNAポリメラーゼが新しい鎖をつくり始めることはできません。DNAポリメラーゼは、すでにある鎖の端にヌクレオチドを付け足すことしかできないからです[5]。そこで、プライマーゼという酵素が、鋳型に相補的な短いRNAの断片を先につくります。これがプライマー(primer)で、DNAポリメラーゼが合成を始めるための足場になります。
大腸菌などの細菌のプライマーはRNAだけでできています。一方、ヒトを含む真核生物では、DNAポリメラーゼαとプライマーゼが一体になった複合体が働きます。およそ7〜14塩基のRNAをつくったあと、続けて10〜20塩基ほどのDNAを付け足したRNA-DNAプライマーをつくります[6]。
ステップ4:DNAポリメラーゼが5’→3’方向に伸ばす
プライマーができると、DNAポリメラーゼがその3’末端に、鋳型の塩基と相補的な塩基を持つヌクレオチドを1つずつつなげていきます。材料は、3つのリン酸を持つデオキシヌクレオシド三リン酸(dNTP)です。このとき新しい鎖は必ず5’→3’の方向にしか伸びません[5]。
DNAの鎖には向きがあり、糖の炭素の番号にちなんで、一方の端を5’末端、もう一方を3’末端と呼びます。二重らせんの2本の鎖は互いに逆向き(逆平行)に並んでいます。そのため、鋳型の鎖を3’→5’の方向に読みながら、新しい鎖を5’→3’の方向に伸ばす形になります。真核生物では、主にDNAポリメラーゼεとδがこの伸長を担います[4]。
ステップ5:リーディング鎖とラギング鎖ができる
複製フォークでは2本の鋳型鎖が逆向きに並んでいるのに、DNAポリメラーゼは5’→3’方向にしか合成できません。そのため、2本の新しい鎖は違うやり方でつくられます。フォークの進む向きに合わせて途切れずに伸びる鎖がリーディング鎖(先行鎖)、フォークと逆向きに短い断片をつくってはつなぐ鎖がラギング鎖(後続鎖)です[4]。
ラギング鎖側でつくられる短いDNA断片が岡崎フラグメントです。1968年に岡崎令治・恒子両博士らが、大腸菌を使った実験で報告しました[7][8]。長さは細菌でおよそ1,000〜2,000塩基、真核生物ではおよそ200塩基前後です。酵母では、DNAが巻きつくヌクレオソームの間隔に合わせた長さになることが示されています[9]。2本の鎖の違いは第5章の表でくわしく比べます。
ステップ6:プライマーの除去とDNAリガーゼによる連結
岡崎フラグメントの先頭にはプライマーが残っているため、そのままでは完成したDNAになりません。プライマーを取り除いてDNAに置き換え、断片どうしをつなぐ作業が必要です。この作業の担い手は、細菌と真核生物で異なります。
大腸菌では、DNAポリメラーゼIが、前方のRNAプライマーを分解しながら、そのすき間をDNAで埋めていきます。真核生物では、DNAポリメラーゼδが前の断片のプライマー部分を押しのけて「フラップ」と呼ばれるはみ出しをつくり、FEN1という酵素がそれを切り取ります。長いフラップにはDna2も加わり、RNase H2を中心にRNAを分解する別の経路もあります[6]。
最後にDNAリガーゼが、断片の間に残った切れ目(ニック)をつないで、連続した1本の鎖が完成します。リガーゼが働かないと短い断片がたまることは、岡崎博士らの初期の実験でも確かめられています[10]。
ステップ7:複製の終わり方と末端複製問題
複製の終わり方は、DNAの形によって異なります。大腸菌の環状DNAでは、1つの起点から両方向に進んだ2つの複製フォークが反対側で出会い、複製が完了します。ヒトの染色体のような線状DNAでは、隣り合う起点から進んできたフォークどうしが出会った場所で複製が終わります。
ラギング鎖は、先頭にプライマーを置いてから合成するしくみです。そのため、染色体の一番端では、最後のプライマーを除いたあとの部分をDNAで埋められず、複製のたびに末端が少しずつ短くなるおそれがあります。これを末端複製問題といいます[5]。染色体の末端には、同じ短い配列がくり返し並んだテロメアという構造があり、遺伝子の本体が削られないよう守っています。
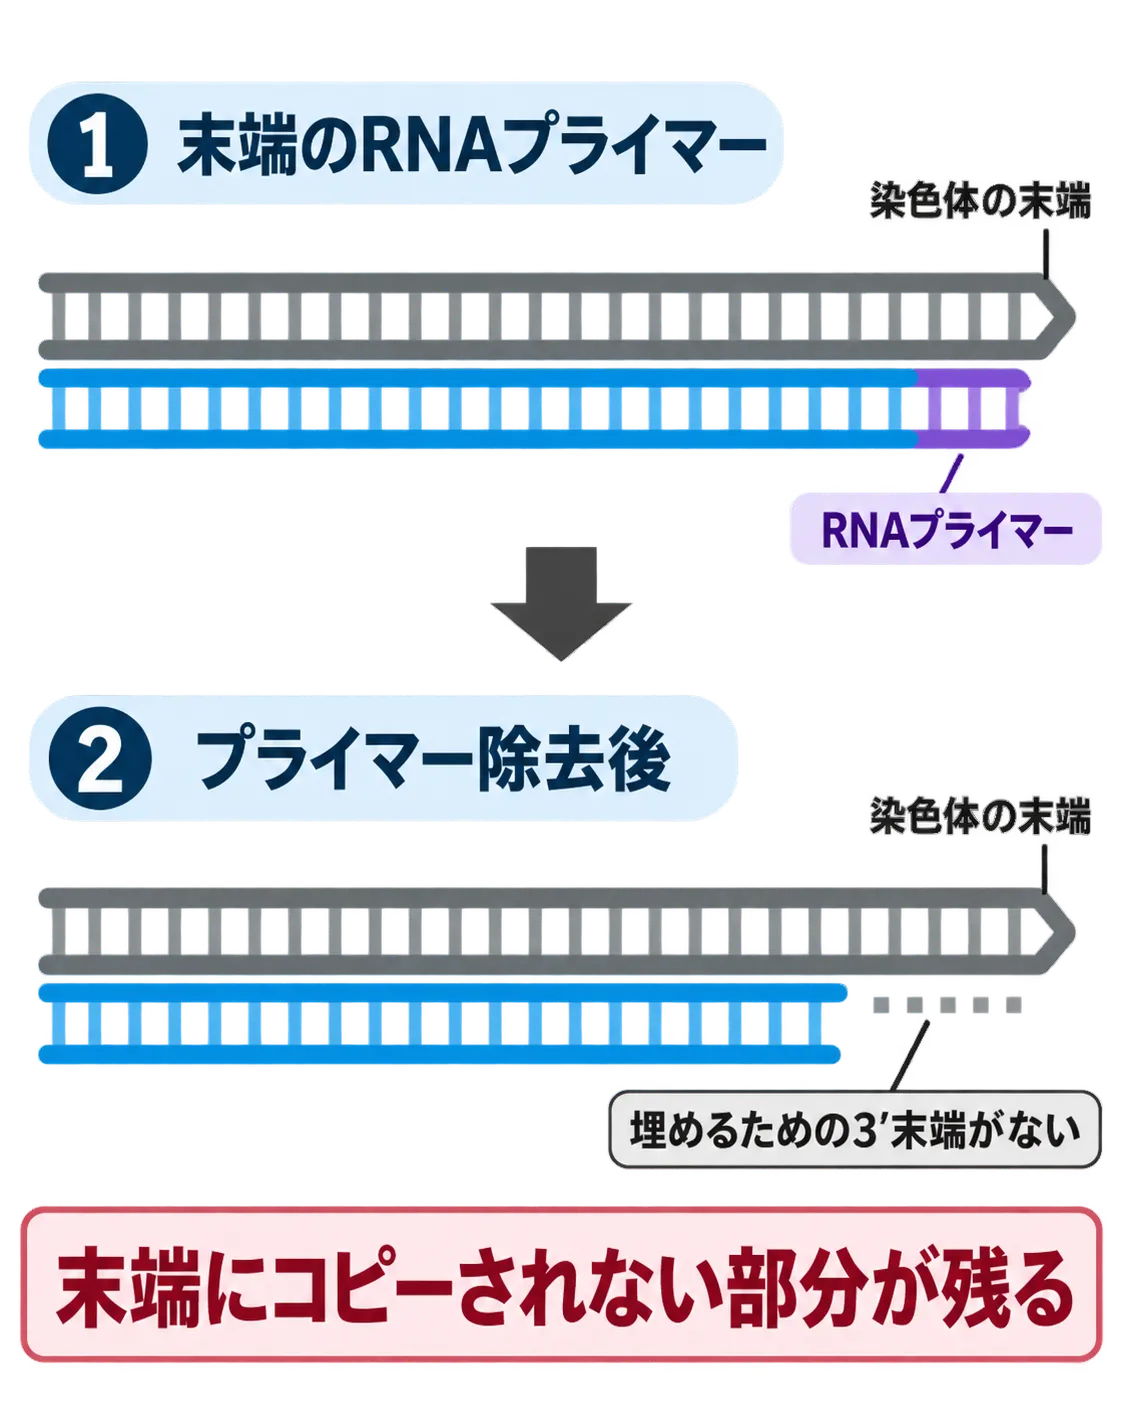
図:染色体末端では、ラギング鎖のRNAプライマーを除去した後、通常のDNA複製では埋められない部分が残ります。これが末端複製問題です。
🩺 院長コラム【ラギング鎖は「不便さ」から生まれた工夫】
高校生物でDNA複製を学ぶとき、多くの方がラギング鎖でつまずきます。なぜわざわざ断片をつくって、あとでつなぐのか。答えは、DNAポリメラーゼが5’→3’方向にしか合成できないという、たった1つの制約にあります。2本の鎖が逆向きに並んでいる以上、どちらか一方は必ず「逆走」しなければなりません。細胞はこの制約を消すのではなく、断片化して後からつなぐという手順で乗り越えています。
遺伝子の検査結果を読むときも、同じような見方をすることがあります。一見すると遠回りで不便に見える仕組みにも、その背後には分子レベルの理由があります。仕組みの理由まで理解しておくと、後で出てくる「複製のミスがどこで起こりやすいか」という話も、ずっと見通しがよくなります。
3. DNA複製に関わる酵素一覧と「違い」【ヘリカーゼ・ポリメラーゼ・リガーゼ】
ここまで登場した主な酵素とタンパク質を、働く順番に整理します。「ほどく → 守る → ねじれを取る → 足場をつくる → 伸ばす → 足場を外す → つなぐ」という流れに沿って覚えると、役割が混ざりにくくなります。
🧪 DNA複製に関わる主な酵素・タンパク質(働く順番)
| 酵素・タンパク質 | 役割 | ステップ |
|---|---|---|
| 開始因子(DnaA/ORC) | 複製起点を認識し、ヘリカーゼを呼び込む | 1 |
| DNAヘリカーゼ | ATPを使って二重らせんをほどく(真核生物ではCMGヘリカーゼ) | 2 |
| 一本鎖結合タンパク質(SSB/RPA) | ほどけた一本鎖を保護し、再結合やからまりを防ぐ | 2 |
| トポイソメラーゼ | フォーク前方にたまるねじれ(超らせん)を解消する | 2 |
| プライマーゼ | 合成の足場となるRNAプライマーをつくる(真核生物ではDNAポリメラーゼαと複合体) | 3 |
| DNAポリメラーゼ | プライマーの3’末端から5’→3’方向に新しい鎖を伸ばし、誤りを校正する(大腸菌はIII、真核生物は主にεとδ) | 4・5 |
| プライマー除去酵素 | 大腸菌はDNAポリメラーゼI、真核生物はFEN1・Dna2・RNase H2など | 6 |
| DNAリガーゼ | 断片の間の切れ目(ニック)をつないで連続した鎖にする | 6 |
※真核生物の酵素の分担は主なものを示しています。生物種や状況によって関わる酵素は異なります。
DNAヘリカーゼ・DNAポリメラーゼ・DNAリガーゼの違い
試験でもよく問われ、混同しやすいのがこの3つです。結論から言うと、ヘリカーゼは「ほどく」、DNAポリメラーゼは「伸ばす」、DNAリガーゼは「つなぐ」酵素です。切ったりつないだりする結合の種類も違います。名前の似た制限酵素は、DNA複製では働かない「切る」酵素なので、あわせて区別しておきましょう。
⚖️ ヘリカーゼ・ポリメラーゼ・リガーゼ・制限酵素の違い
| 酵素 | 何をする? | 切る/つなぐもの | ひとことで |
|---|---|---|---|
| DNAヘリカーゼ | 二重らせんをほどいて1本ずつにする | 塩基どうしの水素結合を切る(鎖そのものは切らない) | ファスナーを開ける |
| プライマーゼ | 合成の出発点となる短いRNAをつくる | RNAのヌクレオチドをつなぐ | 最初の数文字を書く |
| DNAポリメラーゼ | 鋳型に合わせてヌクレオチドを1つずつ足し、新しい鎖を伸ばす | 新しいヌクレオチドを鎖の3’末端にホスホジエステル結合でつなぐ | 文字を書き写す |
| DNAリガーゼ | 岡崎フラグメントどうしの切れ目(ニック)をふさぐ | 鎖と鎖のすき間をホスホジエステル結合でつなぐ(新しい塩基は足さない) | のりで貼り合わせる |
| 制限酵素(複製では働かない) | 決まった塩基配列を見つけてDNAを切る(細菌がウイルスから身を守るしくみ) | DNA鎖のホスホジエステル結合を切る | はさみで切る |
※ポリメラーゼとリガーゼはどちらも鎖をつなぐ酵素ですが、ポリメラーゼは「1文字ずつ足しながら伸ばす」、リガーゼは「すでにできた断片どうしの最後のすき間をふさぐ」点が違います。
特に間違えやすいのが、DNAポリメラーゼとDNAリガーゼです。どちらも鎖をつなぐ反応をしますが、ポリメラーゼは鋳型を読みながら新しい塩基を足していきます。リガーゼは新しい塩基を足さず、隣り合った断片の端どうしを結ぶだけです。ヒトのDNAリガーゼは、この反応にATPのエネルギーを使います[5]。
また、ヘリカーゼは水素結合(2本の鎖をつなぐ弱い結合)を切るだけで、鎖そのものは切りません。これに対し、制限酵素は鎖の骨組みであるホスホジエステル結合を切ります。「ほどく」と「切る」の違いと覚えると区別しやすくなります。
主な伸長酵素であるDNAポリメラーゼδやεは、合成に加えて、誤って取り込んだヌクレオチドを取り除く「校正」の機能も持っています。この校正機能については第8章で詳しく触れます。
4. プライマーとは?なぜ必要?なぜ5’→3’方向なの?
生物でいう「プライマー」とは
生物でいうプライマーとは、DNAを合成するときの出発点になる短い鎖のことです。英語のprimeには「準備する・呼び水を入れる」という意味があります。化粧品や塗装の下地も同じ言葉ですが、DNA複製では「合成を始めるための下書き」と考えるとわかりやすいでしょう。
細胞の中のDNA複製では、プライマーゼがつくるRNAのプライマーが使われます。リーディング鎖では起点で1回置けば足りますが、ラギング鎖では岡崎フラグメントごとに新しいプライマーが必要です。プライマー・岡崎フラグメント・複製起点はよく混同されるので、表で整理します。
📌 プライマー・岡崎フラグメント・複製起点の違い
なぜプライマーが必要なのか
結論から言うと、DNAポリメラーゼは、すでにある鎖の3’末端(3′-OH基)にしかヌクレオチドを付け足せず、何もないところから合成を始められないからです[5]。DNAポリメラーゼの反応は、伸びつつある鎖の3’末端に、次のヌクレオチドをつなぐ化学反応です。つなぐ相手となる3’末端がなければ、最初の1個をつなげません。
そこで、何もないところから短い鎖をつくり出せる酵素、つまりプライマーゼが先に足場を用意します。プライマーは、いわば「最初の数文字だけを書いてくれる下書き」です。
RNAプライマーとDNAプライマーの違い(なぜRNAなのか)
細胞内の複製ではRNAプライマーが、遺伝子検査などで使うPCR(ポリメラーゼ連鎖反応)では人工的に合成したDNAプライマーが使われます。PCRでは、調べたい場所の両端に合うDNAプライマーを加えることで、DNAポリメラーゼに目的の場所から合成を始めさせています。
では、細胞はなぜ最初だけRNAを使うのでしょうか。主な伸長酵素であるDNAポリメラーゼδやεは校正機能を持ちますが、何もないところから合成を始めることはできません。何もないところから鎖をつくり始める酵素は、その性質上、正確さの面で不利になりやすいと考えられています[5]。
そこで、あとで取り除く前提の「RNAの目印つき」の足場を使い、正確さの劣る部分を後から置き換えている、と説明されます。真核生物ではDNAポリメラーゼαにも校正機能がなく、RNA部分は後で除去されます。DNAポリメラーゼαが合成したDNA部分も、フラップ処理などで一部が置き換わります[6]。ただし、すべてが除去されるわけではなく、RNAを使う進化上の理由を一つに断定することもできません。
なぜ5’→3’方向にしか合成できないのか
合成の方向を決めているのは、反応のエネルギーをどこから得るかです。DNAポリメラーゼは、新しく加わるdNTPが持つ3つのリン酸のうち2つを切り離すときのエネルギーを使って、鎖の3’末端とつなぎます。つまり、エネルギーの源は「新しく入ってくる側」にあります[5]。
仮に逆向き(3’→5’方向)に伸ばす仕組みだったとすると、エネルギーを持つ三リン酸が「伸びている鎖の端」に付いていなければなりません。その場合、校正で末端の誤ったヌクレオチドを取り除くと、エネルギー源も一緒に失われ、合成を続けられなくなります。5’→3’方向であれば、末端を取り除いても次に入ってくるdNTPがエネルギーを持ち込むので、校正と合成を両立できます。
5. リーディング鎖とラギング鎖の違いをわかりやすく
リーディング鎖は途切れずに合成される鎖、ラギング鎖は短い断片をつないでつくられる鎖です。違いが生まれる理由はただ1つ、DNAポリメラーゼが5’→3’方向にしか合成できないことにあります。
ファスナーを開けながら、両側の歯に沿って同じ向きにしか文字を書けないペンで書き写す場面を想像してください。片側は、開いていく向きとペンの向きが同じなので、ファスナーを追いかけながら書き続けられます(リーディング鎖)。反対側は向きが逆なので、少し開くたびに戻って短く書き、また少し開いたら書く、をくり返すしかありません(ラギング鎖)。
🔀 リーディング鎖とラギング鎖の違い
| 項目 | リーディング鎖(先行鎖) | ラギング鎖(後続鎖) |
|---|---|---|
| 合成の向き | 複製フォークの進む向きと同じ | 複製フォークの進む向きと逆 |
| 合成のしかた | 連続的(途切れずに伸びる) | 不連続的(短い断片を少しずつつくる) |
| プライマーの数 | 基本的に起点で1回 | 断片ごとに何度も必要 |
| 岡崎フラグメント | できない | できる(あとでDNAリガーゼがつなぐ) |
| 主なDNAポリメラーゼ(真核生物) | DNAポリメラーゼε | DNAポリメラーゼδ |
| 英語 | leading strand | lagging strand(lag=遅れる) |
※どちらの鎖がリーディング鎖になるかは決まっていません。1つの複製起点から左右に2つのフォークが進むため、同じ鋳型鎖でも、起点の右側と左側でリーディング鎖とラギング鎖が入れ替わります。
ラギング鎖と岡崎フラグメントもよく混同されますが、岡崎フラグメントは「部品」、ラギング鎖は「部品をつないで完成した鎖」と考えると区別しやすくなります。発見の経緯や長さの違いは岡崎フラグメントの記事で詳しく解説しています。
6. 原核生物と真核生物のDNA複製の違い
DNA複製の基本の流れは共通していますが、大腸菌と、ヒトを含む真核生物とでは、いくつかの点がはっきり異なります[11][12]。
⚖️ 大腸菌(原核生物)とヒト(真核生物)のDNA複製の比較
| 項目 | 大腸菌(代表例) | 真核生物(ヒトなど) |
|---|---|---|
| DNAの形 | 環状 | 線状(複数の染色体) |
| 複製起点の数 | 1つ | 多数(ヒトでは1回の細胞周期に数万か所が活性化すると推定) |
| 起点を認識する因子 | DnaA | ORC(複製起点認識複合体) |
| 主な複製ポリメラーゼ | DNAポリメラーゼIII | DNAポリメラーゼα・δ・ε |
| プライマー | RNAのみ | RNA+DNAのハイブリッド |
| 岡崎フラグメントの長さ | 約1,000〜2,000塩基 | 約200塩基前後 |
| 末端複製問題 | なし(環状のため) | あり(テロメアが末端を保護) |
| クロマチン | ヌクレオソーム構造なし | 複製とともにヌクレオソームを組み立て直す |
※数値は目安です。生物種や測定方法によって幅があります。
特に大きな違いは、ゲノムの大きさに合わせた複製の進め方です。大腸菌は1つの起点から環状DNA全体を複製できますが、ヒトの長い線状DNAを1か所から複製していては、S期の時間内に終わりません。そのため真核生物は、多数の起点から同時並行で複製を進めます。また真核生物のDNAはヌクレオソームという糸巻き状の構造に巻きついているため、複製フォークが通るたびにいったんほどき、複製後に組み立て直す必要があります。
真核生物の複製起点と「1回だけ」の仕組み
ヒトでは、細胞種や測定法によって異なりますが、1回の細胞周期で数万か所の複製起点が活性化されると報告されています[11]。G1期には実際に発火する起点より多くの候補が準備され、発火しなかった一部は予備として控えています[2]。この休眠起点は、フォークの進行が止まったときに代わりに発火し、複製を時間内に終わらせる役割を持つと考えられています。こうしたフォークの停滞や遅延は複製ストレスと呼ばれます。
ヒトの複製起点には、大腸菌のような決まった配列がはっきりとは見つかっておらず、クロマチンの状態などが起点の選ばれ方に影響すると考えられています[11]。どの領域をS期のどの時期に複製するかにも一定の順序があり、これを複製タイミングと呼びます。G1期に起点を準備(ライセンス化)し、S期に一度だけ発火させる二段階の制御によって、「1回の細胞周期で1回だけ」の複製が守られています[4]。
7. DNA複製と転写・翻訳の違い
DNA複製は、転写とよく混同されます。どちらもDNAの塩基配列を写し取る点では似ていますが、目的も、使う酵素も、できあがるものも異なります。DNAポリメラーゼとRNAポリメラーゼの違いも、この表で整理できます。
🔁 DNA複製と転写の違い(DNAポリメラーゼとRNAポリメラーゼの違い)
| 項目 | DNA複製 | 転写 |
|---|---|---|
| 目的 | ゲノム全体をコピーし、分裂後の細胞に分ける | 必要な遺伝子の情報をRNAに写し、タンパク質合成などに使う |
| 写し取る範囲 | ゲノムDNAのすべて(両方の鎖) | 必要な遺伝子の部分(片方の鎖が鋳型) |
| 主な酵素 | DNAポリメラーゼ | RNAポリメラーゼ |
| 材料 | dNTP(デオキシリボヌクレオシド三リン酸) | NTP(リボヌクレオシド三リン酸) |
| プライマー | 必要 | 不要(何もないところから合成を始められる) |
| 校正の働き | 強い(3’→5’エキソヌクレアーゼ活性) | 弱い |
| できるもの | 二本鎖DNA | 一本鎖RNA(TのかわりにUを使う) |
| 回数・時期 | 1回の細胞周期で1回(S期) | 必要に応じて何度でも |
DNAの情報がRNAへ写され(転写)、RNAの情報をもとにタンパク質がつくられる(翻訳)という情報の流れは、セントラルドグマと呼ばれます。転写・翻訳が「情報を使う」働きだとすれば、複製は「情報を守り、受け渡す」働きだといえます。
8. DNAはどのように正確に複製されているか?ミスと修復のしくみ
正確さを支える3段階
DNA複製は非常に正確ですが、完全に誤りのない作業ではありません。正確さは、次の3段階の仕組みが順に重なることで保たれています[13]。
● 塩基の選択:DNAポリメラーゼが、鋳型に合う正しい塩基の組み合わせを選ぶ
● 校正(プルーフリーディング):誤ったヌクレオチドを取り込んだとき、DNAポリメラーゼ自身が1つ戻って取り除く
● ミスマッチ修復:校正をすり抜けた誤りを、複製が終わった後に見つけて直す[14]
校正の働きは、3’→5’エキソヌクレアーゼ活性と呼ばれます。3段階目の仕組みはミスマッチ修復の記事で詳しく解説しています。
💡 用語解説:エキソヌクレアーゼ(校正の道具)
ヌクレアーゼとは、DNAやRNAの鎖を切る酵素の総称です。そのうち鎖の端から1つずつ切り取るものをエキソヌクレアーゼと呼びます。DNAポリメラーゼδやεは、合成する部位とは別に、鎖の端を削る3’→5’エキソヌクレアーゼの部位を持っています。詳しくはエキソヌクレアーゼとヌクレアーゼをご覧ください。
DNA複製でミスが起こる確率は?
大腸菌での推定では、DNAポリメラーゼが誤った塩基を選ぶ確率はおよそ10万分の1(10⁻⁵)です。そのうち校正をすり抜けるのが約100分の1(10⁻²)、さらにミスマッチ修復をすり抜けるのが約1,000分の1(10⁻³)とされます。これらを掛け合わせると、1回の複製で1塩基あたりおよそ100億分の1(10⁻¹⁰)という低い誤り率になります[14]。
ただし、これは大腸菌を中心とした推定で、生物の種類、DNAの配列、測定方法によって値は変わります。特に、同じ短い配列が何度もくり返す領域(反復配列)では、合成中の鎖がずれやすく、塩基が1つ増えたり減ったりする誤りが起こりやすいことが知られています[13]。個々の数字よりも、「3段階の見直しで誤りが桁違いに減らされている」という全体像を押さえておくことが大切です。
9. DNA複製のミス・部品の異常と遺伝性疾患|臨床遺伝専門医の視点
3段階の仕組みでも直しきれなかったわずかな誤りは、変異として次の細胞に引き継がれます。多くは健康に影響しませんが、場所や種類によっては病気の原因になることがあります。また、複製を担う酵素や部品そのものの遺伝子が変化して起こる病気もあります。
de novo変異と父親の年齢
両親のどちらも持っていない遺伝子の変化が、子どもに新しく生じることがあります。これを新生突然変異(de novo変異)と呼びます。アイスランドの78組の親子を全ゲノム解析した研究では、新生突然変異は平均して1世代あたり1塩基につき約1.2×10⁻⁸でした。子に伝わる新しい変異の数は、父親の年齢が1歳上がるごとにおよそ2個ずつ増えていました[15]。
この「父親の年齢効果」は、精子のもとになる細胞が生涯にわたって分裂をくり返し、そのたびにDNAを複製して誤りが積み重なるため、と長く説明されてきました。しかしその後の大規模な解析では、複製の誤りだけでなく、DNA損傷の寄与も大きいという見方が示されています[16]。これらは集団での平均値で、ある父親の子どもに病気が生じる確率を個別に示すものではありません。
赤ちゃんに新しく起きた単一遺伝子の変化による病気の一部は、妊娠中に調べることもできます。当院の東京のNIPT(新型出生前診断)では、ダイヤモンドプランで56遺伝子、インペリアルプランで最大155遺伝子202疾患の単一遺伝子の病気を調べます。陽性の場合は確定検査(絨毛検査・羊水検査)で確かめる必要があり、当院では確定検査まで院内で受けられます。
反復配列の「ずれ」とリピート伸長病
第8章で触れたように、同じ短い配列がくり返す反復配列では、複製中に鎖がずれて、くり返しの回数が増えたり減ったりしやすくなります。このくり返しが異常に長くなって起こる病気をリピート伸長病といい、2007年の時点でおよそ30の遺伝性疾患がこの仕組みで起こると整理されていました[17]。反復配列が伸びやすいのは、DNAが特殊な立体構造をとりやすく、複製・修復・組換えの仕組みをかく乱するためと考えられています[17]。
ミスマッチ修復の破綻とリンチ症候群
ミスマッチ修復がうまく働かないと、複製の誤りが直されずに蓄積します。反復配列の長さが細胞ごとにばらばらに変化するため、マイクロサテライト不安定性(MSI)という特徴的な状態が生じます[13]。
MLH1、MSH2、MSH6、PMS2などのミスマッチ修復遺伝子の生殖細胞系列の病的バリアントや、EPCAMの一部欠失は、リンチ症候群の原因として知られています[18][19]。大腸がんや子宮体がんなどが若い年齢で起こりやすくなる病気で、複製の誤りを直す仕組みの遺伝的な障害が遺伝性腫瘍の素因につながる例です。
複製の「部品」の遺伝子で起こる病気
DNA複製の各ステップを担う酵素やタンパク質の遺伝子が変化すると、複製そのものがうまく進まなくなり、病気が起こることがあります。ステップ1の複製起点の準備に関わる遺伝子ではマイヤー・ゴーリン症候群が、ステップ2のヘリカーゼの仲間ではブルーム症候群やウェルナー症候群が起こります。
🏥 DNA複製の「部品」の遺伝子の変化で起こる病気の例
| 病気 | 関わる遺伝子 | 複製のどこが乱れるか | 主な特徴 |
|---|---|---|---|
| マイヤー・ゴーリン症候群 | ORC1・ORC4・ORC6・CDT1・CDC6・CDC45・GMNNなど | 複製起点の準備(複製前複合体の形成)[20][21] | 小耳症・膝蓋骨の低形成・生まれる前からの低身長 |
| ブルーム症候群 | BLM | RecQ型ヘリカーゼ(複製中の構造をほどく・修復する)[22] | 小柄な体格、日光過敏、若い年齢からのがん |
| ウェルナー症候群 | WRN | RecQ型ヘリカーゼ[23] | 思春期以降の早期老化(成人早老症) |
| POLG関連疾患 | POLG | ミトコンドリアDNAを複製するDNAポリメラーゼγ[24] | てんかん・筋力低下・眼瞼下垂など、年齢により多様 |
| ポリメラーゼ校正関連ポリポーシス | POLE・POLD1 | DNAポリメラーゼε・δの校正(エキソヌクレアーゼ)部分[25] | 大腸腺腫・大腸がんなど |
| リンチ症候群 | MLH1・MSH2・MSH6・PMS2・EPCAM | 複製後のミスマッチ修復[18][19] | 大腸がん・子宮体がんなどが若い年齢で起こりやすい |
※いずれも「DNA複製に関わる部品の遺伝子」が原因になる例です。症状の現れ方には個人差があります。
マイヤー・ゴーリン症候群は、ORC1・ORC4・ORC6・CDT1・CDC6など、複製前複合体をつくる遺伝子の変化で起こることが2011年に報告されました[20]。現在は13の原因遺伝子が知られ、最も多いのはCDT1です[21]。多くは常染色体潜性(劣性)遺伝です。ミネルバクリニックでは、原因の7遺伝子をまとめて調べるマイヤー・ゴーリン症候群の遺伝子検査(税込330,000円)を受けられます。
ミトコンドリアDNAの複製を担うDNAポリメラーゼγの遺伝子(POLG)の変化は、てんかんや筋力の低下などさまざまな症状のミトコンドリア病の原因になります[24]。また、DNAポリメラーゼεとδの校正部分の遺伝子(POLE・POLD1)の生まれつきの変化は、大腸腺腫や大腸がんの素因になると報告されています[25]。
🩺 院長コラム【「誤りがある」ことと「病気になる」ことは別の話】
DNA複製の誤りの話をすると、「そんなに毎回コピーしていたら、体中が変異だらけになるのでは」と感じる方がいます。実際には、3段階の見直しで誤りは桁違いに減らされ、残ったわずかな変化の多くは、遺伝子の働きに影響しない場所に起こります。変化があることと、それが病気につながることは、分けて考える必要があります。
一方で、父親の年齢と新生突然変異の関係のように、集団のデータとしてははっきり示されていても、個々のご家族にそのまま当てはめられない情報もあります。臨床遺伝専門医として遺伝カウンセリングを行うときは、こうした数字が何を意味し、何を意味しないのかを区別してお伝えすることを大切にしています。
まとめ
DNA複製とは、細胞周期のS期に二本鎖DNAをほどき、それぞれの鎖を鋳型にして同じDNAを2組つくる過程です。複製起点から始まり、ヘリカーゼがほどき、プライマーゼがプライマーをつくり、DNAポリメラーゼが5’→3’方向に新しい鎖を伸ばします。一方は連続したリーディング鎖、もう一方は岡崎フラグメントをつないだラギング鎖として合成され、最後にDNAリガーゼが断片をつないで完成します。
複製の正確さは、塩基の選択・校正・ミスマッチ修復の3段階で保たれています。それでもすり抜けたわずかな誤りや、複製の部品の遺伝子の変化は、新生突然変異、リピート伸長病、リンチ症候群、マイヤー・ゴーリン症候群などの遺伝性の病気とつながっています。
よくある質問(FAQ)
Q1. DNA複製とは何ですか?簡単に教えてください。
細胞が分裂する前に、DNAをまるごとコピーして同じDNAを2組つくることです。二重らせんをほどき、1本ずつの鎖を型紙(鋳型)にして、AにはT、GにはCという決まりで新しい鎖をつくります。できたDNAは元の鎖1本と新しい鎖1本の組み合わせになり、これを半保存的複製といいます。
Q2. DNA複製はいつ(何期)・どこで行われますか?
細胞周期のS期(DNA合成期)に、真核細胞では核の中で行われます。体細胞分裂の前にも、減数分裂の前にも、1回ずつ行われます。ミトコンドリアは独自のDNAを持ち、ミトコンドリアの中で別に複製されます。
Q3. DNAリガーゼとDNAポリメラーゼの違いは何ですか?
DNAポリメラーゼは、鋳型に合わせてヌクレオチドを1つずつ足しながら新しい鎖を伸ばす酵素です。DNAリガーゼは新しい塩基を足さず、岡崎フラグメントどうしの間に残った切れ目(ニック)をつないで1本の鎖にする酵素です。
Q4. DNAヘリカーゼとDNAリガーゼの違いは何ですか?
DNAヘリカーゼは、塩基どうしの水素結合を切って二重らせんをほどく酵素で、複製の最初に働きます。DNAリガーゼは、複製の最後に断片どうしの切れ目をつなぐ酵素です。ほどく酵素とつなぐ酵素なので、働く場面も相手も違います。
Q5. 生物で「プライマー」とは何ですか?
DNAを合成するときの出発点になる短い鎖のことです。DNAポリメラーゼは何もないところから合成を始められないため、細胞内ではプライマーゼが短いRNAのプライマーを先につくり、その3’末端からDNAを伸ばします。PCRでは人工的に合成したDNAのプライマーを使います。
Q6. リーディング鎖とラギング鎖の違いは何ですか?
リーディング鎖は複製フォークの進む向きに合わせて途切れずに合成される鎖、ラギング鎖はフォークと逆向きに短い断片(岡崎フラグメント)を少しずつつくってつなぐ鎖です。DNAポリメラーゼが5’→3’方向にしか合成できないため、2本の鎖で合成のしかたが変わります。
Q7. DNA複製はRNAポリメラーゼで行われるのですか?
新しいDNA鎖を合成する主役はDNAポリメラーゼで、RNAポリメラーゼではありません。ただし、合成の足場となるRNAプライマーをつくるプライマーゼは、RNAを合成する酵素です。転写で遺伝子の情報をRNAに写すRNAポリメラーゼとは別の酵素です。
Q8. 減数分裂ではDNA複製は何回行われますか?
1回です。減数分裂では、分裂の前にDNA複製が1回だけ行われ、その後に2回続けて分裂します。そのため、できあがる配偶子(精子や卵子)の染色体の数は、元の細胞の半分になります。
Q9. DNA複製とPCRの違いは何ですか?
PCRは、DNA複製の原理を試験管の中で利用して、特定の領域だけを大量に増やす技術です。細胞内ではヘリカーゼが二重らせんをほどき、プライマーゼがRNAプライマーをつくりますが、PCRでは加熱で二本鎖を分け、人工のDNAプライマーと熱に強いDNAポリメラーゼで合成します。
Q10. DNA複製に関わる遺伝子の病気は、遺伝子検査で調べられますか?
はい。複製の準備に関わる遺伝子の変化で起こるマイヤー・ゴーリン症候群は、ミネルバクリニックで原因の7遺伝子をまとめて調べる遺伝子検査(税込330,000円)を受けられます。ほかの遺伝子は、選んだ遺伝子だけを調べるカスタムパネル(1遺伝子275,000円・2遺伝子以上363,000円、税込)で調べられます。
\ DNA複製の準備に関わる遺伝子を調べる /
🧬 遺伝子検査・NIPTをご検討の方へ
ミネルバクリニックには臨床遺伝専門医が常駐しています。DNA複製の準備に関わる7遺伝子を調べるマイヤー・ゴーリン症候群の遺伝子検査(税込330,000円)のほか、調べたい遺伝子を選べるカスタムパネル(1遺伝子275,000円・2遺伝子以上363,000円、税込)を受けられます。妊娠中の方は、ダイヤモンドプラン(56遺伝子)・インペリアルプラン(最大155遺伝子202疾患)のNIPTで赤ちゃんの単一遺伝子の病気の一部を調べられ、陽性なら確定検査まで院内で受けられます。
参考文献
- [1] Nurk S, Koren S, Rhie A, et al. The complete sequence of a human genome. Science. 2022;376(6588):44-53. [PubMed 35357919]
- [2] Courtot L, Hoffmann JS, Bergoglio V. The Protective Role of Dormant Origins in Response to Replicative Stress. Int J Mol Sci. 2018;19(11):3569. [DOI 10.3390/ijms19113569]
- [3] Meselson M, Stahl FW. The replication of DNA in Escherichia coli. Proc Natl Acad Sci U S A. 1958;44(7):671-682. [PubMed 16590258]
- [4] Burgers PMJ, Kunkel TA. Eukaryotic DNA Replication Fork. Annu Rev Biochem. 2017;86:417-438. [PubMed 28301743]
- [5] Alberts B, Johnson A, Lewis J, et al. DNA Replication Mechanisms. In: Molecular Biology of the Cell. 4th ed. Garland Science; 2002. [NCBI Bookshelf NBK26850]
- [6] Zheng L, Shen B. Okazaki fragment maturation: nucleases take centre stage. J Mol Cell Biol. 2011;3(1):23-30. [PubMed 21278448]
- [7] Okazaki R, Okazaki T, Sakabe K, Sugimoto K, Sugino A. Mechanism of DNA chain growth. I. Possible discontinuity and unusual secondary structure of newly synthesized chains. Proc Natl Acad Sci U S A. 1968;59(2):598-605. [PubMed 4967086]
- [8] Burgers PMJ. Solution to the 50-year-old Okazaki-fragment problem. Proc Natl Acad Sci U S A. 2019;116(9):3358-3360. [DOI 10.1073/pnas.1900372116]
- [9] Smith DJ, Whitehouse I. Intrinsic coupling of lagging-strand synthesis to chromatin assembly. Nature. 2012;483(7390):434-438. [PubMed 22419157]
- [10] Sugimoto K, Okazaki T, Okazaki R. Mechanism of DNA chain growth, II. Accumulation of newly synthesized short chains in E. coli infected with ligase-defective T4 phages. Proc Natl Acad Sci U S A. 1968;60(4):1356-1362. [PubMed 4299945]
- [11] Méchali M. Eukaryotic DNA replication origins: many choices for appropriate answers. Nat Rev Mol Cell Biol. 2010;11(10):728-738. [DOI 10.1038/nrm2976]
- [12] O’Donnell M, Langston L, Stillman B. Principles and concepts of DNA replication in bacteria, archaea, and eukarya. Cold Spring Harb Perspect Biol. 2013;5(7):a010108. [PubMed 23818497]
- [13] Kunkel TA. DNA replication fidelity. J Biol Chem. 2004;279(17):16895-16898. [PubMed 14988392]
- [14] Fijalkowska IJ, Schaaper RM, Jonczyk P. DNA replication fidelity in Escherichia coli: a multi-DNA polymerase affair. FEMS Microbiol Rev. 2012;36(6):1105-1121. [PubMed 22404288]
- [15] Kong A, Frigge ML, Masson G, et al. Rate of de novo mutations and the importance of father’s age to disease risk. Nature. 2012;488(7412):471-475. [PubMed 22914163]
- [16] Gao Z, Moorjani P, Sasani TA, et al. Overlooked roles of DNA damage and maternal age in generating human germline mutations. Proc Natl Acad Sci U S A. 2019;116(19):9491-9500. [PubMed 31019089]
- [17] Mirkin SM. Expandable DNA repeats and human disease. Nature. 2007;447(7147):932-940. [PubMed 17581576]
- [18] Kunkel TA, Erie DA. DNA mismatch repair. Annu Rev Biochem. 2005;74:681-710. [PubMed 15952900]
- [19] Idos G, Valle L. Lynch Syndrome. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 1993-. [NCBI Bookshelf NBK1211]
- [20] Bicknell LS, Bongers EM, Leitch A, et al. Mutations in the pre-replication complex cause Meier-Gorlin syndrome. Nat Genet. 2011;43(4):356-359. [PMC3068194]
- [21] Nielsen-Dandoroff E, Ruegg MSG, Bicknell LS. The expanding genetic and clinical landscape associated with Meier-Gorlin syndrome. Eur J Hum Genet. 2023;31(8):859-868. [PMC10400559]
- [22] Flanagan M, Cunniff CM. Bloom Syndrome. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 1993-. [NCBI Bookshelf NBK1398]
- [23] Oshima J, Martin GM, Hisama FM. Werner Syndrome. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 1993-. [NCBI Bookshelf NBK1514]
- [24] Cohen BH, Chinnery PF, Copeland WC. POLG-Related Disorders. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 1993-. [NCBI Bookshelf NBK26471]
- [25] Palles C, Cazier JB, Howarth KM, et al. Germline mutations affecting the proofreading domains of POLE and POLD1 predispose to colorectal adenomas and carcinomas. Nat Genet. 2013;45(2):136-144. [PubMed 23263490]






