

目次
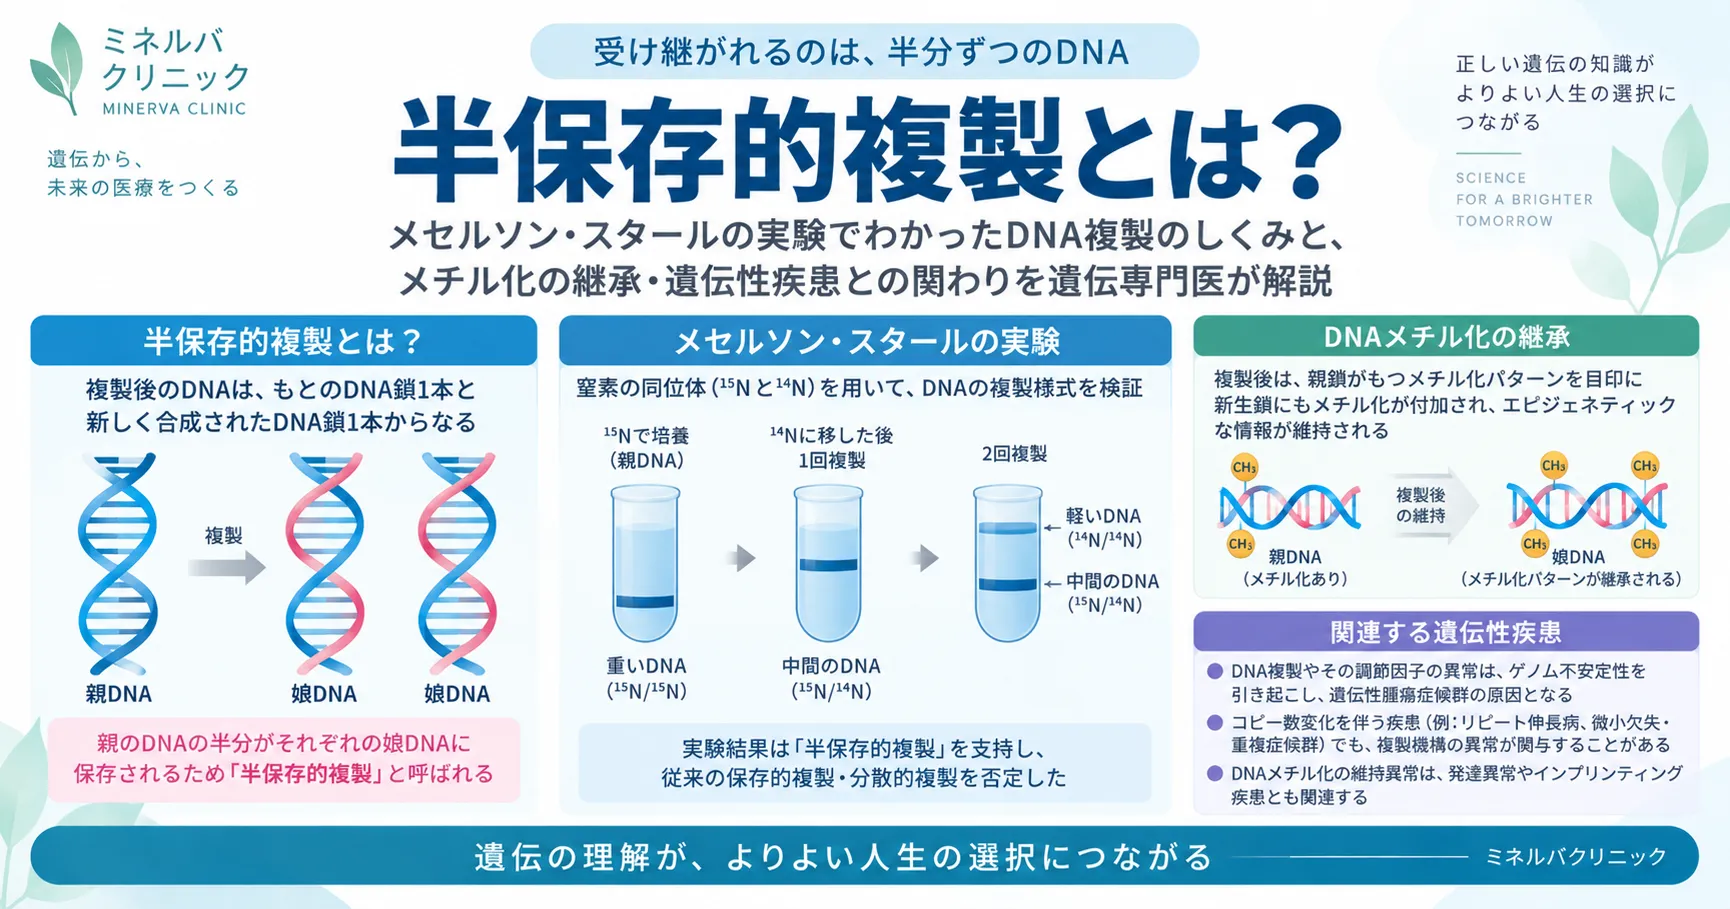
半保存的複製(はんほぞんてきふくせい)とは、DNAの2本の鎖がそれぞれ鋳型(いがた、型紙)になり、「もとの鎖1本+新しい鎖1本」のDNAが2つできる複製のしかたです。1958年、メセルソンとスタールが重い窒素(15N)を使った大腸菌の実験で証明しました。1回目の分裂で中間の重さのDNAだけが、2回目で中間と軽いDNAが1対1で現れたことが決め手です。
⏱️ 30秒でわかる要約
🧬 Q. 半保存的複製とは?簡単に言うと?
DNAの2本の鎖がほどけ、それぞれが型紙になって新しい相手の鎖をつくる複製のしかたです。できた2つのDNAは、どちらも「もとの鎖1本+新しい鎖1本」です。
🧬 Q. 誰がどうやって証明したの?
1958年、メセルソンとスタールが証明しました。大腸菌のDNAを重い窒素(15N)で重くし、軽い窒素(14N)の培地で増やして、DNAの重さの変化を遠心分離で調べました。
🧬 Q. 実験の結果は?
1回目の分裂後は中間の重さのDNAだけ、2回目は中間:軽い=1:1でした。1回目で保存的複製が、2回目で分散的複製が否定されました。
🧬 Q. n回目の比率の公式は?
n回分裂させたあと(nは1以上)、中間:軽い=1:(2n−1−1)です。3回目は1:3、4回目は1:7で、重いDNAは1回目から0です。
🧬 Q. 医療とどう関係するの?
この性質を使って姉妹染色分体を染め分ける検査があり、ブルーム症候群の診断の補助に使われます。DNAメチル化が細胞分裂を越えて受け継がれる仕組みも、半保存的複製の上に成り立っています。
🧬 半保存的複製の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | 半保存的複製(はんほぞんてきふくせい)=semiconservative replication |
| ひとことで言うと | DNAの2本の鎖がそれぞれ鋳型になり、「もとの鎖1本+新しい鎖1本」のDNAが2つできる複製のしかた |
| 対立していた仮説 | 保存的複製(親のDNAがまるごと残る)、分散的複製(新旧がモザイク状に混ざる) |
| 証明した人・年 | メセルソンとスタール(1958年、大腸菌)[2]。テイラー・ウッズ・ヒューズ(1957年、ソラマメの染色体)[3] |
| n回目の比率 | 中間(15N/14N):軽い(14N/14N)=1:(2n−1−1)。重い(15N/15N)は0 |
| 医療との関わり | 姉妹染色分体交換(SCE)検査とブルーム症候群、DNAメチル化の維持(ゲノムインプリンティング)、DNMT1関連疾患 |
1. 半保存的複製とは?簡単にわかる意味
半保存的複製とは、DNAが自分のコピーをつくるときの「つくり方」の名前です。細胞が分裂する前に、DNAはまるごと1セット複製されます。そのとき、2本の鎖がほどけて、それぞれが型紙になります。
型紙の塩基がAならT、GならCというように、決まった相手の塩基が1つずつつながれていきます(相補性)。こうしてできた2つのDNAは、どちらも「もとの鎖1本+新しい鎖1本」のペアです。
なぜ「半保存的」と呼ぶのか
親の二重らせんは、複製のあとにばらばらになって消えるわけではありません。2本の親鎖が、2つの娘DNAに1本ずつ「半分ずつ」保存されます。親のDNAの半分が残るので「半保存的」と呼ぶのです。英語では semiconservative replication と言います。
💡 用語解説:鋳型(いがた、template)
鋳型とは、新しい鎖をつくるときに手本にする鎖のことです。鋳物の型のように、型紙の並びから相手の並びが1通りに決まります。DNAはヌクレオチドという部品がつながった鎖で、塩基の並びの詳しい決まりは塩基対のページで解説しています。
半保存的複製のメリット
最大のメリットは、遺伝情報を正確にコピーできることです。片方の鎖がわかれば、もう片方は相補性で自動的に決まります。どの娘DNAにも、手本になった親鎖がそのまま1本残ります。
親鎖が残ることには、もう1つ利点があります。複製のまちがいを直すとき、細胞は「どちらが正しい親鎖か」を見分けて、新しい鎖の側だけを直せます(7章)。DNAにつけられた目印(メチル化)を引き継ぐときにも、親鎖が手本になります(8章)。
「半不連続」や「転写」との違い
よく似た言葉に「半不連続複製」があります。半保存的は「複製のあとに親の鎖がどう残るか」、半不連続は「新しい鎖をどうつくるか」を表す言葉です。新しい鎖は、片方(リーディング鎖)がひと続きに、もう片方(ラギング鎖)が岡崎フラグメントという短い断片に分けてつくられます。
DNAの複製は「半保存的」であり、同時に「半不連続」でもあります。2つは矛盾しません。また、DNAからRNAをつくる「転写」は、遺伝子の部分の片方の鎖だけを写し取る反応で、DNAは2本鎖に戻ります。DNAを丸ごと2つにする複製とは別のものです。
2. 3つの仮説 ― 保存的複製・分散的複製・半保存的複製
1953年、ワトソンとクリックはDNAの二重らせんのモデルを発表しました。同じ年の続く論文で、2本の鎖がそれぞれ鋳型になるという考えを示しています[1]。ただ、これは構造から考えた推測でした。
当時、DNAの複製のしかたには大きく3つの考え方がありました。保存的複製・分散的複製・半保存的複製です。分散的複製は、1954年にデルブリュックが、長いらせんをほどくのは難しいという問題から提案したものです[4]。
🧪 3つの仮説から予想される結果
| 仮説 | 考え方 | 1回複製したあと | 2回複製したあと | 実験結果 |
|---|---|---|---|---|
| 保存的複製 | 親の二重らせんがまるごと残り、別に新しい二重らせんが1つできる | 「親鎖+親鎖」と「新鎖+新鎖」が1つずつ | 「親鎖+親鎖」1つと「新鎖+新鎖」3つ | × 1回目で否定 |
| 分散的複製 | 親のDNAが細かく切れ、新旧の断片がモザイク状に混ざる | すべてが新旧半々のモザイク | すべてが新しい部分の多いモザイク | × 2回目で否定 |
| 半保存的複製 | 2本の親鎖がそれぞれ鋳型になる | すべてが「親鎖+新鎖」 | 「親鎖+新鎖」:「新鎖+新鎖」=1:1 | ○ 一致 |
※ メセルソンとスタールの実験(1958年)の結果にもとづく整理です[2]。
3つの仮説は、複製を1回、2回とくり返したときの新旧の鎖の分かれ方が、それぞれ違います。古い鎖と新しい鎖を見分ける方法さえあれば、実験で区別できるということです。
注意したいのは、1回目の結果だけでは保存的複製しか否定できないことです。1回目では、半保存的でも分散的でも「すべてのDNAが新旧半々」になるからです。2つを区別するには、2回目の結果が必要でした。
3. メセルソンとスタールの実験をわかりやすく
メセルソンとスタールの実験は、古い鎖と新しい鎖を「重さ」で見分けた実験です。1958年、マシュー・メセルソンとフランクリン・スタールが、米国科学アカデミー紀要(PNAS)に発表しました[2]。2人はカリフォルニア工科大学で、この実験を行いました。
なぜ窒素に注目したのか
DNAの塩基には、窒素がたくさん含まれています。窒素には、ふつうの窒素(14N)と、中性子が1つ多い重い窒素(15N)があります。15Nは放射線を出さない安定同位体で、化学的な性質はほぼ同じなのに、重さだけが違います。
つまり、15Nを使えば、DNAの性質を変えずに、重さ(密度)だけで目印をつけられるのです。これが窒素を選んだ理由です。
💡 用語解説:同位体と密度勾配遠心法
同位体とは、同じ元素で中性子の数が違うものです。密度勾配遠心法は、塩化セシウム(CsCl)の濃い溶液に試料を入れ、高速で長時間回す方法です。管の底ほど濃い「密度の坂」ができ、DNAは自分と同じ密度の位置に集まって帯(バンド)になります。わずかな重さの違いが、帯の位置の違いとして見えます。
実験の手順
まず、窒素源が15Nだけの培地で、大腸菌を14世代育てました。これで、DNAの窒素はほぼすべて重い15Nになります[2]。
次に、この大腸菌を14Nだけの培地へ移しました。移したあとにつくられる新しい鎖には、軽い14Nしか使われません。重い鎖=もとからある親鎖、軽い鎖=あとからつくった新鎖という目印がついたわけです。
分裂のたびにDNAを取り出し、塩化セシウムの溶液で毎分44,770回転・20時間の遠心分離にかけました。15NのDNAと14NのDNAの密度の差は、約0.014 g/cm³です[2]。
実験の結果 ― 帯はどこに出たか
📊 遠心管の中の帯(バンド)の位置
| DNAの種類 | 移す前(0回目) | 1回目の分裂後 | 2回目の分裂後 |
|---|---|---|---|
| 重い(15N/15N) | ● | ─ | ─ |
| 中間(15N/14N) | ─ | ●(すべて) | ●(半分) |
| 軽い(14N/14N) | ─ | ─ | ●(半分) |
※ ●は帯が出た位置。遠心管では重いDNAほど底に近い位置に帯をつくります[2]。
1回目の分裂のあとは、重い位置にも軽い位置にも帯が出ませんでした。ちょうど中間の位置に、1本の帯だけが現れました。保存的複製が正しければ、重い帯と軽い帯の2本が出るはずです。ここで保存的複製が否定されました。
2回目の分裂のあとは、中間の帯が残り、軽い位置に新しい帯が現れました。2本の帯の量は1対1でした。分散的複製なら、帯は1本のまま軽いほうへずれていくはずです。実際には2本にはっきり分かれたので、分散的複製も否定されました[2]。
加熱の実験と「サブユニット」という言葉
2人はさらに、中間の重さのDNAを加熱しました。すると、重いものと軽いものの2種類に分かれました[2]。中間のDNAが「重い部分1つ+軽い部分1つ」でできていることを、別の方法でも確かめたのです。
論文の結論で、2人は親から受け継がれる単位を「鎖(strand)」ではなく「サブユニット(subunit)」と書きました[2]。そのサブユニットが1本のポリヌクレオチド鎖かどうかまでは、当時の実験では言い切れなかったからです。その後の研究で、サブユニットは1本の鎖だと確かめられました。

🩺 院長コラム【データが語る範囲を守るということ】
メセルソンとスタールが「鎖」ではなく「サブユニット」と書いた話は、遺伝医療に携わる者として示唆の多いエピソードだと考えています。実験の結果が示していたのは「親の材料が半分ずつ受け継がれる」ことまでで、それが1本の鎖なのかどうかは、当時の技術では断定できませんでした。わかっていることとわかっていないことの境目を、言葉の選び方ではっきり示したわけです。
遺伝子検査でも、見つかった変化が病気の原因だと言い切れるのか、それとも「意義がまだわからない変化」なのかを区別して伝えることがとても大切です。結果を実際より強く言えば誤解を生み、弱く言えば必要な対応が遅れます。データが語る範囲を正確に伝えることは、70年近く前の分子生物学でも、現在の臨床遺伝学でも変わらない基本だと考えています。
4. n回目の比率の公式と計算 ― メセルソンとスタールの実験の問題
15Nから14Nの培地に移してn回分裂させたとき、中間のDNA:軽いDNA=1:(2n−1−1)になります。重いDNA(15N/15N)は、1回目から0です。高校生物の計算問題でよく出る形なので、考え方から説明します。
公式の考え方
はじめに15Nの二重らせんが1つあるとします。n回分裂すると、DNAは全部で2n個になります。そのうち、15Nの親鎖は最初からある2本だけです。半保存的複製では、この2本は必ず別々のDNAに1本ずつ入ります。
つまり、何回分裂しても、中間のDNA(15N/14N)は2個のままです。残りの2n−2個は、すべて軽いDNA(14N/14N)になります。
中間(15N/14N):軽い(14N/14N)
= 2 :(2n − 2)
= 1 :(2n−1 − 1) (n ≧ 1)
中間のDNAの割合 = 2 ÷ 2n = 1 / 2n−1
🧮 分裂回数ごとの比率
| 分裂の回数 | DNAの総数 | 重い:中間:軽い | 中間の割合 |
|---|---|---|---|
| 0回目(移す前) | 1 | 1:0:0 | 0% |
| 1回目 | 2 | 0:1:0 | 100% |
| 2回目 | 4 | 0:1:1 | 50% |
| 3回目 | 8 | 0:1:3 | 25% |
| 4回目 | 16 | 0:1:7 | 12.5% |
| n回目 | 2n | 0:1:(2n−1−1) | 1/2n−1 |
※ 中間のDNAの数は2個のまま変わらず、割合は1回ごとに半分になります。
例題で確かめる
例題:15Nだけをもつ大腸菌を14Nの培地に移し、3回分裂させました。中間と軽いDNAの比はいくつでしょう。
答え:n=3を入れると、1:(22−1)=1:3です。DNAは全部で8個、そのうち中間が2個、軽いのが6個と数えても同じになります。
逆に、14Nの大腸菌を15Nの培地に移す問題もあります。このときは「中間:重い=1:(2n−1−1)」と、軽いと重いが入れ替わるだけです。
⚠️ よくあるまちがい
「1回目で半保存的複製と決まった」は誤りです。1回目の中間の帯だけでは、保存的複製しか否定できません。分散的複製と区別できたのは、2回目に軽い帯が別に現れたからです。
覚え方のコツ
覚えるポイントは3つです。「メセルソンとスタール」「15N→14N」「1回目は中間だけ、2回目は中間と軽いが1対1」です。
公式は暗記より、「最初の親鎖2本は、ずっと2個の中間DNAに1本ずつ残る」と考えると忘れません。総数2nから2を引けば、軽いDNAの数が出ます。
5. テイラーの実験 ― 真核生物の染色体でも半保存的
メセルソンとスタールの実験が有名ですが、その約1年半前に、同じ結論を真核生物で示した研究がありました。1957年、テイラー・ウッズ・ヒューズの3人が、ソラマメの染色体のDNAも半保存的に複製されることを示しています[3]。
3人は、DNAの材料であるチミジンに放射性の水素(トリチウム)を組み込みました。この3H-チミジンをソラマメの根の先の細胞に取り込ませ、どの染色体に入ったかを写真の乳剤で調べました(オートラジオグラフィー)。
3H-チミジンがある状態で1回複製させると、2本の姉妹染色分体の両方が同じように光りました。次に放射性のない培地でもう1回複製させると、どの染色体でも片方の姉妹染色分体だけが光りました[3]。半保存的複製の予想どおりの結果です。
💡 用語解説:姉妹染色分体(sister chromatids)
DNAが複製されたあとの染色体は、同じDNAを1本ずつもつ2本の棒が、中央でくっついた形をしています。この2本を姉妹染色分体と言います。分裂のときには、1本ずつ2つの娘細胞に分かれます。詳しくは染色分体(姉妹染色分体)で解説しています。
分裂中期の染色体を顕微鏡で見るこの手法は、のちの染色体検査(Gバンド法など)とも地続きです。DNAが複製される時期は、細胞周期のS期にあたります。
6. 姉妹染色分体交換(SCE)とブルーム症候群 ― 原理が検査になった
テイラーは、2回目の分裂中期の染色体に、光る部分と光らない部分がところどころ入れ替わっている像を見つけました。1958年、これを姉妹染色分体交換(SCE:sister chromatid exchange)として報告しています[5]。
SCEは、姉妹染色分体どうしがDNAの一部を交換した結果です。複製の途中でDNAが傷ついたとき、細胞は隣の姉妹染色分体の同じ配列を手本に修復することがあります(相同組換え)。その処理のしかたによって、染色分体の一部が入れ替わります。
半保存的複製を使った染め分けの検査
今のSCE検査では、チミジンによく似たBrdU(ブロモデオキシウリジン)を、2回の複製のあいだ取り込ませます。半保存的複製のため、2回目には、片方の姉妹染色分体は「BrdUの鎖+BrdUの鎖」、もう片方は「もとの鎖+BrdUの鎖」になります。
この違いを特殊な染色で濃淡として見分けると、2本の姉妹染色分体が濃い色と薄い色に染め分けられます。交換が起きた場所は、色の入れ替わりとして数えられます。半保存的複製という原理そのものが、検査技術になっている例です。
ブルーム症候群ではSCEが大きく増える
ブルーム症候群は、BLM遺伝子の両方のコピーに病的な変化があると起こる、常染色体潜性(劣性)遺伝の病気です。生まれる前からの成長の遅れ、日光への過敏さ、がんのなりやすさなどが特徴です[6]。
BLMタンパク質は、TOP3A・RMI1・RMI2と複合体をつくり、相同組換えの途中でできる二重のホリデイ構造を処理しています[6]。ブルーム症候群の細胞では、SCEが分裂中期1つあたり平均40〜100回にのぼり、ふつう(10回未満)を大きく上回ります[6]。
ただし、今の診断の中心は遺伝学的検査です。BLM遺伝子の両方のコピーに病的バリアントが見つかることで確定します。SCEの増加はRMI1・RMI2・TOP3Aの病気でも見られるので、SCEの増加だけでは確定診断になりません[6]。
🧪 この章に関係する当院の検査
| 検査 | 内容 |
|---|---|
| ブルーム症候群 BLM遺伝子検査 | BLM遺伝子を対象とした遺伝学的検査 |
| 染色体不安定症候群の遺伝子検査 | BLMを含む、染色体の不安定さに関わる複数の遺伝子をまとめて調べるパネル検査(330,000円・税込) |
※ 検査の対象になるかは、症状やご家族の状況をふまえて臨床遺伝専門医が判断します。
7. 複製のしくみの概略と、まちがいが残るしくみ
メセルソンとスタールの実験は、「複製の結果、何が残るか」を明らかにしました。では、細胞の中ではどのように複製が進むのでしょうか。ここでは要点だけをまとめます。酵素の働きやプライマー、岡崎フラグメントの詳しい流れは、DNA複製のページで解説しています。
ヒトの複製は、染色体の多くの複製起点から同時に始まります。ヘリカーゼが二重らせんをほどき、たまったねじれはトポイソメラーゼが解消します。新しい鎖はDNAポリメラーゼが5′→3′の向きにだけ伸ばし、断片はDNAリガーゼがつなぎます[7]。
複製の準備(ライセンス化)に関わる遺伝子の変化では、小耳症・膝蓋骨の低形成・低身長を特徴とするマイヤー・ゴーリン症候群が起こります。ORC1など複製に関わる13の遺伝子との関連が報告されています[8](マイヤー・ゴーリン症候群の遺伝子検査)。
親鎖が残るから、まちがいを直せる
細胞は、複製のまちがいを3段階で抑えています。ポリメラーゼが正しい塩基を選ぶ段階、まちがえた塩基をその場で削る校正、複製のあとのミスマッチ修復です[9]。
ミスマッチ修復では、合わない塩基対のうち「どちらが正しい親鎖で、どちらが新しい鎖か」を見分ける必要があります。複製の直後は親鎖と新鎖がはっきり分かれているので、新しい鎖の側だけを直せます。これも半保存的複製の性質が生きている場面です。
直されずに残ったまちがいは、次の複製で鋳型として写し取られ、片方の娘DNAにだけ新しいバリアントとして固定されます。体の一部の細胞だけが変化をもつモザイクや、親にない新生突然変異(de novo変異)は、こうして生まれることがあります(バリアントの起源と頻度)。
正確さを守る仕組みそのものが壊れると、病気の原因になります。ミスマッチ修復の遺伝子の変化によるリンチ症候群や、校正を担うPOLE・POLD1遺伝子の変化は、遺伝性腫瘍の原因として知られています。複製が止まりやすい状態は複製ストレスと呼ばれます。
8. DNAメチル化も「半保存的」に受け継がれる
細胞が受け継ぐ情報は、塩基配列だけではありません。どの遺伝子を使い、どれを眠らせておくかというエピジェネティクスの情報も受け継がれます。その代表がDNAメチル化で、主にCpG(シトシンの次にグアニンが続く並び)のシトシンにメチル基がつきます。
複製直後は「片側だけメチル化」されている
CpGは、向かい合う鎖でも同じくCpGになります。メチル化された場所では、両方の鎖にメチル基がついています。半保存的複製が起きると、親鎖のメチル基は残りますが、新しい鎖にはメチル基がありません。複製直後のDNAは、親鎖側だけがメチル化された「ヘミメチル化DNA」になります。
💡 用語解説:ヘミメチル化と維持メチル化
「ヘミ」は「半分」という意味です。ヘミメチル化DNAは、2本の鎖のうち親鎖のCpGだけにメチル基がついた状態です。維持メチル化は、新しい鎖の向かい側にもメチル基をつけ直し、両方の鎖がメチル化された状態に戻す仕組みです。メチル基をつける酵素はDNAメチルトランスフェラーゼと呼ばれます。
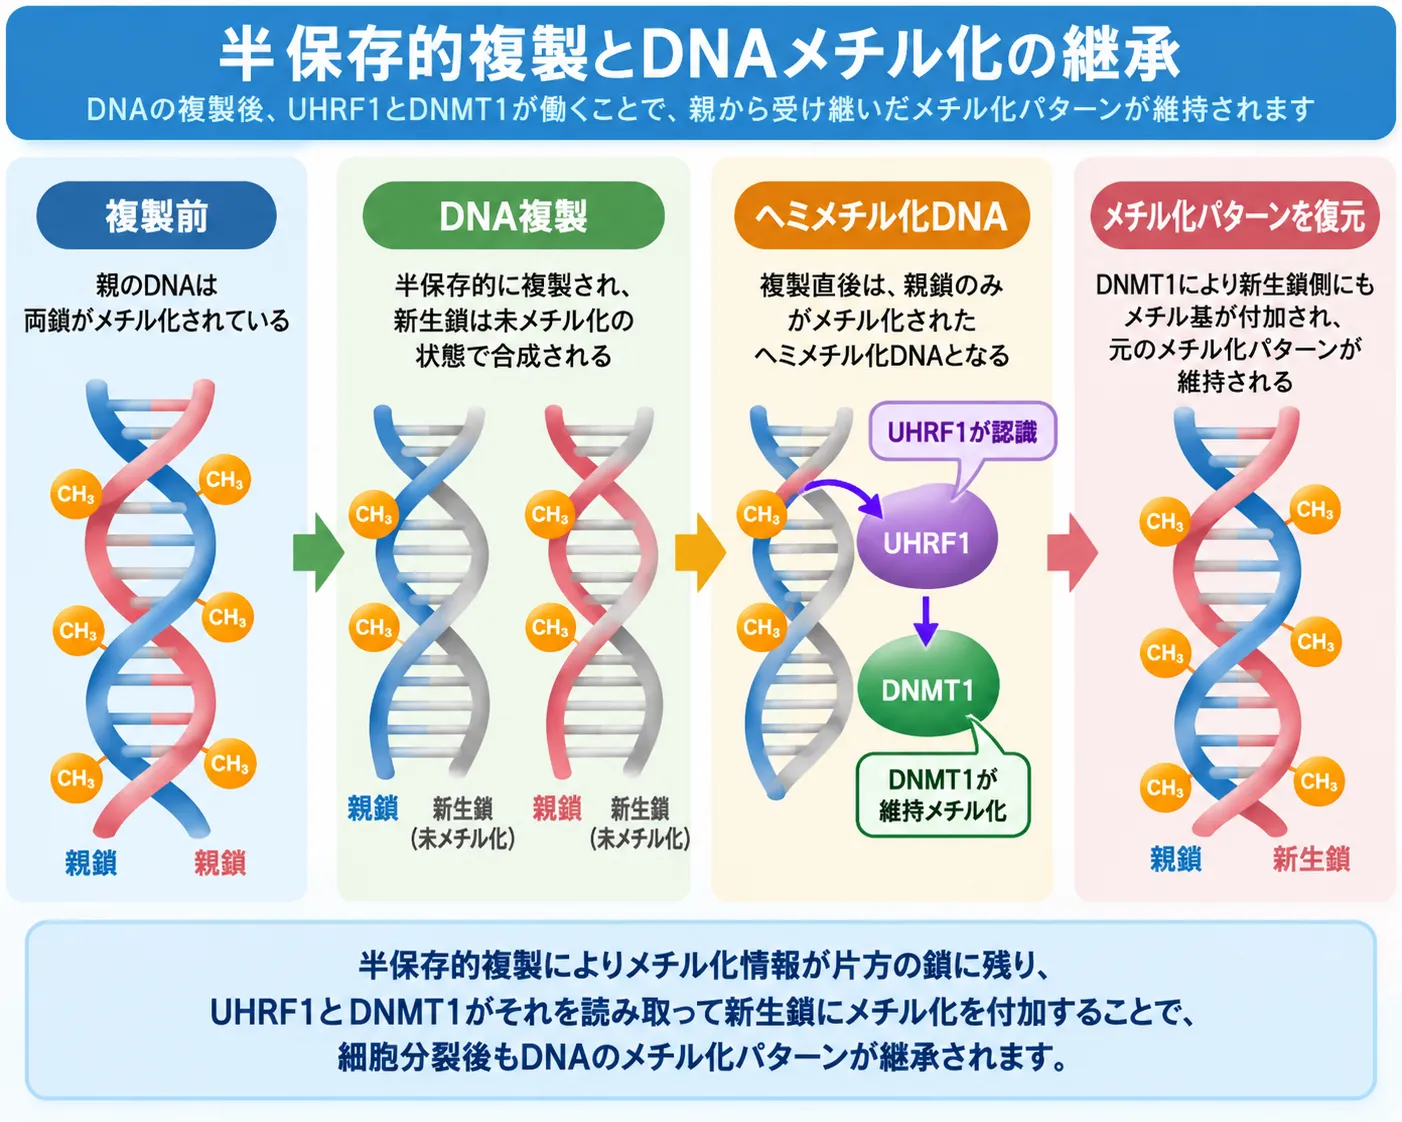
DNAが半保存的に複製されると、複製直後は親鎖のCpGにメチル化が残り、新生鎖は未メチル化のヘミメチル化DNAとなります。UHRF1がこの状態を認識し、DNMT1による新生鎖側の維持メチル化を促すことで、複製前のDNAメチル化パターンが娘DNAに受け継がれます。
UHRF1が見つけ、DNMT1が書き込む
維持メチル化の中心にいるのが、UHRF1とDNMT1です。UHRF1はSRAという部分でヘミメチル化されたCpGに結合し、DNMT1を呼び寄せます[10]。SRAは、メチル化されたシトシンを二重らせんの外へひっくり返すようにしてつかまえます[11]。
UHRF1は、DNAを巻きつけているヒストンH3にユビキチンという目印をつけ、DNMT1を複製の場へ呼び込みます[12]。DNMT1のRFTSという部分は、ヒストンH3についた2つのユビキチンを読み取って働き始めます[13]。S期の前半にはPCNAに結合するPAF15の目印が、後半にはヒストンH3の目印が主に使われると報告されています[14]。
複製フォークが通るときにはヌクレオソームがいったんほどかれ、親のヒストンは2つの娘DNAにほぼ均等に分けられます[15]。足りない分は新しいヒストンで補われ、CAF-1というタンパク質がPCNAと結合して、複製と連動して組み立てます[16]。
維持メチル化は、ゲノムインプリンティングの理解に直結します。父親由来か母親由来かで片方の遺伝子だけが働く仕組みは、親ごとに違うメチル化の模様が、受精後の細胞分裂を通じて維持されることで保たれています。この模様が崩れると、インプリンティング異常の病気の原因になります。
DNMT1関連疾患
DNMT1遺伝子の片方のコピーに病的な変化があると、中枢神経と末梢神経が少しずつ障害されるDNMT1関連疾患が起こります。遺伝性感覚自律神経ニューロパチー1E型(HSAN1E)から常染色体顕性小脳失調・難聴・ナルコレプシー(ADCA-DN)までの広がりとして理解されている、常染色体顕性(優性)遺伝の病気です[17]。
原因となる変化は、上で出てきたDNMT1のRFTSの部分に集まっています[17]。維持メチル化の仕組みを知っていると、なぜこの部分の変化が病気につながるのかを考える手がかりになります。
🩺 院長コラム【基礎研究の言葉で遺伝子の変化を読む】
遺伝子検査で見つかった変化を評価するとき、その変化がタンパク質のどの部分にあるかは重要な判断材料の1つです。DNMT1のRFTS領域のように、働きがよく調べられた部分に変化が集中している場合、その変化が機能に影響しうるかを分子の仕組みから考えることができます。半保存的複製やヘミメチル化といった教科書の言葉が、そのまま遺伝子の変化を読み解く言葉になっていると考えています。
一方で、仕組みから想像できることと、実際にその変化が病気を起こすと言えることは別の問題です。臨床遺伝学では、家族内での受け継がれ方、同じ変化の報告例、機能を調べた実験の結果などを積み重ねて、慎重に評価します。基礎研究の知見は、その評価を支える土台の1つとして役立つものだと考えています。
遺伝子の配列を読む検査も、相補性と複製の原理を土台にしています。PCRは試験管の中で半保存的な複製をくり返す技術で、お母さんの血液中の赤ちゃん由来のDNA断片を読む東京のNIPT(新型出生前診断)も、その上に成り立っています。
9. よくある誤解
❓ 半保存的複製のよくある誤解
| 誤解 | 正しくは |
|---|---|
| 半保存的と半不連続は同じ意味 | 別の意味です。半保存的は親の鎖がどう残るか、半不連続は新しい鎖をひと続きにつくるか、断片に分けてつくるかです。複製は両方の性質をあわせもちます |
| 最初に示したのはメセルソンとスタールだけ | 分子レベルで決定的に示したのは2人(1958年)ですが、約1年半前にテイラーらがソラマメの染色体で半保存的な複製を示していました |
| 1回目の結果で半保存的と決まった | 1回目の中間の帯だけでは、保存的複製しか否定できません。分散的複製と区別できたのは2回目の結果です |
| 分裂を重ねると中間のDNAはなくなる | 中間のDNAは何回分裂しても2個のまま残ります。減るのは割合(1/2n−1)だけです |
| 受け継がれるのは塩基配列だけ | DNAメチル化の模様も、親鎖を手がかりにUHRF1とDNMT1が複製のたびに復元します |
よくある質問(FAQ)
Q1. 半保存的複製とは何ですか?簡単に教えてください
半保存的複製とは、DNAの2本の鎖がほどけて、それぞれが鋳型(型紙)になって新しい鎖をつくる複製のしかたです。できた2つのDNAは、どちらも「もとの鎖1本+新しい鎖1本」の組み合わせになります。親のDNAが半分ずつ保存されるので、この名前があります。
Q2. 半保存的複製を証明したのは誰ですか?
1958年に、アメリカのマシュー・メセルソンとフランクリン・スタールが、大腸菌を使った実験で証明しました。その約1年半前の1957年には、テイラー・ウッズ・ヒューズの3人がソラマメの染色体で、同じ結論を示しています。
Q3. メセルソンとスタールの実験はどんな実験ですか?
大腸菌を重い窒素(15N)の培地で14世代育ててDNAを重くし、ふつうの窒素(14N)の培地へ移して増やしました。取り出したDNAを塩化セシウムの密度勾配遠心法で重さごとに分けると、1回目の分裂後は中間の重さの帯だけ、2回目は中間と軽い帯が1対1で現れました。この結果に合うのは半保存的複製だけでした。
Q4. 保存的複製・分散的複製とはどう違いますか?
保存的複製は、親の二重らせんがまるごと残り、別に新しい二重らせんが1つできるという考え方です。分散的複製は、新旧の断片がモザイク状に混ざるという考え方です。1回目の分裂後に中間の帯だけが出たことで保存的複製が、2回目に軽い帯が別に現れたことで分散的複製が否定されました。
Q5. n回目の分裂後の比率を求める公式はありますか?
あります。15Nから14Nの培地に移してn回分裂させると(nは1以上)、中間の重さのDNA:軽いDNA=2:(2のn乗−2)=1:(2のn−1乗−1)になります。重いDNAは1回目から0です。たとえば3回目は1:3、4回目は1:7です。
Q6. なぜ窒素を目印に使ったのですか?
窒素はDNAの塩基に多く含まれ、放射線を出さない重い安定同位体(15N)があるからです。15Nを使うと、化学的な性質をほとんど変えずに、DNAの重さ(密度)だけを変えられます。
Q7. 半保存的複製と半不連続複製の違いは何ですか?
半保存的複製は、複製のあとに親の鎖がどう残るかを表す言葉です。半不連続複製は、新しい鎖のつくり方を表す言葉で、リーディング鎖はひと続きに、ラギング鎖は岡崎フラグメントという短い断片に分けてつくられることを指します。DNAの複製は、半保存的であると同時に半不連続でもあります。
Q8. 半保存的複製は病気と関係がありますか?
半保存的複製そのものは、すべての細胞に共通する正常な働きです。ただし、この性質を利用した姉妹染色分体交換(SCE)の検査は、SCEが大きく増えるブルーム症候群の診断の補助に使われます。また、メチル化の維持を担うDNMT1の変化によるDNMT1関連疾患など、複製の周辺の仕組みに関わる遺伝性の病気が知られています。
まとめ
半保存的複製とは、DNAの2本の鎖がそれぞれ鋳型となり、「もとの鎖1本+新しい鎖1本」のDNAが2つできる複製のしかたです。1958年、メセルソンとスタールが15Nと密度勾配遠心法を使い、1回目に中間の帯だけ、2回目に中間と軽い帯が1対1で出ることを示して証明しました。
n回目の比率は、中間:軽い=1:(2n−1−1)です。親鎖が必ず残るという性質は、まちがいの修復やDNAメチル化の引き継ぎ、ブルーム症候群の診断の補助になるSCE検査にも生かされています。
🧬 遺伝子検査とNIPTを、臨床遺伝専門医のもとで
当院には臨床遺伝専門医が常駐し、病気ごとの遺伝子パネル検査(1検査330,000円・税込)を行っています。ブルーム症候群のBLM遺伝子を含む、染色体の不安定さに関わる遺伝子の検査もあります。NIPTのインペリアルプランでは、最大155遺伝子202疾患について、赤ちゃんに新しく起こった単一遺伝子の変化を調べます。
参考文献
- [1] Watson JD, Crick FHC. Genetical implications of the structure of deoxyribonucleic acid. Nature. 1953;171(4361):964-967. [PubMed 13063483]
- [2] Meselson M, Stahl FW. The replication of DNA in Escherichia coli. Proc Natl Acad Sci U S A. 1958;44(7):671-682. [PubMed 16590258]
- [3] Taylor JH, Woods PS, Hughes WL. The organization and duplication of chromosomes as revealed by autoradiographic studies using tritium-labeled thymidine. Proc Natl Acad Sci U S A. 1957;43(1):122-128. [DOI 10.1073/pnas.43.1.122]
- [4] Delbrück M. On the replication of desoxyribonucleic acid (DNA). Proc Natl Acad Sci U S A. 1954;40(9):783-788. [DOI 10.1073/pnas.40.9.783]
- [5] Taylor JH. Sister chromatid exchanges in tritium-labeled chromosomes. Genetics. 1958;43(3):515-529. [PMC1209899]
- [6] Bloom Syndrome. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 1993-2026. [NCBI Bookshelf NBK1398]
- [7] Burgers PMJ, Kunkel TA. Eukaryotic DNA replication fork. Annu Rev Biochem. 2017;86:417-438. [PMC5597965]
- [8] Nielsen-Dandoroff E, Ruegg MSG, Bicknell LS. The expanding genetic and clinical landscape associated with Meier-Gorlin syndrome. Eur J Hum Genet. 2023;31(8):859-868. [PMC10400559]
- [9] Kunkel TA. DNA replication fidelity. J Biol Chem. 2004;279(17):16895-16898. [PubMed 14988392]
- [10] Sharif J, Muto M, Takebayashi S, et al. The SRA protein Np95 mediates epigenetic inheritance by recruiting Dnmt1 to methylated DNA. Nature. 2007;450(7171):908-912. [PubMed 17994007]
- [11] Arita K, Ariyoshi M, Tochio H, et al. Recognition of hemi-methylated DNA by the SRA protein UHRF1 by a base-flipping mechanism. Nature. 2008;455(7214):818-821. [DOI 10.1038/nature07249]
- [12] Nishiyama A, Yamaguchi L, Sharif J, et al. Uhrf1-dependent H3K23 ubiquitylation couples maintenance DNA methylation and replication. Nature. 2013;502(7470):249-253. [PubMed 24013172]
- [13] Ishiyama S, Nishiyama A, Saeki Y, et al. Structure of the Dnmt1 reader module complexed with a unique two-mono-ubiquitin mark on histone H3 reveals the basis for DNA methylation maintenance. Mol Cell. 2017;68(2):350-360. [PubMed 29053958]
- [14] Nishiyama A, Mulholland CB, Bultmann S, et al. Two distinct modes of DNMT1 recruitment ensure stable maintenance DNA methylation. Nat Commun. 2020;11:1222. [PMC7060239]
- [15] Petryk N, Dalby M, Wenger A, et al. MCM2 promotes symmetric inheritance of modified histones during DNA replication. Science. 2018;361(6409):1389-1392. [DOI 10.1126/science.aau0294]
- [16] Shibahara K, Stillman B. Replication-dependent marking of DNA by PCNA facilitates CAF-1-coupled inheritance of chromatin. Cell. 1999;96(4):575-585. [PubMed 10052459]
- [17] DNMT1-Related Disorder. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 1993-2026. [NCBI Bookshelf NBK84112]






