

目次
ユビキチン化とは、ユビキチンという小さなタンパク質を、別のタンパク質に「目印」として結びつける反応です。英語では ubiquitination(ubiquitylation)といいます。目印が付いたタンパク質は、分解に回されたり、働く場所や働き方が変わったりします。
⏱️ 30秒でわかる要約
🧬 Q. ユビキチン化とは何ですか?
76個のアミノ酸からなる小さなタンパク質ユビキチンを、標的のタンパク質に結びつける翻訳後修飾です。「分解してよい」「場所を移す」などの合図になります。
🧬 Q. どうやって付くのですか?
E1(活性化酵素)・E2(結合酵素)・E3(ユビキチンリガーゼ)の3つの酵素のリレーで付きます。ヒトにはE2が約40種類、E3が約600種類あり、E3がどのタンパク質に付けるかを選びます。
🧬 Q. ポリユビキチン化との違いは?
1個だけ付くのがモノユビキチン化、鎖のように何個もつながるのがポリユビキチン化です。48番目のリジンでつながった鎖(K48鎖)は、プロテアソームで分解される合図の代表です。
🧬 Q. 病気と関係はありますか?
あります。アンジェルマン症候群の原因遺伝子UBE3Aや、若年性パーキンソン病のPRKN(パーキン)は、どちらもユビキチンリガーゼ(E3)をつくる遺伝子です。
🧬 Q. ユビキチン化とプロテアソームの関係は?
ユビキチンの鎖が「荷札」、プロテアソームが「分解装置」です。4個以上つながった鎖が付くと、26Sプロテアソームに効率よく見つけられて分解されます。
🧬 ユビキチン化の基本情報
| 項目 | 内容 |
|---|---|
| 英語 | ubiquitination(ubiquitylation)。ユビキチン(ubiquitin)は「どこにでもある」という意味の ubiquitous から[3] |
| ひとことで言うと | ユビキチンを標的タンパク質に結びつける翻訳後修飾[2] |
| ユビキチンの大きさ | 76個のアミノ酸、約8.6kDa[1] |
| はたらく酵素 | E1(活性化酵素)→E2(結合酵素、ヒトで約40種類)→E3(ユビキチンリガーゼ、ヒトで約600種類)[4][5] |
| 付く場所 | 主にリジンの側鎖(イソペプチド結合)。N末端・システイン・セリン・スレオニンに付くこともある[8] |
| 付き方の種類 | モノユビキチン化(1個)と、ポリユビキチン化(鎖)。鎖のつなぎ方は8通り(K6・K11・K27・K29・K33・K48・K63・M1)[2] |
| 外す酵素 | 脱ユビキチン化酵素(DUB)[7] |
| 関係する病気の例 | アンジェルマン症候群(UBE3A)、若年性パーキンソン病(PRKN)、フォン・ヒッペル・リンドウ病(VHL)、ファンコニ貧血など[14][17][18][19] |
1. ユビキチン化とは?わかりやすく言うと「タンパク質に付ける荷札」
ユビキチン化とは、ユビキチンというタンパク質を、別のタンパク質(基質)に共有結合でつなぐ反応です。つながれたユビキチンは、そのタンパク質の行き先を決める「荷札」の役目をします[2]。
荷札の書き方は1通りではありません。1個だけ付けるのか、鎖のように何個もつなげるのか。鎖ならどこでつなげるのか。その違いで、細胞での意味が変わります[2]。
代表的な意味は「このタンパク質は分解してよい」という合図です。そのほかにも、細胞膜の受容体を取り込ませる、DNAの傷の修理を呼び込む、炎症のスイッチを入れるなど、ほとんどすべての細胞のはたらきにかかわります[2]。
💡 用語解説:翻訳後修飾(post-translational modification)
タンパク質がつくられたあとに、化学的な部品を付けたり外したりして性質を変えることです。リン酸化・アセチル化・メチル化などがあり、ユビキチン化もその1つです。小さな化学基ではなく、タンパク質そのものを付ける点が特徴です。
ユビキチン化を研究したアーロン・チカノーバー、アブラム・ハーシュコ、アーウィン・ローズの3人は、2004年のノーベル化学賞を受けました。受賞の理由は「ユビキチンを介したタンパク質分解の発見」です[11]。
2. ユビキチン化で付ける「ユビキチン」という目印
ユビキチン化で付けるユビキチンは、76個のアミノ酸からなる、分子量約8.6kDaの小さなタンパク質です。酵母からヒトまで、真核生物の細胞にはほぼ必ずあります[1]。分子量の単位はkDa(キロダルトン)の記事で説明しています。
ユビキチンのC末端(しっぽの端)はグリシンで終わっています。このC末端のカルボキシ基が、相手のタンパク質と結合する部分です[1]。名前の由来やユビキチンをつくる遺伝子、ユビキチン自体の構造や発見の歴史は、ユビキチンとはの記事でくわしく扱っています。
3. ユビキチン化のしくみ:E1・E2・E3の3段階リレー
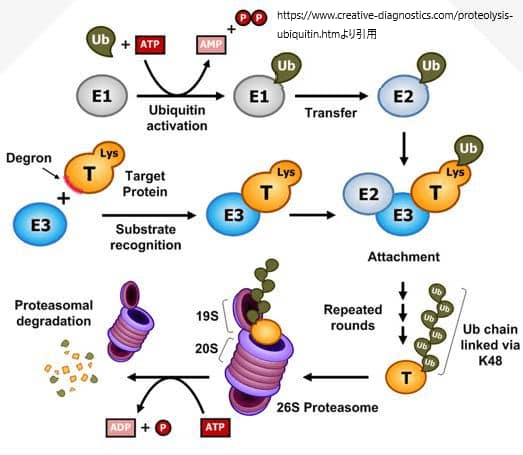
ユビキチン化は、E1・E2・E3という3種類の酵素が順にユビキチンを受け渡すことで進みます。ATP(細胞のエネルギー)を使う反応です[1]。
E1はわずか、E2は約40種類、E3は約600種類と、下流ほど数が増えます[4][5]。「どのタンパク質にユビキチンを付けるか」を選ぶのは、主にE3です。数百種類のE3があるからこそ、細胞は何千種類ものタンパク質を選び分けられます。
E3は、仕事のしかたで大きく2つに分かれます。E2から直接ユビキチンを標的に渡させるRING型と、いったん自分にユビキチンを受け取ってから渡すHECT型です[6]。このあと出てくるUBE3A(アンジェルマン症候群の原因遺伝子)はHECT型の代表です。
付いたユビキチンは、外すこともできます。外す役目をするのが脱ユビキチン化酵素(DUB)です[7]。付ける酵素と外す酵素のバランスで、ユビキチン化は「書いたり消したりできる合図」になっています。たとえばUSP8はDUBの1つです。
4. ユビキチン化はどこで起こる?結合するアミノ酸と結合のしかた
ユビキチンが付くのは、主に標的タンパク質のリジンです。ユビキチンのC末端のグリシンと、リジンの側鎖のアミノ基が結合します。この結合をイソペプチド結合といいます[2]。
💡 用語解説:イソペプチド結合(isopeptide bond)
アミノ酸どうしをつなぐ結合のうち、主鎖ではなく側鎖のアミノ基を使った結合です。ふつうのペプチド結合が「鎖の本筋」をつなぐのに対し、イソペプチド結合は「枝」にもう1本のタンパク質をつなぐイメージです。アミノ酸の記事もあわせてご覧ください。
ただし、リジン以外に付くこともわかってきました。これを非典型的なユビキチン化と呼びます[8]。
🔗 ユビキチンが付く場所と結合の種類
| 付く場所 | 結合の種類 |
|---|---|
| リジンの側鎖(最も多い) | イソペプチド結合 |
| タンパク質のN末端のアミノ基 | ペプチド結合 |
| システインの側鎖 | チオエステル結合 |
| セリン・スレオニンの側鎖 | エステル結合(オキシエステル結合) |
※McDowell GS, Philpott A. 2013[8]をもとに作成。
細胞のどこで起こるかというと、細胞質と核が中心です。分解に回されるタンパク質の多くは、そこでプロテアソームに運ばれます。一方、細胞膜の受容体のように、ユビキチン化をきっかけに細胞の中に取り込まれ、エンドソームを経てリソソームで分解されるものもあります[2][12]。
5. モノユビキチン化とポリユビキチン化の違い
ユビキチンが1個だけ付くのがモノユビキチン化、ユビキチンどうしが鎖のようにつながって付くのがポリユビキチン化です。ポリユビキチン化では、すでに付いたユビキチンの上に、次のユビキチンが重なっていきます[2]。
ユビキチンには7個のリジン(6・11・27・29・33・48・63番目)があります。次のユビキチンは、このどれか、または1番目のメチオニン(M1)につながります。そのため鎖のつなぎ方は8通りあります。K48は「48番目のリジン(K)でつながった鎖」という意味です[2]。
🧩 付き方とつなぎ方で変わる意味(ユビキチンコード)
| 付き方 | 主な意味 |
|---|---|
| モノユビキチン化(1個) | 膜タンパク質の取り込み(エンドサイトーシス)、DNA修復、ヒストンを介した遺伝子のはたらきの調節など |
| K48鎖 | プロテアソームでの分解の合図(最も多い鎖) |
| K11鎖 | 細胞分裂のときのタンパク質分解など |
| K63鎖 | 分解ではなく、DNA修復・炎症のシグナル伝達・膜輸送の足場 |
| M1鎖(直鎖) | NF-κBという炎症・免疫のスイッチの活性化 |
| K6・K27・K29・K33鎖 | 研究が進んでいる途中で、はたらきはまだ一部しかわかっていない |
※Komander D, Rape M. 2012[2]をもとに作成。
このように、付き方の組み合わせで意味が変わるしくみは「ユビキチンコード」と呼ばれます[2]。ポリユビキチン化はすべて分解の合図というわけではありません。分解に直結するのは主にK48鎖とK11鎖で、K63鎖やM1鎖は「シグナルを伝える足場」としてはたらきます[2]。
ユビキチンによく似たタンパク質を付ける修飾もあります。代表はSUMO化で、E1・E2・E3に似たリレーで付きますが、多くは分解ではなく、タンパク質の場所や結合相手を変えるはたらきをします[13]。
6. ユビキチン化とプロテアソームの関係:分解のしくみ
ユビキチン化とプロテアソームは、「荷札」と「分解装置」の関係です。K48鎖などの荷札が付いたタンパク質は、26Sプロテアソームという大きな分解装置に運ばれ、短いペプチドに切り刻まれます[10]。
💡 用語解説:プロテアソーム(proteasome)
細胞の中でタンパク質を分解する、筒の形をした巨大な酵素の複合体です。分解を行う20Sの「筒」の両端に、ユビキチンを見分けてタンパク質をほどく19Sの「ふた」が付いた形を26Sプロテアソームと呼びます。くわしくはプロテアソームとはをご覧ください。
何個つながれば分解されるのでしょうか。K48鎖でつないだ実験では、4個つながった鎖(テトラユビキチン)が、プロテアソームに効率よく見つけられるための最小の合図でした[9]。1個だけのユビキチンは、分解とは別の合図としてはたらけることも、ここから説明できます[9]。
分解の流れは次のとおりです。19Sの部分がユビキチン鎖をつかみ、ユビキチンを外して再利用に回します。標的のタンパク質はATPの力でほどかれ、20Sの筒の中に送り込まれて切られます[10]。この一連のしくみ全体をユビキチン・プロテアソーム系と呼びます。
オートファジーとの違い
細胞にはもう1つの大きな分解のしくみ、オートファジーがあります。プロテアソームが主に1個ずつのタンパク質を分解するのに対し、オートファジーは膜で包みこんだ大きな塊や、古くなった細胞小器官をリソソームでまとめて分解します[12]。
この2つは別々ではなく、ユビキチンでつながっています。ユビキチンの付いた塊や、傷んだミトコンドリアをオートファジーが見つけて運ぶしくみもあるのです[12]。正しく折りたためなかったタンパク質の処理には、フォールディングを助ける分子シャペロンも加わります。
7. ユビキチン化と病気・遺伝子の関係
ユビキチン化にかかわる遺伝子が生まれつき変化すると、病気の原因になることがあります。どのE3が壊れるかで、分解されずにたまるタンパク質が変わり、症状も変わります。遺伝の診療とつながる代表的な例を挙げます。
🩺 ユビキチン化とかかわる遺伝性の病気の例
アンジェルマン症候群とUBE3A
アンジェルマン症候群は、重い発達の遅れ、言葉がほとんど出ないこと、てんかん、よく笑う様子などを特徴とする病気です。原因は、15番染色体にあるUBE3A遺伝子が脳ではたらかなくなることです[14]。1997年に、UBE3Aの変化そのものでもこの病気が起こることが示されました[15]。
UBE3Aは、脳では主に母親から受け継いだほうだけがはたらきます[14]。そのため、母親由来の15番染色体の一部が欠けたり、両方の15番染色体を父親から受け継いだりしても起こります。原因の内訳は、15q11.2-q13の欠失が約7割(染色体マイクロアレイで70〜75%)、UBE3Aの変化が約11%、片親性ダイソミーが3〜7%、刷り込み(インプリンティング)の異常が約3%です[14]。
💡 用語解説:ゲノム刷り込み(genomic imprinting)
両親から1本ずつ受け継いだ遺伝子のうち、父親由来か母親由来かによって、片方だけがはたらく現象です。UBE3Aは脳で母親由来のほうが主にはたらくため、母親由来のUBE3Aが失われると病気になります。
この欠失型は、妊娠中にも調べられます。当院の東京のNIPT(新型出生前診断)では、スタンダード・プレミアム・ダイヤモンド・双子マックス・インペリアルのすべてのプランで、アンジェルマン症候群の原因となる15q11.2-q13の欠失を調べています。病気そのものの説明はアンジェルマン症候群とはのページにまとめています。
NIPTで調べるのは欠失です。生まれたあとに、欠失以外の型も含めて原因を確かめたいときは、メチル化解析の遺伝子検査や、UBE3Aを含むレット症候群・アンジェルマン症候群の遺伝子パネル検査を使います。NIPTの陽性は確定ではないので、陽性なら羊水検査などの確定検査で確かめます。当院では確定検査まで院内で受けられます。
パーキンソン病・VHL病・ファンコニ貧血
若年で発症する常染色体潜性のパーキンソン病の原因として、1998年に日本の研究グループがPRKN(パーキン)遺伝子を見つけました[16]。その後、パーキンがE3としてはたらくことが示されています[17]。当院では、PRKNを含むパーキンソン病の遺伝子検査(26遺伝子)を行っています。
フォン・ヒッペル・リンドウ病の原因であるVHLタンパク質は、E3複合体の一部として、酸素が十分あるときにHIFを分解へ回します。VHLが失われるとHIFがたまり、血管をつくる合図が出続けて、血管芽腫や腎細胞がんにつながります[18]。
ファンコニ貧血では、DNAの傷を直すためにFANCD2がモノユビキチン化されるしくみがはたらきません[19]。分解ではなく「修理の合図」としてのユビキチン化が、病気に直結している例です。
薬とユビキチン化:サリドマイドとプロテアソーム阻害薬
妊娠中に飲まれたサリドマイドは、手足の形の異常を起こしました。2010年、日本の研究グループは、サリドマイドがセレブロン(CRBN)というE3複合体の部品に結合し、そのはたらきを変えることで手足の発生をさまたげることを示しました[20]。
反対に、このしくみを治療に生かした薬もあります。プロテアソームを止めるボルテゾミブは、再発した多発性骨髄腫で、デキサメタゾンより病気が進むまでの期間を延ばしました[21]。ユビキチン化は、生まれつきの病気だけでなく、がんの治療や薬の安全性にもかかわる、医学の中心的なしくみです。

🩺 院長コラム【「付ける」と「外す」のバランスで細胞は生きている】
ユビキチン化を学ぶと、細胞が「つくる」と同じくらい「壊す」ことに力を注いでいるとわかります。必要なときに必要な量だけタンパク質を置き、役目が終われば片づける。その片づけの指示書がユビキチンです。
この指示書を書くE3は、ヒトで約600種類あります。1つの遺伝子の変化が、特定のタンパク質の「片づけ忘れ」や「片づけすぎ」を起こし、アンジェルマン症候群やパーキンソン病のような、まったく違う病気になって現れます。遺伝子の名前だけを見ていてもわからない病気のつながりが、ユビキチン化という共通のしくみから見えてくると考えています。
がんの薬物療法を学んできた立場から見ても、プロテアソーム阻害薬やサリドマイドの話は、同じしくみが治療にも副作用にもなりうることを教えてくれます。基礎のしくみを正しく理解することが、遺伝子検査の結果を読み解き、ご家族に説明する土台になると考えています。
よくある質問(FAQ)
Q1. ユビキチン化とは何ですか?簡単に教えてください。
ユビキチンという76個のアミノ酸からなる小さなタンパク質を、別のタンパク質に結びつける反応です。付いたユビキチンは「分解してよい」「場所を移す」などの荷札としてはたらきます。
Q2. ポリユビキチン化とモノユビキチン化の違いは何ですか?
ユビキチンが1個だけ付くのがモノユビキチン化、ユビキチンどうしが鎖になって付くのがポリユビキチン化です。K48鎖は主に分解の合図、K63鎖やM1鎖はDNA修復や炎症のシグナルの足場になるなど、鎖のつなぎ方で意味が変わります。
Q3. ユビキチン化とプロテアソームの関係は?
ユビキチンの鎖が荷札、プロテアソームが分解装置です。K48鎖が4個以上つながると、26Sプロテアソームに効率よく見つけられ、タンパク質は短いペプチドに分解されます。ユビキチン自体は外されて再利用されます。
Q4. ユビキチン化はどのアミノ酸に起こりますか?
主にリジンの側鎖で、イソペプチド結合でつながります。そのほか、タンパク質のN末端、システイン、セリン、スレオニンに付くこともあります。
Q5. ユビキチン・プロテアソーム系とオートファジーの違いは?
ユビキチン・プロテアソーム系は主に1個ずつのタンパク質を分解し、オートファジーは膜で包んだ大きな塊や細胞小器官をリソソームでまとめて分解します。ユビキチンの目印が、オートファジーで運ぶものを選ぶのに使われることもあります。
Q6. ユビキチン化の異常で起こる病気はありますか?
あります。アンジェルマン症候群(UBE3A)、若年性パーキンソン病(PRKN)、フォン・ヒッペル・リンドウ病(VHL)、ファンコニ貧血などです。当院のNIPTでは、すべてのプランでアンジェルマン症候群の原因となる15q11.2-q13の欠失を調べています。
まとめ
ユビキチン化とは、76個のアミノ酸からなるユビキチンを、E1・E2・E3のリレーで標的タンパク質に結びつける翻訳後修飾です[1][2]。どのタンパク質に付けるかは約600種類のE3が選び[5]、付いたユビキチンは脱ユビキチン化酵素で外すこともできます[7]。
1個だけ付くモノユビキチン化と、鎖になるポリユビキチン化があり、鎖のつなぎ方で意味が変わります。K48鎖はプロテアソームでの分解の代表的な合図です[2][9]。UBE3AやPRKNなどの遺伝子の変化は病気の原因になり、アンジェルマン症候群の多くを占める15q11.2-q13の欠失は、当院のNIPTで妊娠中に調べられます[14]。
🧬 アンジェルマン症候群の欠失を、妊娠中に調べられます
当院のNIPTは、すべてのプランで22q11.2欠失やアンジェルマン症候群の15q11.2-q13欠失などの微小欠失を調べます。90分の受診枠の中で、臨床遺伝専門医が遺伝カウンセリングを行い、陽性なら確定検査まで院内で受けられます。
臨床遺伝専門医が常駐 | 確定検査まで院内で
参考文献
- [1] Hershko A, Ciechanover A. The ubiquitin system. Annu Rev Biochem. 1998;67:425-479. doi:10.1146/annurev.biochem.67.1.425
- [2] Komander D, Rape M. The ubiquitin code. Annu Rev Biochem. 2012;81:203-229. doi:10.1146/annurev-biochem-060310-170328(PMID: 22524316)
- [3] Goldstein G, Scheid M, Hammerling U, et al. Isolation of a polypeptide that has lymphocyte-differentiating properties and is probably represented universally in living cells. Proc Natl Acad Sci U S A. 1975;72(1):11-15. doi:10.1073/pnas.72.1.11
- [4] Stewart MD, Ritterhoff T, Klevit RE, Brzovic PS. E2 enzymes: more than just middle men. Cell Res. 2016;26(4):423-440. doi:10.1038/cr.2016.35(PMC4822130)
- [5] Li W, Bengtson MH, Ulbrich A, et al. Genome-wide and functional annotation of human E3 ubiquitin ligases identifies MULAN, a mitochondrial E3 that regulates the organelle’s dynamics and signaling. PLoS One. 2008;3(1):e1487. doi:10.1371/journal.pone.0001487(PMC2198940)
- [6] Zheng N, Shabek N. Ubiquitin ligases: structure, function, and regulation. Annu Rev Biochem. 2017;86:129-157. doi:10.1146/annurev-biochem-060815-014922(PMID: 28375744)
- [7] Mevissen TET, Komander D. Mechanisms of deubiquitinase specificity and regulation. Annu Rev Biochem. 2017;86:159-192. doi:10.1146/annurev-biochem-061516-044916(PMID: 28498721)
- [8] McDowell GS, Philpott A. Non-canonical ubiquitylation: mechanisms and consequences. Int J Biochem Cell Biol. 2013;45(8):1833-1842. doi:10.1016/j.biocel.2013.05.026(PMID: 23732108)
- [9] Thrower JS, Hoffman L, Rechsteiner M, Pickart CM. Recognition of the polyubiquitin proteolytic signal. EMBO J. 2000;19(1):94-102. doi:10.1093/emboj/19.1.94(PMC1171781)
- [10] Bard JA, Goodall EA, Greene ER, et al. Structure and function of the 26S proteasome. Annu Rev Biochem. 2018;87:697-724. doi:10.1146/annurev-biochem-062917-011931
- [11] The Nobel Prize in Chemistry 2004 (Aaron Ciechanover, Avram Hershko, Irwin Rose). NobelPrize.org. https://www.nobelprize.org/prizes/chemistry/2004/summary/
- [12] Dikic I. Proteasomal and autophagic degradation systems. Annu Rev Biochem. 2017;86:193-224. doi:10.1146/annurev-biochem-061516-044908
- [13] Flotho A, Melchior F. Sumoylation: a regulatory protein modification in health and disease. Annu Rev Biochem. 2013;82:357-385. doi:10.1146/annurev-biochem-061909-093311
- [14] Dagli AI, Mathews J, Williams CA. Angelman Syndrome. In: Adam MP, et al., eds. GeneReviews®. Seattle (WA): University of Washington, Seattle; 1998 [Updated 2025 May 1]. NCBI Bookshelf NBK1144
- [15] Kishino T, Lalande M, Wagstaff J. UBE3A/E6-AP mutations cause Angelman syndrome. Nat Genet. 1997;15(1):70-73. doi:10.1038/ng0197-70
- [16] Kitada T, Asakawa S, Hattori N, et al. Mutations in the parkin gene cause autosomal recessive juvenile parkinsonism. Nature. 1998;392(6676):605-608. doi:10.1038/33416
- [17] Shimura H, Hattori N, Kubo S, et al. Familial Parkinson disease gene product, parkin, is a ubiquitin-protein ligase. Nat Genet. 2000;25(3):302-305. doi:10.1038/77060
- [18] Maxwell PH, Wiesener MS, Chang GW, et al. The tumour suppressor protein VHL targets hypoxia-inducible factors for oxygen-dependent proteolysis. Nature. 1999;399(6733):271-275. doi:10.1038/20459
- [19] Garcia-Higuera I, Taniguchi T, Ganesan S, et al. Interaction of the Fanconi anemia proteins and BRCA1 in a common pathway. Mol Cell. 2001;7(2):249-262. doi:10.1016/S1097-2765(01)00173-3
- [20] Ito T, Ando H, Suzuki T, et al. Identification of a primary target of thalidomide teratogenicity. Science. 2010;327(5971):1345-1350. doi:10.1126/science.1177319(PMID: 20223979)
- [21] Richardson PG, Sonneveld P, Schuster MW, et al. Bortezomib or high-dose dexamethasone for relapsed multiple myeloma. N Engl J Med. 2005;352(24):2487-2498. doi:10.1056/NEJMoa043445






