

目次
染色体を顕微鏡で見ると、多くはアルファベットの「X」のような形をしています。その真ん中あたりの、少しくびれた部分がセントロメア(centromere)です。ここは細胞分裂のときに、複製された染色体を新しい2つの細胞へ正確に分けるための、いわば「取っ手」の付け根にあたる、とても大切なDNA領域です。この記事では、セントロメアとは何か、どんな役割を持ち、どこにあるのか、そして混同されやすい動原体(キネトコア)やテロメアとどう違うのかを、臨床遺伝学の観点から解説します。
※検査項目の「抗セントロメア抗体」は、強皮症などの膠原病でみられる自己抗体で、本記事とは別のトピックです。本記事は「染色体の構造としてのセントロメア」を扱います。
Q. セントロメアとは何ですか?まず結論だけ知りたいです
A. セントロメアとは、分裂期染色体で一次狭窄として観察され、動原体(キネトコア)が組み立てられる機能的な染色体領域です。姉妹染色分体の結合はセントロメア周辺(ペリセントロメア)で特に強く維持されます。ここに形成された動原体へ紡錘体微小管が結合し、染色体を新しい細胞へ正しく分配します。英語では centromere と書きます。もしセントロメアがうまく働かないと、染色体が正しく分けられず、本数の異常(異数性)につながることがあります。
- ➤位置 → 染色体のくびれ(一次狭窄)。短腕(p)と長腕(q)を分ける境目
- ➤役割 → 細胞分裂で紡錘体と結びつき、姉妹染色分体を正確に分配する
- ➤動原体との違い → セントロメア=DNA領域/動原体(キネトコア)=その上に組み立つタンパク質構造体
- ➤テロメアとの違い → セントロメアは「中央」、テロメアは「末端」。役割も別
- ➤成り立ち → ヒトの通常のセントロメアでは約171bpのαサテライトDNAが反復する。機能的なセントロメアの位置はCENP-Aクロマチンによりエピジェネティックに規定される
🧬 セントロメアの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | セントロメア(centromere)。染色体の一次狭窄(primary constriction)にあたる部分 |
| 定義 | 分裂期に一次狭窄として観察され、細胞分裂時に動原体(キネトコア)が組み立てられる機能的な染色体領域。姉妹染色分体の結合はセントロメア周辺で特に強く維持される |
| 位置 | 中央付近が多いが、位置は染色体により異なる(メタセントリック/サブメタセントリック/アクロセントリック)。短腕(p)と長腕(q)を分ける |
| 主なはたらき | 動原体の形成を通じて紡錘体微小管との結合を成立させ、姉妹染色分体を正確に分配する(染色体分配) |
| ヒトでの構成 | 171塩基対(bp)のαサテライトDNAが高次反復(HOR)として数百kb〜数Mb並ぶ[1][2] |
| どう決まるか | DNA配列そのものではなく、ヒストンH3の変異体CENP-Aによってエピジェネティックに規定される[4] |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
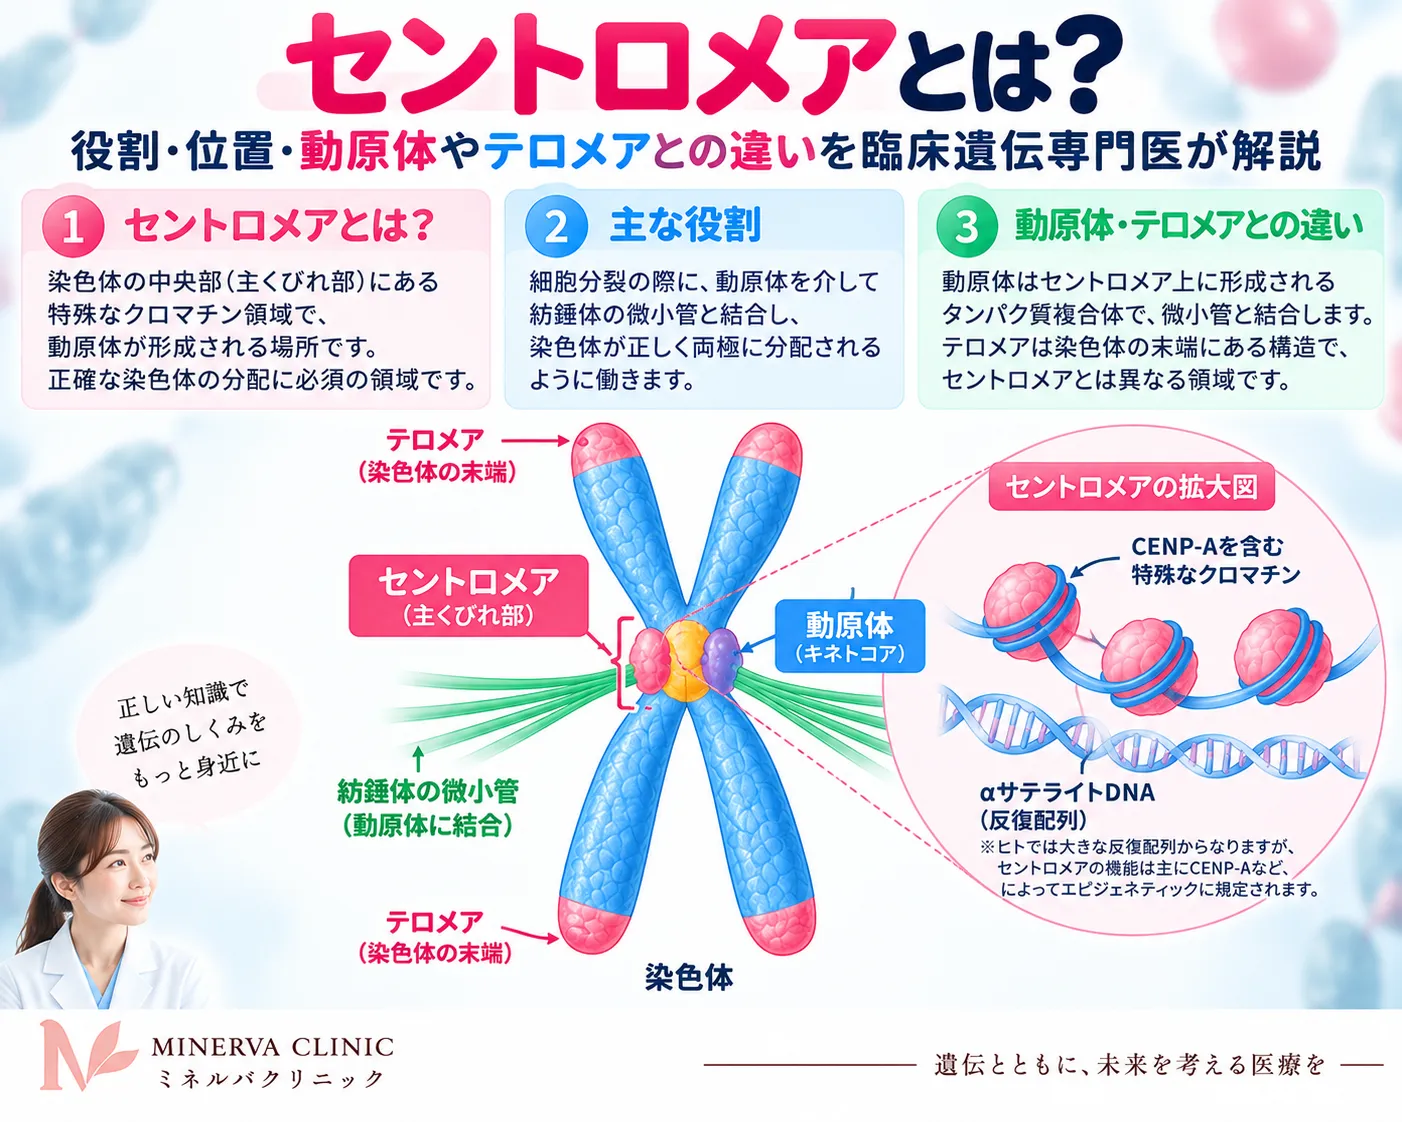
セントロメアは分裂期染色体で一次狭窄として観察され、動原体が形成される機能的な染色体領域です。動原体には紡錘体微小管が結合し、染色体分配を担います。
1. セントロメアとは ─ 染色体の「くびれ」の正体
セントロメアとは、染色体の一次狭窄(primary constriction)と呼ばれるくびれにあたるDNA領域です。細胞が分裂する準備をすると、それぞれの染色体はまったく同じ2本のコピー(姉妹染色分体)に複製されます。この2本の染色分体ではセントロメア周辺の結合が分裂後期まで特に強く維持されます。また、セントロメアには分裂時に動原体が形成され、染色体を新しい細胞へ引き分けるための「取っ手」の付け根として働きます。
染色体はセントロメアを境に、短いほうの腕を短腕(p)、長いほうの腕を長腕(q)と呼びます。たとえば「17q21」のように遺伝子の場所を表すとき、この p・q はセントロメアを基準にした位置を示しています。つまりセントロメアは、染色体上の「住所」を決める起点でもあるのです。
💡 用語解説:一次狭窄・姉妹染色分体
分裂期の染色体には、細くくびれた部分が現れます。セントロメアにあたる中央付近のくびれを「一次狭窄」といいます。姉妹染色分体とは、DNAが複製されてできた、まったく同じ2本の染色体のコピーのことです。この2本はコヒーシンなどによって結合しており、とくにセントロメア周辺ではその結合が分裂後期まで維持されます。その後、姉妹染色分体が分離して、それぞれ別の細胞へ入っていきます。
「セントロメアは染色体の”中央”にある」と説明されることがよくありますが、これはあくまで代表的なイメージです。実際には、後の「5. 位置による分類」で見るように、くびれが端に寄っている染色体もあり、位置は染色体によって異なります。ヒトの多くの細胞では、1本の染色体につきセントロメアは1か所です。したがって、46本の染色体を持つヒトの体細胞では、原則としてセントロメアは46か所にあることになります。
2. セントロメアの役割 ─ なぜ染色体分配に欠かせないのか
セントロメアの最大の役割は、細胞分裂のときに染色体を新しい2つの細胞へ正確に分配することです。結論を先に言うと、セントロメアは「紡錘体という繊維が結びつく足場」を提供し、そこで姉妹染色分体が引き分けられます。この分配が正確に行われることで、生まれた娘細胞は親と同じ遺伝情報を過不足なく受け継げるのです。
もう少し詳しく見てみましょう。細胞分裂が始まると、細胞の両端から微小管という細い管が伸び、紡錘体という装置をつくります。この微小管は、セントロメアの上に組み立てられた動原体(キネトコア)という構造体に結合します。両端から伸びた微小管が、それぞれの姉妹染色分体を反対方向へ引っぱることで、2本の染色分体はきれいに引き分けられ、別々の細胞へと運ばれていきます。次の図は、その流れを模式的に示したものです。
この仕組みがどれほど重要かは、うまくいかなかった場合を考えるとよくわかります。機能するセントロメア(動原体)を失った染色体は、紡錘体に正しくつかまれず、分配のときに取り残されたり、片方の細胞に偏って入ったりします。その結果、染色体の本数がずれた異数性(染色体数の異常)の細胞が生じやすくなります。ただし、これは「必ず異数性になる」という意味ではなく、分配ミスのリスクが高まるという意味です。実際には、すべての姉妹染色分体が両側から正しく引っぱられるまで分裂の後半を進ませない「見張り」のしくみ(紡錘体形成チェックポイント)が備わっており、分配の間違いをできるだけ防いでいます。動原体は、この見張りのセンサーとしても働いています。
なお、セントロメア周辺には反復配列が多く、周辺領域(ペリセントロメア)にはヘテロクロマチンが形成されます。一方、動原体が形成されるコアのセントロメアクロマチンはCENP-Aを含む特徴的なクロマチンで、単純に「セントロメア全体がヘテロクロマチン」とみなすのは正確ではありません。セントロメアは、染色体を正しく受け渡すための機能的な染色体領域として働きます。
3. セントロメアと動原体(キネトコア)の違い
セントロメアと動原体(キネトコア)は、しばしば同じものとして語られますが、厳密には別のものです。結論から言うと、セントロメアは「染色体上のDNA領域」で、動原体(キネトコア)は「そのセントロメアの上に組み立てられるタンパク質の構造体」です。土台となる場所がセントロメア、その上に建てられる建物が動原体、とたとえると分かりやすいかもしれません。
📊 セントロメアと動原体(キネトコア)の違い
| 比較項目 | セントロメア | 動原体(キネトコア) |
|---|---|---|
| 正体 | 染色体上のDNA領域 | その上に組み立つタンパク質の複合体 |
| 主な役割 | 動原体が形成される「土台」・姉妹染色分体をつなぐ | 紡錘体微小管と結合し、分配を実行・監視する |
| 存在する時期 | 常に染色体上に存在する | 主に細胞分裂期に組み立てられる |
| 目印 | CENP-A(特別なヒストン)を含むクロマチン | CENP-Aを起点に約40種以上のタンパク質が会合[4] |
※「キネトコア(kinetochore)」は動原体の英語名で、同じものを指します。
もう少し具体的に見てみましょう。セントロメアには、後で詳しく述べるCENP-Aという特別なヒストンを含む目印があり、これを起点に、内側から外側へと順番にタンパク質が積み重なって動原体が完成します。動原体はおよそ40種類以上のタンパク質から構成され、紡錘体微小管をがっちりつかむ「取っ手」であると同時に、微小管が正しくつながっているかを見張るセンサーの役割も兼ねています[4]。CENP-Aは動原体づくりの起点として不可欠ですが、CENP-A単独で動原体としての働きを発揮できるわけではなく、CENP-Cをはじめとする多くのタンパク質と協力してはじめて機能します[4]。
まとめると、「紡錘体が結びつく部分の名前は?」と聞かれたとき、大まかにはセントロメアと答えても間違いではありませんが、微小管が実際に結合する構造体そのものは動原体(キネトコア)であり、その動原体が組み立つ染色体上の領域がセントロメア、と区別して理解しておくと、より正確です。動原体の内部構造や組み立てのしくみについては、動原体(キネトコア)の記事で詳しく解説しています。
4. セントロメアとテロメアの違い(中心体・キアズマとの混同にも注意)
セントロメアとよく並べて語られるのがテロメアです。両者はどちらも染色体を安定に保つために欠かせない特別な領域ですが、位置も役割もまったく異なります。結論を先に示すと、セントロメアは染色体の中央付近にあって「分配の起点」を担い、テロメアは染色体の両端にあって「末端を保護する」役割を担います。
📊 セントロメアとテロメアの違い
| 比較項目 | セントロメア | テロメア |
|---|---|---|
| 位置 | 染色体の中央付近(一次狭窄) | 染色体の両末端 |
| 主な役割 | 細胞分裂での染色体分配(動原体の土台) | 染色体末端の保護・末端どうしの融合を防ぐ |
| 配列の特徴 | 171bpのαサテライトが繰り返す(ヒト) | TTAGGG(6塩基)が繰り返す(ヒト) |
| 分裂との関係 | 各分裂で分配の起点になる | 分裂のたびに少しずつ短くなりうる |
※テロメアの短縮・老化・がん・「テロメアを伸ばせば長生き」といった話題については、テロメアの記事で詳しく扱っています。
どちらも反復配列(同じ並びの繰り返し)でできており、遺伝子そのものを直接コードしているわけではない、という共通点があります。しかし、セントロメアが「染色体を正しく分ける」ための構造であるのに対し、テロメアは「染色体の端をほつれから守る」ための構造です。役割の違いを押さえておくと、両者を混同せずに済みます。
💡 混同しやすい用語の整理:中心体・キアズマ
名前や場面が似ているために、セントロメアと取り違えられやすい用語があります。
・中心体(centrosome)…微小管を伸ばす「拠点」となる細胞小器官で、染色体上の領域であるセントロメアとはまったく別のものです。名前が似ているだけで、場所も働きも異なります。
・キアズマ(chiasma)…減数分裂のときに相同染色体どうしが交差して乗り換え(組換え)を起こす点のことで、これもセントロメアとは別の概念です。
5. セントロメアの位置による染色体の分類
セントロメアが染色体上のどこにあるかによって、染色体はいくつかのタイプに分類されます。この分類は、染色体を1本ずつ見分ける核型分析のときに、大きさやバンド模様とともに重要な手がかりになります。代表的な4つのタイプを見てみましょう。
📊 セントロメアの位置による染色体の分類
| タイプ | セントロメアの位置 | ヒトでの例 |
|---|---|---|
| メタセントリック (中部着糸型) |
ほぼ中央。p腕とq腕がほぼ同じ長さ | 1番・3番・19番・20番など |
| サブメタセントリック (次中部着糸型) |
中央からややずれ、p腕がq腕より短い | ヒトの多くの染色体(4〜12番など) |
| アクロセントリック (端部着糸型) |
端に大きく寄り、p腕が非常に短い | 13・14・15・21・22番の5対 |
| テロセントリック | 末端に位置する | ヒトには存在しない(マウスなど他の動物にみられる) |
※Y染色体は、分類によってアクロセントリックとする見方とサブテロセントリックとする見方があります。
※染色体全体がセントロメアとして働く「ホロセントリック染色体」もありますが(線虫など)、ヒトには存在しません。
ヒトの常染色体では、13・14・15・21・22番の5対がアクロセントリック染色体です[7]。これらの染色体の短い腕(p腕)には、リボソームRNAをつくる遺伝子が集まった核小体形成体(NOR)があります。一方、ヒトにはテロセントリック(セントロメアが完全に末端にある)染色体は存在しません。マウスなど一部の動物にはみられますが、ヒトの染色体は末端着糸型を持たない、という点は押さえておくとよいでしょう。
このように、セントロメアの位置は染色体を見分けるための「顔つき」の一部になっています。染色体を並べて分析する核型については、核型の記事で詳しく解説しています。

🩺 院長コラム【”設計図の文字”だけでは決まらないもの】
セントロメアの面白いところは、「どこがセントロメアになるか」がDNAの塩基配列だけでは決まらない、という点です。次の章で述べるように、セントロメアの位置は、CENP-Aという特別な目印によってエピジェネティックに(=配列の外側のしくみで)決められています。同じような繰り返し配列があっても、そこが必ずセントロメアになるとは限りません。
これは、遺伝医学の考え方にも通じます。遺伝子検査ではDNAの並び(配列)を読みますが、生命の働きは配列だけで決まるわけではなく、その「読まれ方」や「使われ方」も重要だということを、セントロメアは教えてくれます。現在の研究では、こうしたエピジェネティックなしくみの理解が、遺伝や発生を読み解くうえでますます大切になっています。
6. セントロメアのDNAと成り立ち ─ αサテライトとCENP-A
ここからは、セントロメアがどんなDNAでできていて、どうやって「ここがセントロメアだ」と決まるのかを、もう一歩踏み込んで見ていきます。結論を先に言うと、ヒトの通常のセントロメアには約171塩基対を基本単位とするαサテライトDNAが大規模に反復しており、機能的なセントロメアの位置はDNA配列だけでなく、CENP-Aを含むセントロメアクロマチンによってエピジェネティックに規定されています[1][4]。
αサテライトDNA ─ 171bpの繰り返し
ヒトの通常のセントロメアを構成する主要な反復配列は、αサテライトDNA(アルフォイドDNA)と呼ばれる繰り返し配列です。基本単位はおよそ171塩基対(bp)のモノマーで、これがいくつか集まって「高次反復単位(HOR)」をつくり、そのHORがさらに何百〜何千回も繰り返されて、数百kb〜数Mb(メガベース)にもおよぶ巨大な領域を形づくっています[1][2]。どのHORを何個並べるかが染色体ごとに異なるため、αサテライトの並びには染色体ごとの個性があります。
💡 用語解説:塩基対(bp)・kb・Mb
bp(塩基対)はDNAの長さの単位で、A-TやG-Cのペア1組が1bpです。1,000bpが1kb(キロベース)、100万bpが1Mb(メガベース)です。ヒトのセントロメア領域は、この単位で数百kb〜数Mbという、非常に大きな繰り返し構造になっています。
セントロメアの大きさは生き物によって大きく異なります。たとえば出芽酵母では、わずか約125bpの短いDNA配列だけでセントロメアとして働き、これは「ポイントセントロメア」と呼ばれます[3]。一方、ヒトや植物のセントロメアはMb規模の巨大な「リージョナル(領域型)セントロメア」で、両者の間には数千倍もの大きさの差があります[3]。それでも、次に述べるCENP-Aという共通の目印を使う点は、酵母からヒトまで広く保存されています。
CENP-A ─ セントロメアの目印となる特別なヒストン
DNAは、ヒストンというタンパク質に巻きついてヌクレオソームという基本単位をつくり、収納されています。セントロメアでは、通常のヒストンH3の代わりに、その変異体であるCENP-A(CenH3とも呼ばれる)が使われています[4]。このCENP-Aを含む特別なヌクレオソームが、「ここがセントロメアだ」という目印になり、それを目がけて動原体をつくるタンパク質が集まってきます。CENP-Aは、酵母(Cse4)から分裂酵母(Cnp1)、ヒト(CENP-A)まで、真核生物に広く保存された重要な因子です[3]。
なお、ヒトのαサテライトの中には、17塩基対のCENP-Bボックスと呼ばれる配列が周期的に現れ、そこにCENP-Bというタンパク質が結合します。ただし、CENP-Bは有糸分裂や減数分裂でのセントロメアの働きに必須ではないことが知られており、機能的なセントロメアを規定する中心的なエピジェネティック標識はCENP-Aクロマチンである、と考えられています。このように、セントロメアには複数のタンパク質が関わりますが、位置を決める中心的な目印はCENP-Aだという点が、現在の理解の要になっています。
なぜ「配列」でなく「エピジェネティック」に決まるのか
重要な点として、ヒトを含む多くの真核生物ではセントロメアの位置はDNAの塩基配列そのものによって決まっているわけではありません。生物によってセントロメアの配列はまったく異なり、同じ生物の異なる染色体の間でも異なります。それにもかかわらず、CENP-Aを含むヌクレオソームが特定の場所に存在し続けることが、世代を越えて「ここがセントロメア」という情報を安定に伝えています[4]。このように、配列ではなく目印の存在によって受け継がれるしくみをエピジェネティックな規定と呼びます。その証拠に、本来のαサテライトを含まない場所に新しくセントロメアができるネオセントロメアという現象も知られています。
💡 かつては読めなかったセントロメアの配列
セントロメアは同じような配列がひたすら繰り返す領域のため、長いあいだDNAの配列を正確に読むことが難しく、ゲノムの中でも「空白地帯」として残されていました。しかし、長い断片をそのまま読む技術(ロングリードシークエンシング)の発展により、2022年にはヒトゲノムが末端から末端まで(T2T)完全に解読され、セントロメア領域の構造も明らかになりました[8][9]。「配列決定が困難な領域」という古い説明は、今では大きく更新されつつあります。
セントロメアはなぜ多様なのか ─ 進化の視点(研究中の仮説)
細胞分裂に不可欠な役割を持ちながら、なぜセントロメアの配列は生物ごとにこれほど異なるのでしょうか。これについては、いくつかの仮説が提案されています。よく知られるのが「セントロメア駆動仮説(centromere drive)」で、減数分裂における染色体分配の非対称性(卵になる側と捨てられる側がある)が遺伝的な競合を生み、セントロメアの急速な進化を促す、という考え方です[5]。また、繰り返し配列が分配の精度やエラー修正のしくみと関わっている可能性も議論されています[6]。ただし、これらはいずれも研究途上の仮説であり、確立した事実ではありません。相関とメカニズムの解明は、今も進められている段階です。
まとめ ─ 染色体を正しく受け渡すための要(かなめ)
セントロメアは、染色体の中央付近にある「くびれ(一次狭窄)」にあたるDNA領域で、複製された姉妹染色分体をつなぎとめ、細胞分裂のときに動原体(キネトコア)が組み立つ土台となります。ここに紡錘体が結びつき、染色体を新しい細胞へ正確に分配することで、生命の連続性が保たれています。セントロメアが正しく働かないと、染色体分配のミスから異数性が生じるリスクが高まります。
セントロメア(DNA領域)と動原体(その上のタンパク質構造体)は別のもの、そしてセントロメア(中央)とテロメア(末端)も役割の異なる別の領域である、という区別を押さえておくと、染色体の理解がぐっと深まります。ヒトの通常のセントロメアは約171bpのαサテライトを基本単位とする巨大な反復領域を含み、その機能的位置はDNA配列だけでなくCENP-Aクロマチンによってエピジェネティックに規定される——この「配列だけでは決まらない」という性質こそ、セントロメアという構造の最も奥深い特徴です。
🧬 ミネルバクリニックの遺伝診療・遺伝カウンセリングについては、
遺伝カウンセリング・遺伝診療のご案内をご確認ください。
よくある質問(FAQ)
Q1. セントロメアとは何ですか?
セントロメアとは、分裂期染色体で一次狭窄として観察され、動原体(キネトコア)が組み立てられる機能的な染色体領域です。姉妹染色分体の結合はセントロメア周辺で特に強く維持されます。形成された動原体へ紡錘体微小管が結合し、染色体を新しい細胞へ正確に分配します。英語では centromere と書きます。
Q2. セントロメアの役割は何ですか?
最大の役割は、細胞分裂のときに染色体を正確に分配することです。セントロメアの上に組み立つ動原体を介して紡錘体微小管が結合し、姉妹染色分体を反対方向へ引き分けます。この分配が正確に行われることで、新しい細胞は親と同じ遺伝情報を過不足なく受け継げます。セントロメアがうまく働かないと、染色体数の異常(異数性)が起こるリスクが高まります。
Q3. セントロメアと動原体(キネトコア)は同じですか?違いは?
厳密には別のものです。セントロメアは「動原体形成を規定する機能的な染色体領域」で、動原体(キネトコア)は「そのセントロメアの上に組み立てられるタンパク質複合体」です。土台がセントロメア、その上に建つ建物が動原体、とたとえられます。微小管が実際に結合するのは動原体で、その動原体ができる染色体上の場所がセントロメアです。
Q4. セントロメアとテロメアの違いは?
位置と役割が異なります。セントロメアは染色体の中央付近にあり、細胞分裂での染色体分配を担います。テロメアは染色体の両末端にあり、末端を保護して染色体どうしの融合を防ぎます。どちらも反復配列でできていますが、セントロメアは171bpのαサテライト、テロメアはTTAGGGの繰り返しという違いもあります。
Q5. ヒトの染色体にセントロメアはいくつありますか?
ヒトの多くの細胞では、1本の染色体につきセントロメアは1か所です。ヒトの体細胞は46本の染色体を持つため、原則としてセントロメアは46か所にあることになります。まれに、本来の場所以外に新しくセントロメアができる「ネオセントロメア」や、2か所になる「ダイセントリック染色体」といった例外も知られています。
Q6. 「抗セントロメア抗体」とセントロメアは関係がありますか?
名前は共通していますが、別のトピックです。抗セントロメア抗体は、強皮症(全身性強皮症)などの膠原病でみられる自己抗体で、セントロメアのタンパク質(CENP-A/B/Cなど)を標的にすることが名前の由来です。その検査値の解釈や関連する病気については、膠原病・リウマチの領域で扱われます。本記事は「染色体の構造としてのセントロメア」を解説しており、抗体検査の内容は含みません。
参考文献
- [1] Aldrup-MacDonald ME, Sullivan BA. The past, present, and future of human centromere genomics. Genes (Basel). 2014. [PubMed 24683489]
- [2] McNulty SM, et al. Human Centromeres Produce Chromosome-Specific and Array-Specific Alpha Satellite Transcripts that Are Complexed with CENP-A and CENP-C. Dev Cell. 2017. [PMC5568664]
- [3] Jayaram M. Association of a centromere specific nucleosome with the yeast plasmid partitioning locus: Implications beyond plasmid partitioning. Mob Genet Elements. 2011;1(3):203-207. doi:10.4161/mge.1.3.17431. [PubMed 22479687]
- [4] Stellfox ME, Bailey AO, Foltz DR. Putting CENP-A in its place. Cell Mol Life Sci. 2013;70(3):387-406. doi:10.1007/s00018-012-1048-8. [PMC4084702]
- [5] Malik HS, Henikoff S. Conflict begets complexity: the evolution of centromeres(セントロメア駆動仮説). Curr Opin Genet Dev. 2002. [PubMed 12433586]
- [6] Bassett EA, Wood S, Salimian KJ, Ajith S, Foltz DR, Black BE. Epigenetic centromere specification directs aurora B accumulation but is insufficient to efficiently correct mitotic errors. J Cell Biol. 2010;190(2):177-185. doi:10.1083/jcb.201001035. [PubMed 20643881]
- [7] Chromosomes, Chromosome Anomalies(ヒト染色体の位置による分類・アクロセントリック染色体). Atlas Genet Cytogenet Oncol Haematol. [Atlas of Genetics]
- [8] Suzuki Y, et al. The time is ripe to investigate human centromeres by long-read sequencing. DNA Res. 2021. [PMC8502840]
- [9] Guarracino A, et al. Recombination between heterologous human acrocentric chromosomes(T2T-CHM13完全ゲノムによるセントロメア/アクロセントリック短腕の解読). Nature. 2023. [PMC10172130]






