

目次
- 1 1. HES/HEYファミリーとは ─ Notchが生み出す「抑える」転写因子
- 2 2. 分子のかたち ─ bHLH・Orange・そして短いモチーフ
- 3 3. 10人の顔ぶれ ─ HES1〜7とHEY1/2/L
- 4 4. Notchとの関係 ─ 「単純な出力」ではない
- 5 5. 発現の「振動」が情報になる ─ Hes1時計とHes7の体節時計
- 6 6. 発生を支える ─ 神経・体節・心血管
- 7 7. 疾患との接点 ─ 脊椎肋骨異形成症とHEY1-NCOA2融合
- 8 8. がん・免疫での文脈依存性 ─ 単純な標的にはならない
- 9 9. 種を越えた保存と、治療標的としての現在地
- 10 10. よくある誤解
- 11 まとめ ─ 「抑える」ことで体をつくる一族
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

遺伝子の教科書では、Notch(ノッチ)という細胞どうしの合図が「細胞の運命を決める」と説明されます。その合図を受け取って、実際に細胞の中で遺伝子のスイッチを切り替えているのが、HES/HEYファミリーと呼ばれる転写因子(てんしゃいんし)のグループです。このファミリーは、神経のもとになる細胞をとっておいたり、背骨の分かれ目をつくる「体づくりの時計」を刻んだり、心臓や血管をかたちづくったりと、体の設計に深く関わっています。そして、あるメンバーの遺伝子が変化すると背骨や肋骨の形の異常(脊椎肋骨異形成症)が起こり、別のメンバーが別の遺伝子とくっつくと、まれな肉腫(にくしゅ=がんの一種)の目印になることもわかっています。この記事では、HES/HEYファミリーとは何か、Notchとどうつながるのか、そして遺伝性の病気や診断とどう関わるのかを、臨床遺伝学の観点から解説します。
Q. HES/HEYファミリーとは何ですか?まず結論だけ知りたいです
A. HES/HEYファミリーとは、Notchシグナルによってつくられ、他の遺伝子の働きを「抑える」向きに調節するbHLH型の転写因子(転写リプレッサー)のグループです。ヒトではHES1〜7とHEY1・HEY2・HEYLが知られています。細胞の運命決定、幹・前駆細胞(ぜんくさいぼう)の維持、分化のタイミング、背骨をつくる体節形成の「時計」、心臓・血管の発生などを制御します。HES7の両方の遺伝子の変化は脊椎肋骨異形成症を、HEY1と別遺伝子の融合はまれな肉腫を引き起こすことが知られています。
- ➤正体 → Notchが誘導する「抑える」タイプの転写因子(bHLH-O型リプレッサー)の一族
- ➤顔ぶれ → HES1〜7とHEY1・HEY2・HEYL。名前の似たHESX1は別系統
- ➤得意技 → 「発現量」だけでなく、リズミカルに増減する「振動」で時間を刻む
- ➤病気とのつながり → HES7の両アレル変異は脊椎肋骨異形成症(SCDO4)を起こす
- ➤診断への応用 → HEY1-NCOA2融合遺伝子は間葉性軟骨肉腫の分子診断の目印
🧬 HES/HEYファミリーの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・意味 | ヘス/ヘイ ファミリー。HES=Hairy and Enhancer of Split、HEY=Hairy/Enhancer-of-split related with YRPW motif |
| 分類 | bHLH-Orange(bHLH-O)型の転写リプレッサー(遺伝子の働きを抑える転写因子) |
| ヒトのメンバー | HES1・HES2・HES3・HES4・HES5・HES6・HES7/HEY1・HEY2・HEYL |
| 主な上流 | Notchシグナル(ただし全メンバーが単純なNotch出力ではない) |
| 主なはたらき | 細胞運命決定、幹・前駆細胞の維持、分化タイミング、体節形成、心血管発生 |
| 医療との関わり | HES7変異→脊椎肋骨異形成症(SCDO4)/HEY1-NCOA2融合→間葉性軟骨肉腫の診断マーカー |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. HES/HEYファミリーとは ─ Notchが生み出す「抑える」転写因子
私たちの体は1個の受精卵から始まり、細胞が分裂しながら「どの細胞になるか」を次々に決めていきます。その決定を左右する重要な合図の一つが、隣り合った細胞どうしがやりとりするNotchシグナルです。HES/HEYファミリーは、このNotchの合図を受け取って、実際に核の中で遺伝子のオン・オフを切り替える「実行役」にあたります。多くの場合、標的とする遺伝子の働きを抑える(リプレッサーとして働く)のが特徴です。
ヒトでは、狭い意味でのHES群としてHES1・HES2・HES3・HES4・HES5・HES6・HES7、HEY群としてHEY1・HEY2・HEYLの合計10個が扱われます。いずれも、細胞運命の決定、幹細胞や前駆細胞をとっておくこと、分化のタイミング、組織の境界づくり、背骨のもとになる体節(たいせつ)の形成、心臓や血管の発生などに関わります。名前が似ているHESX1は、まったく別の系統(ホメオボックス転写因子)なので、このファミリーには含めません。ここは混同しやすいので、最初に整理しておきます。
💡 用語解説:転写因子とリプレッサー
転写因子とは、DNAの特定の場所にくっついて、その遺伝子を「読み取る(転写する)」量を増やしたり減らしたりするタンパク質のことです。働きを増やす向きに調節するものを活性化因子、減らす向きに調節するものをリプレッサー(抑制因子)と呼びます。HES/HEYは主にリプレッサーとして働き、細胞が早く分化しすぎないよう「ブレーキ」をかける役割を担います。
大切なのは、HES/HEYが単なる「Notchのオフスイッチ」ではないという点です。前駆細胞を使い果たさないように分化を先延ばしにし、後からつくられる細胞のために「時間を稼ぐ」タイマーのような役割を果たしています。マウスの神経系では、HES1とHES5がNotchによる分化抑制の中心的な実行役であり、この二つをともに失うと、前駆細胞が早々に神経細胞へ変わってしまう(早期の神経分化が起こる)ことが遺伝学的に示されています[1]。逆に一時的にHES1/HES5を強く働かせると、未分化な神経前駆細胞のプールが保たれます[1]。「抑える」働きが、結果として多様な細胞を正しい順番で生み出すことにつながっているのです。
この「抑えることでかたちをつくる」という考え方は、発生生物学の側方抑制(そくほうよくせい)という仕組みと深く結びついています。ある細胞がNotchのリガンドを出して隣の細胞のNotchを刺激すると、刺激された側でHES/HEYが増え、自分がリガンドを出す力やプロニューラル因子の働きが下がります。その結果、最初に一歩抜け出した細胞は分化へ進み、周囲の細胞は未分化のまま残る——こうして隣り合う細胞のあいだに運命の「役割分担」を生み出すのが、HES/HEYの重要な仕事です。単に遺伝子を止めているのではなく、細胞集団のなかで運命を振り分けている、と捉えると理解しやすくなります。
2. 分子のかたち ─ bHLH・Orange・そして短いモチーフ
HES/HEYタンパク質は、共通した設計図を持っています。中心となるのは、DNAを認識する塩基性領域(ベーシック領域)と、仲間どうしがペアを組むためのbHLH(塩基性ヘリックス・ループ・ヘリックス)という部分です。そのすぐ後ろにOrange(オレンジ)ドメインが続き、これが「どの相手とペアを組むか」という選択性を決めます。さらにC末端(タンパク質の終わりの側)には、HESでは典型的にWRPW、HEY1・HEY2ではYRPWという、わずか4つのアミノ酸からなる短い目印(モチーフ)が付いています。
💡 用語解説:bHLHとヘテロ二量体
bHLH型の転写因子は、単独ではなく、たいてい2つがペア(二量体)になって働きます。同じ種類どうしのペアをホモ二量体、違う種類どうしのペアをヘテロ二量体といいます。どの相手と組むかで、くっつくDNAの場所や強さが変わるため、「相手選び」そのものが機能を決める重要な要素になります。HES/HEYが結合するDNA配列には、Eボックスと呼ばれる目印などが含まれます。
HESのC末端にあるWRPWモチーフは、Groucho/TLEコリプレッサーという別のタンパク質を呼び寄せる係留(けいりゅう)の目印です。TLEはWDリピートドメインという車輪のような構造を持ち、これが転写を抑える装置の土台になります。ここで面白いのがHES6です。HES6もWRPWを持っているのに、HES1のような「抑える」働きとは逆に、HES1とTLEの結びつきをじゃまし、HES1の分解を促して神経分化をむしろ後押しします[3]。つまり「同じモチーフを持つ=同じ働き」とは限りません。相手選び、働くタイミング、後で述べるリン酸化やタンパク質の寿命が、最終的な役割を決めます。
HEY1・HEY2はC末端にYRPWを含む保存配列を持ち、YRPWモチーフのページで解説するように、HESとは少し異なる相互作用特性を示します。一方、HEYLではこのC末端モチーフはHEY1・HEY2から大きく分岐しており、初期の比較解析では典型的なYRPWモチーフを欠くと報告されています。細部は違っても、bHLHとOrangeという背骨を共有している点が、この一族を「ファミリー」とみなす根拠です。
Orangeドメインは、bHLHのすぐ後ろにある2本のらせん(ヘリックス)からなる部分で、HES/HEYが「どの相手とペアを組むか」を絞り込む役割を担います。この選択性のおかげで、HES/HEYは無関係な相手と手当たりしだいに結合するのではなく、決まったパートナーとだけ機能的な複合体をつくれます。また、HESが認識するDNA配列には、Eボックスに加えてNボックスと呼ばれる別の目印もあり、標的によって使い分けられます。「どの相手と組み、どの配列につくか」という組み合わせが、同じファミリーでもメンバーごとに異なる標的遺伝子を選ぶ理由になっています。
3. 10人の顔ぶれ ─ HES1〜7とHEY1/2/L
ここで、ヒトのHES/HEYファミリー10メンバーを一覧で整理します。染色体上の位置やタンパク質の長さは、代表的な標準配列(UniProt/Ensembl/NCBI)にもとづく値で、アイソフォーム(選択的スプライシングで生じる別バージョン)によって前後することがあります。発現欄は、体のすべての場所ではなく、研究でよく取り上げられる代表的な場所をまとめたものです。
🧬 ヒトHES/HEYファミリーの比較
| 遺伝子 | 染色体・長さ(目安) | 代表的なはたらき・特徴 |
|---|---|---|
| HES1 | 3q29/約280アミノ酸 | Notchの主要な実行役。神経前駆細胞・腸管・造血など多くの前駆細胞で分化にブレーキ。自己抑制で「振動」する代表格 |
| HES2 | 1p36.31/約170アミノ酸台 | WRPW型。確立した単一遺伝子疾患は現時点で明確でない |
| HES3 | 1p36.31/約190アミノ酸台 | 非典型的な(Notchによらない)経路との関わりが研究段階。魚類の相同分子her3が実験に用いられる |
| HES4 | 1p36末端域/約220アミノ酸台 | マウスに明確な相同遺伝子がない。ヒトの初期T細胞づくりでHES1と重複しない役割が報告 |
| HES5 | 1p36.32/約160アミノ酸台 | 中枢神経の神経前駆細胞。HES1と役割が重なり、両方を欠くと前駆細胞維持の障害が表面化 |
| HES6 | 2q37.3/約220アミノ酸台 | HES1の拮抗役。神経分化を促す「anti-HES」的な例外 |
| HES7 | 17p13.1/約220アミノ酸台 | 前体節中胚葉で周期的に発現する体節時計の中心因子。両アレル変異で脊椎肋骨異形成症 |
| HEY1 | 8q21.13/約304アミノ酸 | YRPW型。心血管発生でHEY2と協調。HEY1-NCOA2融合が間葉性軟骨肉腫の診断マーカー |
| HEY2 | 6q22.31/約337アミノ酸 | 心室・動脈系。マウス欠損で心室中隔欠損やファロー四徴症様の心奇形。ブルガダ症候群感受性の研究対象 |
| HEYL | 1p34.2/約328アミノ酸 | HEY1・HEY2とは異なりC末端モチーフが大きく分岐。単独欠損の影響はHEY1/2より限定的。確立した単一遺伝子疾患は現時点で明確でない |
※長さ・座位はアイソフォームやデータベースの版で前後します。正確な数値は各遺伝子の一次データベースをご確認ください。
この表から見えてくる大切なポイントが2つあります。1つは冗長性(じょうちょうせい)です。HES1とHES5、HEY1とHEY2のように、1つだけを失っても大きな異常が出ず、2つ同時に失って初めて重い異常が現れる組み合わせがあります。ですから、単独の遺伝子ノックアウトだけを見て「この遺伝子は機能していない」と結論づけるのは危険です。もう1つは、同じファミリーでも働く向きが逆転する例があること。HES1が神経分化を抑えるのに対し、HES6はその抑制を解除して分化を促します[3]。「HESが出ている=未分化のまま」と単純に言い切れないのは、このためです。
個々のメンバーを見ると、研究の厚みには差があります。HES1・HES5・HES7・HEY1・HEY2は機能や疾患との関係がよく調べられている一方、HES2・HES3・HEYLは、発現する場所や大まかな性質は分かっていても、ヒトで確立した単一遺伝子疾患はまだはっきりしていません。これは「重要でない」という意味ではなく、まれで見つけにくい、あるいは仲間が補うために表面化しにくい、といった理由が考えられます。HES4のようにマウスに相当する遺伝子がないメンバーは、マウス実験だけでは役割が分からず、ヒトの細胞を使った解析が欠かせません。ファミリーの全体像を正しくつかむには、こうしたメンバーごとの研究状況の違いも意識しておく必要があります。
🩺 院長コラム【「同じ名前」に引きずられない】
遺伝子の世界では、名前や配列が似ているものを「だいたい同じもの」と思いたくなります。けれども、HES6のように同じファミリー・同じモチーフを持ちながら、働きが正反対の分子があります。臨床遺伝の現場でも、似た名前の遺伝子や、似た配列のバリアントを「同じようなもの」とまとめて考えると、判断を誤ることがあります。
遺伝医学では、「同じ遺伝子でも、変異の性質によって意味がまったく変わる」という考え方が重要です。HES/HEYファミリーは、その考え方を発生生物学の基礎から理解するうえで、よい例になります。
4. Notchとの関係 ─ 「単純な出力」ではない
HES/HEYの最もよく確立した上流が、いわゆる古典的(canonical)Notchシグナルです。まず隣の細胞にあるリガンド(Delta-likeやJagged)が、Notch受容体を刺激します。すると受容体が切断され、その内側の断片(NICD)が核へ移動し、RBPJ(CSL)やMAMLと複合体をつくって、HES1・HES5・HEY1・HEY2・HEYLなどのスイッチを入れます。この流れを図にすると、次のようになります。
Delta/Jaggedリガンド
切断NICDが遊離
複合体スイッチON
発現標的遺伝子を抑制
神経系で最も証拠が強い標的は、ASCL1(Mash1)やNeurogeninといったプロニューラル因子(神経をつくる方向に働くbHLH因子)です。HES1/HES5はこれらを抑えることで分化を遅らせ、Notchの合図が切れると抑制が外れて神経細胞が生まれます[1]。この関係は、細胞を早く使い切らずに、必要なときに必要な細胞を生み出すための巧みなブレーキになっています。
ただし、「HES/HEY=Notchの単純な出力」と考えると見誤ります。すでに触れたHES6は、Notchに素直に誘導されるというより、むしろHES1に逆らって分化を促す拮抗因子です[3][4]。HES3は非古典的な経路との関わりが研究され、HES1自身も神経成長因子(NGF)によるリン酸化で、量を減らさないままDNAへの結合力だけを下げる、という調節を受けます。つまり同じファミリーでも、Notchだけでなくさまざまな入力によって働きが微調整されているのです。
Notchの合図には、大きく2つの使われ方があります。1つは、いま述べた側方抑制のように、隣り合う細胞を「違う運命」に振り分ける使い方です。もう1つは側方誘導と呼ばれ、隣り合う細胞をむしろ「同じ運命」にそろえる使い方で、血管や組織の境界づくりで見られます。どちらの場合も、実際に遺伝子のオン・オフを動かしているのはHES/HEYです。さらにHES1は、標的であるプロニューラル因子だけでなく、Notchのリガンドの発現も間接的に左右するため、細胞どうしのやりとり全体にフィードバックがかかります。こうした入れ子の構造が、Notch-HES/HEY系を「単純なスイッチ」ではなく、動きのある制御ネットワークにしています。
5. 発現の「振動」が情報になる ─ Hes1時計とHes7の体節時計
HES研究がもたらした最も重要な考え方の一つが、「発現量そのもの」ではなく「増減のリズム(振動)」が情報を持つという発見です。HES1は自分自身のスイッチを抑える性質(自己抑制)と、短い寿命を持つため、一定のリズムで増えたり減ったりを繰り返します。培養細胞で調べると、HES1のmRNAとタンパク質はおよそ2時間の周期で振動し、これは自己抑制とユビキチン・プロテアソーム系によるタンパク質分解に依存していることが示されました[2]。
💡 用語解説:発現の「振動」とネガティブフィードバック
HES1は、自分でつくられると自分のスイッチを切る性質があります(自己抑制=ネガティブフィードバック)。増えると自分を止め、止まると分解されて減り、また増える——この繰り返しで、時計の振り子のように一定のリズムが生まれます。同じ「HES1が陽性」でも、ずっと高いままなのか、リズミカルに振動しているのかで、細胞の状態は違ってきます。細胞分化のスイッチは、この「量」ではなく「動き方」に隠れていることがあるのです。
このリズムを、体づくりの「時計」に組み込んだのがHES7です。背骨や肋骨のもとになる体節は、前体節中胚葉(PSM)という組織から、一定のリズムで1個ずつ切り出されていきます。この切り出しのリズムを刻むのが体節時計(segmentation clock)で、HES7はその中心となる周期的なリプレッサーです。マウスでHES7を失うと体節の境界づくりと前後の向きが乱れ、背骨・肋骨のパターンに深刻な異常が生じます[5]。体節時計には、RipplyファミリーやDLL3・MESP2・TBX6・LFNG・RIPPLY2・DMRT2といった多くの遺伝子が関わり、HES7はその歯車の一つとして働きます。
抑制ネガティブフィードバック
(分解)抑制が外れる
=時計が刻む体節を1個切り出す
この「リズムが体をつくる」という原理は、HES研究から生まれた発生生物学の大きな成果です。そして次の章で見るように、HES7のこの時計がヒトで壊れると、実際に背骨と肋骨の病気につながります。基礎研究の発見が、そのまま患者さんの診断に結びつく好例です。
この「振動」の考え方は、神経の幹細胞でも重要です。HES1がある程度持続的に高いと前駆細胞は未分化のまま保たれ[1]、逆にHES1が振動していると、その下流のプロニューラル因子も連動して増減し、細胞は分化の準備状態に置かれると考えられています。つまり、同じHES1でも「持続的に高いか」「振動しているか」で、細胞に伝わるメッセージが変わるのです。培養細胞で確認された約2時間周期の振動[2]は、こうした細胞運命の切り替えを時間の面から支える仕組みとして注目されています。発現の「量」だけを測る従来の見方では見落とされてきた情報が、「動き方」に隠れていたわけです。
6. 発生を支える ─ 神経・体節・心血管
神経系 ─ 分化のタイミングを決める
マウスでは、HES1とHES5がNotchによる神経系の主要な実行役です。両方を欠くと、Notchによる分化抑制が破綻して神経細胞が早くつくられすぎてしまいます[1]。一方、HES6は逆向きに働き、HES1を抑えてニューロンへの分化を促します[3][4]。皮質神経前駆細胞では、HES6の神経分化促進作用はHES6自身のDNA結合に依存せず、HES1による転写抑制を妨げることや、プロニューラル因子であるMash1とE47の活性を保つことなど、複数の仕組みで実現されます[3]。神経細胞だけでなく、オリゴデンドロサイトなど、脳のさまざまな細胞づくりのタイミングにもHESファミリーが関わります。
HESファミリーは、脳だけでなく内耳の感覚細胞(有毛細胞)づくりや、腸・膵臓などの内分泌細胞の分化タイミングにも関わります。ここでも基本は同じで、HESが分化を抑えているあいだは前駆細胞が保たれ、抑制が外れると特定の細胞へ分化します。注意したいのは、単独の遺伝子を欠いても仲間が補うために表現型が出にくく、複数を同時に調べて初めて役割が見えることが多い点です。ある1つのHES遺伝子のノックアウトで「異常が出なかった」からといって、その遺伝子が働いていないとは限りません。これは、遺伝子の機能を評価するときに常に意識すべき、ファミリー遺伝子ならではの落とし穴です。
体節・軸骨格 ─ 背骨をつくる時計の中心
HES7は、すでに述べたとおり体節時計の中心因子です。マウスの体節時計の生物学が、ヒトの背骨の病気に非常に直接的に保存されていることを示す代表例であり[5]、この点は次章でくわしく取り上げます。
心臓・動脈系 ─ HEYの主戦場
HEY群は、心臓と血管の発生でとくに重要です。マウスでHEY1とHEY2をともに欠くと、初期の血管づくりは進むものの、その後に発達する主要な血管が小さくなったり欠けたりし、動脈らしさを示す目印が出なくなります。これは、HEY1/HEY2が動脈の運命を決めるNotchの重要な伝達役であることを示しています[9]。単独欠損では仲間が補う(冗長性)ため見逃されやすく、2つ同時に調べて初めてわかった機能の代表例です。
ゼブラフィッシュでは、gridlock(グリッドロック)という古典的な血管変異体が、大動脈の組み立てに必要な遺伝子として同定されました。この遺伝子はHairy/E(spl)型のbHLHタンパク質をコードし、マウスのHEY2に相当します[8]。HEY2はヒトでは6q22.31に位置し、GATA4・GATA6など他の心臓系転写因子と相互作用することが報告されています。マウスのHEY2欠損では先天性心疾患(心室中隔欠損やファロー四徴症様の病変)が報告されており、心血管発生におけるHEYの重みがうかがえます。
なお、HEY1は骨格筋づくり(マイオジェネシス)にも関わり、筋分化を進めるMYOG(ミオジェニン)やMEF2Cの調節領域に働きかけて、筋分化のプログラムを抑える向きに作用することが示されています。HEYの標的は細胞の種類によってかなり異なるため、「HEYの標的遺伝子リスト」は一つに固定できず、組織ごとに読み替える必要があります。
7. 疾患との接点 ─ 脊椎肋骨異形成症とHEY1-NCOA2融合
HES7と脊椎肋骨異形成症(SCDO4)
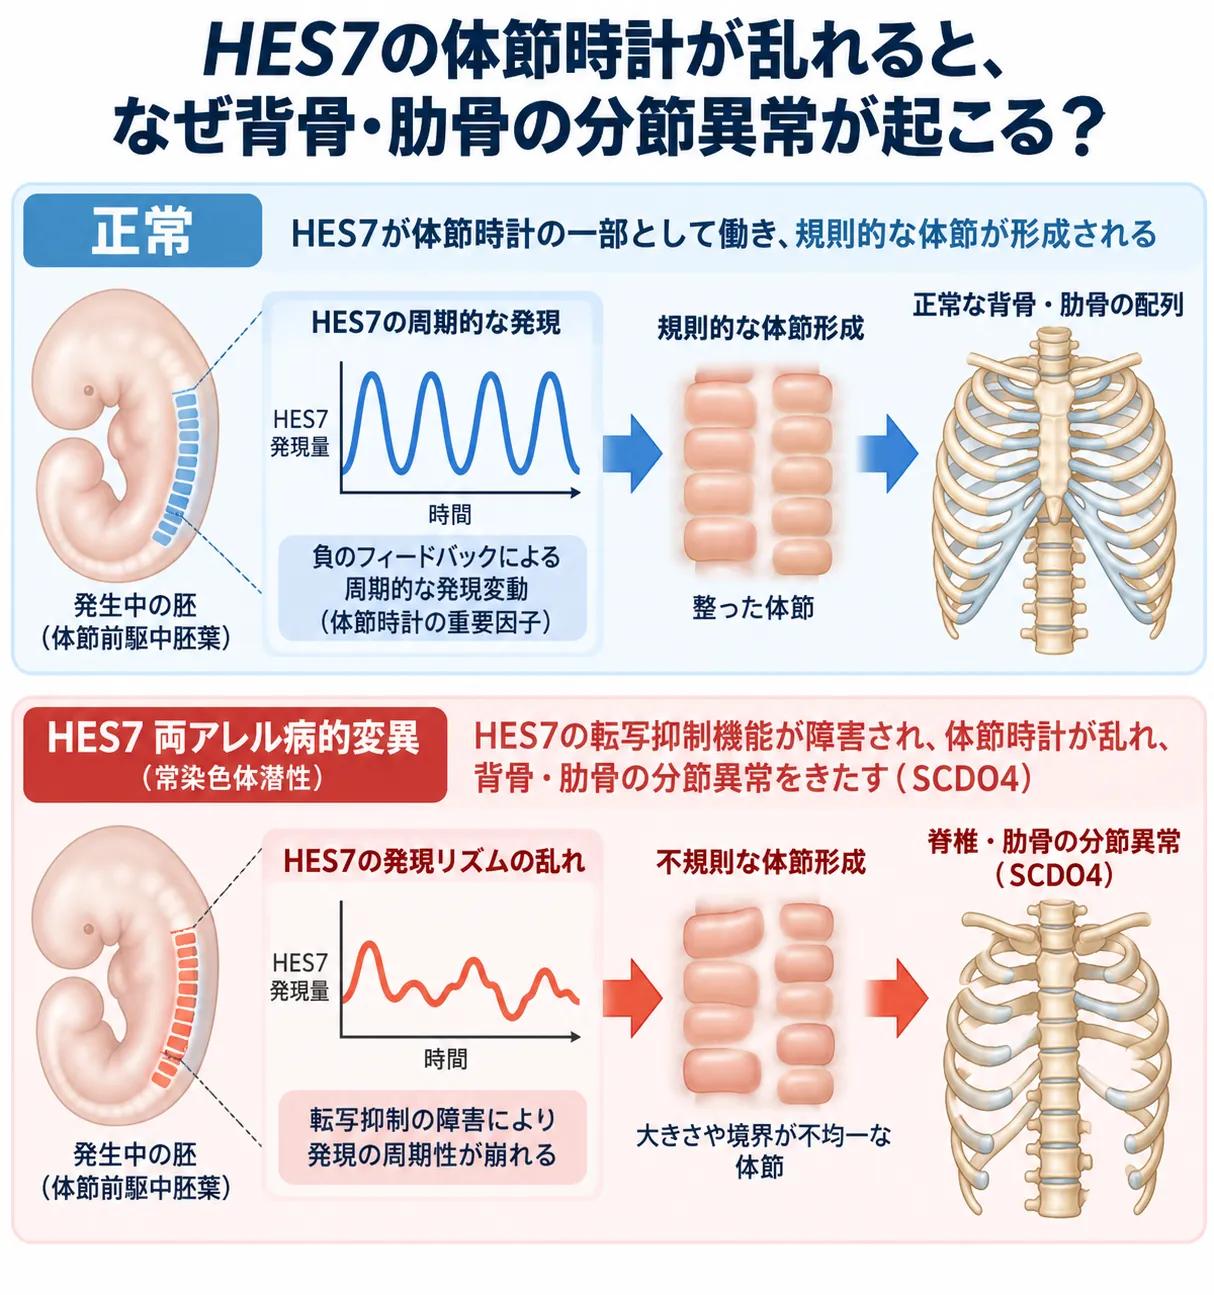
正常な発生では、前体節中胚葉でHES7が周期的に発現し、体節時計の一部として規則的な体節形成を支えます。HES7の両アレル病的変異では転写抑制機能が障害され、体節形成の周期性やパターンが乱れることで、脊椎・肋骨の分節異常を特徴とする脊椎肋骨異形成症4型(SCDO4)につながります。
HES/HEYファミリーで最もはっきりした遺伝性疾患の一つが、HES7による脊椎肋骨異形成症4型(SCDO4/OMIM 613686)です。2008年、Sparrowらは、血族結婚のある家系を自己接合性マッピングという手法で解析し、HES7のDNA結合領域にあるミスセンス変異を同定しました。この変異型HES7は、DNAへの結合や相手とのペア形成による転写抑制が正常にできなくなっており、HES7の体節時計の仕組みとヒトの背骨・肋骨の形成異常が、直接つながることが示されました[6]。これは単なる関連ではなく、家系解析・変異同定・機能解析・既存のマウスの表現型との整合という、強い因果の証拠がそろった例です。
💡 用語解説:ミスセンス変異と常染色体潜性
ミスセンス変異とは、タンパク質を構成するアミノ酸が1つ別のものに置き換わる変化です。SCDO4は常染色体潜性(劣性)で受け継がれます。これは、父由来・母由来の両方のHES7に変化がそろって初めて発症するという意味で、両親はそれぞれ変化を1つ持つ保因者であっても、多くは症状が出ません。血族結婚があると、同じ変化がそろいやすくなります。
脊椎肋骨異形成症は、DLL3・MESP2・LFNG・HES7・TBX6など、Notch経路や体節時計に関わる複数の遺伝子の変化で起こることが知られ、原因遺伝子ごとに型が分けられています。日本語ではJarcho-Levin症候群と重なる概念として語られることもあります。原因遺伝子を確定することは、脊椎肋骨異形成症の診断や、ご家族の遺伝形式を理解するうえで重要です。診断のための遺伝学的検査としては、脊椎肋骨異形成症のNGSパネルのように複数の原因遺伝子をまとめて調べる方法があります。
遺伝診療の観点からは、原因遺伝子を確定できると、ご家族が遺伝形式を理解する助けにもなります。SCDO4は常染色体潜性なので、両親がともに保因者の場合、次のお子さんに同じ状態が受け継がれる可能性が、きょうだいごとに一定の割合で生じます。ただし、実際にどの程度・どんな症状が出るかには家系差・個人差があり、同じ変異でも重さが一様ではないことが報告されています。こうした「原因は分かっても、経過や重さは一律には決まらない」という状況は、多くの遺伝性疾患に共通します。診断名がつくまでの時間、そしてついた後も、情報を整理する支えとして遺伝カウンセリングが役立ちます。
HEY1-NCOA2融合と間葉性軟骨肉腫
もう一つの重要な接点が、HEY1-NCOA2融合遺伝子です。2012年、Wangらは、まれながんである間葉性軟骨肉腫(かんようせいなんこつにくしゅ)を網羅的に解析し、HEY1とNCOA2という2つの遺伝子がつながった融合遺伝子を反復して検出しました。具体的にはHEY1の第4エクソンとNCOA2の第13エクソンがつながったもので、RT-PCRやFISHで確認され、この腫瘍を特徴づける診断上の目印になりうることが示されました[7]。
第4エクソンまで
第13エクソンから
融合タンパク質
診断マーカー
ここで重要なのは、この応用が「HEY1の発現が高い」という量の目印ではなく、特定のかたちの構造変化そのものを検出する点にあることです。HES/HEY研究のなかでも、臨床の分子病理にもっとも近い実用例といえます。なお、間葉性軟骨肉腫そのものは希少な腫瘍で、当院はその治療を行う施設ではありません。ここでは「HEY1という転写因子が、融合という形で腫瘍に関わる」という分子の話として紹介しています。
融合遺伝子が腫瘍を引き起こす仕組みは、正常なHEY1とNCOA2の働きの単純な足し算ではありません。HEY1-NCOA2融合タンパク質は、HEY1が本来結合する標的領域を含むプロモーターに結合し、正常なHEY1とは異なって標的遺伝子を転写活性化することが報告されています。つまり、本来は主に転写を抑えるHEY1のDNA結合特性が、NCOA2側との融合によって異なる転写プログラムへ結びつくと考えられます[12]。こうした構造変化そのものを標的にする診断・治療の研究は続いていますが、まれな腫瘍であることもあり、確立した分子標的治療はまだ限られています。
🩺 院長コラム【「反応するか」だけで遺伝子を判断しない】
遺伝子の変化を読み解くとき、「その遺伝子が古典的な意味で働いているか」だけで意味を決めてしまうのは危険です。HES/HEYファミリーは、抑えるタイミングや発現のリズムといった、一見わかりにくい性質にこそ機能が宿ることを教えてくれます。転写を抑えるだけの地味な因子に見えても、その変化が背骨の形成異常や腫瘍に結びつくのです。
原因がわからないまま検査を重ねる状況は、多くの希少・遺伝性疾患の診療に共通します。遺伝医学では、「同じ遺伝子でも変化の性質で意味が変わる」という考え方が重要です。HES/HEYは、その視点が発生生物学の基礎からも裏づけられることを示す、よい例です。
8. がん・免疫での文脈依存性 ─ 単純な標的にはならない
HES1は、血液の細胞づくりやがんとも関わります。マウスでHES1を条件的に働かなくすると、T細胞への分化が強く障害され、さらにNotchが引き起こすT細胞性急性リンパ性白血病(T-ALL)の発生・維持にも重要であることが示されました。ただし、他のNotch依存の血液系の運命では必ずしも必須ではなく、著者ら自身がHES1を「状況によって役割が変わる(文脈依存的な)伝達役」と位置づけています[10]。
この文脈依存性は、治療標的として考えるときの大きな注意点です。APC変異による腸管腫瘍などのマウスモデルでは、HES1を失うと腫瘍細胞の増殖が低下し分化が促される一方、正常陰窩の恒常性への影響はHESファミリーの冗長性により比較的小さい、という結果が報告されています[13]。これは「腫瘍だけがHES1に頼っている」可能性を示しますが、ヒトの患者さんで安全に効くことが確立したという意味ではありません。実際、Notch全体を薬で止める方法は、正常な腸のNotchまで抑えてしまう消化管の副作用が課題になっています。
また、HES3については、幹細胞の自己複製に関わる非古典的なSTAT3経路(STATファミリーの一員)との関係が研究されています。ただし、この軸はHES1と古典的Notchほど多くの独立した研究で確立しているわけではなく、種や組織を越えた一般性はなお検証段階とみるのが妥当です。これらの知見はRNA-seqやゲノム解析を組み合わせて調べられており、HES/HEYを「一律に抑えればがんに効く」と単純化できないことを、くり返し示しています。
「抑える遺伝子を、さらに薬で抑える」という発想が単純にうまくいかないのは、正常な組織もHES/HEYに頼っているからです。たとえば腸の上皮では、Notch-HES1系が幹細胞と分泌細胞のバランスを保っており、これを止めすぎると腸の働きが乱れます。がん細胞だけがHES1に依存し、正常な細胞は他のHES遺伝子で補える、という「窓」が存在するかどうかが、治療として成り立つかの分かれ目になります。HES/HEYを狙う薬の開発では、この正常組織への影響と、腫瘍側の依存度を、どう見極めるかが共通の課題になっています。
こうした難しさの背景には、HES/HEYが「細胞をどれだけ増やすか」「いつ分化させるか」という、増殖と分化のバランスそのものに関わっていることがあります。抑える力が強すぎれば分化が止まって未熟な細胞が増え、弱すぎれば早く分化して組織が枯れてしまう——この綱引きの中心にいるからこそ、HES/HEYはがんでも発生でも顔を出します。だからこそ、単純に「増やす/減らす」ではなく、どの細胞の、どの場面で、どの向きに傾いているのかを見極めることが欠かせません。
9. 種を越えた保存と、治療標的としての現在地
HES/HEYの起源は、ショウジョウバエのHairy/Enhancer of split〔E(spl)〕という古いbHLHリプレッサーにさかのぼります。脊椎動物では、この一族が進化の途中で遺伝子の重複・保持・喪失を繰り返してきました。そのため、ヒトの全メンバーをショウジョウバエの1遺伝子に単純に1対1で対応させることはできません。比較ゲノム解析では、HES/HEYファミリーがエクソン・イントロン構造の保存と分化を経て多様化してきたことが示されています[11]。とくにHES5に相当する遺伝子群はカエルで著しく増えている一方、哺乳類では縮小しており、HES4のようにマウスに明確な相同遺伝子がないメンバーもあります。だからこそ、マウスの結果だけをヒトへ当てはめること、あるいは1つのメンバーだけを見てファミリー全体の機能とみなすことは避けるべきです。
研究の方法も、種によって使い分けられています。ヒトでは疾患の変異や腫瘍の融合遺伝子、患者由来の細胞やiPS細胞が強みになり、マウスでは条件付きノックアウトや複数遺伝子の同時欠損、発生の時空間解析ができます。ゼブラフィッシュではCRISPR-Cas9による素早い遺伝子破壊と生きたままの観察が可能です。これらを組み合わせることで、HES/HEYの働きが多面的に明らかにされてきました。
治療標的としての成熟度は、メンバーごとに大きく異なります。現時点でもっとも実用的なのは、HES7の遺伝学的診断とHEY1-NCOA2融合の分子病理診断です。一方で、HES1などを直接抑える薬は、細胞レベルでの概念実証は報告されているものの、臨床の治療として確立した段階にはありません。短い周期の振動、仲間どうしの補い合い(冗長性)、正常な幹・前駆細胞の維持への影響を考えると、Notch全体を一律に止めるより、特定のHES/HEY・特定の組織・特定の標的を選んで操作する戦略のほうが理にかなうと考えられます。ただし、これはあくまで現在の実験結果からの見通しであり、確立した治療法ではありません。
HES7が体節時計として正確に働くには、つくられてから素早く分解されることが欠かせません。分解が遅れて長くとどまると、増減のリズムが平坦になり、時計そのものが止まってしまうためです。基礎研究で分かった「速い分解が正しいリズムを生む」という原理は、HES7の機能が損なわれると背骨や肋骨の数・形・左右のそろい方に異常が生じる、というヒトの病態の理解に直接つながっています[5]。分子の性質と患者さんの症状が、これほど地続きに結びつく例は多くありません。
今後は、1細胞ごとの解析(シングルセル解析)や、生きた細胞のなかでHES/HEYの振動をリアルタイムに観察する技術が進むことで、「どの細胞が、いつ、どのメンバーを、どんなリズムで使っているか」がより精密に描けるようになると期待されます。ファミリー全体をひとくくりにするのではなく、メンバー・組織・時間という3つの軸で使い分けを捉えること——それが、HES/HEYを正しく理解し、いずれ診断や治療に生かすための鍵になります。
10. よくある誤解
誤解①「HESはただのNotchのオフスイッチ」
HES/HEYは単純なオフスイッチではなく、前駆細胞を使い果たさないよう分化を先延ばしにする「時間制御装置」です。抑えることが、結果として多様な細胞を正しい順で生み出すことにつながります。
誤解②「同じファミリーだから働きも同じ」
HES6のように、同じファミリー・同じWRPWモチーフを持ちながら、HES1に逆らって分化を促すメンバーもあります。名前や構造の近さだけで働きを決めつけられません。
誤解③「発現量だけを見ればわかる」
HES1は、ずっと高いままか、リズミカルに振動しているかで細胞の状態が変わります。量ではなく「動き方」に情報が隠れていることがあります。
誤解④「抑える遺伝子だから抑えれば薬になる」
HES1などは正常な幹・前駆細胞の維持にも必要で、仲間どうしの補い合いもあります。一律に抑えるより、組織や標的を選んだ精密な操作が必要と考えられています。
まとめ ─ 「抑える」ことで体をつくる一族
HES/HEYファミリーは、Notchに誘導される単なる転写リプレッサー群という枠を超えた、時間と細胞運命の制御システムです。共通のbHLH-O構造を持ちながら、HES1/HES5は神経前駆細胞で分化を遅らせ[1]、HES6はその抑制を解除し[3]、HES7は発現の周期を体節形成の時計に変え[5]、HEY1/HEY2は心血管系のNotch出力を担います[9]。同じファミリーの中に、正反対の働きや、種を越えた違いが共存しているのが、この一族の面白さです。ひとつの原理——Notchが「抑える因子」を呼び出す——から、これほど多様な体づくりと病気が生まれるという事実は、遺伝子の働きが置かれた「文脈」によっていかに姿を変えるかを、あざやかに示しています。
臨床的には、HES7とHEY1-NCOA2融合が、すでに疾患の仕組みと診断に強い証拠を持っています[6][7]。遺伝子の機能を「触媒するか」「発現量が多いか」といった一面だけで判断せず、相手選び・タイミング・振動といった多層的な調節まで見て初めて、その意味が見えてくる——HES/HEYファミリーは、遺伝子を読み解くうえでのそうした姿勢を、私たちにあらためて教えてくれます。
よくある質問(FAQ)
Q1. HES/HEYファミリーとは何ですか?
HES/HEYファミリーとは、Notchシグナルによってつくられ、他の遺伝子の働きを抑える向きに調節するbHLH型の転写因子(転写リプレッサー)のグループです。ヒトではHES1〜7とHEY1・HEY2・HEYLが知られています。細胞の運命決定、幹・前駆細胞の維持、分化のタイミング、背骨をつくる体節形成、心臓・血管の発生などを制御します。名前の似たHESX1は別系統の転写因子で、このファミリーには含みません。
Q2. HESとHEYは何が違うのですか?
どちらもbHLHとOrangeという共通の構造を持ちますが、C末端の短い目印(モチーフ)が異なります。HESは典型的にWRPW、HEY1・HEY2はYRPWを含む保存配列を持ち、HEYLではこのC末端モチーフが大きく分岐しています。おおまかには、HES群は神経系や体節形成でよく研究され、HEY群は心臓・血管の発生で重要な役割を果たします。ただし例外も多く、この区別は絶対的なものではありません。
Q3. HES7の変化はどんな病気と関係しますか?
HES7の両方の遺伝子(両アレル)に病的な変化があると、背骨や肋骨の形の異常である脊椎肋骨異形成症4型(SCDO4)が起こることが知られています。2008年に、DNA結合領域のミスセンス変異が同定され、HES7がつくる体節時計の破綻とヒトの背骨の形成異常が直接つながることが示されました。常染色体潜性(劣性)で受け継がれ、血族結婚のある家系で報告されています。
Q4. HEY1-NCOA2融合とは何ですか?
HEY1という遺伝子が、NCOA2という別の遺伝子とつながってできた融合遺伝子です。2012年に、まれながんである間葉性軟骨肉腫でくり返し検出されることが報告され、この腫瘍を特徴づける診断上の目印になりうることが示されました。「HEY1の量が多い」ではなく、特定のかたちの構造変化そのものを検出する点が、分子病理診断として重要です。
Q5. HES1の「振動」とはどういう意味ですか?
HES1は自分自身のスイッチを抑える性質(自己抑制)と短い寿命を持つため、量がリズミカルに増えたり減ったりします。培養細胞では約2時間の周期で振動することが示されました。同じ「HES1が陽性」でも、ずっと高いままか、振動しているかで細胞の状態が変わります。「量」ではなく「動き方」に細胞運命の情報が隠れている、というのがHES研究の大きな発見です。
🧬 遺伝子や遺伝性疾患の理解のために
HES/HEYファミリーは、細胞のしくみを理解するための基礎的な用語であり、それ自体を検査する対象ではありません。ただし、HES7が関わる脊椎肋骨異形成症のように、遺伝性疾患の理解や遺伝形式の把握とはつながっています。
遺伝子検査や診断を検討していて、結果の意味やご家族への影響について整理したい方は、臨床遺伝専門医による遺伝カウンセリング・遺伝診療をご利用いただけます(遺伝カウンセリングとは)。検査で何が分かり何が分からないのか、中立の立場で判断材料を整理します。
参考文献
- [1] Hes1 and Hes5 as Notch effectors in mammalian neuronal differentiation. EMBO J. 1999;18(8):2196-2207. [PubMed 10205173]
- [2] Oscillatory expression of the bHLH factor Hes1 regulated by a negative feedback loop. Science. 2002;298(5594):840-843. [PubMed 12399594]
- [3] The bHLH gene Hes6, an inhibitor of Hes1, promotes neuronal differentiation. Development. 2000;127(13):2933-2943. [PubMed 10851137]
- [4] Hes6 promotes cortical neurogenesis and inhibits Hes1 transcription repression activity by multiple mechanisms. Mol Cell Biol. 2003;23(19):6922-6935. [PubMed 12972610]
- [5] Dynamic expression and essential functions of Hes7 in somite segmentation. Genes Dev. 2001;15(20):2642-2647. [PubMed 11641270]
- [6] Mutation of Hairy-and-Enhancer-of-Split-7 in humans causes spondylocostal dysostosis. Hum Mol Genet. 2008;17(23):3761-3766. [PubMed 18775957]
- [7] Identification of a novel, recurrent HEY1-NCOA2 fusion in mesenchymal chondrosarcoma based on a genome-wide screen of exon-level expression data. Genes Chromosomes Cancer. 2012;51(2):127-139. [PubMed 22034177]
- [8] gridlock, an HLH gene required for assembly of the aorta in zebrafish. Science. 2000;287(5459):1820-1824. [PubMed 10710309]
- [9] The Notch target genes Hey1 and Hey2 are required for embryonic vascular development. Genes Dev. 2004;18(8):901-911. [PubMed 15107403]
- [10] Hes1 is a critical but context-dependent mediator of canonical Notch signaling in lymphocyte development and transformation. Immunity. 2010;33(5):671-684. [PubMed 21093323]
- [11] Comparative and evolutionary analysis of the HES/HEY gene family reveal exon/intron loss and teleost specific duplication events. PLoS One. 2012;7(7):e40649. [PubMed 22808219]
- [12] Qi W, et al. Genomic profiling identifies genes and pathways dysregulated by HEY1-NCOA2 fusion and shines a light on mesenchymal chondrosarcoma tumorigenesis. J Pathol. 2022;257(5):579-592. doi:10.1002/path.5899. [PubMed 35342947]
- [13] Ueo T, et al. The role of Hes genes in intestinal development, homeostasis and tumor formation. Development. 2012;139(6):1071-1082. doi:10.1242/dev.069070. [PubMed 22318232]






