

目次

「筋肉がつくられる」と聞くと、ひとつの細胞が大きくなっていくようなイメージを持つ方が多いかもしれません。ところが実際の骨格筋(こっかくきん)は、たくさんの細胞が順番に運命を決め、増え、寄り集まって融合(ゆうごう)し、ひとつの長い筋線維になっていく、という手の込んだ道のりを経てつくられます。この一連の過程をマイオジェネシス(myogenesis/骨格筋形成)と呼びます。そして、その途中に登場するのが「筋芽細胞(きんがさいぼう)」と「筋管(きんかん)」という、名前は似ていても中身がはっきり違う2つの細胞です。この記事では、骨格筋がどのように生まれ、どの遺伝子が指揮をとり、それが筋ジストロフィーなどの遺伝性の病気や再生医療とどうつながるのかを、遺伝医学の視点から解説します。
Q. マイオジェネシスとは何ですか?まず結論だけ知りたいです
A. マイオジェネシス(骨格筋形成)とは、筋肉のもとになる細胞が「筋肉になる」と運命づけられ、増え、終末分化して、たがいに融合しながら多核の筋線維へと成熟していく一連の過程のことです。途中で登場する筋芽細胞は増える力をもった単核の細胞、筋管は複数の筋細胞が融合してできた多核の細胞で、両者ははっきり別の状態です。この過程はPAX3/PAX7、MYF5/MYOD、MYOG(ミオゲニン)といった遺伝子群が段階的に指揮し、細胞どうしをくっつける融合因子MYMK・MYMXが最後の「合体」を担います。同じ仕組みは、大人になってからのケガの修復(筋再生)でもくり返し使われます。
- ➤全体像 → 特定化 → コミット → 増殖 → 終末分化 → 融合 → 成熟、という段階を踏む
- ➤筋芽細胞と筋管の違い → 筋芽細胞は増える単核細胞、筋管は融合してできた多核細胞
- ➤指揮者となる遺伝子 → MYF5・MYODが「筋になるか」を、MYOGが「終末分化できるか」を強く決める
- ➤合体の分子 → MYMK(Myomaker)とMYMX(Myomixer)が細胞融合そのものを担い、変異は先天性の筋疾患につながる
- ➤大人の筋肉との関係 → PAX7陽性のサテライト細胞(筋幹細胞)が同じ仕組みで再生を担う
🧬 マイオジェネシスの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | マイオジェネシス(myogenesis)/筋形成。骨格筋がつくられる過程を指す |
| 定義 | 筋系譜(きんけいふ)が確立され、単核の細胞が増殖・終末分化・融合・成熟を経て多核の筋線維をつくる一連の過程 |
| 主な段階 | 特定化 → コミット → 増殖 → 終末分化 → 融合 → 成熟 |
| 中心となる遺伝子 | PAX3/PAX7(上流)、MYF5/MYOD(筋系譜の決定)、MYOG/MRF4(終末分化)、MYMK/MYMX(融合)[1] |
| 大人での担い手 | 筋線維の基底膜下にあるPAX7陽性のサテライト細胞(筋幹細胞・MuSC) |
| 医療との関わり | 筋ジストロフィーや先天性ミオパチーなどの理解、iPS細胞を使った再生医療研究の基盤になる |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. まず用語の整理 ─ 筋芽細胞と筋管はどう違うのか
マイオジェネシスを理解するうえで、最初につまずきやすいのが用語です。「筋芽細胞」「筋管」「筋線維」は似た言葉ですが、細胞の状態としてははっきり区別されます。ここを押さえておくと、あとの話がぐっと分かりやすくなります。
筋芽細胞(myoblast/きんがさいぼう)は、「筋肉になる」と決まった(コミットした)、まだ増える力をもつ単核(核が1つ)の細胞です。MYF5やMYODといった、筋肉づくりの指揮者となるタンパク質を発現しています。いっぽう筋管(myotube/きんかん)は、終末分化した筋細胞どうしが融合してできた、核がたくさんある(多核)細長い細胞です。ミオシン重鎖(MyHC)という、筋肉が収縮するための装置のタンパク質を強く発現します[1]。
💡 用語解説:単核と多核、そして「シンシチウム」
ふつうの細胞は核を1つだけ持っています(単核)。ところが骨格筋の筋線維は、たくさんの細胞が融合してできるため、1本の細胞の中に核が何十個も並んでいます(多核)。このように、複数の細胞が融合して1つの大きな細胞になったものを「シンシチウム(合胞体・ごうほうたい)」と呼びます。筋管は、この多核シンシチウムの代表例です。
ここで注意したいのは、実験室の培養皿でつくられる「筋管」と、体の中で完成した「筋線維(myofiber)」は同じではない、という点です。培養皿の筋管は多核にはなっていても、神経とのつながり(神経支配)や血管、腱との結合、成熟したサルコメア(筋肉の収縮単位)、大人の筋肉らしい代謝などをまだ備えていないことが多く、体内の成熟した筋線維と同一視することはできません[1]。研究の結果を読むときは、「どの段階の筋細胞の話なのか」を意識することが大切になります。
さらに広い視点でいうと、骨格筋は「筋線維」だけでできているわけではありません。筋線維に加えて、それを取り巻くコラーゲンなどの結合組織、サテライト細胞、線維脂肪前駆細胞(FAP)、血管、神経、免疫細胞までを含んだ「組織」です。マイオジェネシスは、このうち筋系譜の細胞が筋線維をつくる部分を指します。
2. 骨格筋ができるまでの流れ ─ 6つの段階
発生期の骨格筋(ここではマウスの体幹・四肢の筋肉を基準にします)は、大まかに次のような段階を踏んでつくられます。まずは全体の流れを図で見てみましょう。
出発点になるのは、胚の背骨に沿ってできる傍軸中胚葉(ぼうじくちゅうはいよう)という組織です。ここから体節(たいせつ)・皮筋板(ひきんばん)を経て、PAX3やPAX7という遺伝子を発現する筋前駆細胞が生まれます[2][3]。この前駆細胞が、次の段階で「筋肉になる」と決まり(コミットし)、筋芽細胞として増え、やがて増殖をやめて終末分化し、たがいに融合して多核の筋管となり、最後に神経や血管とつながって成熟した筋線維になります。
💡 用語解説:特定化・コミット・終末分化
「特定化(specification)」は、まだ後戻りできる段階で「筋肉の方向へ向かう」と決まること。「コミット(determination/決定)」は、後戻りしにくいかたちで「筋肉になる」と定まること。「終末分化(differentiation)」は、増えるのをやめて、収縮するタンパク質をつくる成熟した筋細胞へと最終的に変わることを指します。この3つは連続していますが、担う遺伝子が少しずつ違います。
発生期の筋づくりには、大きく2つの波があることが知られています。マウスの四肢では、初期に起こる一次(primary)マイオジェネシスと、それに続く二次(secondary)マイオジェネシスに分けて解析されることが多く、およその目安として胚齢14.5日ごろが一次の終盤、18.5日ごろが二次の終盤とされます。ただしこれは筋肉の種類や評価指標で動く、絶対的な境界ではありません[1]。
近年は、この「一次から二次へ順番に進む」という単純なモデルにも見直しが入っています。2025年に報告された鳥類の四肢筋の細胞系譜追跡(lineage tracing)研究では、一次の筋管へ向かう前駆細胞と、二次の筋管およびサテライト細胞へ向かう前駆細胞が、発生のごく初期から共存していることが示されました[4]。主な実験系が鳥類であるため、哺乳類全体にそのまま当てはめるには追加の検証が必要ですが、数十年つづいてきた発生モデルでさえ新しい手法で更新されうる、という好例です。なお、頭や首の筋肉の一部は体節ではなく別の中胚葉に由来し、PAX3中心のモデルとは違う遺伝子の制御を受けるため、すべての骨格筋を同じ枠組みで説明できるわけではありません[2]。
🩺 院長コラム【「一本道」に見える発生も、実は枝分かれしている】
教科書の図は、どうしても「AからBへ、BからCへ」という一本の矢印で描かれます。分かりやすさのためには必要なことですが、実際の細胞の運命は、もっと確率的で、枝分かれや後戻りを含んでいます。マイオジェネシスの前駆細胞も、きれいに順番どおり進むというよりは、早い段階からいくつかの行き先に分かれて共存していることが、最近の研究で見えてきました。
臨床遺伝専門医として遺伝子の働きを読むときも、この「一本道ではない」という感覚は役に立ちます。ある遺伝子が「この段階で働く」と単純に決めつけず、時期や場所、周囲の細胞との関係の中で役割が変わりうる、と考える。発生の複雑さを知ることは、遺伝子と病気の関係を過度に単純化しないための、良い訓練にもなります。
3. 指揮者となる遺伝子 ─ MRFネットワーク
マイオジェネシスの中心にいるのが、筋制御因子(MRF:myogenic regulatory factors)と呼ばれる転写因子のグループです。具体的には、MYF5、MYOD、MYOG(ミオゲニン)、MRF4という4つが知られています。その上流にPAX3/PAX7が位置します。「PAX → MYF5/MYOD → MYOG → MRF4」という一方向の階層は理解の入り口として便利ですが、実際には重複・フィードバック・時期特異性を含んだネットワークとして捉えるほうが正確です。
MYODの歴史的な決定打は、1987年の研究でした。たった1つのcDNA(遺伝子のコピー)を線維芽細胞に導入するだけで、その細胞を筋芽細胞のような性質へ変えられることが示されたのです[5]。ここから「筋肉への運命を1つの遺伝子が切り替えうる」という考え方が広まりました。
その後の遺伝学では、MYODとMYF5の機能的な重複が明らかになりました。MYODとMYF5は、片方だけを欠いても、もう片方が働きを肩代わり(相互補償)するため、骨格筋はほぼ正常につくられます。ところが両方を同時に欠くと、骨格筋がほとんど形成されないのです[6]。この結果は、「筋肉になるかどうか」を決める段階で、この2つが機能的に重なり合っていることを強く示しています。
これに対してMYOGの欠損は、まったく違う表現型を示します。MYOGを欠いたマウスでは、筋系譜の細胞そのものは存在するのに、成熟した筋肉の形成が著しく損なわれ、生まれた直後に亡くなってしまいます[7]。つまりMYOGは、「筋肉になるか」よりも「筋肉として終末分化できるか」を強く決めているのです。この表現型の違いこそ、「決定(determination)」と「分化(differentiation)」を分けて考える古典的モデルの、強い根拠になっています。
🧬 主な筋制御因子(MRF)とPAX因子
| 因子 | 主な役割 | 解釈上の注意 |
|---|---|---|
| PAX3 | 体節・四肢筋の前駆細胞と、その移動を上流で制御する | 頭の筋肉の一部ではPAX3を主要な上流因子としない |
| PAX7 | 発生後期の前駆細胞と、大人のサテライト細胞の維持・自己複製に必須 | 「PAX7陽性=常に休止中」ではない。活性化した細胞もPAX7を保つ |
| MYF5 | 早い段階での筋系譜へのコミット | 休止中のサテライト細胞ではmRNAがあってもタンパク質になりにくい場合がある |
| MYOD | 活性化・コミットした筋芽細胞、分化の開始 | 増殖期にも分化初期にも存在し、「MYOD陽性=終末分化」ではない |
| MYOG | 細胞周期からの離脱、終末分化、融合前の段階 | MYOGの発現だけでは、実際の膜融合の成立までは保証しない |
※「陽性/陰性」は普遍的な線引きではなく、種・培養法・観察時点で変動します。
4. シグナル伝達 ─ 「促進」か「抑制」かは一言で決まらない
マイオジェネシスは、細胞の外から届くさまざまな信号(シグナル)によって、細かく調整されています。ここで大切なのは、同じ信号でも「筋づくりを進める/止める」を一言で言い切れないことです。効果は、細胞の状態や時期、量や暴露の長さによって、ときに逆向きになります。
Notch(ノッチ)シグナルは、休止中のサテライト細胞を静かなまま保つ働きをします。「幹細胞を増やす」というより、不適切な分化を防いで幹細胞プールを守る経路と理解するほうが実態に合っています。実際、Notchの中心的な因子をサテライト細胞で欠くと、多くの細胞が増えないまま直接分化して既存の筋線維に融合してしまい、結果として幹細胞が枯渇します。増殖・分化・自己複製が単純な一本の順番ではないことを、よく示す例です。
Wnt(ウィント)シグナルは、さらに慎重な扱いが必要です。発生期にはMYF5の調節に関わり、再生時にはリガンド(信号の分子)の種類によって増殖への作用が異なります。いっぽう、老化した環境で慢性的に高まる特定のWnt信号は、サテライト細胞が線維化の方向へ運命を偏らせることと関連します。「Wnt=分化促進」と単純化できない代表例で、治療への応用を議論するときは、時間の窓と細胞の種類を必ず指定する必要があります。
FGF(線維芽細胞増殖因子)は強力な増殖刺激で、筋芽細胞を増やし、分化を遅らせます。ただし、老化した筋線維から出るFGF2は、休止中のサテライト細胞を不適切に目覚めさせ、長い目では幹細胞の枯渇につながることがあります。急性の増殖促進と、慢性的な幹細胞の消耗は、分けて考える必要があります。
🧬 主なシグナルと、その方向性
| シグナル | 大まかな作用 | 注意点 |
|---|---|---|
| Notch | 休止中のサテライト細胞を維持する | 再生では分化のために活性の低下も必要 |
| Wnt/β-カテニン | 発生・再生で増殖や分化を調整する | リガンド・時期・年齢で作用が変わる |
| FGF/FGF2 | 筋芽細胞の増殖を維持し、分化を遅らせる | 慢性的な暴露は幹細胞の枯渇につながりうる |
| TGF-β/ミオスタチン | 多くの系で分化・融合を抑え、筋量に抑制的 | 免疫やECMへの多面的作用があり単純な「有害因子」ではない |
| IGF-I/PI3K–Akt–mTOR | 分化・融合・タンパク質合成・筋管の肥大に促進的 | 全身作用と局所作用の分離は実験条件しだい |
※効果の向きは細胞状態と時間に強く依存します。培養での「促進/抑制」を、そのまま生体に当てはめないことが重要です。
ミオスタチン(GDF8)は、筋量を強く抑える「ブレーキ役」として有名です。遺伝子を欠いたマウスでは、個々の筋肉の重さが野生型のおよそ2〜3倍になることが報告されています。逆にIGF-Iは、PI3K–Akt–mTOR経路などを介して、筋管を大きくする(肥大させる)方向に働きます。ただし全身で常に欠損させた遺伝子改変マウスの表現型と、大人になってから薬で一時的に阻害した場合の効果量は、同じではありません。ここでも「いつ・どこで・どれくらい」が効果を左右します。
5. 細胞融合 ─ 「合体」を担う専用の分子
多核の筋管ができるためには、筋細胞どうしが膜を溶かし合ってひとつになる「融合」が欠かせません。かつては、融合は終末分化の「おまけ(結果)」のように思われていましたが、いまでは融合そのものに専用の分子機構があることが分かっています。その主役が、MYMK(Myomaker/マイオメーカー)とMYMX(Myomixer/マイオミキサー。別名Myomerger・Minion)です。
MYMKを欠いたマウスでは、多核の筋線維がほとんどつくられません[8]。いっぽうMYMXは、ゲノム全体を対象にしたCRISPRスクリーニングという手法で発見された、わずか84アミノ酸の小さなペプチド(マイクロペプチド)です[9]。膜融合の解析からは、MYMKが膜の外側の脂質二重層どうしが連続するヘミフュージョン(hemifusion)の成立に、MYMXが融合孔(fusion pore)の形成に、それぞれ強く関わるという「段階的モデル」が支持されています[14]。つまり、実験では「筋の分化」と「筋細胞の融合」を別々に測るべきだ、ということになります。
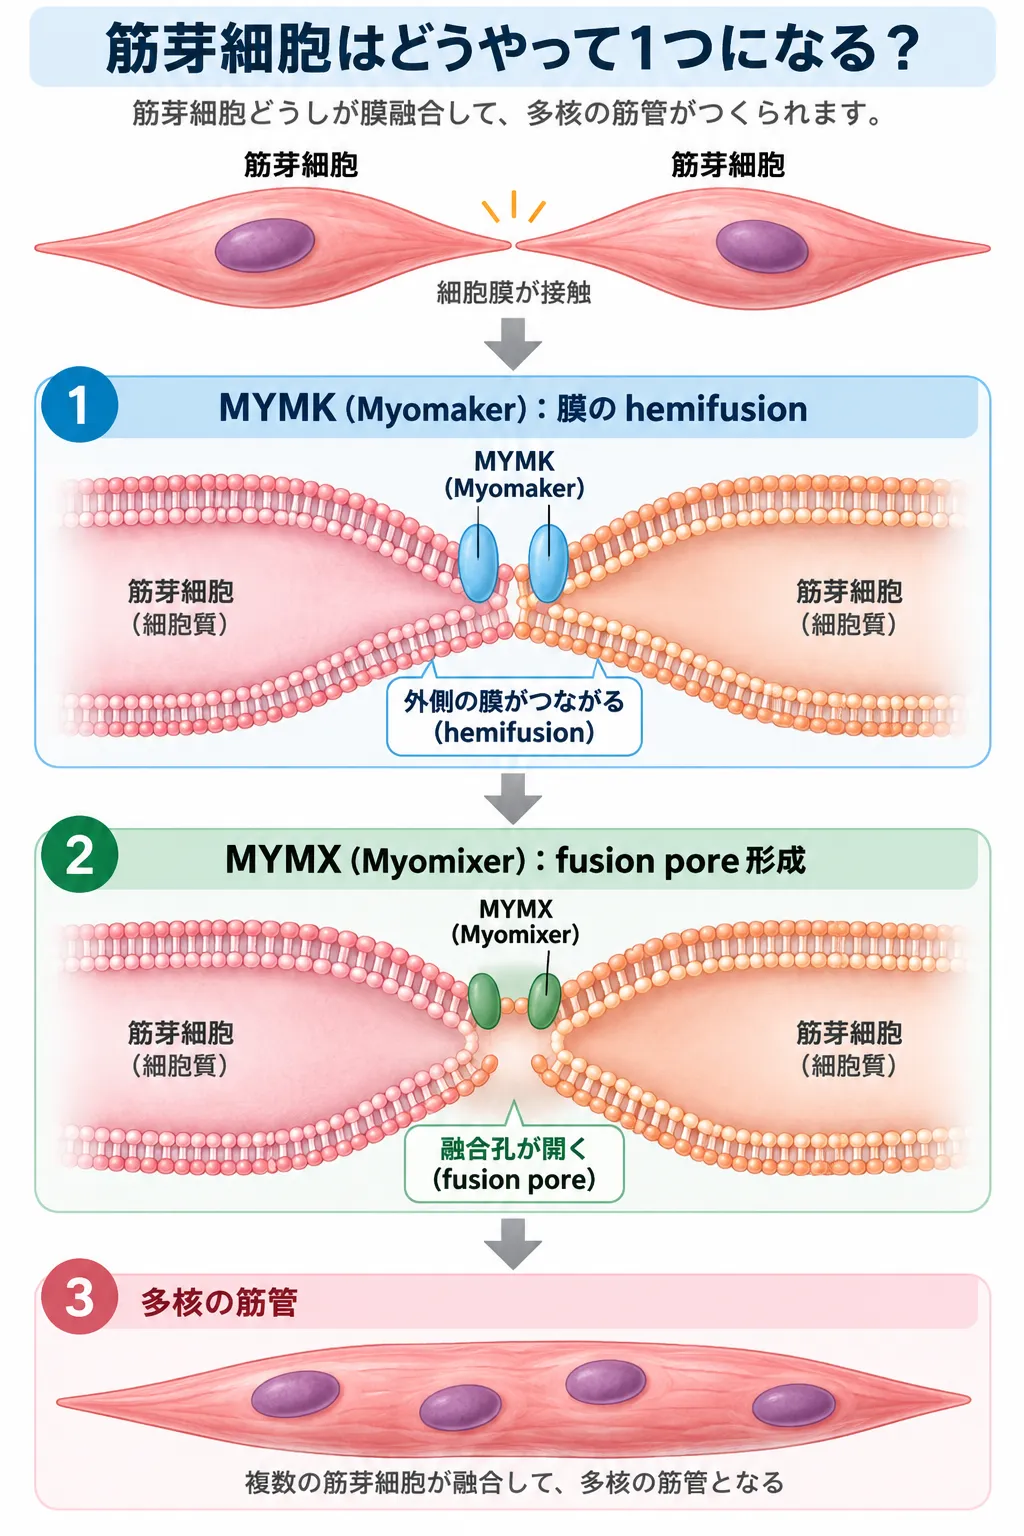
筋芽細胞の融合では、MYMK(Myomaker)が膜融合のhemifusion段階を促進し、MYMX(Myomixer)がfusion poreの形成・拡大に関与します。複数の単核筋細胞がこの過程を経て融合することで、多核の筋管が形成されます。
この分子機構には、ヒトの病気との直接的なつながりがあります。MYMKの働きを弱める変異は、Carey–Fineman–Ziter症候群(ケアリー・ファインマン・ザイター症候群)という先天性の筋疾患の原因になります[10]。またMYMXの機能が損なわれる変異も、これに似た先天性のミオパチーを引き起こすことが報告されています。患者さん由来のiPS細胞からつくった筋細胞で融合の障害が再現され、ゲノム編集(base editing)で機能を回復させられることも実験的に示されています[15]。
6. サテライト細胞とニッチ ─ 大人の筋肉を再生する仕組み
大人になっても、筋肉はケガをすれば修復されます。その主役が、サテライト細胞(筋衛星細胞・筋幹細胞・MuSC)です。サテライト細胞は、筋線維の細胞膜(sarcolemma)と、それを包む基底膜のあいだに位置する、PAX7を発現する細胞です。損傷が起きると活性化し、増え、一部は分化して新しい筋線維をつくり、一部はふたたび休止状態に戻って将来のためにプールを保ちます。この「使ったら補充する」仕組みがあるおかげで、筋肉はくり返し再生できます。
💡 用語解説:ニッチ(幹細胞のすみか)
幹細胞は、ただ単独で存在しているのではなく、周囲の環境から絶えず信号を受け取りながら、その性質を保っています。この「幹細胞をとりまく特別な微小環境」を、ニッチ(niche)と呼びます。サテライト細胞のニッチには、ラミニンやコラーゲンといった細胞外基質、成長因子、血管や免疫細胞などが含まれ、これらがまとまって幹細胞の運命を左右します。
このニッチが、いかに大切かを示す有名な実験があります。研究者たちは、生きた筋肉の硬さに近い「やわらかいゲル(約12キロパスカル)」の上でサテライト細胞を培養すると、非常に硬いふつうの培養皿(プラスチック)の上で培養した場合よりも、幹細胞らしさや移植したときの再生能力を保ちやすいことを示しました。これは、2次元培養で測った遺伝子発現の違いの一部が、薬でも遺伝子でもなく「培養する土台の硬さ」そのものによって生じている可能性を、はっきり示した重要な結果です[16]。
ニッチは年齢によっても変わります。老化した筋線維から出るFGF2の上昇は、一部のサテライト細胞を不適切に休止状態から目覚めさせ、消耗させてしまいます[11]。「増殖刺激が強いほど再生に良い」わけではない、という点は、加齢にともなうサルコペニア(筋肉の減少)を考えるうえでも示唆に富みます。若い時期には有効だった仕組みが、老化した環境ではむしろ幹細胞の枯渇を早めることがあるのです。
7. 研究モデルとマーカー ─ 何をどう測るか
マイオジェネシスの研究では、目的に応じてさまざまな細胞モデルが使い分けられます。よく使われるのがC2C12というマウス由来の細胞株で、扱いやすく、遺伝子操作もしやすく、多核の筋管を再現しやすいという長所があります。ただしC2C12は「筋分化する便利な細胞株」であって、大人のサテライト細胞そのものではありません。培養をこみ入らせすぎると分化能が変わることが、細胞バンク自身から明記されています。
大人の組織に近いのは一次サテライト細胞ですが、こちらは単離したあと培養で増やすと、再生能力が急速に落ちてしまうという難点があります。実際、直接単離したサテライト細胞は移植後に筋線維とサテライト細胞プールの両方をつくるのに、培養で増やすとその能力が下がることが示されています[12]。「治療に必要な量まで細胞を増やす操作そのものが、細胞の治療能力を損なう」という、再生医療の悩ましい矛盾がここにあります。
ヒトの発生や遺伝病、細胞治療の橋渡しとして期待されるのが、iPS細胞(人工多能性幹細胞)から筋細胞をつくる方法です。無制限に供給でき、同じ遺伝的背景で変異だけを比べる(isogenic)実験や、患者さんの変異を再現したモデルづくりに向いています。近年は、神経細胞や血管の細胞と一緒に育てる3次元の組織(オルガノイド)も登場し、成熟度の改善が進んでいます。いっぽうで、成熟度、細胞集団の純度、長期の生着、安全性、全身の筋肉への送達といった課題は依然として大きく残っています。
💡 用語解説:マーカーは「時計」ではなく「状態のしるし」
PAX7、MYOD、MYOG、MyHCといったタンパク質は、細胞がどの段階にあるかを知る手がかり(マーカー)になります。ただし、これらを一本の時系列(時計)とみなすのは危険です。たとえばPAX7は最も有用なサテライト細胞のマーカーですが、「PAX7陽性=休止中」とは限りません。活性化した直後はPAX7とMYODを同時に発現し、多くはPAX7を下げて分化しますが、PAX7を保ったままMYODを失う細胞は自己複製の側へ戻ります。だからこそ、1つのマーカーだけでなく、組み合わせ・時系列・形・機能をあわせて見ることが大切になります。
実験で「マイオジェネシスが起きた」と言うには、少なくとも次のことを分けて測るのが望ましいとされています。増殖(細胞が増えているか)、筋系譜へのコミット(PAX7/MYF5/MYOD)、終末分化(MYOG、MyHC)、融合(多核細胞の核数や融合率)、肥大(筋管の太さ・タンパク質合成)、そして成熟(サルコメアの構造、電気刺激への収縮、カルシウム応答、収縮力)です。「MYODが上がった」「長い多核細胞が見えた」のどれか1つだけで“完全なマイオジェネシス”と主張しないことが、現在の研究の共通認識です。
8. 疾患と再生医療への広がり
マイオジェネシスの理解は、筋肉の病気の理解に直結します。デュシェンヌ型筋ジストロフィー(DMD)のような疾患では、筋線維が壊れやすく、サテライト細胞による再生がくり返されるうちに追いつかなくなっていきます。前述のMYMK・MYMXの変異による先天性ミオパチーのように、マイオジェネシスの特定の段階が障害されて起こる病気も知られています。
再生医療の観点から見た最終的な目標は、十分な数の筋前駆細胞を目的の筋肉に届け、成熟した筋線維へ融合させると同時に、将来の再生を担うPAX7陽性の幹細胞プールも再構築することです。マウスでは、この考え方を支持する強い結果が得られています。ヒトのES/iPS細胞からつくった筋前駆細胞を、筋ジストロフィーのモデルマウスに移植すると、ヒト由来の筋線維がつくられ、筋収縮能が改善し、一部がサテライト細胞のすみかに入って長期間生着することが示されました[13]。
ただし、この実験は免疫不全のモデルマウスを用いた前臨床研究であり、ヒトの全身のDMDに必要な細胞数・送達距離・呼吸筋や心筋を含む病態を解決したわけではありません。1990年代に行われた筋芽細胞移植の臨床試験では、ドナー由来のタンパク質が一部検出されたものの、対照を置いた研究では臨床的に十分な改善は得られず、細胞の生存・移動・免疫・広い範囲への送達の難しさが明らかになりました。ヒトへの治療応用は、まだ多くの壁を越える必要がある段階です。
🩺 院長コラム【「細胞をつくれる」と「治療になる」の間にある距離】
iPS細胞の登場で、「筋肉の細胞を無限につくれる」という段階には手が届きました。ニュースで大きく取り上げられるのも、たいていこの部分です。しかし、文献上、本当に難しいのはその先です。つくった細胞を、体じゅうに広がった筋肉のどこへ、どれだけ、安全に届けるのか。呼吸に関わる筋肉や心臓の筋肉まで含めて、どう対処するのか。この「製造」と「治療」の間の距離は、まだかなりあります。
そのため、iPS由来の骨格筋の近い将来の有力な使いみちとしては、移植治療そのものに加えて、患者さん特有の病態を再現するモデルづくりや、薬の候補を試す評価系が重要です。過度な期待でも悲観でもなく、現時点で何ができ、何がまだ難しいのかを正確に見きわめる必要があります。
なお、マイオジェネシスの分化プログラムの異常は、腫瘍とも接点があります。横紋筋肉腫(おうもんきんにくしゅ)は、筋分化のプログラムを一部持ちながら成熟しきれない腫瘍で、MYOD1やMYOGといった筋マーカーの発現が診断に使われます。筋肉をつくる遺伝子群は、正しく働けば筋肉を、制御を失えば腫瘍の性質を左右しうる——ここにも、マイオジェネシスの理解が臨床とつながる場面があります。
9. 遺伝診療との接点
マイオジェネシスは基礎生物学の話に見えますが、遺伝診療の土台としても意味を持ちます。筋肉づくりのどの段階で、どの遺伝子が働いているかを理解しておくと、筋肉に関わる遺伝性疾患で見つかった遺伝子の変化(バリアント)が、体にどう影響しうるかを考える手がかりになります。たとえば「融合の段階の遺伝子(MYMK・MYMX)」の変化なのか、「終末分化の段階の遺伝子」の変化なのかで、想定される病態は違ってきます。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。原因がはっきりしないまま検査を重ねる状況や、診断名がつくまでに時間がかかる経過は、多くの遺伝性疾患に共通してみられます。当院では中立の立場で、正確な情報に基づいて選択肢を検討できるよう、判断材料を整理します。
なお、マイオジェネシスそのものは基礎研究が中心の分野であり、日常の診療で直接検査する対象ではありません。ここでは「筋肉に関わる遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。仲田院長は成人を診療する臨床遺伝専門医であり、小児期に発症する筋疾患について、臨床遺伝専門医の視点から情報提供を行っています。
10. よくある誤解
誤解①「筋肉は1つの細胞が大きくなったもの」
骨格筋の筋線維は、たくさんの細胞が融合してできた多核の細胞です。1つの細胞がふくらんだものではなく、単核の筋細胞が寄り集まってひとつになった「シンシチウム」です。
誤解②「筋芽細胞と筋管は同じもの」
別の状態です。筋芽細胞は増える力をもつ単核の細胞、筋管は融合してできた多核の細胞。培養皿の筋管は、体内の成熟した筋線維とも同じではありません。
誤解③「融合は分化の“おまけ”」
融合には、MYMK・MYMXという専用の分子機構があります。分化と融合は別々に測るべき過程で、融合因子の変異は先天性の筋疾患の原因になります。
誤解④「増殖刺激が強いほど再生に良い」
そうとは限りません。老化した環境での過剰な増殖刺激は、サテライト細胞をかえって枯渇させることがあります。幹細胞は「静かに保つ」ことも大切です。
まとめ ─ 「筋肉をつくる」は段階の積み重ね
マイオジェネシスは、「筋芽細胞が分化して筋管になる」という一本道ではなく、特定化・コミット・増殖・終末分化・融合・成熟という段階が積み重なった、精巧なプログラムです。MYF5とMYODが「筋になるか」を、MYOGが「終末分化できるか」を、MYMK・MYMXが「融合できるか」を、それぞれ分担して決めています[6][7][8]。そして同じ仕組みが、大人のサテライト細胞による筋再生でもくり返し使われます。
この理解は、筋ジストロフィーや先天性ミオパチーといった遺伝性の病気を読み解く土台であり、iPS細胞を使った再生医療研究の出発点でもあります。基礎研究で描かれる発生モデルが、新しい手法で更新されていくように、遺伝子と病気の関係も、時期・場所・周囲の環境の中で捉えることが大切です。単純化しすぎず、正確に理解していくことが、適切な判断の土台になります。
よくある質問(FAQ)
Q1. マイオジェネシスとは何ですか?
マイオジェネシス(myogenesis/骨格筋形成)とは、筋肉のもとになる細胞が「筋肉になる」と運命づけられ、増え、終末分化して、たがいに融合しながら多核の筋線維へと成熟していく一連の過程のことです。特定化・コミット・増殖・終末分化・融合・成熟という段階を踏みます。発生期だけでなく、大人になってからのケガの修復(筋再生)でも、同じ遺伝子群がくり返し使われます。
Q2. 筋芽細胞と筋管はどう違うのですか?
筋芽細胞(myoblast)は、「筋肉になる」と決まった、まだ増える力をもつ単核(核が1つ)の細胞です。いっぽう筋管(myotube)は、終末分化した筋細胞どうしが融合してできた、核がたくさんある(多核)細胞で、ミオシン重鎖などの収縮タンパク質を強く発現します。なお、培養皿でつくられる筋管は、神経や血管とつながった体内の成熟した筋線維とは同じではありません。
Q3. どの遺伝子が筋肉づくりを指揮しているのですか?
中心となるのは、PAX3/PAX7(上流の前駆細胞を制御)と、MYF5・MYOD・MYOG(ミオゲニン)・MRF4という筋制御因子(MRF)です。MYODとMYF5は「筋肉になるか」を決め、両方を欠くと骨格筋がほとんどつくられません。MYOGは「筋肉として終末分化できるか」を強く決めます。さらに、細胞融合はMYMK(Myomaker)とMYMX(Myomixer)という専用の分子が担います。
Q4. サテライト細胞(筋幹細胞)とは何ですか?
サテライト細胞(筋衛星細胞・MuSC)は、筋線維の細胞膜と基底膜のあいだにある、PAX7を発現する細胞です。ふだんは休止状態にありますが、筋肉が損傷すると活性化して増え、一部は新しい筋線維をつくり、一部はふたたび休止状態に戻って将来のためのプールを保ちます。この仕組みのおかげで、大人の筋肉もくり返し再生できます。加齢に伴ってサテライト細胞の機能やニッチ環境が変化し、筋再生能が低下することが知られています。
Q5. マイオジェネシスの研究は、病気の治療にどうつながりますか?
筋肉づくりのどの段階が障害されて病気が起こるのかを理解することは、筋ジストロフィーや先天性ミオパチーといった遺伝性疾患の理解につながります。また、iPS細胞から筋前駆細胞をつくり、モデルマウスに移植して機能を改善させる前臨床研究も進んでいます。ただしヒトへの治療応用は、細胞の大量製造・送達・生着・安全性など多くの課題が残る段階です。現時点では、患者さん特有の病態を再現するモデルづくりや薬の評価に、大きな期待が寄せられています。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Chal J, Pourquié O. Making muscle: skeletal myogenesis in vivo and in vitro. Development. 2017;144(12):2104-2122. doi:10.1242/dev.151035. [PubMed 28634270]
- [2] Buckingham M. Gene regulatory networks and cell lineages that underlie the formation of skeletal muscle. Proc Natl Acad Sci U S A. 2017;114(23):5830-5837. doi:10.1073/pnas.1610605114. [PubMed 28584083]
- [3] Relaix F, Rocancourt D, Mansouri A, Buckingham M. A Pax3/Pax7-dependent population of skeletal muscle progenitor cells. Nature. 2005;435(7044):948-953. doi:10.1038/nature03594. [PubMed 15843801]
- [4] Toulouse G, Jarassier W, Jagot S, et al. Early lineage segregation of primary myotubes from secondary myotubes and adult muscle stem cells. Nat Commun. 2025;16:7858. doi:10.1038/s41467-025-61767-1. [PubMed 40846698]
- [5] Davis RL, Weintraub H, Lassar AB. Expression of a single transfected cDNA converts fibroblasts to myoblasts. Cell. 1987;51(6):987-1000. doi:10.1016/0092-8674(87)90585-X. [PubMed 3690668]
- [6] Rudnicki MA, Schnegelsberg PN, Stead RH, Braun T, Arnold HH, Jaenisch R. MyoD or Myf-5 is required for the formation of skeletal muscle. Cell. 1993;75(7):1351-1359. doi:10.1016/0092-8674(93)90621-V. [PubMed 8269513]
- [7] Nabeshima Y, Hanaoka K, Hayasaka M, et al. Myogenin gene disruption results in perinatal lethality because of severe muscle defect. Nature. 1993;364(6437):532-535. doi:10.1038/364532a0. [PubMed 8393146]
- [8] Millay DP, O’Rourke JR, Sutherland LB, et al. Myomaker is a membrane activator of myoblast fusion and muscle formation. Nature. 2013;499(7458):301-305. doi:10.1038/nature12343. [PubMed 23868259]
- [9] Bi P, Ramirez-Martinez A, Li H, et al. Control of muscle formation by the fusogenic micropeptide myomixer. Science. 2017;356(6335):323-327. doi:10.1126/science.aam9361. [PubMed 28386024]
- [10] Di Gioia SA, Connors S, Matsunami N, et al. A defect in myoblast fusion underlies Carey-Fineman-Ziter syndrome. Nat Commun. 2017;8:16077. doi:10.1038/ncomms16077. [PubMed 28681861]
- [11] Chakkalakal JV, Jones KM, Basson MA, Brack AS. The aged niche disrupts muscle stem cell quiescence. Nature. 2012;490(7420):355-360. doi:10.1038/nature11438. [PubMed 23023126]
- [12] Montarras D, Morgan J, Collins C, et al. Direct isolation of satellite cells for skeletal muscle regeneration. Science. 2005;309(5743):2064-2067. doi:10.1126/science.1114758. [PubMed 16141372]
- [13] Darabi R, Arpke RW, Irion S, et al. Human ES- and iPS-derived myogenic progenitors restore dystrophin and improve contractility upon transplantation in dystrophic mice. Cell Stem Cell. 2012;10(5):610-619. doi:10.1016/j.stem.2012.02.015. [PMC3348507]
- [14] Leikina E, Gamage DG, Prasad V, et al. Myomaker and Myomerger Work Independently to Control Distinct Steps of Membrane Remodeling during Myoblast Fusion. Dev Cell. 2018;46(6):767-780.e7. doi:10.1016/j.devcel.2018.08.006. [PubMed 30197239]
- [15] Ramirez-Martinez A, Zhang Y, van den Boogaard MJ, et al. Impaired activity of the fusogenic micropeptide Myomixer causes myopathy resembling Carey-Fineman-Ziter syndrome. J Clin Invest. 2022;132(11):e159002. doi:10.1172/JCI159002. [PubMed 35642635]
- [16] Gilbert PM, Havenstrite KL, Magnusson KEG, et al. Substrate elasticity regulates skeletal muscle stem cell self-renewal in culture. Science. 2010;329(5995):1078-1081. doi:10.1126/science.1191035. [PubMed 20647425]






