

目次
- 1 1. MYF5遺伝子とは ─ 筋肉づくりの最初のスイッチ
- 2 2. 遺伝子とタンパク質の構造 ─ どうやってDNAをつかむのか
- 3 3. エピジェネティクス制御 ─ DNAの「開け閉め」でMYF5を操る
- 4 4. MYF5とMYODの役割分担 ─ 似ているけれど違う相棒
- 5 5. 褐色脂肪との分岐 ─ 筋肉になるか、脂肪になるか
- 6 6. 筋衛星細胞と筋肉の再生 ─ MYF5が分ける2つの道
- 7 7. 翻訳と分解の制御 ─ 「いつ働かせるか」の細かな調整
- 8 8. 関連する病気 ─ EORVA(外眼筋麻痺・肋骨椎骨異常)
- 9 9. 遺伝診療との接点 ─ MYF5をどう読み解くか
- 10 10. よくある誤解
- 11 まとめ ─ 筋づくりの第一走者、MYF5
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
筋肉は、生まれる前の胎児のからだの中で、まっさらな細胞から少しずつ形づくられていきます。その最初のスイッチを入れる遺伝子のひとつがMYF5(ミオジェニック・ファクター5)です。MYF5は、まだ何にでもなれる細胞に「あなたは筋肉になりなさい」と最初に告げる運命決定因子で、数ある筋づくりの遺伝子のなかでも、いちばん早いタイミングで働き始めます。このMYF5がうまく働かないと、外眼筋(がいがんきん=目を動かす筋肉)や肋骨・背骨の形づくりに影響が出る、まれな遺伝性の病気が起こることも分かってきました。この記事では、MYF5とは何か、からだの中でどのように筋肉づくりを指揮しているのか、そして関連する病気や検査とどうつながるのかを、遺伝医学の知見に基づいて解説します。
Q. MYF5遺伝子とは何ですか?まず結論だけ知りたいです
A. MYF5は、胎児のからだの中で「この細胞を骨格筋にする」と最初に決める、筋づくりの司令塔(運命決定因子)となる遺伝子です。つくられるMYF5タンパク質は、DNAの特定の場所に結合して筋肉専用の遺伝子群のスイッチを入れる転写因子です。筋肉の発生でいちばん早く登場し、仲間のMYODなどと協力して筋肉を組み立てます。このMYF5が両方の遺伝子でうまく働かなくなると、EORVA(外眼筋麻痺・肋骨椎骨異常)という、まれな常染色体潜性(劣性)の病気が起こることが報告されています。
- ➤正体 → 骨格筋への運命を決める「運命決定因子」。筋づくりの遺伝子でいちばん早く働く
- ➤はたらき方 → DNAのEボックス配列に結合し、筋肉専用の遺伝子のスイッチを入れる転写因子
- ➤相棒 → 同じ仲間のMYODと役割を分担。両方が欠けると骨格筋が一切つくられない
- ➤再生との関わり → 筋肉の幹細胞(筋衛星細胞)が「幹細胞のまま残る」か「筋肉になる」かを分ける目印
- ➤関連する病気 → 機能を失う変異はEORVA(外眼筋麻痺・肋骨椎骨異常)の原因になる
🧬 MYF5遺伝子の基本情報
※本記事は一般の方と遺伝診療に関わる方の両方に向けた遺伝子の解説です。特定の検査を勧めるものではありません。
1. MYF5遺伝子とは ─ 筋肉づくりの最初のスイッチ
私たちのからだの骨格筋は、生まれる前の胎児期に、まだ何にでもなれる中胚葉(ちゅうはいよう)由来の細胞から少しずつ組み立てられていきます。その一連の流れ(マイオジェネシス=筋発生)を最上流で指揮しているのが、筋原性調節因子(MRF)と呼ばれる4つの遺伝子のグループです。MRFには、MYF5、MYOD、ミオゲニン(MYOG)、MRF4(MYF6)の4つが含まれます。MYF5は、このうちで胚のなかでいちばん早く働き始める遺伝子です。
MYF5の最大の役割は、まだ筋肉になると決まっていない前駆細胞に対して、「この細胞は骨格筋になる」という運命を後戻りできない形で書き込むことです。この働きから、MYF5は筋肉の運命決定因子(determination factor)と呼ばれています。MYF5がつくるタンパク質は、細胞の核の中でDNAに結合し、筋肉専用の遺伝子のスイッチを次々にオンにしていく転写因子として働きます。その力は強く、本来は筋肉ではない線維芽細胞のような細胞に無理やり働かせると、その細胞を筋芽細胞(きんがさいぼう=筋肉のもとになる細胞)へと変えてしまうほどです。
💡 用語解説:転写因子とは
転写因子とは、DNAの特定の場所にくっついて、近くの遺伝子を「読み取ってよい(オン)」「読み取ってはいけない(オフ)」と切り替えるタンパク質のことです。いわば遺伝子のスイッチ係です。MYF5は、筋肉づくりに必要な多数の遺伝子のスイッチをまとめてオンにする、いわば「筋肉プログラムの起動役」を担っています。
MYF5の面白いところは、その仕事が「一度きりの号令」で終わらない点です。胎児のときに筋肉を組み立てるだけでなく、生まれたあとの筋肉の中にも、MYF5と関わりの深い細胞がひっそりと残り続けます。これが、けがをした筋肉を修復する筋衛星細胞(きんえいせいさいぼう)で、後の章でくわしく取り上げます。MYF5は、発生・再生・そして病気という複数の場面に顔を出す、奥行きのある遺伝子なのです。
2. 遺伝子とタンパク質の構造 ─ どうやってDNAをつかむのか
ゲノム上の位置とコンパクトな構造
ヒトのMYF5遺伝子は、第12番染色体の長腕、12q21.31という場所にあります[1]。3つのエクソン(タンパク質の設計情報を含む部分)と2つのイントロンからなる、比較的コンパクトな遺伝子です。ただし、この遺伝子を「いつ・どこで働かせるか」を決める調節スイッチ(エンハンサーなど)は、遺伝子本体から遠く離れた広い範囲に散らばって配置されています。小さな本体を、広範囲の調節領域が取り囲んでコントロールしている、という構造です。
MYF5タンパク質の4つの部品
MYF5遺伝子から読み取られてつくられるMYF5タンパク質は、いくつかの機能的な部品(ドメイン)を組み合わせた構造をしています。中心となるのが、bHLH(塩基性ヘリックス・ループ・ヘリックス)と呼ばれる領域です。この領域は、DNAをつかむ「塩基性領域」と、他のタンパク質と手をつなぐ「ヘリックス・ループ・ヘリックス領域」の2つの機能を兼ね備えています。
💡 用語解説:bHLHとEボックス
bHLHは、多くの転写因子が共通してもつ「DNAをつかむための道具の形」です。2本のαヘリックス(らせん構造)が短いループでつながった形をしています。MYF5はこの部分を使って、DNA上の「Eボックス」と呼ばれる特定の配列(CANNTG)を認識してくっつきます。Eボックスは、筋肉専用の遺伝子の入口付近にたくさん配置されている「目印」のようなものです。
重要なのは、MYF5は単独ではDNAにうまくくっつけないという点です。MYF5は、Eタンパク質(E12/E47など)と呼ばれる別のタンパク質とペア(ヘテロ二量体)を組んで、はじめてDNAを正確につかめるようになります。ペアを組むと2つのDNAをつかむ手が正しい向きにそろい、Eボックスをしっかり挟み込めるのです。さらに、MYF5はDNAに結合したあと、ヒストンを修飾する酵素(p300など)を呼び寄せて、固く巻かれていたDNAをゆるめ、他のタンパク質が近づけるようにします。この一連の流れが、非筋細胞すら筋肉に変えてしまうMYF5の「マスターレギュレーター(総司令官)」としての力の源です。
なお、MYF5は胎児期に筋線維の数を決める最上流の因子であることから、ヒト以外の動物でも注目されています。ウシ・ブタ・ヒツジといった家畜では、MYF5遺伝子上の一塩基多型(SNP)が成長や筋肉の量と関わる目印として、育種の研究に利用されています[10]。同じ遺伝子が、ヒトの発生から畜産まで、幅広く筋肉づくりを支えていることがうかがえます。
🩺 院長コラム【「たった1文字」が運命を変える】
遺伝子の世界では、DNAのたった1文字の違いが、タンパク質の働きを大きく左右することがあります。MYF5でいえば、DNAをつかむ塩基性領域の中の1個のアミノ酸が別のものに置き換わるだけで、DNAへの結合や核への移動がうまくいかなくなり、機能を失ってしまうことが報告されています[1]。
遺伝子検査の結果を解釈するときは、「この1文字の変化が、タンパク質のどの部品に、どのような影響を与えるのか」という視点が重要です。同じ遺伝子の変化でも、場所と種類によって意味はまったく変わります。数字や記号として示される検査結果の背景には、こうした分子レベルの機能変化があり、その影響を既知の医学的知見と照合して評価します。
3. エピジェネティクス制御 ─ DNAの「開け閉め」でMYF5を操る
MYF5がいつ働き、いつ黙るかは、DNAそのものの文字を書き換えるのではなく、DNAの「上」に付けられる目印によって細かく制御されています。この仕組みをエピジェネティクスといいます。DNAは、ヒストンというタンパク質に巻きついて、糸巻きのように収納されています。この収納状態が固く締まっていると遺伝子は読み取れず、ゆるむと読み取れるようになります。
DNAをゆるめる ─ SWI/SNFとヒストンアセチル化
まだ筋肉になっていない細胞では、筋肉専用の遺伝子は固く巻かれたまま眠っています。MYF5は、DNAをゆるめる装置であるSWI/SNF複合体を目的の場所へ呼び寄せ、ヒストンの巻きつきをずらして、DNAを読み取れる状態(クロマチンリモデリング)に変えます。さらにMYF5は、ヒストンにアセチル基という目印を付ける酵素(p300など)も呼び寄せます。この目印が付くとDNAの巻きつきがさらにゆるみ、筋肉プログラムの遺伝子が本格的に読み取れるようになります。
DNAを黙らせる ─ ポリコームによる抑制
逆に、細胞をまだ未分化なまま保っておきたいときには、正反対の仕組みが働きます。ポリコーム抑制複合体(PRC2)の中心酵素であるEZH2が、ヒストンに「抑制の目印(H3K27me3)」を付けて、筋肉遺伝子を黙らせておきます。細胞が「筋肉になれ」という指令を受け取ると、この抑制の目印が外され、MYF5への道が開かれて筋発生プログラムが動き出します。DNAをゆるめる力と締める力、この2つのせめぎ合いのバランスが、筋肉づくりのタイミングを精密に決めているのです。
4. MYF5とMYODの役割分担 ─ 似ているけれど違う相棒
MYF5にとって最も近い相棒が、同じMRFファミリーのMYOD(MYOD1)です。両者はよく似ていて、どちらも細胞を筋肉へと運命づける力をもっています。そのため、片方が欠けてももう片方が肩代わりできる、いわば「二重の安全装置」の関係にあります。実際、マウスでMYF5とMYODのどちらか一方を欠損させても骨格筋は最終的につくられますが、両方を同時に欠損させると、骨格筋がまったくつくられなくなります。このことは、2つの遺伝子が筋肉づくりのいちばん根っこを支えていることを示しています。
ただし、両者はまったく同じではありません。発生の時期や部位によって寄与の大きさが異なり、MYF5は胚発生の早い段階から発現して筋原性系譜の決定に関わり、MYODは重複する標的遺伝子を制御しながらMYF5の機能を補完します。マウスでは体幹筋を含む筋群でMyf5とMyoDの寄与に部位差がみられますが、単純に「MYF5は沿軸筋、MYODは下軸筋」と一対一に分けられるわけではありません。両者は重複しつつも異なる発現時期・調節領域をもち、協調して筋発生を進める転写因子です。
MRF4最終分化・融合
この図のように、MRFファミリーではMYF5・MYODが筋原性系譜の決定に重複して関わり、ミオゲニン(MYOG)やMRF4(MYF6)が分化・成熟過程を担います。実際の発生では各因子の発現は一部重なりますが、MYF5は早期から働く主要な筋原性決定因子のひとつです。
5. 褐色脂肪との分岐 ─ 筋肉になるか、脂肪になるか
MYF5のもうひとつの意外な顔が、脂肪との関わりです。体温を保つために熱をつくる褐色脂肪組織(かっしょくしぼう)は、余分なエネルギーをためこむ白色脂肪とは違い、実はMyf5を発現した履歴をもつ前駆細胞系譜から生まれることが、細胞の系譜をたどる研究で明らかになりました[8]。つまり、同じ出発点の細胞が「筋肉」にも「褐色脂肪」にもなりうるということです。
この分かれ道を決めるのが、PRDM16という遺伝子です。Myf5発現履歴をもつ前駆細胞系譜では、PRDM16が褐色脂肪と骨格筋の運命選択を制御します。逆に、褐色脂肪の前駆細胞からPRDM16を取り除くと、細胞は褐色脂肪の性質を失って筋肉の方へ進んでしまいます。さらに、筋肉のもとになる細胞にPRDM16を強制的に働かせると、褐色脂肪細胞へと変わることも示されています[8]。Myf5系譜の前駆細胞は、単なる「筋肉の予備軍」ではなく、共同で働く因子によって褐色脂肪または骨格筋への運命が制御される細胞集団です。
6. 筋衛星細胞と筋肉の再生 ─ MYF5が分ける2つの道
大人になっても、筋肉はけがから回復する力をもっています。その主役が、筋線維のすぐそばに控えている筋衛星細胞(サテライトセル)という筋肉の幹細胞です。これらの細胞は、ふだんはPAX7という目印を共通してもって休止状態にあります。Myf5-Creを用いたマウスの系譜追跡研究では、過去にMyf5を発現した履歴があるかどうかで、性質の異なる2つの集団に分けられることが示されています[4]。
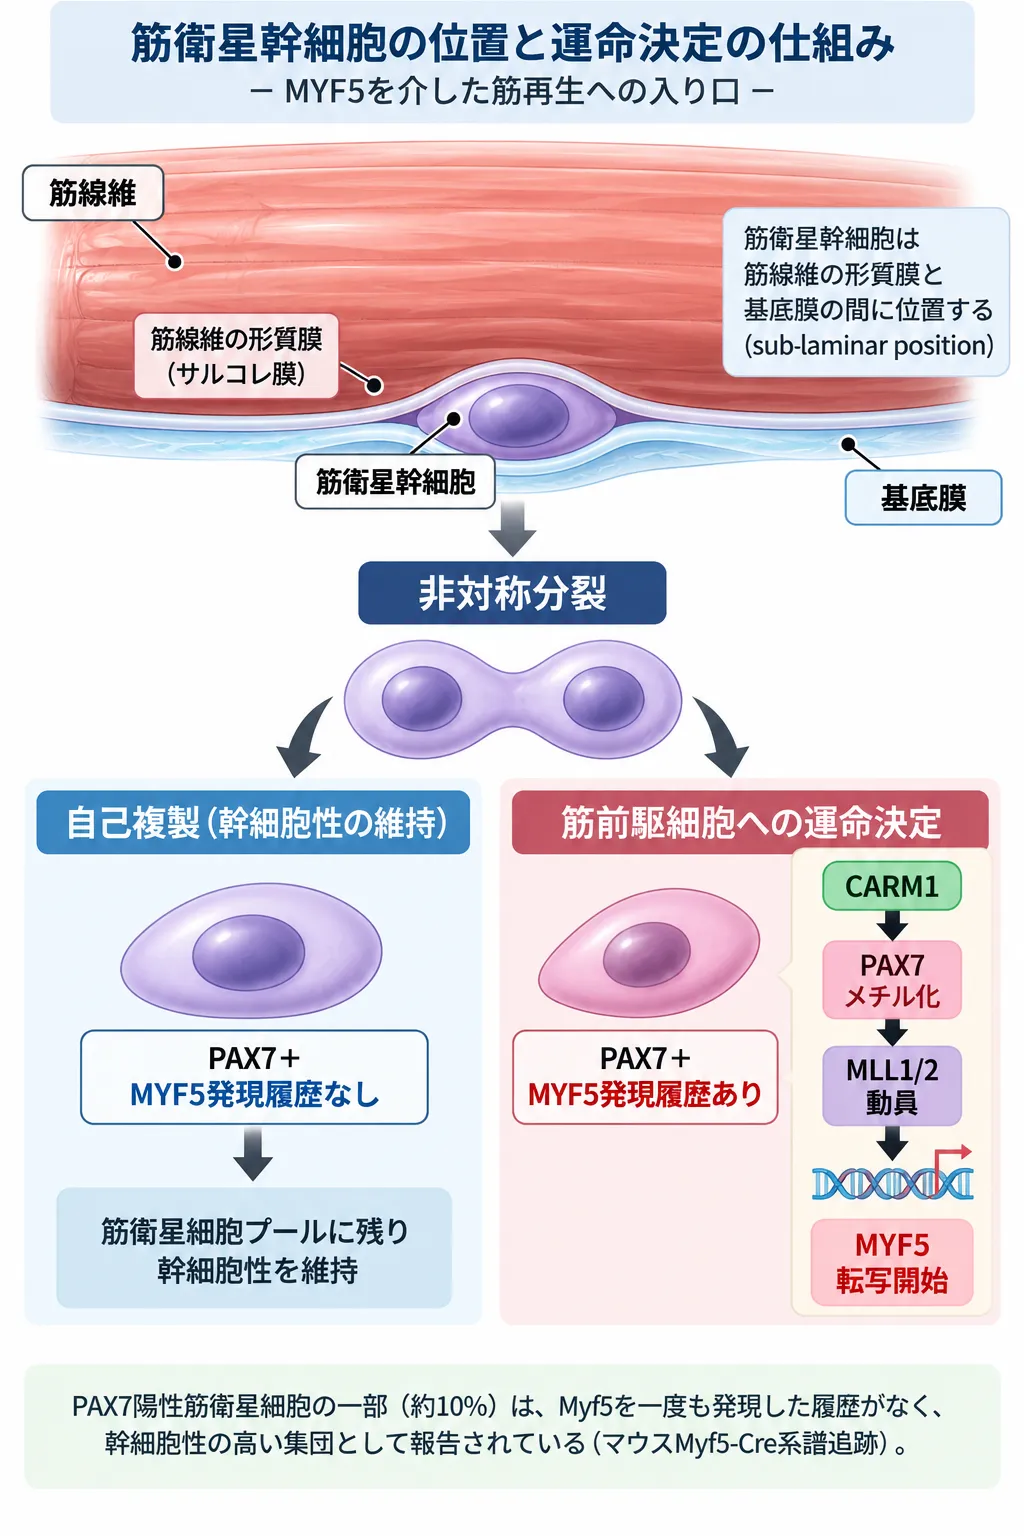
筋衛星幹細胞は、筋線維の形質膜(サルコレマ)と基底膜の間に位置します。非対称分裂によって、一方は幹細胞プールに残って自己複製し、もう一方は筋前駆細胞への運命決定へ進みます。マウスのMyf5-Cre系譜追跡では、PAX7陽性筋衛星細胞の一部にMyf5を過去に発現した履歴のない幹細胞性の高い集団が認められます。筋原性系列へ進む過程では、CARM1によるPAX7のメチル化とMLL1/2の動員を介してMYF5の転写が促進されます。
💡 2つのタイプの筋衛星細胞
PAX7陽性・Myf5系譜陰性の細胞=Myf5-Cre系譜追跡で、過去にMyf5を発現した履歴が検出されない集団。マウスでは衛星細胞の約1割を占め、自己複製能が高い「satellite stem cell」として報告されています。
PAX7陽性・Myf5系譜陽性の細胞=Myf5発現履歴をもつ集団で、より筋分化へコミットした前駆細胞として振る舞います。なお、ここでいう「系譜陰性/陽性」は、その時点のMYF5 mRNAやタンパク質の有無と同義ではありません。
筋肉が傷ついて修復が必要になると、Myf5系譜陰性の衛星幹細胞は非対称分裂という特別な分かれ方をします[4]。1個の細胞が分裂して、片方は同じ幹細胞のまま残り(予備を確保)、もう片方はMYF5のスイッチが入った修復役へと変わるのです。こうして「予備を減らさずに、修復要員だけを供給する」という賢いやりくりが成り立っています。
この運命の切り替えスイッチとして働くのが、CARM1というアルギニンメチル化酵素(PRMTファミリーの一員)です。修復役になる側の細胞の中だけでCARM1が働き、PAX7に「メチル基」という目印を付けます。目印の付いたPAX7は、DNAをゆるめる酵素複合体(MLL1/2など)をMYF5遺伝子の入口へ呼び寄せ、MYF5の転写を一気に始動させます[5]。このCARM1を介したMYF5の起動こそが、幹細胞が「修復役へ踏み出す」瞬間の分子スイッチなのです。
7. 翻訳と分解の制御 ─ 「いつ働かせるか」の細かな調整
MYF5の働きは、遺伝子を読み取る段階だけでなく、その後の段階でも細かく調整されています。とくに重要なのが、休止状態にある筋衛星細胞の中でのMYF5の扱い方です。
「待機状態」を保つ ─ miR-31による翻訳の一時停止
実は、眠っている筋衛星細胞の中では、MYF5の設計図(mRNA)はすでにたくさんつくられています。それなのに、MYF5タンパク質は組み立てられず、細胞は未分化なまま眠り続けています。この一見矛盾した状態は、mRNP顆粒(かりゅう)という小さな保管庫のしくみで説明されます[6]。MYF5のmRNAは、その翻訳をおさえるマイクロRNA(miR-31)と一緒に、この顆粒の中に隔離されているのです。
💡 用語解説:マイクロRNAとmRNP顆粒
マイクロRNAは、遺伝子の設計図(mRNA)にくっついて、タンパク質への翻訳をおさえる小さなRNAです。mRNP顆粒は、mRNAとそれを見張るタンパク質やマイクロRNAが集まった「保管庫」のようなもの。MYF5のmRNAをこの保管庫にしまっておくことで、必要になったらすぐ取り出して即座に翻訳できる「待機状態」がつくられています。
筋肉が傷つくなどの合図が入ると、この保管庫がすばやくほどけ、miR-31の抑えが外れて、MYF5タンパク質が一気に組み立てられます[6]。新しく遺伝子を読み取るのを待たずに、あらかじめ用意しておいた設計図から即座にタンパク質をつくれる——この「先に準備しておく」しくみのおかげで、筋衛星細胞は緊急事態に素早く対応できるのです。
増殖中は素早く分解する ─ M期特異的な取り壊し
一方、増えている最中の筋芽細胞では、MYF5は細胞分裂の時期(M期)になると素早く壊されることが分かっています[7]。分裂時にMYF5のタンパク質にリン酸という目印がいくつも付き、それが合図となってユビキチン・プロテアソーム系という「タンパク質の分解工場」に送られて取り壊されます[7]。この分解の細かな制御には、細胞周期を動かすキナーゼ(酵素)が関わっています。分裂中にMYF5を一時的に消しておくことで、細胞が増えるべきタイミングで不用意に分化のスイッチが入るのを防いでいると考えられます。
8. 関連する病気 ─ EORVA(外眼筋麻痺・肋骨椎骨異常)
MYF5の働きがうまくいかないと、どんなことが起こるのでしょうか。MYF5遺伝子が両方(父由来・母由来の両方)とも機能を失う変異をもつと、EORVAという、まれな遺伝性の病気が起こることが2018年に初めて報告されました[1]。EORVAは「External Ophthalmoplegia with Rib and Vertebral Anomalies(外眼筋麻痺・肋骨椎骨異常)」の頭文字をとった名前です。
💡 EORVAで見られる主な特徴
生まれつきの外眼筋麻痺(がいがんきんまひ=目を動かす筋肉が動きにくい)と眼瞼下垂(がんけんかすい=まぶたが下がる)、脊柱側弯症(せきちゅうそくわんしょう=背骨のゆがみ)、斜頸(しゃけい=首の傾き)、そして肋骨や背骨(椎骨)の形の異常などがみられます[1][2]。外眼筋麻痺は進行しない(非進行性)のが特徴とされています。
ヒトのEORVAでは、外眼筋麻痺と肋骨・椎骨異常が特徴的に現れることから、これらの組織の発生がMYF5機能低下の影響を受けやすいことが示されています[1]。マウスのMyf5欠損モデルでも肋骨形成異常が報告され、ヒトの表現型と重なります。一方、組織ごとにMYODなど他のMRFがどの程度代償するかという詳細な機序は、単純な一対一の分担だけでは説明できません。
🧬 これまでに報告されたMYF5の主な変異(EORVA)
| 変異(バリアント) | 種類 | 特徴・背景 |
|---|---|---|
| c.23_32del (p.Gln8Leufs*86) |
フレームシフト欠失 | 10塩基が抜けて設計図がずれる。NMD(下記参照)により機能的なタンパク質がつくられなくなる[1] |
| c.283C>T (p.Arg95Cys) |
ミスセンス | DNAをつかむ領域近くの1アミノ酸が変化。DNA結合と核への移動が損なわれ、機能を失う[1] |
| c.191delC (p.Ala64Valfs*33) |
フレームシフト欠失 | 父由来の第12番染色体の片親性ダイソミー(下記参照)により、片方だけの変異が両方に現れた例[3] |
| c.596dupA (p.Asn199Lysfs*49) |
フレームシフト重複 | 血族結婚のある家系で発見。眼瞼下垂と脊柱側弯症を伴う3きょうだいで報告[2] |
※これらはこれまでに報告された代表例です。EORVAは症例数が限られる、まれな病気です。
💡 用語解説:フレームシフト・ミスセンス・NMD
ミスセンス変異は、設計図の1文字が変わってアミノ酸が別のものに置き換わる変化です。フレームシフト変異は、塩基が抜けたり増えたりして設計図の「読み枠」がずれ、以降がまったく違う情報になる変化です。NMD(ナンセンス変異依存mRNA分解)は、こうした異常な設計図を細胞が「不良品」と判断して壊す品質管理のしくみです。
横紋筋肉腫との関わり
MYF5は、小児にみられる軟部腫瘍である横紋筋肉腫(おうもんきんにくしゅ)との関わりも研究されています。横紋筋肉腫は、筋肉になる途中の細胞が正しく成熟できず、未熟なまま増え続けてしまう腫瘍です。研究では、横紋筋肉腫の細胞でMYF5とMYODが単一細胞のレベルで互いに排他的に(どちらか一方だけ)働き、それぞれが腫瘍の増殖を支えていることが示されています[9]。本来は分化を促すはずのMYF5が、腫瘍の中では増殖を後押しする側にまわってしまう、という点が注目されています。これらは研究段階の知見であり、日常の診療で直接MYF5を検査する対象ではありませんが、遺伝子の働きが病気によって別の顔を見せることを示す例です。
サルコペニア(加齢による筋肉の衰え)との関連
加齢にともなって筋肉量と筋力が下がるサルコペニアにも、MYF5をめぐる筋衛星細胞のふるまいが関わると考えられています。年齢を重ねると、本物の幹細胞(PAX7陽性・MYF5陰性)が減り、幹細胞のプール全体が修復役寄りに偏っていくことが報告されており、これが再生力の低下の一因と考えられています。加齢に伴うエピジェネティックな乱れの蓄積も背景にあると議論されていますが、この分野はまだ研究が進行中です。
9. 遺伝診療との接点 ─ MYF5をどう読み解くか
EORVAは常染色体潜性(劣性)という遺伝形式をとります。これは、父由来・母由来の2本のMYF5遺伝子の両方に機能を失う変異がそろってはじめて症状が出る、という意味です。片方だけに変異をもつ人(保因者)は、ふつう症状が出ません。これまで報告された家系の多くで血族結婚がみられるのは、血縁のある両親からは同じ変異が子に受け継がれやすいためです。
💡 用語解説:保因者と片親性ダイソミー
保因者(キャリア)とは、変異を1つもっているが自分は発症しない人のことです。常染色体潜性の病気では、両親がともに同じ遺伝子の保因者のとき、子に変異が2つそろう可能性があります。また、まれに片親性ダイソミー(UPD)といって、ある染色体の1対を片方の親からだけ受け継ぐ現象が起こると、片方の親由来の変異が2つそろってしまうことがあります。MYF5でも、父由来の第12番染色体の片親性ダイソミーによってEORVAを発症した例が報告されています[3]。
診療の場面では、生まれつきの外眼筋麻痺や眼瞼下垂に、肋骨や背骨の異常・側弯が加わるようなとき、MYF5はその原因を探るために調べる遺伝子のひとつとして視野に入ります。原因が一つの遺伝子にしぼりきれない場合には、多数の遺伝子をまとめて調べる全エクソーム検査(WES)や、筋疾患に関わる遺伝子をまとめて調べる遺伝子パネル検査が用いられることがあります。なお、外眼筋の動きにくさを起こす病気は他にもあり(たとえば先天性外眼筋線維症など)、それらと区別しながら診断を進めることが大切です。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのかを、中立の立場で整理してご説明します。遺伝子の働きやバリアントの種類、既報の症例・機能解析などを総合して、検査結果の医学的意味を評価し、必要な情報を整理します。
10. よくある誤解
誤解①「MYF5とMYODは同じもの」
2つはよく似た相棒ですが、同じではありません。MYF5とMYODは発現時期や組織ごとの寄与が異なり、互いに補完しながら筋発生を支える因子と役割が分かれ、得意な筋肉の場所も異なります。ただし片方が欠けても補い合えるため、両方が欠けてはじめて骨格筋がつくられなくなります。
誤解②「MYF5は筋肉だけの遺伝子」
MYF5陽性の前駆細胞は、筋肉だけでなく褐色脂肪にもなりえます[8]。PRDM16という因子しだいで運命が分かれる、柔らかさをもった細胞なのです。
誤解③「変異があれば必ず発症する」
EORVAは常染色体潜性で、2本の遺伝子の両方に変異がそろってはじめて発症します。片方だけの保因者は通常は症状が出ません。遺伝形式を正しく理解することが大切です。
誤解④「まぶたや目の症状だけの病気」
EORVAは目の症状(外眼筋麻痺・眼瞼下垂)だけでなく、肋骨・背骨の形の異常や側弯を伴うことがあります[1]。全身の骨格を含めた評価が必要になります。
まとめ ─ 筋づくりの第一走者、MYF5
MYF5は、胎児のからだの中で「この細胞を骨格筋にする」と最初に決める運命決定因子です。DNAのEボックスに結合し、筋肉専用の遺伝子のスイッチを入れる転写因子として、筋づくりのリレーの第一走者を務めます。相棒のMYODと役割を分担し、片方が欠けても補い合いますが、両方が欠けると骨格筋は一切つくられません。
MYF5の働きは、DNAの開け閉め(エピジェネティクス)、マイクロRNAによる翻訳の一時停止、細胞分裂に合わせた素早い分解といった、幾重もの精密な制御を受けています。生まれたあとも筋衛星細胞の中に残り、CARM1を介したスイッチによって、幹細胞が「予備として残る」か「修復役になる」かを分けています[5]。そして、この遺伝子が両方とも機能を失うと、外眼筋麻痺と肋骨・椎骨の異常を特徴とするまれな病気EORVAが起こります[1]。ひとつの遺伝子が、発生・再生・病気という複数の場面をつなぐ——MYF5は、そのことを教えてくれる遺伝子です。
よくある質問(FAQ)
Q1. MYF5遺伝子とは何ですか?
MYF5(ミオジェニック・ファクター5)は、胎児のからだの中で「この細胞を骨格筋にする」と最初に決める運命決定因子となる遺伝子です。つくられるMYF5タンパク質は、DNAのEボックスという配列に結合して筋肉専用の遺伝子のスイッチを入れる転写因子で、筋肉づくりの遺伝子(MRFファミリー)のなかでいちばん早く働き始めます。第12番染色体(12q21.31)にあります。
Q2. MYF5とMYODはどう違うのですか?
どちらも細胞を筋肉へ運命づける近い仲間ですが、役割が分かれています。MYF5とMYODは重複する働きを持ちながら、発現時期や組織ごとの寄与が異なります。MYF5は胚発生の比較的早期から働き、MYODはその機能を補完しながら筋原性プログラムを進めます。片方が欠けてももう片方が補えますが、両方を同時に欠くと骨格筋がまったくつくられなくなります。
Q3. MYF5の変異でどんな病気が起こりますか?
MYF5遺伝子が両方とも機能を失う変異をもつと、EORVA(外眼筋麻痺・肋骨椎骨異常)という、まれな常染色体潜性(劣性)の病気が起こることが報告されています。生まれつきの外眼筋麻痺・眼瞼下垂に加え、脊柱側弯症や肋骨・背骨の形の異常を伴うのが特徴です。外眼筋や肋骨・椎骨の発生がMYF5機能低下の影響を受けやすいことが示されていますが、組織ごとのMRF間の代償機構には未解明な点があります。
Q4. EORVAはどのように遺伝しますか?
EORVAは常染色体潜性(劣性)遺伝です。父由来・母由来の2本のMYF5遺伝子の両方に変異がそろってはじめて発症し、片方だけの保因者は通常は発症しません。血縁のある両親(血族結婚)では同じ変異が子に受け継がれやすくなります。また、まれに第12番染色体の片親性ダイソミー(片方の親からだけ1対の染色体を受け継ぐ現象)によって発症した例も報告されています。
Q5. MYF5は筋肉の再生とどう関わっていますか?
大人の筋肉には、けがを修復する筋衛星細胞(筋肉の幹細胞)が控えています。この細胞は、MYF5を働かせているかどうかで、本物の幹細胞(MYF5陰性)と修復役(MYF5陽性)に分かれます。筋肉が傷つくと、幹細胞は非対称分裂という分かれ方をして、片方を幹細胞のまま残し、もう片方をMYF5のスイッチが入った修復役に変えます。この切り替えにはCARM1という酵素が関わっています。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Di Gioia SA, et al. Recessive MYF5 Mutations Cause External Ophthalmoplegia, Rib, and Vertebral Anomalies. Am J Hum Genet. 2018;103(1):115-124. doi:10.1016/j.ajhg.2018.05.003. PMID:29887215. PMCID:PMC6035164. [PMC6035164]
- [2] Ocieczek P, et al. Identification of a Novel Frameshift Variant in MYF5 Leading to External Ophthalmoplegia with Rib and Vertebral Anomalies. Genes (Basel). 2024;15(6):699. doi:10.3390/genes15060699. PMID:38927634. PMCID:PMC11202668. [PMC11202668]
- [3] Li Q, et al. Case Report: A Novel Homozygous Mutation in MYF5 Due to Paternal Uniparental Isodisomy of Chromosome 12 in a Case of External Ophthalmoplegia With Rib and Vertebral Anomalies. Front Genet. 2022;12:780363. doi:10.3389/fgene.2021.780363. PMID:35186005. PMCID:PMC8851471. [PMC8851471]
- [4] Kuang S, Kuroda K, Le Grand F, Rudnicki MA. Asymmetric Self-Renewal and Commitment of Satellite Stem Cells in Muscle. Cell. 2007;129(5):999-1010. doi:10.1016/j.cell.2007.03.044. PMID:17540178. PMCID:PMC2718740. [PMC2718740]
- [5] Kawabe YI, et al. Carm1 Regulates Pax7 Transcriptional Activity through MLL1/2 Recruitment during Asymmetric Satellite Stem Cell Divisions. Cell Stem Cell. 2012;11(3):333-345. doi:10.1016/j.stem.2012.07.001. PMID:22863532. PMCID:PMC3438319. [PMC3438319]
- [6] Crist CG, Montarras D, Buckingham M. Muscle Satellite Cells Are Primed for Myogenesis but Maintain Quiescence with Sequestration of Myf5 mRNA Targeted by microRNA-31 in mRNP Granules. Cell Stem Cell. 2012;11(1):118-126. doi:10.1016/j.stem.2012.03.011. PMID:22770245. [PubMed 22770245]
- [7] Doucet C, et al. Multiple phosphorylation events control mitotic degradation of the muscle transcription factor Myf5. BMC Biochem. 2005;6:27. doi:10.1186/1471-2091-6-27. PMID:16321160. PMCID:PMC1322219. [PMC1322219]
- [8] Seale P, et al. PRDM16 controls a brown fat/skeletal muscle switch. Nature. 2008;454(7207):961-967. doi:10.1038/nature07182. PMID:18719582. PMCID:PMC2583329. [PubMed 18719582]
- [9] Tenente IM, et al. Myogenic regulatory transcription factors regulate growth in rhabdomyosarcoma. eLife. 2017;6:e19214. doi:10.7554/eLife.19214. PMID:28080960. PMCID:PMC5231408. [PMC5231408]
- [10] Mohammadabadi M, Bordbar F, Jensen J, Du M, Guo W. Key Genes Regulating Skeletal Muscle Development and Growth in Farm Animals. Animals (Basel). 2021;11(3):835. doi:10.3390/ani11030835. PMID:33809500. PMCID:PMC7999090. [PMC7999090]






