

目次
- 1 1. bHLHとは ─ 遺伝子のスイッチを操る「共通の部品」
- 2 2. bHLHの2つの部品 ─ 「DNAを読む」と「手を組む」
- 3 3. E-boxの読み方 ─ 「合図の配列」だけでは決まらない
- 4 4. bHLHファミリーの仲間分け ─ 代表的なメンバー
- 5 5. 転写を操るしくみ ─ 一段階では終わらない
- 6 6. 発生と細胞分化 ─ 神経・筋肉・血液をつくる
- 7 7. bHLHと関連する生まれつきの病気
- 8 8. がんとbHLH ─ 同じしくみが逆向きに壊れる
- 9 9. 遺伝診療との接点 ─ bHLHをどう読み解くか
- 10 10. よくある誤解
- 11 まとめ ─ 「配列を読む部品」から「文脈で決まるシステム」へ
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

私たちの体は、たった1個の受精卵から始まり、神経・筋肉・血液・皮膚といったまったく違う細胞へと分かれていきます。この「どの細胞になるか」を決める司令塔の一つが、bHLH(塩基性ヘリックス・ループ・ヘリックス/basic helix-loop-helix)と呼ばれる転写因子のグループです。bHLHは、二人一組(二量体)になってDNAの上の決まった合図を読み取り、必要な遺伝子のスイッチを入れます。このしくみが少しでも狂うと、ワーデンブルグ症候群やピット・ホプキンス症候群といった生まれつきの病気や、さまざまながんにつながることがわかっています。この記事では、bHLHとは何か、どうやってはたらくのか、そして遺伝性の病気や最新のがん研究とどうつながるのかを、臨床遺伝専門医の視点から解説します。
Q. bHLH(塩基性ヘリックス・ループ・ヘリックス)とは何ですか?まず結論だけ知りたいです
A. bHLHとは、多くの転写因子(遺伝子のスイッチを操るタンパク質)が共通して持っている「DNAを読む部品の形」のことです。塩基性領域(basic region)という部分でDNAの合図を読み、ヘリックス・ループ・ヘリックス(HLH)という部分で相手のタンパク質と二人一組(二量体)になります。この2つがセットになっているのがbHLHの特徴です。ヒトには100種類を超えるbHLH関連の因子があり、神経・筋肉・血液・色素細胞・体内時計など、さまざまな細胞運命の決定にかかわります。設計図(遺伝子)に変化が起こると、生まれつきの病気やがんの原因になることがあります。
- ➤正体 → 転写因子が共通して持つDNA結合+二量体形成の部品(ドメイン)
- ➤読む合図 → E-box(5′-CANNTG-3′)という短いDNA配列。ただし配列だけでは結合先は決まらない
- ➤はたらき方 → 単独ではなく、相手・クロマチン・補助因子・修飾の組み合わせで出力が変わる
- ➤生まれつきの病気 → TWIST1、TCF4、MITFなどの変化がSaethre-Chotzen・Pitt-Hopkins・ワーデンブルグ症候群の原因に
- ➤がんとの関係 → MYCの過剰なはたらきやMYOD1 L122R変異など、bHLH制御の破綻ががんを進める
🧬 bHLH(塩基性ヘリックス・ループ・ヘリックス)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | 塩基性ヘリックス・ループ・ヘリックス(bHLH/basic helix-loop-helix)。日本語では「塩基性らせん・ループ・らせん」構造とも書かれます |
| 正体 | 多くの転写因子が共通して持つDNA結合ドメイン。塩基性領域(basic region)+ヘリックス・ループ・ヘリックス(HLH)からなる |
| 読み取る配列 | E-box(5′-CANNTG-3′)が代表。MYC-MAXはCACGTGを高い選択性で認識する[2] |
| 代表的な仲間 | E-protein(TCF3/E2A、TCF4)、MYOD1、MYC/MAX、MITF、HES1、CLOCK-BMAL1、ID群など |
| ヒトでの数 | 100種類を超えるbHLH関連因子が知られる(数え方の基準により報告値は異なる) |
| 医療との関わり | 先天性疾患(Saethre-Chotzen・Pitt-Hopkins・ワーデンブルグ症候群など)やがんの原因・標的になる |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. bHLHとは ─ 遺伝子のスイッチを操る「共通の部品」
私たちの細胞には約2万個の遺伝子がありますが、どの細胞でもすべての遺伝子が使われているわけではありません。神経細胞では神経の遺伝子、筋肉の細胞では筋肉の遺伝子だけが選ばれてはたらきます。この「どの遺伝子を、いつ、どれだけ使うか」を決めているのが転写因子です。bHLH(塩基性ヘリックス・ループ・ヘリックス)は、その転写因子の多くが共通して持っている「DNAを読むための部品(ドメイン)」の名前です。
bHLHという名前は、その形をそのまま表しています。塩基性領域(basic region)と呼ばれる部分がDNAに直接くっつき、続く2本のらせん(ヘリックス)と、その間をつなぐ輪(ループ)が、相手のタンパク質と組み合わさる部分です。つまり「DNAを読む係」と「相手と手を組む係」が隣り合わせにセットになっている——これがbHLHの最大の特徴です。E47というbHLHタンパク質がDNAに結合した結晶構造は、bHLHが二人一組でDNAの合図を読み取るしくみを原子のレベルで初めて示しました[1]。
💡 用語解説:転写因子とドメイン
転写因子とは、DNAの特定の場所にくっついて、近くの遺伝子を「読み取る(=転写する)」作業をオンやオフに切り替えるタンパク質のことです。ドメインとは、タンパク質の中で特定のはたらきを担う「部品」のまとまりを指します。bHLHは、たくさんの転写因子が共通して持つ「DNA結合+二量体形成」のための部品(ドメイン)だと考えてください。
bHLHを持つ転写因子は、神経系・骨格筋・血球系・色素細胞・体内時計など、体のあらゆる場面で細胞の運命を決めています。ヒトにはこのbHLH関連の因子が100種類を超えて存在します。数え方の基準によって「125」や「108」など報告される数は変わりますが、いずれにせよ「100を超える大きなファミリー」であることは共通しています。それだけ多くの転写因子が同じ設計思想を共有しているのは、bHLHという部品が、細胞の運命を切り替える道具としてとても優れているからです。
2. bHLHの2つの部品 ─ 「DNAを読む」と「手を組む」
bHLHのはたらきは、2つの部品が隣り合っていることで成り立っています。1つめは塩基性領域(basic region)。これがDNAの溝にすべり込み、決まった塩基の並びを読み取ります。2つめはヘリックス・ループ・ヘリックス(HLH)。2本のらせんとその間の輪でできていて、相手のタンパク質と組み合わさって二量体(ダイマー)をつくる部分です。
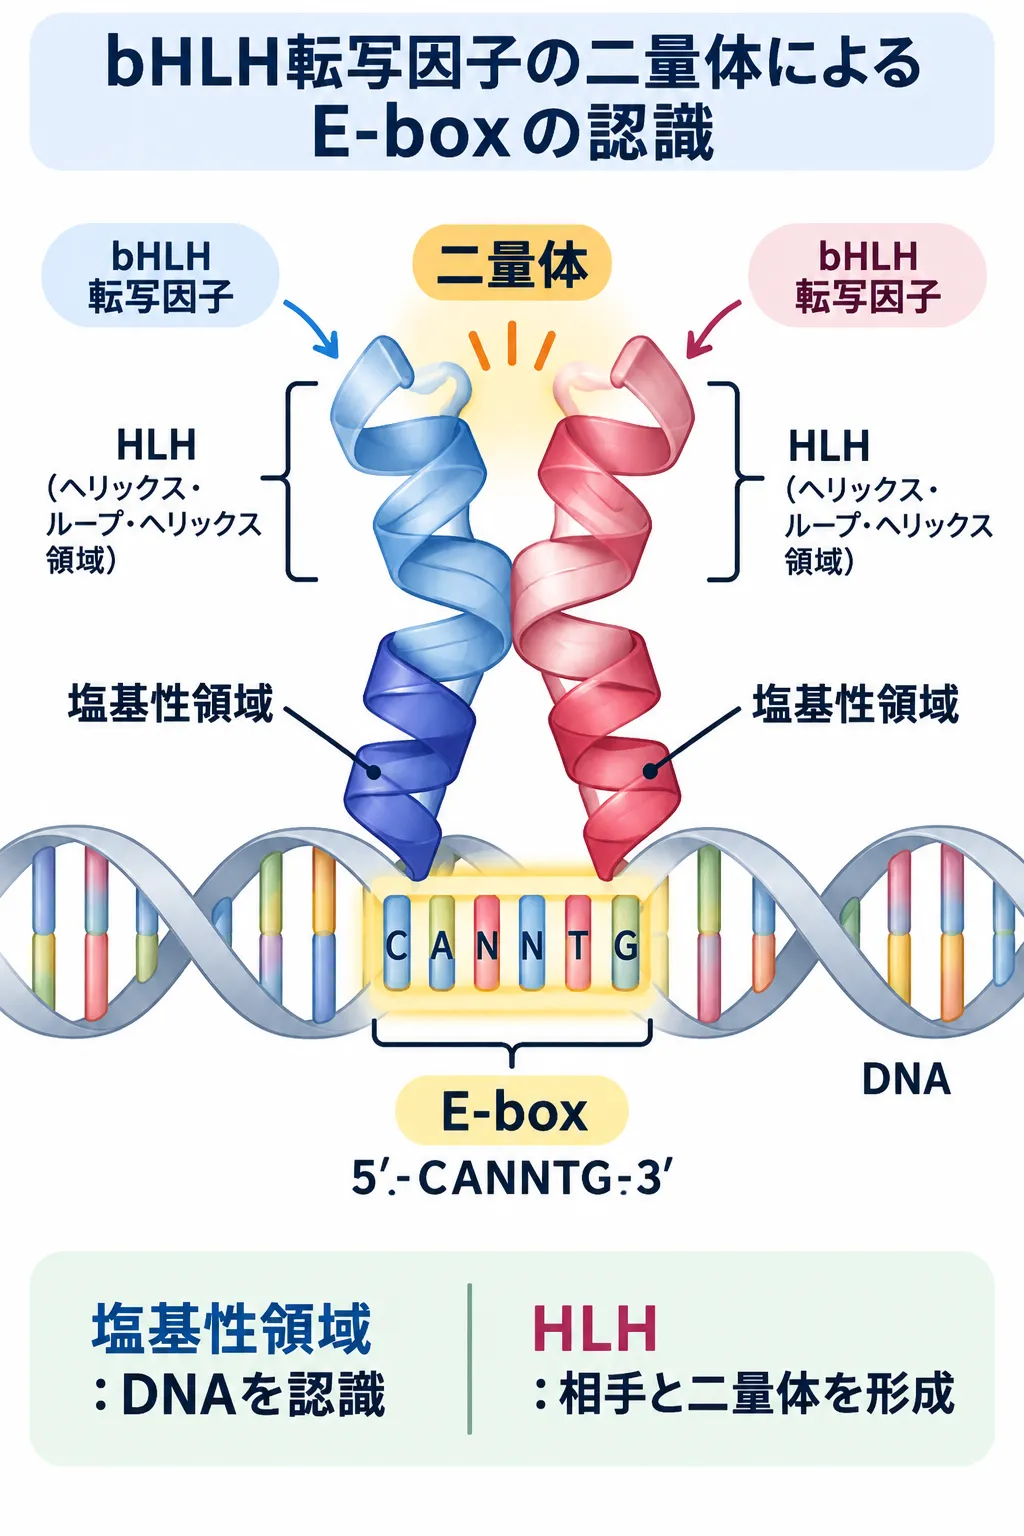
bHLH転写因子は、HLH(ヘリックス・ループ・ヘリックス)領域を介して二量体を形成し、塩基性領域でDNA上のE-box(5′-CANNTG-3′)を認識します。DNA結合と二量体形成を担う2つの領域が組み合わさって働くことが、bHLH転写因子の基本的な特徴です。
なぜ「二人一組」が大切なのでしょうか。多くのbHLHは、単独ではDNAにうまく結合できません。相手と組むことで初めて、DNAをはさみ込むような形が完成するのです。E47というbHLHタンパク質の構造では、二量体が平行な4本のらせんの束をつくり、E-boxという合図の左右を読み取っていました[1]。筋肉をつくるMyoDというbHLHも、E-proteinという相手と組むことでE-boxへの結合力が強まることが、構造解析で確かめられています。
💡 用語解説:二量体(ダイマー)
二量体(ダイマー)とは、2つのタンパク質が組み合わさって1つの機能単位としてはたらく状態のことです。同じ種類どうしが組む場合を「ホモ二量体」、違う種類どうしが組む場合を「ヘテロ二量体」と呼びます。bHLHの多くは、パートナーとヘテロ二量体をつくることで、初めてDNAに結合できるようになります。
bHLHの後ろに、さらに別の部品がつながっているタイプもあります。たとえばMYCというがんに深くかかわる転写因子は、bHLHの後ろにロイシンジッパーという部品を持ち(bHLH-Zip型)、これが「誰と組むか」の選び方をより厳密にしています。MYCとMAXという相手のペアの構造は、CACGTGという配列を認識するようすと、ロイシンジッパーが二量体を安定させるようすを示しました[2]。体内時計を動かすCLOCKとBMAL1のペアでは、PASドメインという部品がさらに複数の接点を加えています[3]。同じ「DNAを読む骨組み」を保ちながら、後ろにつなぐ部品を変えることで、まったく別の調節システムに使い回されているのです。
3. E-boxの読み方 ─ 「合図の配列」だけでは決まらない
bHLHが読み取る代表的なDNAの合図が、E-box(5′-CANNTG-3′)と呼ばれる短い配列です。真ん中の「NN」の部分はいろいろな塩基が入りうる場所ですが、ここが単なる「なんでもいい場所」ではないところが、bHLHの奥深さです。
💡 用語解説:E-box(Eボックス)とは
E-boxは、DNAの上にある「CANNTG」という6文字の並びのことです(Nはどの塩基でもよい位置を表します)。多くのbHLH転写因子は、このE-boxを目印にしてDNAにくっつきます。ただし、同じE-boxでも、真ん中の塩基や周りの配列、組む相手によって、どのbHLHがどれくらい強く結合するかは変わってきます。
たとえばMYC-MAXはCACGTGという配列をとくに選んで結合します[2]。一方で、同じCANNTGを読むbHLHどうしでも、まったく同じ場所を同じ強さで結合するわけではありません。真ん中の塩基への直接の接触だけでは、実際の選び方を説明しきれないことが、E47と神経分化にかかわるNeuroD1のペアの研究などで示されています。つまり、bHLHの「配列の好み」は、真ん中の塩基・周りの配列・組む相手・DNAの形・タンパク質の動きやすさなど、いくつもの要素の掛け合わせで決まっているのです。
さらに近年は、DNAがヌクレオソーム(DNAがヒストンというタンパク質に巻き付いた構造)にまとめられた状態で、bHLHがどう結合するのかも調べられるようになりました。MYC-MAXやCLOCK-BMAL1をヌクレオソームに結合させた構造研究では、E-boxがヌクレオソームのどこにあるか、どんな二量体化ドメインを持つかによって結合効率が左右されることが示されています[4]。「合図の配列があれば必ず結合する」という単純なモデルでは、細胞の中で本当に起きていることを説明できないのです。
これは、遺伝子の設計図(配列)を読むだけでは、その転写因子が体の中で実際にどこではたらくかを完全には予測できない、ということでもあります。エンハンサーや周りのクロマチンの状態まで含めて考える必要がある、という視点は、遺伝子解析の結果を読み解くうえでも重要になってきています。
4. bHLHファミリーの仲間分け ─ 代表的なメンバー
bHLHの分類には、じつは1つの決まった方法がありません。進化の系統に基づいてA〜Fの群に分ける方法もあれば、「誰と組むか」「後ろにどんな部品がついているか」といった機能で分ける方法もあります。ここでは、しくみを理解しやすい機能的なグループで、代表的な仲間を紹介します。
🧬 bHLHの主なグループと代表メンバー
| グループ | 代表例 | 特徴・かかわる場面 |
|---|---|---|
| E-protein(クラスI) | TCF3(E12/E47)、TCF4 | 多くの組織特異的bHLHの「組む相手」。神経・筋・リンパ系の細胞運命決定にかかわる |
| 組織特異的(クラスII) | MYOD1、MYOG、ASCL1、NEUROD1、TAL1 | E-proteinと組んではたらく。筋分化・神経分化・造血など |
| MYC/MAX型(bHLH-Zip) | MYC、MYCN、MAX、MXD群 | ロイシンジッパーを持つ。細胞増殖・代謝・がんに関与。CACGTGを認識[2] |
| MiT/TFE型 | MITF、TFE3など | 色素細胞(メラノサイト)系統。ワーデンブルグ症候群やメラノーマにかかわる |
| bHLH-PAS型 | CLOCK、BMAL1など | PASドメインを持つ。体内時計(概日リズム)の中核[3] |
| HES/HEY型(抑制役) | HES1など | 分化を抑え、神経幹細胞の状態を保つ。N-boxを好む |
| ID型 | ID1、ID2など | 塩基性領域を欠き、DNAに直接結合できない。相手を捕まえて分化を抑える[5] |
※このほかにも多数のbHLH因子があります。同じE-boxを読む仲間でも、組む相手や後続ドメインの違いで役割が大きく変わります。
「DNAに結合しない」bHLH ─ ID群という例外
bHLHの仲間の中でも面白いのがID群です。IDタンパク質はHLHの部分は持っていますが、DNAを読むための塩基性領域を欠いています。そのため自分ではDNAに結合できず、代わりにMyoDやE-proteinといった本物のbHLHにくっついて、その相手のDNA結合をじゃまします[5]。「にせの相手」として本物を捕まえ、分化を止めるブレーキ役なのです。IDの量が変わると、DNAを直接読まなくても、bHLHネットワーク全体で「使える相手」の数が変わってきます。
抑える方向にはたらくHES1
HES1という因子は、E-boxではなくN-box(CACNAG)という別の配列を好んで読み、遺伝子を抑える方向にはたらきます。しかもHES1は自分自身の設計図(プロモーター)にも結合して、自分の量を抑える「ネガティブ・フィードバック」を行うことが知られています。bHLHによる配列の読み取りは、遺伝子をオンにするためだけでなく、オフにする調節にも使われているのです。
5. 転写を操るしくみ ─ 一段階では終わらない
「bHLHがE-boxに結合して遺伝子をオンにする」——教科書ではそう説明されがちですが、実際はもっと複雑な多段階のプロセスです。おおまかには、①どれだけのbHLHがあるか(量)と修飾の状態 → ②誰と組むか(相手選び) → ③DNAやクロマチンに近づけるか → ④補助因子を呼び込む → ⑤最終的な遺伝子の読み取り、という流れをたどります。
相手選びの代表がE-proteinです。TCF3(E12/E47)は組織特異的なbHLHとヘテロ二量体をつくり、MYOD1やNEUROD1、TAL1などのDNA結合や転写活性を調整します。これに対してID群は、相手を捕まえてDNA結合をじゃまし、系全体を止めるブレーキとしてはたらきます[5]。同じE-proteinという「共通のパートナー」を、複数のbHLHとIDが取り合っているイメージです。
DNAへの近づきやすさを決めるのがクロマチンリモデリングです。神経分化にかかわるASCL1は、閉じたクロマチンに入り込む「パイオニア転写因子」としてだけでなく、すでに開いた場所でBAF複合体と協力してクロマチンを組み替えることも報告されています。bHLHのはたらきは「遺伝子のスイッチを入れる」だけでなく、細胞の状態に応じてクロマチンの構造そのものを書き換える作業でもあるのです。
💡 用語解説:パイオニア転写因子
ふつうの転写因子は、DNAが開いた(読み取りやすい)状態の場所にしか結合できません。ところがパイオニア転写因子は、DNAがヒストンに固く巻き付いた「閉じた」場所にも先陣を切って入り込み、そこを開くきっかけをつくれる特別な転写因子です。ASCL1はその代表の一つとされています。
さらに、翻訳後修飾(タンパク質ができた後に加わる化学的な目印)も、bHLHのはたらきを切り替えます。MyoDは増殖中の筋芽細胞でリン酸化を受け、寿命が調整されます。TWIST1では、特定の場所のアセチル化の状態によって、遺伝子を抑える複合体と活性化する複合体のどちらを呼ぶかが切り替わることが示されています[6]。同じbHLHでも、修飾しだいで正反対のはたらきをしうるのです。
🩺 院長コラム【「配列を読む」だけでは、はたらきは決まらない】
bHLHの研究からは、遺伝子や転写因子を「配列だけ」で理解できないことが分かります。同じE-boxを読む転写因子でも、組む相手やクロマチンの状態、そのときの修飾によって、異なる遺伝子を動かし、抑制方向にはたらく場合もあります。「この配列があるから、この遺伝子がオンになる」と配列情報だけから単純に結論づけることはできません。
これは、遺伝子検査で見つかったバリアントを解釈する際にも重要な原則です。ある変化が見つかっても、それが生体内でどのような影響を及ぼすかは、遺伝子の機能、変化した領域、発現量、分子間相互作用などの文脈を含めて慎重に評価する必要があります。一つの情報だけで結論を急がず、複数の根拠を統合して判断することが重要です。
6. 発生と細胞分化 ─ 神経・筋肉・血液をつくる
bHLHは、体をつくる過程(発生)で、細胞がどの種類になるかを決める中心的な役割を担っています。ここでは代表的な3つの場面を見ていきます。
神経をつくる ─ ASCL1とHES1のせめぎ合い
神経の発生では、ASCL1という「神経をつくれ」と促すbHLH(プロニューラル因子)が中心的にはたらきます。ヒトの神経分化のモデルでは、ASCL1が閉じたクロマチンに入り込むだけでなく、すでに開いた場所でBAF複合体と協力して、遠く離れた調節領域を組み替えることが示されています。一方で、前の章で登場したHES1は、これとは反対に分化を抑え、神経の元になる細胞(前駆細胞)の状態を保ちます。神経系では、この「つくれ」と「まだ待て」という2種類のbHLHの動的なバランスが、分化のタイミングを決めているのです。
筋肉をつくる ─ MyoDとE-proteinのコンビ
MYOD1は、筋肉をつくる遺伝子の代表的なスイッチです。ヒトのMYOD1は320個のアミノ酸からなる転写活性化因子で、筋特異的な遺伝子の読み取りを促し、筋分化を進めます。効率よくDNAに結合するには、E-proteinという別のbHLHと組むことが必要です。MyoDとE47のペアの構造解析でも、ヘテロ二量体になることでE-boxへの結合力が高まることが示されています。筋形成はさらに階層的で、MyoDが最初のネットワークを立ち上げ、MYOG(ミオゲニン)など後半の因子を誘導しながら、クロマチンの組み替えと組み合わせて進んでいきます。
血液をつくる ─ TAL1を中心とした複合体
造血(血液細胞をつくる過程)では、TAL1(SCL)というbHLHがE47/E12と組んでE-boxを認識します。さらにLMO2やLDB1といったタンパク質を含む大きな複合体に組み込まれ、GATA因子などと連携します。これは単純なbHLHの二量体を超えた、造血のための「転写の足場」を形づくっています。この同じしくみは、正常な造血だけでなく、T細胞性の白血病(T-ALL)でも使われることが知られています。正常な発生に必要なbHLH複合体と、白血病を起こす転写プログラムとの境界は、とても近いところにあるのです。
7. bHLHと関連する生まれつきの病気
「bHLHは基礎研究の話で、病気とは関係ないのでは」と思われるかもしれません。しかし実際には、bHLHの中心的なしくみ——二量体をつくり、DNAを読む——のどこかが壊れると、生まれつきの病気につながります。ここで大切なのが、TWIST1やTCF4、MITFなどの代表的なbHLH関連疾患では、常染色体顕性(優性)遺伝の形をとり、ハプロ不全(片方の遺伝子の機能が失われ、正常な遺伝子1コピー分の産物では十分でない状態)が発症機序となる例があることです。なお、bHLH関連疾患の発症機序がすべてハプロ不全というわけではありません。
💡 用語解説:ハプロ不全(haploinsufficiency)
私たちは同じ遺伝子を父由来・母由来の2つずつ持っています。ふつうは片方に変化があっても、もう片方が正常なら足りることが多いのですが、遺伝子によっては2つそろって初めて十分な量になるものがあります。この場合、片方が変化してタンパク質の量が半分になるだけで病気が起こります。これをハプロ不全といいます。bHLHの多くは相手と組んではたらくため、量が減ると影響が出やすいと考えられます。
🧬 bHLHが関わる代表的な先天性疾患
| bHLH | 関連する病気 | しくみのポイント |
|---|---|---|
| TWIST1 | Saethre-Chotzen症候群(ゼーツレ・コッツェン症候群)、頭蓋縫合早期癒合症 | ハプロ不全などで頭蓋の発達に影響。5′UTRの変化が翻訳量を下げる例も[7] |
| TCF4 | Pitt-Hopkins症候群(ピット・ホプキンス症候群) | ハプロ不全やbHLH領域の変化で発症。DNAメチル化の特徴的なパターンが報告されている[8] |
| MITF | ワーデンブルグ症候群2A型など | DNA認識や二量体形成の障害で、色素細胞や聴覚に影響が出る |
| TCF3(E2A) | 無ガンマグロブリン血症(原発性免疫不全) | E-proteinの変化がリンパ球の発生にかかわる |
TWIST1は、頭蓋の発達を司るbHLHです。その量が足りなくなると、頭の骨のつなぎ目が早く固まってしまう頭蓋縫合早期癒合症や、Saethre-Chotzen症候群(ゼーツレ・コッツェン症候群)につながります。タンパク質そのものをつくる部分だけでなく、その手前(5′UTR)の変化が、新しい「にせの開始点」をつくってTWIST1の翻訳量を下げることも実証されています[7]。遺伝子の設計図は、タンパク質をコードする部分だけでなく、その前後も含めて読み解く必要があるという好例です。
TCF4のハプロ不全は、Pitt-Hopkins症候群(ピット・ホプキンス症候群)を起こします。2024年に報告された67例の解析では、この病気に特徴的なDNAメチル化のパターン(エピシグネチャー)が得られ、とくにハプロ不全とbHLH領域のミスセンス変異で高い検出感度を示しました[8]。ただし一部の症例は陰性で、病気の分子的な多様性も示されています。
💡 用語解説:ミスセンス変異
ミスセンス変異とは、DNAの1文字が変わることで、タンパク質を構成するアミノ酸が別のアミノ酸に置き換わる変化のことです。置き換わる場所によっては、タンパク質の形やはたらきが大きく変わり、病気の原因になります。bHLHでは、DNAを読む部分や相手と組む部分にミスセンス変異が起こると、影響が大きくなりやすいと考えられます。
MITFは色素細胞(メラノサイト)の主要な調節因子で、その変化はワーデンブルグ症候群(髪や皮膚の色、聴覚に影響が出る病気)に結び付きます。MITFは少し変わったロイシンジッパー構造を持ち、そのためにDNA結合が独特のしくみで行われます。この構造にかかわる部分の変化が、DNA結合を弱めて病気につながると考えられています。
8. がんとbHLH ─ 同じしくみが逆向きに壊れる
先天性疾患ではbHLHの「はたらきが足りなくなる」ことが問題でしたが、がんでは逆に、bHLHの「はたらきが強すぎる」「本来ないはずの場所ではたらく」ことが問題になります。同じ構造のしくみが、反対方向に壊れることで病気になる——これがbHLHの二面性です。
代表がMYCです。MYCはMAXと組んでCACGTGを認識し、細胞の増殖や代謝を強力に押し進めます[2]。MYCやMYCNが過剰にはたらくと、さまざまながんにつながります。とくにMYCNの遺伝子増幅は、小児の神経芽腫との関連が知られています。造血のところで登場したTAL1も、本来はたらかないはずの場所で異常に活性化されると、T細胞性の白血病(T-ALL)を引き起こします。
MYOD1 L122R ─ 「読む相手」が変わる新しいタイプの変異
がんとbHLHの関係で、近年とくに注目されているのがMYOD1のL122R変異です。これは、DNAを読む部分の1か所(122番目のアミノ酸がロイシンからアルギニンに変わる)に起こる変異で、悪性度の高い紡錘細胞型/硬化型横紋筋肉腫(spindle cell/sclerosing rhabdomyosarcoma)にみられます。
2026年に報告された研究では、この変異したMYOD1がMYCのようなDNAの合図を読むようになり、がん幹細胞のプログラムを活性化する一方で、本来の筋肉のプログラムの一部も保っていることが示されました[9]。さらに、この変異はROR2という受容体を介してWntシグナルの非古典的な経路(PCP経路)をオンにし、がんの幹細胞性と、抗がん剤・放射線への抵抗性を高めることも明らかになりました[9]。
💡 「読む相手が変わる」変異の意味
MYOD1 L122Rが重要なのは、単に「はたらきが弱くなった(機能喪失)」でも「はたらきが強くなった(機能獲得)」でもなく、読み取るDNAの合図そのものが別のものに変わってしまった点です。こうした「新しい読み方を獲得する」タイプの変異は、がんの成り立ちを理解するうえで、これまでの単純な分類にあてはまらない新しい概念として注目されています[9]。
先天性疾患とがんを並べてみると、同じbHLHが「足りない」方向でも「行き過ぎる」方向でも病気になることがわかります。MITFではDNA結合を壊す変化がワーデンブルグ症候群につながる一方、メラノーマではMITFのはたらきへの依存が腫瘍の生存を支えます。TWIST1でも、量が足りなければ頭蓋の病気を、成人のがんで過剰にはたらけば転移を促します。bHLHを治療の標的にするときは、単純に「止めればよい」ではなく、細胞の種類・発生の時期・遺伝子の量のバランスまで考える必要がある、ということです。
9. 遺伝診療との接点 ─ bHLHをどう読み解くか
bHLHは、遺伝診療において「用語」と「臨床」がつながる典型的な例です。TWIST1・TCF4・MITFといったbHLH遺伝子は、いずれも実際の遺伝性疾患の原因遺伝子であり、遺伝子診断や遺伝カウンセリングの対象になります。TWIST1やTCF4、MITFなどでは常染色体顕性(優性)遺伝とハプロ不全が重要な発症機序となる例があり、家族への遺伝の説明を考えるうえでも大切なポイントです。一方、TCF3の一部の病的バリアントのように、優性阻害など別の機序をとるbHLH関連疾患もあります。
また、bHLHの研究は「遺伝子の変化を、はたらきの一面だけで判断してはいけない」という視点を与えてくれます。たとえばMYOD1 L122Rのように、変化が「DNAの読み方そのものを変える」場合、単純な機能喪失として扱うと病気の本質を見誤ります[9]。遺伝子検査で見つかった変化が体にどう影響しうるかを考えるとき、その遺伝子がどんなしくみではたらくかを踏まえることが、判断材料の一つになります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。bHLHそのものは基礎研究が中心の分野ですが、その背後にあるTWIST1やTCF4などの遺伝子は、実際の診断・遺伝カウンセリングにかかわります。正確な診断と結果解釈の土台として、こうした分子のしくみを整理しています。
10. よくある誤解
誤解①「bHLHは特定の1つの遺伝子」
bHLHは1つの遺伝子の名前ではなく、多くの転写因子が共通して持つ「部品(ドメイン)の形」の名前です。MYC、MITF、MyoD、TWIST1など、100種類を超える因子がこの部品を共有しています。
誤解②「E-boxがあれば必ず結合する」
E-box(CANNTG)は代表的な合図ですが、配列があるだけでは結合先は決まりません。真ん中の塩基・周りの配列・組む相手・クロマチンの状態など、複数の要素の掛け合わせで実際の結合が決まります[4]。
誤解③「bHLHは遺伝子をオンにするだけ」
bHLHには、遺伝子を抑える方向にはたらく仲間もいます。HES1はN-boxを読んで遺伝子を抑え、自分自身の量まで抑えるフィードバックを行います。ID群は相手を捕まえて分化を止めます[5]。
誤解④「触媒でないから病気に無関係」
bHLHは酵素のように反応を起こすわけではありませんが、その変化は重い先天性疾患やがんの原因になります。TWIST1やTCF4のハプロ不全、MYOD1 L122Rなどがその例です[9]。
まとめ ─ 「配列を読む部品」から「文脈で決まるシステム」へ
bHLH(塩基性ヘリックス・ループ・ヘリックス)は、多くの転写因子が共有する「DNAを読み、相手と組む」ための部品です。かつては「E-boxに結合する転写因子」と一言で語られてきましたが、研究が進むにつれて、その理解は大きく変わってきました。実際のbHLHのはたらきは、二量体の組み合わせ・DNA配列の認識・タンパク質の動き・クロマチンへの近づきやすさ・補助因子・修飾・細胞の種類——これらすべてが掛け合わさって決まる、文脈依存のシステムなのです[4]。
この視点は、遺伝医療にとっても示唆に富みます。TWIST1やTCF4、MITFのように、bHLHの変化は実際の先天性疾患を引き起こし、MYCやMYOD1 L122Rのように、その破綻はがんへとつながります[9]。同じ分子が「足りない」方向でも「行き過ぎる」方向でも病気になるという二面性は、遺伝子の変化を読み解くときに、しくみと文脈の両方を見ることの大切さを教えてくれます。基礎研究として語られるbHLHは、じつは私たちの体づくりと病気の理解の、確かな土台になっているのです。
よくある質問(FAQ)
Q1. bHLH(塩基性ヘリックス・ループ・ヘリックス)とは何ですか?
bHLHとは、多くの転写因子(遺伝子のスイッチを操るタンパク質)が共通して持っている、DNAを読むための部品(ドメイン)のことです。塩基性領域(basic region)でDNAの合図を読み、ヘリックス・ループ・ヘリックス(HLH)で相手のタンパク質と二人一組(二量体)になります。ヒトには100種類を超えるbHLH関連の因子があり、神経・筋肉・血液・色素細胞・体内時計など、さまざまな細胞運命の決定にかかわります。
Q2. bHLHはどんなDNAの配列を読むのですか?
代表的なのはE-box(5′-CANNTG-3′)という6文字の配列です。たとえばMYC-MAXはCACGTGを高い選択性で読みます。ただし、同じE-boxでも、真ん中の塩基や周りの配列、組む相手、DNAの形、クロマチンの状態によって、どのbHLHがどれくらい強く結合するかは変わります。「配列があれば必ず結合する」という単純なものではありません。
Q3. bHLHはどんな病気と関係がありますか?
TWIST1の変化はSaethre-Chotzen症候群(ゼーツレ・コッツェン症候群)や頭蓋縫合早期癒合症、TCF4の変化はPitt-Hopkins症候群(ピット・ホプキンス症候群)、MITFの変化はワーデンブルグ症候群に関係します。TWIST1、TCF4、MITFなどでは常染色体顕性(優性)遺伝をとり、ハプロ不全が発症機序となる例があります。ただし、bHLH関連疾患のすべてがハプロ不全で起こるわけではありません。また、MYCの過剰なはたらきやMYOD1 L122R変異など、bHLH制御の破綻はがんにもつながります。
Q4. bHLHは1つの遺伝子の名前ですか?
いいえ。bHLHは1つの遺伝子ではなく、多くの転写因子が共通して持つ「部品(ドメイン)の形」の名前です。MYC、MITF、MyoD、TWIST1、TCF4など、100種類を超える別々の因子が、このbHLHという共通の部品を持っています。それぞれが組む相手や後ろにつながる部品の違いで、まったく違う役割を担っています。
Q5. MYOD1のL122R変異とは何ですか?
MYOD1という筋肉をつくるbHLHの、DNAを読む部分の1か所(122番目のアミノ酸がロイシンからアルギニンに変わる)に起こる変異です。悪性度の高い紡錘細胞型/硬化型横紋筋肉腫にみられます。2026年の研究では、この変異によりMYODがMYCのようなDNAの合図を読むようになり、がん幹細胞のプログラムを活性化して、抗がん剤や放射線への抵抗性を高めることが示されました。単なる機能の喪失ではなく「読み方が変わる」タイプの変異として注目されています。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Ellenberger T, Fass D, Arnaud M, Harrison SC. Crystal structure of transcription factor E47: E-box recognition by a basic region helix-loop-helix dimer. Genes Dev. 1994;8(8):970-980. doi:10.1101/gad.8.8.970. [PubMed 7926781]
- [2] Nair SK, Burley SK. X-ray structures of Myc-Max and Mad-Max recognizing DNA. Molecular bases of regulation by proto-oncogenic transcription factors. Cell. 2003;112(2):193-205. doi:10.1016/S0092-8674(02)01284-9. [PubMed 12553908]
- [3] Huang N, Chelliah Y, Shan Y, et al. Crystal structure of the heterodimeric CLOCK:BMAL1 transcriptional activator complex. Science. 2012;337(6091):189-194. doi:10.1126/science.1222804. [PubMed 22653727]
- [4] Michael AK, Stoos L, Crosby P, et al. Cooperation between bHLH transcription factors and histones for DNA access. Nature. 2023;619:385-393. doi:10.1038/s41586-023-06282-3. [PubMed 37407816] [RCSB PDB 8OTT]
- [5] Benezra R, Davis RL, Lockshon D, Turner DL, Weintraub H. The protein Id: a negative regulator of helix-loop-helix DNA binding proteins. Cell. 1990;61(1):49-59. doi:10.1016/0092-8674(90)90214-Y. [PubMed 2156629]
- [6] Yu X, He T, Tong Z, et al. Molecular mechanisms of TWIST1-regulated transcription in EMT and cancer metastasis. EMBO Rep. 2023;24(11):e56902. doi:10.15252/embr.202356902. [PubMed 37680145]
- [7] Zhou Y, Koelling N, Fenwick AL, et al. Disruption of TWIST1 translation by 5' UTR variants in Saethre-Chotzen syndrome. Hum Mutat. 2018;39(10):1360-1365. doi:10.1002/humu.23598. [PubMed 30040876]
- [8] van der Laan L, Lauffer P, Rooney K, et al. DNA methylation episignature and comparative epigenomic profiling for Pitt-Hopkins syndrome caused by TCF4 variants. HGG Adv. 2024;5(3):100289. doi:10.1016/j.xhgg.2024.100289. [PubMed 38571311]
- [9] Wei Y, Corchete Sánchez LA, Mathavarajah S, et al. MYOD1 mutation drives cancer stem cell pathways and therapy-resistance in spindle cell/sclerosing rhabdomyosarcoma. Nat Commun. 2026;17(1):7129. doi:10.1038/s41467-026-73546-7. [PubMed 42236477]






