

目次
- 1 1. MYOG(マイオジェニン)とは ─ 筋肉づくりの総仕上げをする遺伝子
- 2 2. MYOG遺伝子の基本情報 ─ どこにあり、どんな形か
- 3 3. 筋肉づくりの司令塔たち ─ MRFファミリーの中でのMYOG
- 4 4. MYOGタンパク質の構造 ─ DNAに結びつく仕組み
- 5 5. 細胞周期からの離脱 ─ 後戻りできない筋肉になる瞬間
- 6 6. MYOGを支配するエピジェネティクス ─ スイッチのオン・オフ
- 7 7. 筋肉のマイクロRNA ─ 後戻りを防ぐもう1つの鍵
- 8 8. 大人の筋肉での二面性 ─ 維持、萎縮、そしてサルコペニア
- 9 9. 横紋筋肉腫の診断 ─ MYOGが重要な目印になる
- 10 10. 遺伝診療との接点 ─ MYOGをどう位置づけるか
- 11 11. よくある誤解
- 12 まとめ ─ 場面で顔を変える「筋肉の司令塔」
- 13 よくある質問(FAQ)
- 14 参考文献
- 15 関連記事

📍 クイックナビゲーション
骨格筋は、もともと筋肉ではない未熟な細胞が、決まった順番で筋形成プログラムを進めることでつくられます。その最終段階を強く駆動する、いわば筋肉づくりの総仕上げを担う転写因子が、この記事でとりあげるMYOG(マイオジェニン)遺伝子です。MYOGは、筋芽細胞を成熟した筋線維へ分化させるうえで欠かせない役割を持つ一方、神経障害後の筋萎縮や、子ども・若年者に多い悪性腫瘍である横紋筋肉腫(おうもんきんにくしゅ)の病理診断とも深く関わっています。この記事では、MYOG遺伝子とは何か、どのように筋形成を制御するのか、そして病気や診断とどうつながるのかを、医学的知見に基づいて解説します。
Q. MYOG遺伝子とは何ですか?まず結論だけ知りたいです
A. MYOG(マイオジェニン)遺伝子は、骨格筋をつくるための「筋原性調節因子(MRF)」と呼ばれる4つの司令塔タンパク質のうちの1つを設計する遺伝子です。そのなかでもMYOGは、いったん筋肉になると決まった細胞(筋芽細胞)を、後戻りできない成熟した筋肉へと最終的に仕上げる、決定的なスイッチとして働きます。マウスでMYOGを失わせると、生まれた直後に重い筋肉の形成不全で死んでしまうことから、発生の段階では他の司令塔では代わりがきかない、なくてはならない遺伝子だとわかっています[2]。一方、大人になってからは、神経の障害による筋肉のやせ細りを進めるスイッチにもなり、子どものがん・横紋筋肉腫の診断でも重要な目印として使われています。
- ➤正体 → 骨格筋づくりの最終段階を駆動する、bHLH型の転写因子(遺伝子のスイッチ役)
- ➤発生での役割 → 筋芽細胞を成熟した筋線維へと仕上げる。欠けると生まれた直後に死んでしまうほど重要
- ➤大人での二面性 → ふだんは控えめだが、神経が切れると再び現れ、筋肉の分解を進めるスイッチになる
- ➤がんとのつながり → 横紋筋肉腫の診断で、タイプを見分ける最重要の目印(マーカー)になる
- ➤研究の最前線 → 筋形成・神経原性筋萎縮や、融合陽性横紋筋肉腫の転写制御機構を理解する研究対象となっている
🧬 MYOG遺伝子の基本情報
| 項目 | 内容 |
|---|---|
| 遺伝子名・読み方 | MYOG(マイオジェニン)。別名:MYF4、bHLHc3、myogenic factor 4 |
| 染色体上の位置 | 第1染色体長腕 1q32.1[3] |
| 主な識別番号 | NCBI Gene ID:4656/OMIM:159980/Ensembl:ENSG00000122180[3] |
| タンパク質の大きさ | 224アミノ酸(分子量 約25 kDa)。ヌクレオチド配列はよく似た脊椎動物どうしで高度に保存されている |
| タンパク質の種類 | 骨格筋に特異的な塩基性ヘリックス・ループ・ヘリックス(bHLH)型の転写因子 |
| 主なはたらき | 筋芽細胞を成熟した筋線維へと最終分化させる。筋肉に必要なタンパク質の遺伝子を一斉にオンにする |
| 医療との関わり | 横紋筋肉腫の診断マーカー。加齢や神経障害による筋萎縮、再生医療研究にも関与 |
※本記事はMYOG遺伝子の機能と医療との関わりを解説する記事です。特定の検査を勧めるものではありません。
1. MYOG(マイオジェニン)とは ─ 筋肉づくりの総仕上げをする遺伝子
骨格筋がつくられる過程は、筋形成(きんけいせい/myogenesis)と呼ばれます。これは、まだ筋肉になっていない中胚葉(ちゅうはいよう)由来の細胞が、まず「筋肉になる」と運命を決められて筋芽細胞(きんがさいぼう)になり、次に細胞分裂をやめて、たがいに融合しながら細長い多核の筋管(きんかん)となり、最終的に成熟した筋線維(きんせんい)へと育っていく、という何段階もの精密なプロセスです[1]。この一連の流れを指揮しているのが、筋原性調節因子(きんげんせいちょうせついんし/Myogenic Regulatory Factors:MRF)と呼ばれるタンパク質のグループです。
MRFには、MyoD(マイオディー)、Myf5(ミフ5)、MYOG(マイオジェニン)、MRF4(Myf6)という4つのメンバーがいます。この中でMYOGは、筋芽細胞をいよいよ本物の筋肉へと変身させる「終末分化(しゅうまつぶんか)」を最終的に駆動する、決定的な役割を担っています[1]。ほかのメンバーが「筋肉になると決める」段階を受け持つのに対して、MYOGは「筋肉として完成させる」段階を受け持つ、と整理するとわかりやすいかもしれません。
💡 用語解説:転写因子とは
遺伝子は、必要なときに必要な分だけ働くよう、細かくオン・オフが切り替えられています。このスイッチ役のタンパク質を「転写因子」といいます。転写因子はDNAの決まった場所にくっつき、その近くの遺伝子を「読み取りなさい(=働かせなさい)」と指示します。MYOGは、筋肉に必要なたくさんの遺伝子をまとめてオンにする転写因子です。
MYOGがどれほど大切かは、この遺伝子を失わせたマウスの実験からはっきりわかります。MYOGを働かないようにしたマウスは、胎児のあいだは育っても、生まれた直後に、全身の骨格筋がひどく足りない状態(重い筋低形成)で死んでしまいます[2]。しかも、同じMRFの仲間であるMyoDやMyf5は正常に働いているのに、それらではMYOGの穴を埋めることができません[2]。つまり、発生の段階では、MYOGは他では代わりのきかない、唯一無二の役割を持っているのです。
2. MYOG遺伝子の基本情報 ─ どこにあり、どんな形か
ヒトのMYOG遺伝子は、第1染色体の長い腕の側にある「1q32.1」という場所にあります[3]。ヒトだけでなく、多くの脊椎動物のあいだで、その配列がよく似た形で保たれています。これは、進化の長い時間のなかでも変えてはいけないほど大切な遺伝子であることを示しています。
遺伝子としてのMYOGは比較的コンパクトで、3つのエクソン(タンパク質の設計情報を担う部分)から構成されています。多くの転写因子の遺伝子とは違い、MYOGは読み方の違うバリエーション(選択的スプライシング)をほとんど持たず、基本的に1種類の成熟したmRNAから、224個のアミノ酸がつながった標準的なMYOGタンパク質がつくられます。設計図がシンプルだということは、MYOGのオン・オフが「どう読むか」ではなく「読むか読まないか」という、転写のレベルできわめて厳しく管理されていることを意味します。この厳格な管理の仕組みは、後の章でくわしく見ていきます。
💡 用語解説:エクソンとアミノ酸
遺伝子は、タンパク質の設計情報を持つ「エクソン」と、その間にはさまる「イントロン」からできています。エクソンの情報をもとに、アミノ酸という部品が数珠つなぎになってタンパク質ができあがります。MYOGの場合は、224個のアミノ酸がつながって、1つのタンパク質になります。
MYOGのプロモーター(遺伝子の読み取りが始まるスイッチ部分)やその周辺には、遺伝子の働きを統合的にコントロールするための目印が、進化のなかで大切に保たれた形で集まっています。ここには、MRF自身が結合するE-box(Eボックス)という配列や、MEF2という別の転写因子が結合する場所、さらにSix1・Six4やPbx/Meisといったタンパク質が結合する領域などが並んでいます。これらは、細胞のなかを流れるさまざまな信号を統合し、いつ・どこでMYOGを働かせるかを、正確に切り替えるスイッチボードとして機能しています。
🩺 院長コラム【「1つの遺伝子」を読む視点】
遺伝子と聞くと、多くの方は「病気の原因になるもの」を思い浮かべるかもしれません。けれどMYOGのように、体をつくる過程そのものを指揮する遺伝子もたくさんあります。こうした遺伝子は、単独で病気を起こすというより、体の設計と発生を支える基盤として働いています。
現在の医学的知見では、1つの遺伝子の意味は、どの時期に、どの組織で、どんな相手と働くかによって大きく変わります。MYOGはその好例で、発生期・成体期・がんという場面ごとに異なる働きを示します。遺伝子を「良い・悪い」で割り切らず、文脈のなかで読むという姿勢は、遺伝子検査の結果を解釈するときにも重要です。
3. 筋肉づくりの司令塔たち ─ MRFファミリーの中でのMYOG
筋形成は、いくつもの転写因子がバトンをつなぐように順番に働く「リレー」で進みます。まず胚(はい)の体節(たいせつ)から、Pax3・Pax7というタンパク質を持つ、まだ何にでもなれる前駆細胞が現れます。これらが神経管や外胚葉からの信号を受け取ると、その下流でMyf5とMyoDのスイッチが入ります。Myf5とMyoDは「筋肉になると決める」筋原性決定因子で、未熟な中胚葉の細胞を筋芽細胞へと運命づけます。この2つは役割が重なっており、片方が欠けてももう片方が肩代わりできます。
その次の段階で、MyoDやMyf5の直接の下流としてMYOGが呼び出されます。MYOGは、筋芽細胞が細胞分裂をやめ、たがいに融合して筋管をつくる段階を強く駆動し、その過程で必要な、筋肉ならではの構造タンパク質(ミオシンやトロポニンなど)の遺伝子を一斉にオンにします[1]。前の章でも触れたように、MYOGを欠いたマウスでは、MyoDやMyf5が正常に働いて筋芽細胞そのものはできるのに、最終的な仕上げが進まず、成熟した筋線維ができません[2]。これは、MYOGが発生における筋肉づくりのプログラムを「完了させる」役割を、他のMRFでは代われない形で担っていることの証明です。
MRFのなかで、MYOGは近年の研究によって、単に下流にいる遺伝子ではなく、筋肉の遺伝子を実際に「読み取れる状態」にするための、転写装置の組み立て役でもあることがわかってきました。MyoDとMYOGの両方が結合している後期の筋肉遺伝子であっても、実際に読み取りを始めるための基本的な部品(TBPやRNAポリメラーゼII)を呼び込むのはMYOGであり、MyoDだけではこの働きを代われません[1]。MYOGは、筋肉づくりの最後のひと押しを、分子のレベルで確実に実行しているのです。
4. MYOGタンパク質の構造 ─ DNAに結びつく仕組み
MYOGタンパク質は、大きく分けて3つの部分(ドメイン)からできています。前方(N末端)には遺伝子の読み取りを強める活性化領域があり、基本的な転写装置や、クロマチンをゆるめる酵素などを呼び込みます。中央には、DNAに結合し、相棒と組む核心となる塩基性ヘリックス・ループ・ヘリックス(bHLH)ドメインがあります。後方(C末端)には、進化的に保たれたらせん構造があり、こちらも読み取りの活性化に関わります。
bHLHドメインの塩基性領域は、DNAの溝にはまり込み、筋肉遺伝子のスイッチ部分にあるE-box配列(CANNTG)を狙って結合します。特徴的なのは、MYOGの塩基性領域に「Myogenic code(筋原性コード)」と呼ばれる特有のアミノ酸の並びがあることです。これは、MYOGが単にE-boxにくっつくだけでなく、すぐそばのDNAに結合するMEF2やPbx/Meisといった別の転写因子と、立体的に協力して複合体をつくるうえで重要な役割を果たします。
💡 用語解説:ヘテロ二量体(別の相手と組む)
MYOGはEタンパク質とヘテロ二量体を形成して働きます。具体的には、E12・E47・TCF3(E2A)などの「Eタンパク質」と呼ばれる、体のあちこちにある相手と2つ1組(ヘテロ二量体)を組むことで、DNAへの結びつきや遺伝子を働かせる力を大きく高めます。ちょうど、2人1組になることで初めて本来の力を発揮できるようなイメージです。
一方で、MYOGの働きにブレーキをかける相手もいます。bHLH型の抑制因子であるTwistは、MYOGの塩基性領域に直接くっついて立体的にじゃまをし、MYOGがEタンパク質と組んだりDNAに結合したりするのを妨げます。こうして、筋肉づくりを進める力と止める力のバランスが取られているのです。さらにMYOGは、リン酸化やアセチル化といった「翻訳後修飾(ほんやくごしゅうしょく)」と呼ばれる化学的な微調整を受け、細胞の外からの信号に応じて、核への移動しやすさや安定性、DNAへの結合力が細かく変えられています。
5. 細胞周期からの離脱 ─ 後戻りできない筋肉になる瞬間
MYOGが筋肉づくりを仕上げる過程では、増殖している筋芽細胞が細胞周期から離脱することが重要です。細胞が終末分化へ進むには、分裂を止める必要があります。分化刺激を受けた筋芽細胞では、MYOGの発現と並行して、サイクリン依存性キナーゼ(CDK)を抑えるp21(遺伝子名:CDKN1A)やp57(CDKN1C)が誘導され、細胞周期の停止と筋特異的な分化プログラムが協調して進みます[4]。
p21やp57はCDK活性を抑え、増殖中の筋芽細胞を細胞周期から離脱させます。マウスの実験では、p21とp57の両方を欠くと筋管形成が著しく障害され、その分化停止の段階がMYOG欠損マウスとよく似ることが示されています[4]。重要なのは、同じ研究でMYOG、p21、p57の発現は並行して起こるものの互いに独立して制御されると示されている点です[4]。したがって、p21をMYOGの単純な直接下流とみなすのではなく、細胞周期離脱とMYOG依存性の筋分化プログラムが協調して終末分化を成立させる、と理解するのが適切です。
6. MYOGを支配するエピジェネティクス ─ スイッチのオン・オフ
MYOG遺伝子がいつオンになるかは、DNAそのものの配列だけでなく、DNAの巻き付き方や、そこに付く化学的な目印によっても、何重にもコントロールされています。この仕組みをエピジェネティクスといいます。
クロマチンをゆるめる ─ SWI/SNF複合体
未熟な筋芽細胞では、筋肉づくりに関わる遺伝子のスイッチ部分は、ヌクレオソームによってきつく折りたたまれ、転写装置が近づけない「閉じた」状態にあります。この壁を破るために、MyoDが先頭に立って、ATPのエネルギーを使ってDNAの巻き付きをずらすクロマチンリモデリング複合体、SWI/SNF(特にBrg1を中心とするもの)を呼び込みます。SWI/SNFがプロモーターのDNAを露出させることで、初めてMYOGやMEF2が結合できるようになります[6]。この「地ならし」がなければ、下流の筋肉づくりのプログラムは始まりません。
MYOG自身もこのSWI/SNFと協力します。研究では、MyoDがない状態でも、MYOGとMef2Dを一緒に働かせると、Brg1に依存する形で筋肉への分化を誘導できることが示されています[7]。この結果は、MYOGがMef2Dと協調してBrg1を含むクロマチンリモデリング機構を利用し、終末分化に必要な遺伝子群を活性化することを支持します。
オフのカギとオンのカギ ─ ヒストンのメチル化
筋形成に関わる遺伝子群のスイッチは、ヒストン(DNAが巻き付くタンパク質)に付く目印によって厳密に切り替えられています。増殖中の筋芽細胞では、抑制性のヒストン修飾を担う酵素EZH2(ポリコーム抑制複合体2の一員)が、MCKやMHCIIbなど一部の筋特異的遺伝子の調節領域に結合し、H3K27メチル化を伴って転写を抑えます[5]。重要なのは、同じ研究ではMYOGプロモーター自体にはEZH2の結合やH3K27メチル化は検出されなかったことです[5]。したがって、EZH2がMYOGそのものを直接抑える、と単純化するのは正確ではありません。
一方、MYOGプロモーターでは分化に伴って、活性化の印であるH3K4me3というヒストンメチル化が増えます。PASKがWDR5をリン酸化し、MYOGプロモーターでH3K4me1から活性型H3K4me3への転換を促すことで、MyoDがアクセスしやすくなりMYOG転写が活性化される機構が報告されています[15]。つまり、筋形成では遺伝子ごとに異なるクロマチン制御が組み合わさり、MYOG自身の発現と、MYOGが後に活性化する筋特異的遺伝子群の発現が段階的に進みます。
📊 MYOGのオン・オフを決めるヒストンの目印
※これらの制御は互いに連動しながら、筋肉づくりのタイミングを正確にそろえています。
アセチル化と、そのブレーキ役HDAC
ヒストンにアセチル基が付く(アセチル化される)と、クロマチンがゆるんで遺伝子が働きやすくなります。MYOGや相棒のMEF2は、p300やCBPといったアセチル化酵素を呼び込んで筋肉遺伝子をオンにします。一方、クラスIIのヒストン脱アセチル化酵素(HDAC4、HDAC5など)はMEF2に直接くっついてその働きを抑え、筋肉づくりにブレーキをかけます。分化が進む過程では、これらのHDACがリン酸化されて核の外へ運び出されるため、ブレーキがはずれてアセチル化が進み、転写が活発になります。この「ブレーキとアクセル」の切り替えが、次に見るマイクロRNAの働きともつながっています。
7. 筋肉のマイクロRNA ─ 後戻りを防ぐもう1つの鍵
MYOGによる筋肉づくりは、クロマチンのレベルだけでなく、もっと小さな分子によっても後押しされています。それが、マイクロRNA(miRNA)と呼ばれる小さなRNAです。骨格筋で特に働くものは「myomiR(マイオミア)」と総称され、なかでもmiR-206は、脊椎動物の骨格筋にだけ現れるユニークなマイクロRNAです[8]。
細胞が分化を始めると、MYOGやMyoD、MEF2がmiR-206の遺伝子に直接結合して、その量を一気に増やします。増えたmiR-206は、筋芽細胞の増殖を促す因子や、分化を抑える因子のmRNAにくっついて、その働きを止めます[8]。
miR-206の重要な標的の1つがHDAC4です[8]。MYOGはmiR-206の発現を促し、miR-206はHDAC4の発現を抑えることが報告されています[9]。ただし、この関係は状況によって働き方が異なり、神経切断後の筋ではMYOG–miR-206–HDAC4軸が再神経支配を促す調節にも関与します。したがって、単純な「MYOGを増幅する正のフィードバック」とするより、筋分化と神経応答を調整する相互制御ネットワークとして捉える方が正確です。
8. 大人の筋肉での二面性 ─ 維持、萎縮、そしてサルコペニア
ここまでは発生期のMYOGを扱いましたが、成体のMYOGは発生期とは異なる役割を示します。発生では不可欠である一方、成体の筋肉の維持や一定の修復過程では、その必要性は相対的に小さくなります。
大人の筋肉の修復では代わりがきく
大人の骨格筋には、筋線維のそばに「サテライト細胞」という休眠中の幹細胞がいます。筋肉が傷ついたり強い運動を受けたりすると、サテライト細胞が目を覚まし、増えて分化し、新しい筋線維をつくって修復します。出生後にMYOG遺伝子を欠失させたマウスでは骨格筋の大きな形成異常を認めず[10]、さらに成体mdxマウスでMYOGを条件付き欠失させても筋再生の主要な組織学的指標は保たれることが示されています[14]。これは、発生期の「代わりがきかない」役割とは対照的に、成体ではMYOGへの依存性が低い筋維持・再生過程が存在することを示します。
神経が切れたときの「分解スイッチ」
では大人のMYOGは不要かというと、そうではありません。MYOGは、神経の障害による筋肉のやせ細り(神経原性筋萎縮)において、能動的で中心的な役割を果たします。筋肉への運動神経からの入力が絶たれると、クラスIIのHDAC(HDAC4・HDAC5)が強く増え、これがふだんMYOGを抑えているタンパク質を抑え込みます。その結果、大人の筋肉ではふだん低く抑えられているMYOGが再び現れ、はっきりと増えてきます[9]。
再び現れたMYOGは、タンパク質分解の目印をつける酵素、E3ユビキチンリガーゼであるMuRF1とAtrogin-1の遺伝子のE-boxに直接結合し、その働きをオンにします[9]。これらの酵素は、ミオシンなどの筋肉の構造タンパク質を過剰に分解させ、急速な筋萎縮を進めます。実際、大人でMYOGを取り除いたマウスでは、神経を切ってもMuRF1やAtrogin-1が増えず、筋萎縮が大きく軽くなり、筋肉の量と力が保たれることが示されています[9]。つまりMYOGは、大人では筋肉の破壊を進めるスイッチにもなり得るのです。
💡 同じ遺伝子が、正反対の役割を持つ
MYOGは、発生の段階では筋肉を「つくる」うえで不可欠な転写因子であり、成体で神経入力が失われたときには筋萎縮を促進する経路の一部として働きます。1つの遺伝子が、置かれた状況によって正反対の顔を見せる——これは、遺伝子の働きを「良い・悪い」で単純に決められないことを示す、とても印象的な例です。
加齢によるサルコペニアとの関わり
加齢に伴う筋肉量・筋力・身体機能の低下はサルコペニアと呼ばれ、その背景には神経筋接合部の変化、慢性炎症、ミトコンドリア機能低下、タンパク質代謝の変化、サテライト細胞機能の変化など複数の要因が関与します。MYOGの発現も加齢筋で変動することが報告されていますが、その変化がヒトのサルコペニアを直接引き起こす中心機序であるとまでは確立していません。運動や栄養介入はサルコペニア対策として重要ですが、MYOGの発現を正常化すること自体を確立した治療標的とみなす段階ではありません。MYOGと加齢筋の関係は、発生や神経原性筋萎縮ほど因果関係が確立した領域ではなく、研究途上のテーマとして位置づけるのが適切です。
9. 横紋筋肉腫の診断 ─ MYOGが重要な目印になる
MYOGは、基礎研究だけでなく、臨床の現場でも重要な位置を占めています。その舞台が、子どもや若い世代に多い軟部の悪性腫瘍、横紋筋肉腫(おうもんきんにくしゅ/Rhabdomyosarcoma:RMS)です。
横紋筋肉腫は、骨格筋系への分化を示す悪性腫瘍で、腫瘍細胞は未熟な筋原性細胞に似た転写プログラムを保ちながら増殖します。RMSの細胞ではMYOGやMyoDが高い頻度で発現し、この性質が病理診断における重要な筋原性分化マーカーとして利用されています[11]。ただしMYOG免疫染色だけで横紋筋肉腫の亜型やリスク群を確定するものではなく、形態、他の免疫染色、分子検査を組み合わせて診断します。
染まり方でタイプを見分ける
横紋筋肉腫には胎児型(ERMS)、胞巣型(ARMS)、紡錘形細胞/硬化性などの組織型があります。MYOGは多くのRMSで核陽性となり、古典的には胞巣型でよりびまん性で強い染色、胎児型でより不均一・斑状の染色を示す傾向が知られています[11]。しかし現在のリスク評価では、組織型だけでなくPAX3::FOXO1またはPAX7::FOXO1融合の有無が重要です。FOXO1融合陰性の胞巣型は分子学的・臨床的に胎児型に近いことがあり、融合状態は組織型より予後予測に有用とされています[13]。
🔬 MYOG染色による横紋筋肉腫タイプの見分け方
※MYOG染色は筋原性分化を確認する重要な指標ですが、亜型やリスク評価は形態所見、FOXO1融合検査などの分子所見と合わせて判断します。
MYOGの染色は、形態だけでは判断しにくい腫瘍で筋原性分化を裏づける助けになります。ただし、MYOGの染色分布だけで胎児型・胞巣型を確定することはできません。現在は、形態と免疫組織化学に加えて、FOXO1再構成などの分子所見を組み合わせることが重要で、特に治療リスクの層別化では融合状態の情報が重視されます[13]。
なぜMYOGが多いのに分化しないのか ─ PAX3-FOXO1のしわざ
胞巣型の多くを引き起こす根本原因は、融合遺伝子PAX3-FOXO1です。これは、PAX3(またはPAX7)とFOXO1という別々の遺伝子が、染色体の入れ替わり(転座)によって1つにつながり、新しいキメラ転写因子ができてしまうものです。では、なぜMYOGがたくさんあるのに、細胞は分化せずに増え続けるのか——この長年の謎は、近年のエピゲノム解析で解き明かされました。
PAX3-FOXO1は、ゲノム上の遠く離れたスイッチ領域(エンハンサー)に結合し、MYOGやMyoD、MYCNと協力して、巨大な活性化領域である「スーパーエンハンサー」を形成します[12]。さらにクロマチンを読み取るタンパク質BRD4を利用し、融合陽性RMSに特有の転写ネットワークを維持します[12]。この研究は、PAX3-FOXO1がMYOGを含む筋原性転写因子と協調しながら、正常な終末分化ではなく腫瘍性の転写回路を維持することを示しています。なお、文献[12]は「PAX3-FOXO1がMYOGによるp21誘導を直接無効化する」とまでは示していないため、そのような単純化は避ける必要があります。
💡 なぜ「スーパー」エンハンサーと呼ぶの?
エンハンサーは、離れた場所にある遺伝子の働きを強めるDNA領域です。スーパーエンハンサー(super-enhancer)は、単に「ものすごく強いエンハンサー」という意味ではなく、複数のエンハンサー領域がまとまって働き、多数の転写因子や転写を助けるタンパク質が高密度に集まる大きな制御領域を指します。一般的なエンハンサーと比べてH3K27acなどの活性化マークや転写関連因子が強く集積し、細胞の性質を決める重要な遺伝子の発現を強力に支えます。横紋筋肉腫では、PAX3-FOXO1がこうしたスーパーエンハンサーを形成・維持する転写ネットワークに関与し、腫瘍細胞特有の遺伝子発現を支えます。
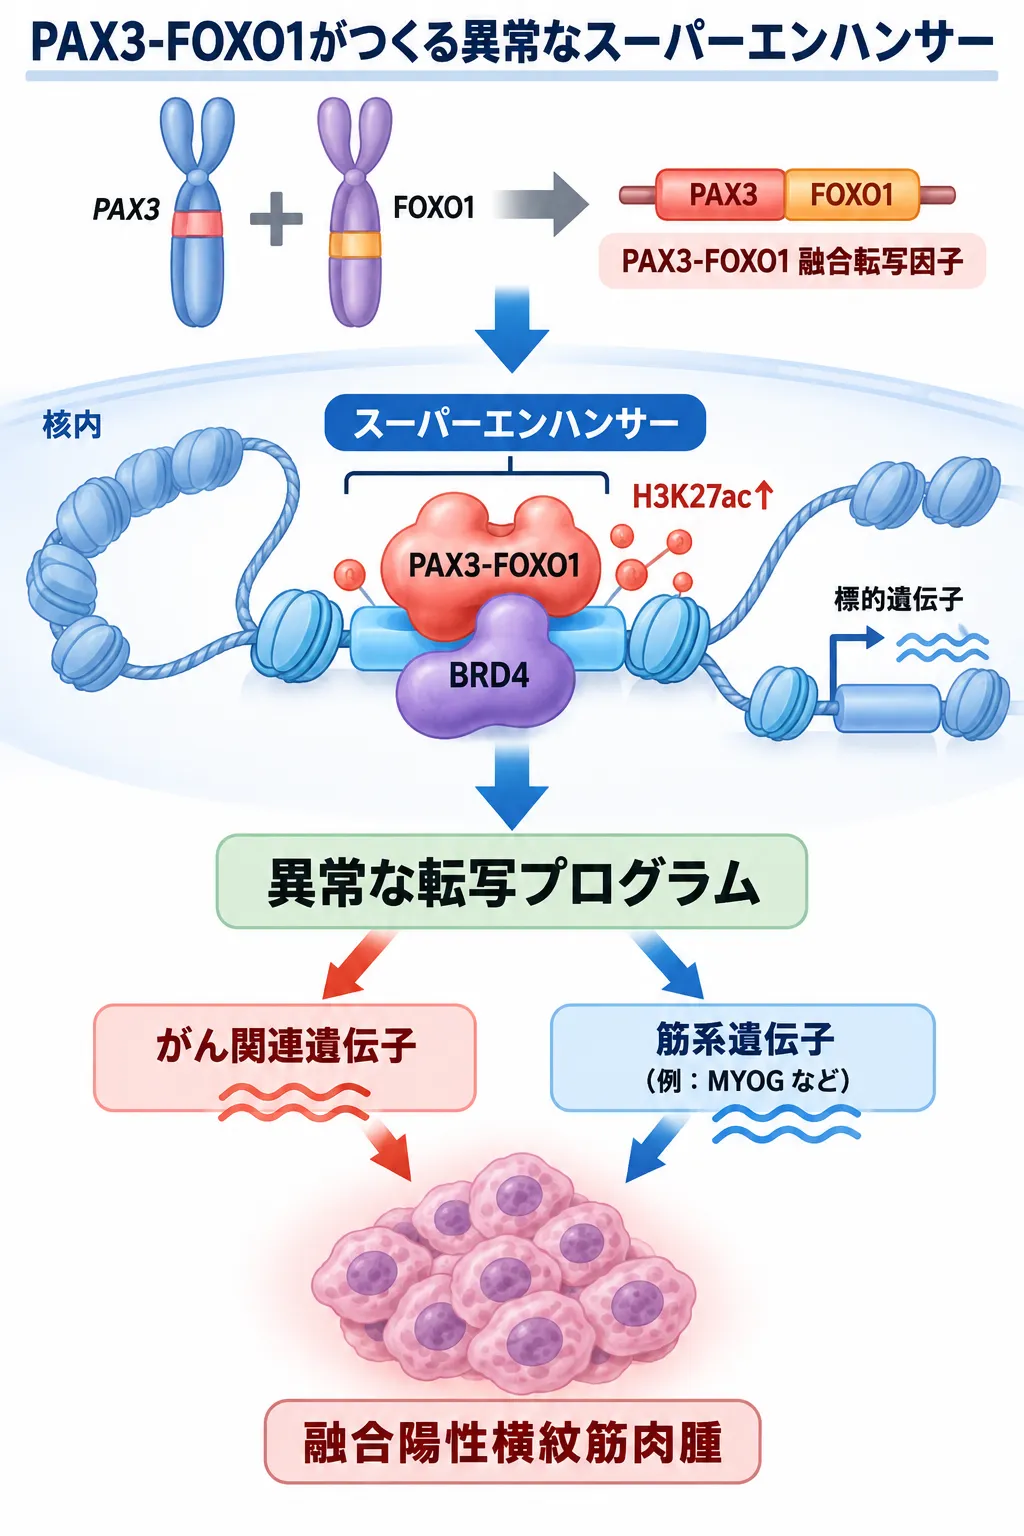
PAX3-FOXO1によるスーパーエンハンサー形成と融合陽性横紋筋肉腫の発症機序
現在、PAX3-FOXO1そのものや、その転写ネットワークを支える因子を標的とする治療研究が進められています。文献[12]では、PAX3-FOXO1がBRD4に依存することと、BETブロモドメイン阻害への感受性が示されています[12]。一方、PAX3-FOXO1を直接分解する治療については研究段階であり、標準治療として確立したものではありません。実際の治療への応用には、臨床試験を含む追加検証が必要です。
10. 遺伝診療との接点 ─ MYOGをどう位置づけるか
MYOGは、遺伝子検査で「原因遺伝子」として名前が挙がる、いわゆる単一遺伝子疾患の中心的な遺伝子ではありません。MYOGの意義は、むしろ筋肉の発生を制御する基盤として、また横紋筋肉腫の診断マーカーとしての側面が中心です。遺伝診療サイトとしては、この位置づけをはっきりさせておくことが、読者の誤解を防ぐうえで大切だと考えています。
それでも、MYOGは遺伝子の働きを読み解くうえで、いくつもの示唆を与えます。1つは、同じ遺伝子でも、時期や組織によって役割が大きく変わり得るということです。発生では筋形成を進め、成体の神経切断後では筋萎縮を促進する——この二面性は、遺伝子の機能を1つの側面だけで判断できないことを示します。もう1つは、MYOGのように「量そのものだけでなく、いつ・どこで・どんな相手と働くか」が重要な遺伝子があることです。こうした文脈依存性は、融合遺伝子や体細胞バリアントを含むがんゲノムの解釈でも重要な考え方です。
💡 用語解説:バリアント(遺伝子の変化)とは
「変異」や「バリアント」とは、遺伝子の設計図(DNAの並び)が、多くの人と異なっている状態を指します。病気につながるものもあれば、体質の個性にとどまるものもあります。ある遺伝子が見つかったからといって、すぐに病気を意味するわけではなく、その変化がタンパク質の働きにどう影響するかを、文脈のなかで丁寧に読み解くことが大切です。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのか——こうした点を、中立の立場で整理します。なおMYOGそのものは基礎研究や病理診断が中心の分野であり、日常の診療で単独に検査する対象ではありません。ここでは、遺伝子の働きをどう読み解くかという理解の土台として紹介しています。
11. よくある誤解
誤解①「MYOGは筋肉をつくるだけの遺伝子」
MYOGは筋肉づくりの司令塔ですが、それだけではありません。大人で神経が障害されると、筋肉を分解するスイッチにもなります。同じ遺伝子が、時期によって正反対の役割を持つのです。
誤解②「MyoDがあればMYOGは要らない」
発生の段階では、MyoDやMyf5が正常でも、MYOGがなければ成熟した筋線維はできません。MYOGは他では代われない「仕上げ役」です(大人の修復では代替がききます)。
誤解③「がんでMYOGが多い=分化している」
横紋筋肉腫はMYOGを多く発現しますが、MYOG陽性だからといって正常な終末分化が完了しているとは限りません。融合陽性横紋筋肉腫では、PAX3-FOXO1がMYOGなどの筋原性転写因子と協調し、正常な分化とは異なる腫瘍性の転写ネットワークを維持します。
誤解④「MYOG染色だけでRMSの亜型が決まる」
MYOGの免疫染色は、横紋筋肉腫の筋原性分化を確認する重要なマーカーです。染色パターンは組織型の推定に役立ちますが、亜型やリスク群の判断にはFOXO1融合状態などの分子検査も重要です。
まとめ ─ 場面で顔を変える「筋肉の司令塔」
MYOG(マイオジェニン)遺伝子は、まだ筋肉ではない細胞を、後戻りできない成熟した筋肉へと変える、生命のなかでも劇的なスイッチの1つです。その役割は単なる「下流の転写因子」にとどまらず、クロマチンをゆるめるSWI/SNF、抑えるEZH2、そしてマイクロRNAによるフィードバックといった、いくつもの制御が交わるハブになっています[5][6][8]。
さらにMYOGは、発生期には「筋肉をつくる」絶対の推進役でありながら、大人では「筋肉を壊す」引き金にもなるという、状況依存の二面性を持ちます[9][10]。そして横紋筋肉腫では、その一見矛盾した発現が診断の要となり、PAX3-FOXO1によるスーパーエンハンサーの異常を読み解く鍵にもなっています[12]。MYOGの働きを深く知ることは、筋肉の再生医療から、加齢による筋力低下、そして難治性がんの治療まで、幅広い医療分野の理解につながっていきます。遺伝子を1つの側面だけで判断せず、時期や組織、相手との関係のなかで読み解くこと——MYOGは、その大切さをあらためて教えてくれる遺伝子です。
よくある質問(FAQ)
Q1. MYOG(マイオジェニン)遺伝子とは何ですか?
MYOG遺伝子は、骨格筋をつくるための司令塔タンパク質のグループ「筋原性調節因子(MRF)」の1つ、マイオジェニンを設計する遺伝子です。第1染色体の1q32.1にあり、224個のアミノ酸からなるbHLH型の転写因子(遺伝子のスイッチ役)をつくります。筋芽細胞を成熟した筋線維へと最終的に仕上げる、決定的な役割を担っています。
Q2. MYOGが欠けるとどうなりますか?
マウスでMYOGを働かないようにすると、胎児のあいだは育っても、生まれた直後に、全身の骨格筋がひどく足りない状態で死んでしまいます。同じ仲間のMyoDやMyf5が正常でも、それらでは肩代わりできません。これは、発生の段階でMYOGが他では代われない、なくてはならない遺伝子であることを示しています。
Q3. MYOGは大人の筋肉でも働いていますか?
大人の筋肉では、ふだんMYOGの働きは控えめです。日常の維持やけがの修復では、他のMRFが代わりを務められることがわかっています。一方で、神経が障害されて筋肉が使われなくなると、MYOGが再び現れ、筋肉のタンパク質を分解する酵素をオンにして、筋肉のやせ細り(萎縮)を進めるスイッチになります。同じ遺伝子が、状況によって正反対の顔を見せるのが特徴です。
Q4. MYOGは横紋筋肉腫の診断とどう関わりますか?
横紋筋肉腫ではMYOGが高い頻度で発現するため、病理診断で筋原性分化を示す重要なマーカーとして使われます。胞巣型ではびまん性で強く、胎児型ではより不均一に染まる傾向がありますが、MYOG染色だけで亜型やリスク群を確定することはできません。現在はFOXO1融合状態などの分子所見も合わせて評価します。
Q5. MYOGの遺伝子検査は受けられますか?
MYOGは、単独で遺伝性の病気を起こす「原因遺伝子」として日常の診療で検査する対象ではなく、筋肉の発生を制御する基盤や、横紋筋肉腫の病理診断のマーカーとしての意義が中心です。遺伝子や染色体に関わる検査を検討している場合は、何が分かり何が分からないのかを含めて、臨床遺伝専門医による遺伝カウンセリングで整理することができます。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Adhikari A, Kim W, Davie J. Myogenin is required for assembly of the transcription machinery on muscle genes during skeletal muscle differentiation. PLoS One. 2021;16(1):e0245618. doi:10.1371/journal.pone.0245618. PMID:33465133. [PMC7815108]
- [2] Nabeshima Y, Hanaoka K, Hayasaka M, et al. Myogenin gene disruption results in perinatal lethality because of severe muscle defect. Nature. 1993;364(6437):532-535. doi:10.1038/364532a0. PMID:8393146. [PubMed 8393146]
- [3] MYOGENIN; MYOG. OMIM. [OMIM 159980]
- [4] Zhang P, Wong C, Liu D, Finegold M, Harper JW, Elledge SJ. p21CIP1 and p57KIP2 control muscle differentiation at the myogenin step. Genes Dev. 1999;13(2):213-224. doi:10.1101/gad.13.2.213. PMID:9925645. [PubMed 9925645]
- [5] Caretti G, Di Padova M, Micales B, Lyons GE, Sartorelli V. The Polycomb Ezh2 methyltransferase regulates muscle gene expression and skeletal muscle differentiation. Genes Dev. 2004;18(21):2627-2638. doi:10.1101/gad.1241904. PMID:15520282. [PubMed 15520282]
- [6] de la Serna IL, Carlson KA, Imbalzano AN. Mammalian SWI/SNF complexes promote MyoD-mediated muscle differentiation. Nat Genet. 2001;27(2):187-190. doi:10.1038/84826. PMID:11175787. [PubMed 11175787]
- [7] Ohkawa Y, Marfella CGA, Imbalzano AN. Skeletal muscle specification by myogenin and Mef2D via the SWI/SNF ATPase Brg1. EMBO J. 2006;25(3):490-501. doi:10.1038/sj.emboj.7600943. PMID:16424906. [EMBO J]
- [8] Ma G, Wang Y, Li Y, et al. MiR-206, a Key Modulator of Skeletal Muscle Development and Disease. Int J Biol Sci. 2015;11(3):345-352. doi:10.7150/ijbs.10921. PMID:25678853. [PMC4323374]
- [9] Moresi V, Williams AH, Meadows E, et al. Myogenin and class II HDACs control neurogenic muscle atrophy by inducing E3 ubiquitin ligases. Cell. 2010;143(1):35-45. doi:10.1016/j.cell.2010.09.004. PMID:20887891. [PubMed 20887891]
- [10] Knapp JR, Davie JK, Myer A, Meadows E, Olson EN, Klein WH. Loss of myogenin in postnatal life leads to normal skeletal muscle but reduced body size. Development. 2006;133(4):601-610. doi:10.1242/dev.02249. PMID:16407395. [PubMed 16407395]
- [11] Hornick JL. Novel uses of immunohistochemistry in the diagnosis and classification of soft tissue tumors. Mod Pathol. 2014;27(Suppl 1):S47-S63. doi:10.1038/modpathol.2013.177. PMID:24384853. [PubMed 24384853]
- [12] Gryder BE, Yohe ME, Chou HC, et al. PAX3-FOXO1 establishes myogenic super enhancers and confers BET bromodomain vulnerability. Cancer Discov. 2017;7(8):884-899. doi:10.1158/2159-8290.CD-16-1297. PMID:28446439. [PMC7802885]
- [13] National Cancer Institute. Childhood Rhabdomyosarcoma Treatment (PDQ®)–Health Professional Version. Updated 2025-2026. PAX3::FOXO1/PAX7::FOXO1 fusion status and molecular characteristics of rhabdomyosarcoma. [NCI PDQ]
- [14] Meadows E, Flynn JM, Klein WH. Myogenin regulates exercise capacity but is dispensable for skeletal muscle regeneration in adult mdx mice. PLoS One. 2011;6(1):e16184. doi:10.1371/journal.pone.0016184. PMID:21264243; PMCID:PMC3021523. [PubMed 21264243]
- [15] Kikani CK, et al. Pask integrates hormonal signaling with histone modification via Wdr5 phosphorylation to drive myogenesis. eLife. 2016;5:e17985. doi:10.7554/eLife.17985. PMID:27661449; PMCID:PMC5035144. [PubMed 27661449]






