

目次
- 1 1. Hairy/Enhancer of split〔E(spl)〕とは ─ 「オフにする」司令塔
- 2 2. 名前の階層 ─ Hairy・E(spl)・HES/HEY は「別物」です
- 3 3. 3つの部品 ─ bHLH・Orange・WRPW
- 4 4. Notchの「核内の出力」 ─ シグナルを遺伝子の言葉に翻訳する
- 5 5. 側方抑制 ─ 隣どうしで運命をふり分ける
- 6 6. 時間のスイッチ ─ 「振動」と「持続」で結果が変わる
- 7 7. 体節時計と脊椎肋骨異形成症 ─ 背骨を刻むリズム
- 8 8. 哺乳類のHES/HEY ─ 神経から心臓・血管まで
- 9 9. 進化 ─ 「古い道具」を組み替えて新機能を生む
- 10 10. 遺伝診療との接点 ─ この用語がなぜ臨床につながるのか
- 11 11. よくある誤解
- 12 まとめ ─ 「オフにする司令塔」が形をつくる
- 13 よくある質問(FAQ)
- 14 参考文献
- 15 関連記事

📍 クイックナビゲーション
発生のさなかにある胚では、隣り合った細胞が「どちらが神経になり、どちらが皮膚になるか」「背骨の節をいつ刻むか」を、たえず相談しながら決めています。その最終決定を核の中で下す「実行役」の一群が、Hairy/Enhancer of split〔E(spl)〕ファミリーです。ショウジョウバエで見つかったこのグループは、Notchシグナルの主要な出力として働き、ヒトでは近縁のHES/HEY遺伝子として受け継がれています。そしてHES7の異常は、背骨と肋骨の形づくりが乱れる脊椎肋骨異形成症という遺伝性疾患を引き起こします。この記事では、このファミリーの正体・しくみ・進化、そして遺伝診療とのつながりを解説します。
Q. Hairy/Enhancer of split〔E(spl)〕とは何ですか?まず結論だけ知りたいです
A. Hairy/Enhancer of split〔E(spl)〕は、bHLH(塩基性ヘリックス・ループ・ヘリックス)とOrangeという2つの部品を共有する「転写抑制因子」の一群です。他の遺伝子のスイッチをオフにすることで、細胞がいつ・どこで分化するかを制御します。Notchシグナルが細胞に届いたときの主要な「出力」であり、ヒトではHESとHEYという近縁の遺伝子群として働いています。ヒトのHES7に変化が生じると、背骨・肋骨の節づくりが乱れる脊椎肋骨異形成症4型(SCDO4)という遺伝性疾患が起こります。
- ➤正体 → bHLH+Orangeを持ち、C末端のWRPWで抑制装置を呼び込む「転写抑制因子ファミリー」
- ➤名前の階層 → Hairy・E(spl)・HES/HEYは近縁だが別物。「Hairy=HES1」のような1対1対応ではない
- ➤主な役割 → Notchの核内出力として、側方抑制(隣どうしの運命ふり分け)と体節時計(背骨のリズム刻み)を動かす
- ➤時間を読む → 量だけでなく「振動するか・持続するか」という時間パターンが運命を変える
- ➤ヒト疾患 → HES7の変異は脊椎肋骨異形成症4型(SCDO4)の原因。常染色体潜性で遺伝相談の対象になる
🧬 Hairy/Enhancer of split〔E(spl)〕の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・分類 | ヘアリー/エンハンサー・オブ・スプリット。bHLH-Orange型(bHLH-O)転写抑制因子のファミリー |
| 共通の部品 | bHLH(DNA結合・二量体化)+Orange(相手・標的の選択性)+WRPW(コリプレッサー動員) |
| 主な仲間 | ショウジョウバエの Hairy と E(spl) 複合体(7個のbHLH-O)、脊椎動物の HES1〜7・HEY1/2/L、魚類の her 遺伝子群 |
| 上流のスイッチ | 多くがNotchシグナルの直接の標的(Su(H)/RBPJ を介して転写される)[8] |
| 主なはたらき | 側方抑制(隣どうしの運命ふり分け)と体節時計(背骨・肋骨のリズム形成) |
| 医療との関わり | HES7の変異 → 脊椎肋骨異形成症4型(SCDO4)。常染色体潜性の遺伝性疾患[18] |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. Hairy/Enhancer of split〔E(spl)〕とは ─ 「オフにする」司令塔
遺伝子の多くは、必要なときにスイッチが「オン」になって働きます。ところが発生では、「今はまだ分化するな」「こっちの細胞は神経になるな」と、あえてブレーキをかける司令塔がとても重要になります。その代表が Hairy/Enhancer of split〔E(spl)〕ファミリーで、他の遺伝子の働きを抑える転写因子(正確には転写抑制因子=リプレッサー)です。
このファミリーの原点は、ショウジョウバエ研究にあります。1980年、Nüsslein-Volhard と Wieschaus は、胚の体節パターンを乱す遺伝子を大規模に探し出し、hairy を含む「pair-rule(対節)」というグループを確立しました[1](この仕事は1995年のノーベル生理学・医学賞につながります)。その後、神経のもとになる細胞の選択にかかわる Enhancer of split〔E(spl)〕複合体が、7個の独立したbHLHタンパク質をコードすることが分子的に示されました[2][3]。そして1992年、哺乳類にも同じ構造を持つ因子(HES1・HES3)が見つかり、昆虫で確立した「分化を抑える転写抑制のしくみ」が、脊椎動物研究へと橋渡しされました[4]。
💡 用語解説:転写因子と転写抑制因子(リプレッサー)
転写因子とは、DNAの特定の場所に結合して、遺伝子の「読み取り(転写)」を進めたり止めたりするタンパク質です。読み取りを進めるものを活性化因子、止めるものを抑制因子(リプレッサー)と呼びます。Hairy/E(spl) ファミリーは、後者の代表格です。「アクセル」ではなく「ブレーキ」を担う司令塔だと考えると分かりやすくなります。
2. 名前の階層 ─ Hairy・E(spl)・HES/HEY は「別物」です
このファミリーを理解するうえで、最初につまずきやすいのが名前です。よく似た名前が並ぶため混同されがちですが、Hairy、E(spl)、HES/HEY は近縁ではあっても、同じものではありません。ここを分けて考えることが、この記事のいちばんの要点です。
まず、ショウジョウバエの Hairy は E(spl) 複合体の一員ではありません。同じ bHLH-O 抑制因子の「いとこ」にあたる別の遺伝子です[2]。E(spl) 複合体のほうは、7個のbHLH-O遺伝子に加えて別系統の遺伝子も含む「遺伝子のかたまり」であり、「E(spl)複合体」全体と「E(spl)のbHLHタンパク質」は同義ではありません[2][3]。
脊椎動物では、対応する大きな系統として HES(Hairy and Enhancer of split)と HEY(Hairy/enhancer-of-split related with YRPW motif)があります[16]。ただし、「ショウジョウバエのHairy=哺乳類のHES1」「E(spl)m8=HES5」のような単純な1対1対応は成立しません。進化の過程で、古い bHLH-O 遺伝子のセットから、昆虫の系統と脊椎動物の系統がそれぞれ別々に重複・専門化を重ねてきたためです[20][21]。この点は、名前が似ているだけに、専門家でも取り違えやすいところです。
⚠️ ここが大事
名前が似ている=同じ機能、ではありません。Hairy は主に胚の体節パターン形成、E(spl) は神経前駆細胞の選択、脊椎動物の HES7 は体節時計、HEY は心臓・血管の分化——というように、共通の「分子の設計」を使いながら、担う役割は系統や遺伝子ごとに大きく異なります。
3. 3つの部品 ─ bHLH・Orange・WRPW
典型的な Hairy/E(spl)/HES タンパク質は、3つの「部品(ドメイン)」を N末端から C末端へと並べた共通の設計を持っています。まず全体像を図で見てみましょう。
① bHLH ─ DNAをつかみ、二量体になる
bHLH は、DNAを認識する「塩基性領域」と、2つのタンパク質が手を組む「ヘリックス・ループ・ヘリックス」からできています。Hairy/HES系は、Eボックスに似た「Nボックス」という配列を好んで結合し、状況によってはEボックスにも結合します。多くは、まず二量体(ダイマー)になってから標的DNAに座ります[5]。
② Orange ─ 「誰を相手に、何を抑えるか」を選ぶ
Orangeドメインは、単なる「つなぎ」ではありません。Hairy と E(spl) の Orange を実験的に入れ替えると、抑える標的(たとえば神経を促す Scute)に対する特異性まで変わってしまいます。これは、Orange が「相手選び・標的選び」を決める特異性モジュールとして働いていることを示しています[5]。DNAに結合する配列の違いだけでは説明できない、家族内の役割分担を担う部品です。
③ WRPW ─ たった4文字で「抑制装置」を呼ぶ
C末端の WRPWモチーフは、トリプトファン・アルギニン・プロリン・トリプトファンというわずか4つのアミノ酸です。1996年、Fisher・Ohsako・Caudy は、この4残基だけで転写抑制とタンパク質どうしの結合に十分であること、そして Groucho(ヒトではTLE)というコリプレッサーを標的の遺伝子まで呼び寄せることを示しました[6]。呼び込まれた Groucho/TLE は、HDAC などの抑制複合体とも連携して、遺伝子の読み取りをしっかり止めます。
💡 用語解説:コリプレッサー(Groucho/TLE)
抑制因子が「ここを止めたい」とDNA上の場所を決めても、実際に読み取りを止める装置は別に必要です。その装置をコリプレッサーといいます。Hairy/E(spl) は WRPW を「呼び出しボタン」にして Groucho/TLE を連れてきます。実際、Groucho は Hairy や E(spl) と直接結合し、神経発生や体節形成に欠かせないことが示されています[7]。
なお、HEY系の因子は WRPW ではなく、よく似た YRPWモチーフを持ち、C末端の並びも少し異なります[16]。また、抑制のしかたは Groucho だけに頼るわけではなく、bHLH と Orange を使って相手の活性化因子を直接抑える経路や、eh1モチーフなど別の呼び出しボタンを使う近縁因子もあります。Hairy/E(spl) は、標的や細胞に応じて複数の抑えかたを切り替える「足場型」の司令塔と考えるのが実態に近いといえます[5]。
4. Notchの「核内の出力」 ─ シグナルを遺伝子の言葉に翻訳する
E(spl)/HES/HEY を理解するうえで最も基本となるのが、Notch → CSL → E(spl) という流れです。Delta/Serrate(ヒトではJAG1)などのリガンドが隣の細胞の Notch受容体を活性化すると、Notchの内側の断片(NICD)が切り出されて核へ移動し、CSL〔ショウジョウバエでは Su(H)、ヒトでは RBPJ〕や Mastermind と複合体をつくって、E(spl)/HES/HEY の転写を誘導します。
ショウジョウバエでは1995年、Bailey と Posakony が、E(spl) の調節領域にある Su(H) の結合部位を壊すと Notch への応答が失われることを示し、E(spl) が Notch の「直接の」転写標的であることを証明しました[8]。ただし、E(spl) の各遺伝子は「一律のNotchスイッチ」ではありません。遺伝子ごとに Su(H) 部位の数や向き、隣接する調節配列が異なり、共通の入力に対しても別々の応答を示します。つまり側方抑制は、「Notchがオンになれば E(spl) が一様に増える」回路ではなく、Notch入力と細胞の状態を同じ調節領域で論理演算する回路とみなすほうが、実験データをよく説明します[8]。
5. 側方抑制 ─ 隣どうしで運命をふり分ける
Hairy/E(spl) の古典的な役割が、側方抑制(lateral inhibition)です。はじめは、隣り合う複数の細胞がどれも「神経になれる力」(proneural活性)を持っています。ここに Notch 活性のわずかな差が生じると、Notch がより強く入った細胞では E(spl) が誘導され、神経を促す遺伝子を抑えて皮膚(非神経)の運命へ向かいます。一方、神経になる将来の細胞はリガンドを強く出し、隣の Notch をさらに活性化する——この相互増幅のフィードバックによって、最終的に1個の神経前駆細胞だけが選ばれます。
1996年、Heitzler らは、E(spl) と Groucho が「Notchの下流・神経を促す遺伝子の上流」で働き、Notch–Delta のフィードバックを成立させることをモザイク解析で示しました[9]。この回路に沿って、E(spl) をまとめて失うと神経前駆細胞が過剰にできる一方、E(spl) を持続的に働かせると神経形成が強く抑えられます。「E(spl) は神経化のブレーキ」という役割が、増やしても減らしても表現型に表れるのです。
💡 用語解説:転写後・翻訳後の「微調整」
E(spl) の出力は、転写のオン・オフだけで決まるわけではありません。ショウジョウバエの E(spl) では、メッセンジャーRNAの末端(3′UTR)にある配列やマイクロRNA(miRNA)によってタンパク質の量が細かく調整されます。さらに、CK2 や MAPK によるリン酸化で活性が変わる例も知られています。「発現量(Notch)」と「タンパク質の状態(キナーゼ)」の両方で、出力の強さとタイミングが整えられています。
6. 時間のスイッチ ─ 「振動」と「持続」で結果が変わる
このファミリーの本質は、「Notchのオン/オフ」を伝えるだけではありません。量だけでなく「時間の使いかた」を細胞運命に翻訳する点にあります。その最良の例が、哺乳類の Hes1 です。2002年、Hirata らは、Hes1 が自分自身の遺伝子を抑える負のフィードバックと、短命なmRNA・タンパク質の組み合わせによって、約2時間周期で振動(オシレーション)することを示しました[12]。
同じ Hes1 でも、「振動」しているときは前駆細胞を未分化のまま保ち、「高いまま持続」すると分化を抑え込む——というように、時間パターンが結果を分けます。実際、Hes1 を失うと神経前駆細胞が早すぎるタイミングで分化し、細胞のプールが枯渇して神経管の形成異常が生じます[10]。逆に Hes1 を持続発現させると分化が止まります。1999年、Ohtsuka らは、Hes1 と Hes5 の二重欠損で Notch の抗神経作用が失われることを示し、この2つが哺乳類の神経分化における主要かつ冗長な Notch エフェクターであることを明らかにしました[11]。
7. 体節時計と脊椎肋骨異形成症 ─ 背骨を刻むリズム
同じ「転写抑制で時間を刻む」しくみが、背骨と肋骨づくりに転用されたのが体節時計(segmentation clock)です。胚の後方にある前体節中胚葉(PSM)では、遺伝子の発現が周期的な波のように動き、背骨の「節(体節)」が一定のリズムで切り出されていきます。1997年、Palmeirim らはニワトリ胚で c-hairy1 の発現が体節1個ぶんに対応する周期で変動することを発見し、この時計の分子的な証拠を最初に示しました[13]。
マウスでは、Hes7 が体節時計の中心です。2001年、Bessho らは Hes7 が周期的に発現し、その欠損で全身の体節形成が乱れることを示しました[14]。魚類でも、Hes7 に対応する her1/her7 の両方を欠くと、胚全体の体節パターンが乱れます[15]。「Hairy/E(spl) 系の抑制因子を周期的に使う」という設計原理は、脊椎動物で広く保存されているのです。ヒト由来の前体節中胚葉モデルでは、HES7を含む体節時計の周期は約5時間と報告されています[22][23]。
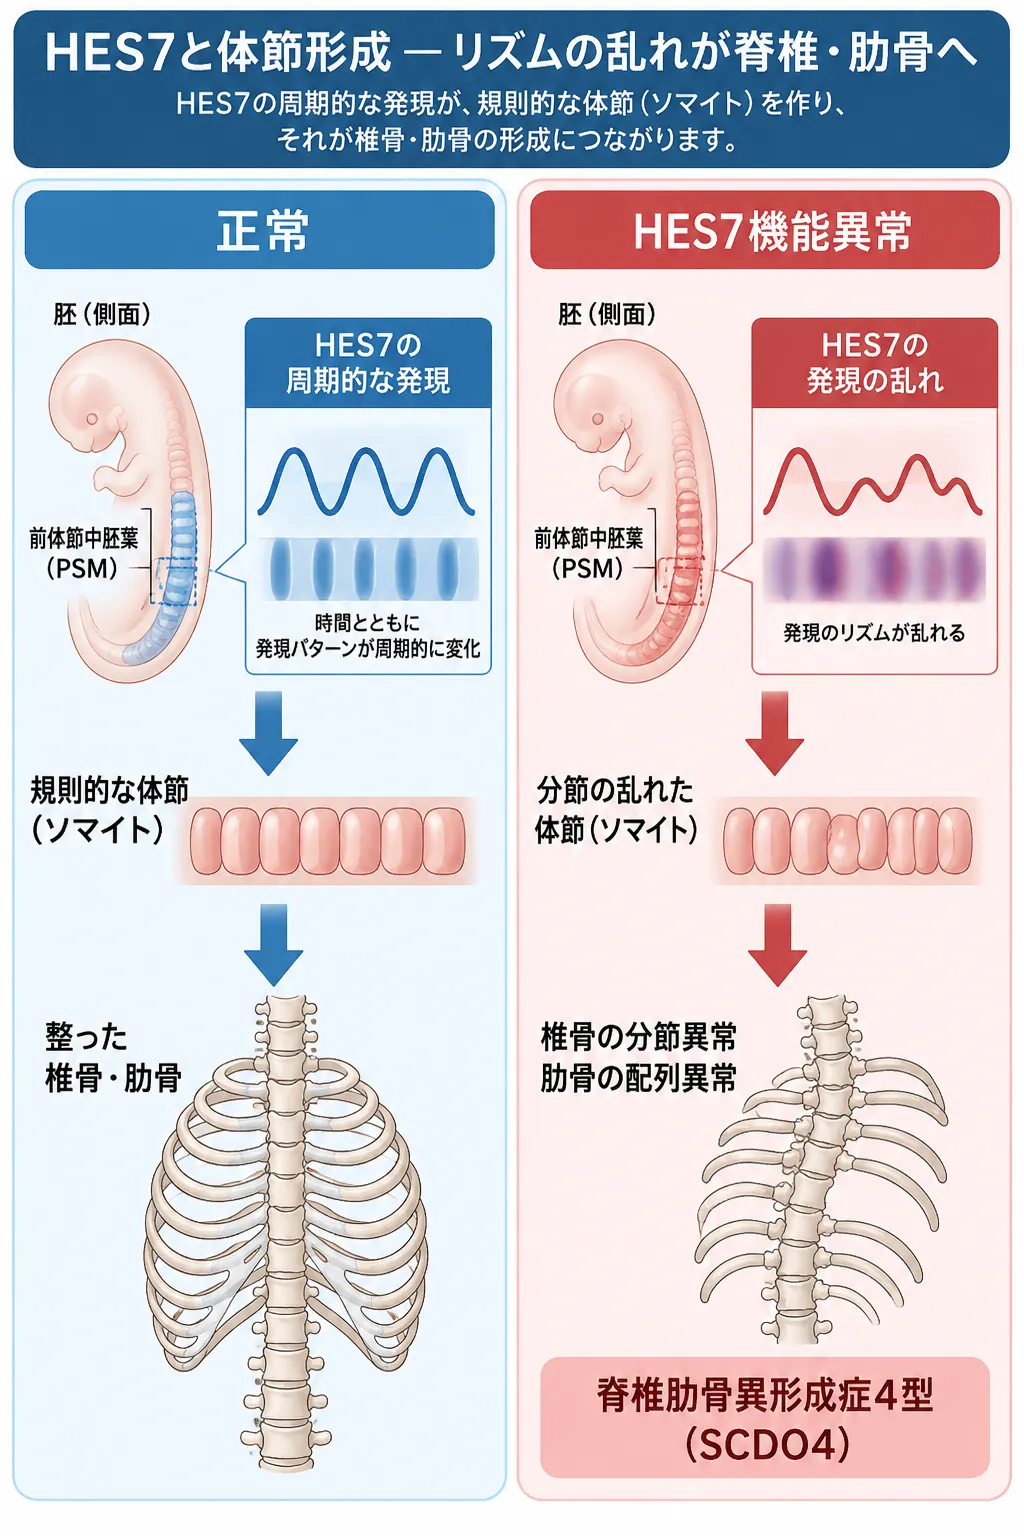
正常な胎児発生では、前体節中胚葉(PSM)におけるHES7の周期的な発現が体節時計の一部として働き、規則的な体節(ソマイト)の形成を支えます。HES7の機能異常ではこの周期的な制御と体節形成が乱れ、椎骨・肋骨の分節異常を特徴とする脊椎肋骨異形成症4型(SCDO4)につながります。
🩺 ヒトの病気とのつながり ─ 脊椎肋骨異形成症4型(SCDO4)
この体節時計が壊れると、ヒトでは背骨と肋骨の節づくりが乱れる脊椎肋骨異形成症が起こります。2008年、Sparrow らは、既知の3遺伝子(DLL3・MESP2・LFNG)に変異がない家系で、4番目のNotch経路遺伝子としてHES7の変異を同定しました。論文のタイトルはそのまま「ヒトでの Hairy-and-Enhancer-of-Split-7 の変異が脊椎肋骨異形成症を起こす」です[18]。この病型は脊椎肋骨異形成症4型(SCDO4)と呼ばれ、常染色体潜性で遺伝します。
脊椎肋骨異形成症は、歴史的にJarcho-Levin症候群という名称のもとで脊椎胸郭異骨症と一括して扱われることがありましたが、現在は脊椎肋骨異形成症(SCDO)と脊椎胸郭異骨症(STD)は区別されます。SCDOは原因遺伝子によっていくつかの型に分かれます(DLL3=SCDO1、MESP2=SCDO2、LFNG=SCDO3、HES7=SCDO4、SCDO6 など)。いずれも Notch シグナルと体節時計にかかわる遺伝子で、TBX6・RIPPLY2(Ripplyファミリー)や、LFNG の上流で働くPOFUT1 なども、この回路の重要な部品です。半椎や椎体癒合による先天性側弯症との関連でも語られます。
8. 哺乳類のHES/HEY ─ 神経から心臓・血管まで
脊椎動物では、HES/HEYファミリーが Notch の出力として幅広く使われますが、すべてが常に Notch の直接標的というわけではなく、BMP や FGF など他のシグナルとも統合されます[19]。神経系では前述の Hes1/Hes5 が中心的ですが、HEY系では役割の分化がさらに明確です。1999年に Leimeister らが同定した HEY 群(Hey1/Hey2/HeyL)は、体節・神経系に加えて心臓・血管で特徴的に発現し[16]、ヒトの HEY1/HEY2/HEYL 遺伝子も同定されています[17]。マウスでは Hey 遺伝子を組み合わせて失うと、動脈・静脈の分化や心臓中隔などに関わる心血管系の異常が現れ、進化的に保存された分子ファミリーの上に、脊椎動物特有の組織専門化が積み重なっていることがわかります[16]。
Notch経路そのものの異常は、ヒトのさまざまな遺伝性疾患としても知られています。リガンドや受容体側では、JAG1・NOTCH2 によるアラジール症候群1型・2型、NOTCH2 によるハジュ・チェニー症候群、NOTCH3 による CADASIL などがあります。Hairy/E(spl)・HES/HEY は、これらの経路の「核内の出口」にあたり、Notch を理解するうえで欠かせないピースです。
9. 進化 ─ 「古い道具」を組み替えて新機能を生む
Hairy/E(spl)・HES/HEY を進化の目で見ると、最も強く保存されているのは配列そのものより「回路の論理」です。すなわち、①bHLH-Oの抑制因子、②神経を促す活性化因子との拮抗、③Groucho/TLE型のコリプレッサー、④Notch/CSLからの入力、⑤前駆細胞の維持または二者択一の運命決定——という組み合わせが、昆虫から脊椎動物まで繰り返し使われています[20]。
一方、遺伝子そのものの数や配置は系統ごとに大きく異なります。ショウジョウバエの E(spl) 複合体は、昆虫・甲殻類の共通祖先以降に成立し、系統ごとに重複と欠失を重ねてきました[20]。脊椎動物の HES/HEY も、脊椎動物成立時のゲノム重複と魚類特異的な重複によって遺伝子ファミリーを広げました[21]。つまり、ショウジョウバエの E(spl) と脊椎動物の HES/HEY は「同じ7遺伝子セットを共通祖先から受け継いだ」のではなく、古い道具箱をそれぞれの系統で別々に増やし、専門化させたと理解するのが正確です。新しいタンパク質を作るより、古い制御因子を新しい配線と発現ダイナミクスに組み替えることで新機能を生む——このファミリーは、その好例といえます。
10. 遺伝診療との接点 ─ この用語がなぜ臨床につながるのか
Hairy/E(spl) ファミリーそのものは、発生生物学の基礎概念であり、日常の診療で直接検査する対象ではありません。しかし、この回路の理解は遺伝診療と確かにつながっています。前述のとおり、HES7 の変異は脊椎肋骨異形成症4型(SCDO4)の原因であり[18]、この病型は常染色体潜性で遺伝します。つまり、両親がともに保因者の場合、子どもに発症が伝わる確率は一般に4分の1(25%)です。血縁関係のある両親では、同じ希少な病的バリアントを共有する可能性が一般集団より高くなるため、常染色体潜性疾患の発症リスクが高くなることがあります。
遺伝診療の視点からは、このファミリーは「遺伝子の機能を、単純な足し算・引き算では判断できない」という教訓も与えてくれます。E(spl)/HES は互いに冗長で、1個だけ失っても補われることがある一方、時間パターン(振動か持続か)が変わるだけで結果が大きく変わります。こうした知見は、遺伝子検査で見つかった変化が体にどう影響しうるかを考えるときの、判断材料の一つになります。
当院では、遺伝子や染色体に関わる相談について、臨床遺伝専門医による遺伝カウンセリングを行っています。脊椎肋骨異形成症のような遺伝性疾患について、遺伝形式や再発率、検査でわかること・わからないことを整理し、選択肢を整理します。検査を受けるかどうかを含め、意思決定に必要な医学的情報を提示します。
11. よくある誤解
誤解①「Hairy=HES1だ」
名前は似ていますが、1対1の対応ではありません。Hairy・E(spl)・HES/HEY は共通の設計を持つ「いとこ」どうしで、進化の過程で別々に増えて専門化しました。担う役割も系統ごとに異なります。
誤解②「Notchのオン/オフを伝えるだけ」
単なるスイッチではありません。量だけでなく「振動するか・持続するか」という時間パターンを運命に翻訳します。Hes1の約2時間周期の振動が、その代表例です。
誤解③「基礎研究の話で臨床とは無関係」
関係します。HES7の変異は脊椎肋骨異形成症4型(SCDO4)の原因で、常染色体潜性の遺伝性疾患です。体節時計の乱れが、背骨・肋骨の形づくりに直接影響します。
誤解④「1個の遺伝子を調べれば十分」
このファミリーは互いに冗長で、1個の欠損が他の仲間に補われることがあります。だからこそ、複数の遺伝子と時間パターンをあわせて見る視点が欠かせません。
まとめ ─ 「オフにする司令塔」が形をつくる
Hairy/Enhancer of split〔E(spl)〕は、bHLH・Orange・WRPW という共通の部品を使って他の遺伝子を「オフ」にする、転写抑制因子のファミリーです。Notch の核内出力として、隣どうしの運命をふり分ける側方抑制と、背骨・肋骨のリズムを刻む体節時計を動かします。そして、その本質は単純なスイッチではなく、時間の情報を運命に翻訳する動的な制御系にあります[12]。
名前が似ているために混同されやすい Hairy・E(spl)・HES/HEY を「別物」として区別することは、この分野を正しく読むための第一歩です。そして、この基礎回路の理解は、HES7 と脊椎肋骨異形成症のように、確かに臨床遺伝学へとつながっています[18]。「働きを止める」ことが、体の形を正しくつくる——Hairy/E(spl) の研究は、そのことを鮮やかに教えてくれます。
よくある質問(FAQ)
Q1. Hairy/Enhancer of split〔E(spl)〕とは何ですか?
bHLH(塩基性ヘリックス・ループ・ヘリックス)とOrangeという部品を共有する「転写抑制因子」の一群です。他の遺伝子の読み取りをオフにすることで、細胞がいつ・どこで分化するかを制御します。ショウジョウバエで見つかり、Notchシグナルの主要な出力として働きます。脊椎動物では、近縁のHES/HEY遺伝子として受け継がれています。
Q2. Hairy と E(spl) と HES/HEY は同じものですか?
いいえ。近縁ですが別物です。ショウジョウバエのHairyはE(spl)複合体の一員ではなく、別のいとこにあたります。また「ショウジョウバエのHairy=哺乳類のHES1」のような1対1対応も成立しません。進化の過程で、昆虫と脊椎動物がそれぞれ別々に遺伝子を増やして専門化してきたためです。共通の設計を使いながら、役割は系統ごとに異なります。
Q3. WRPWモチーフとは何ですか?
Hairy/E(spl)/HES系のタンパク質のC末端にある、トリプトファン・アルギニン・プロリン・トリプトファンというわずか4つのアミノ酸の並びです。この4残基だけで、Groucho(ヒトではTLE)というコリプレッサー(抑制装置)を標的の遺伝子まで呼び寄せ、転写をしっかり止めることができます。HEY系では、よく似たYRPWモチーフに置き換わっています。
Q4. 体節時計とHES7はどう関係していますか?
体節時計は、胚の後方で遺伝子発現が周期的に波打ち、背骨の「節(体節)」を一定のリズムで切り出すしくみです。マウスではHes7がその中心で、自分自身を周期的に抑える負のフィードバックにより約2時間周期で振動します。ヒト由来の前体節中胚葉モデルではHES7を含む体節時計の周期は約5時間と報告されています。ヒトでHES7に病的バリアントが生じると、このリズムが乱れ、脊椎肋骨異形成症4型(SCDO4)という背骨・肋骨の形成異常が起こります。
Q5. HES7の変異による病気は遺伝しますか?
HES7による脊椎肋骨異形成症4型(SCDO4)は、常染色体潜性という形式で遺伝します。両親がともに保因者(片方だけに変化を持つ人)の場合、子どもに発症が伝わる確率は一般に4分の1(25%)です。血縁関係のある両親では、同じ希少な病的バリアントを共有する可能性が一般集団より高くなるため、常染色体潜性疾患の発症リスクが高くなることがあります。遺伝形式や再発率について不安がある場合は、臨床遺伝専門医による遺伝カウンセリングをご利用ください。
Q6. Hairy/E(spl)は日常の遺伝子検査で調べますか?
Hairy/E(spl)ファミリーそのものは、発生生物学の基礎概念であり、日常の診療で直接検査する対象ではありません。ただし、この回路にかかわるHES7などの遺伝子は、脊椎肋骨異形成症の原因遺伝子として検査の対象になることがあります。本記事は「遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。
🧬 遺伝性疾患の遺伝相談についてHairy/E(spl)ファミリーそのものは発生生物学の基礎概念で、日常の診療で直接検査する対象ではありません。ただし、この回路の異常が関わる脊椎肋骨異形成症などの遺伝性疾患について、遺伝形式・再発率・検査の選択肢を相談したい場合は、臨床遺伝専門医による遺伝カウンセリングをご利用いただけます。
参考文献
- [1] Nüsslein-Volhard C, Wieschaus E. Mutations affecting segment number and polarity in Drosophila. Nature. 1980;287(5785):795-801. doi:10.1038/287795a0. [PubMed 6776413]
- [2] Delidakis C, Artavanis-Tsakonas S. The Enhancer of split [E(spl)] locus of Drosophila encodes seven independent helix-loop-helix proteins. Proc Natl Acad Sci U S A. 1992;89(18):8731-8735. doi:10.1073/pnas.89.18.8731. [PMCID PMC49994; PMID 1528887]
- [3] Knust E, Schrons H, Grawe F, Campos-Ortega JA. Seven genes of the Enhancer of split complex of Drosophila melanogaster encode helix-loop-helix proteins. Genetics. 1992;132(2):505-518. doi:10.1093/genetics/132.2.505. [PMCID PMC1205152; PMID 1427040]
- [4] Sasai Y, Kageyama R, Tagawa Y, Shigemoto R, Nakanishi S. Two mammalian helix-loop-helix factors structurally related to Drosophila hairy and Enhancer of split. Genes Dev. 1992;6(12B):2620-2634. doi:10.1101/gad.6.12b.2620. [PubMed 1340473]
- [5] Dawson SR, Turner DL, Weintraub H, Parkhurst SM. Specificity for the Hairy/Enhancer of split basic helix-loop-helix (bHLH) proteins maps outside the bHLH domain and suggests two separable modes of transcriptional repression. Mol Cell Biol. 1995;15(12):6923-6931. doi:10.1128/MCB.15.12.6923. [PubMed 8524259]
- [6] Fisher AL, Ohsako S, Caudy M. The WRPW motif of the hairy-related basic helix-loop-helix repressor proteins acts as a 4-amino-acid transcription repression and protein-protein interaction domain. Mol Cell Biol. 1996;16(6):2670-2677. doi:10.1128/MCB.16.6.2670. [PMCID PMC231257; PMID 8649374]
- [7] Paroush Z, Finley RL Jr, Kidd T, et al. Groucho is required for Drosophila neurogenesis, segmentation, and sex determination and interacts directly with hairy-related bHLH proteins. Cell. 1994;79(5):805-815. doi:10.1016/0092-8674(94)90070-1. [PubMed 8001118]
- [8] Bailey AM, Posakony JW. Suppressor of Hairless directly activates transcription of Enhancer of split complex genes in response to Notch receptor activity. Genes Dev. 1995;9(21):2609-2622. doi:10.1101/gad.9.21.2609. [PubMed 7590239]
- [9] Heitzler P, Bourouis M, Ruel L, Carteret C, Simpson P. Genes of the Enhancer of split and achaete-scute complexes are required for a regulatory loop between Notch and Delta during lateral signalling in Drosophila. Development. 1996;122(1):161-171. doi:10.1242/dev.122.1.161. [PubMed 8565827]
- [10] Ishibashi M, Ang SL, Shiota K, Nakanishi S, Kageyama R, Guillemot F. Targeted disruption of mammalian hairy and Enhancer of split homolog-1 (HES-1) leads to up-regulation of neural helix-loop-helix factors, premature neurogenesis, and severe neural tube defects. Genes Dev. 1995;9(24):3136-3148. doi:10.1101/gad.9.24.3136. [PubMed 8543157]
- [11] Ohtsuka T, Ishibashi M, Gradwohl G, et al. Hes1 and Hes5 as Notch effectors in mammalian neuronal differentiation. EMBO J. 1999;18(8):2196-2207. doi:10.1093/emboj/18.8.2196. [PubMed 10205173]
- [12] Hirata H, Yoshiura S, Ohtsuka T, et al. Oscillatory expression of the bHLH factor Hes1 regulated by a negative feedback loop. Science. 2002;298(5594):840-843. doi:10.1126/science.1074560. [PubMed 12399594]
- [13] Palmeirim I, Henrique D, Ish-Horowicz D, Pourquié O. Avian hairy gene expression identifies a molecular clock linked to vertebrate segmentation and somitogenesis. Cell. 1997;91(5):639-648. doi:10.1016/S0092-8674(00)80451-1. [PubMed 9393857]
- [14] Bessho Y, Sakata R, Komatsu S, Shiota K, Yamada S, Kageyama R. Dynamic expression and essential functions of Hes7 in somite segmentation. Genes Dev. 2001;15(20):2642-2647. doi:10.1101/gad.930601. [PubMed 11641270]
- [15] Henry CA, Urban MK, Dill KK, et al. Two linked hairy/Enhancer of split-related zebrafish genes, her1 and her7, function together to refine alternating somite boundaries. Development. 2002;129(15):3693-3704. doi:10.1242/dev.129.15.3693. [PubMed 12117818]
- [16] Leimeister C, Externbrink A, Klamt B, Gessler M. Hey genes: a novel subfamily of hairy- and Enhancer of split related genes specifically expressed during mouse embryogenesis. Mech Dev. 1999;85(1-2):173-177. doi:10.1016/S0925-4773(99)00080-5. [PubMed 10415358]
- [17] Steidl C, Leimeister C, Klamt B, et al. Characterization of the human and mouse HEY1, HEY2, and HEYL genes: cloning, mapping, and mutation screening of a new bHLH gene family. Genomics. 2000;66(2):195-203. doi:10.1006/geno.2000.6200. [PubMed 10860664]
- [18] Sparrow DB, Guillén-Navarro E, Fatkin D, Dunwoodie SL. Mutation of Hairy-and-Enhancer-of-Split-7 in humans causes spondylocostal dysostosis. Hum Mol Genet. 2008;17(23):3761-3766. doi:10.1093/hmg/ddn272. [PubMed 18775957]
- [19] Kageyama R, Ohtsuka T, Kobayashi T. The Hes gene family: repressors and oscillators that orchestrate embryogenesis. Development. 2007;134(7):1243-1251. doi:10.1242/dev.000786. [PubMed 17329370]
- [20] Dearden PK. Origin and evolution of the enhancer of split complex. BMC Genomics. 2015;16:712. doi:10.1186/s12864-015-1926-1. [PubMed 26384649]
- [21] Zhou M, Yan J, Ma Z, et al. Comparative and evolutionary analysis of the HES/HEY gene family reveal exon/intron loss and teleost specific duplication events. PLoS One. 2012;7(7):e40649. doi:10.1371/journal.pone.0040649. [PubMed 22808219]
- [22] Diaz-Cuadros M, Wagner DE, Budjan C, et al. In vitro characterization of the human segmentation clock. Nature. 2020;580(7801):113-118. doi:10.1038/s41586-019-1885-9. [PubMed 31915384]
- [23] Matsuda M, Yamanaka Y, Uemura M, et al. Recapitulating the human segmentation clock with pluripotent stem cells. Nature. 2020;580(7801):124-129. doi:10.1038/s41586-020-2144-9. [PubMed 32238941]






