

目次
- 1 1. EH1モチーフとは ─ 転写因子がもつ「抑制の合図」
- 2 2. コンセンサス配列と重要残基 ─ 「FxIxxIL」の意味
- 3 3. Groucho/TLEを呼び込む仕組み ─ 遺伝子をOFFにするまで
- 4 4. 立体構造でわかったこと ─ WRPWモチーフとの違い
- 5 5. EH1をもつ転写因子ファミリー ─ 体づくりの司令塔たち
- 6 6. 進化 ─ 古いのに「変わり続ける」モジュール
- 7 7. 遺伝診療との接点 ─ 混同してはいけない「二つの疾患」
- 8 8. まだ分かっていないこと
- 9 9. よくある誤解
- 10 まとめ ─ 小さな合図が支える「抑制」の世界
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

遺伝子を「読む・読まない」のスイッチを握るのが転写因子ですが、その多くは「ここでは読まないで」という抑制(OFF)の役割も担います。ところが転写因子だけでは、その場所の遺伝子を効率よくOFFにできません。そこで登場するのが、抑制を実行する相棒(コリプレッサー)を呼び寄せるためのたった7〜8アミノ酸の短い「合図」――それがEH1モチーフ(Engrailed Homology 1)です。EngrailedやGoosecoid、Foxなど、体づくりの司令塔となる多くの転写因子が、この小さな合図を使ってGroucho/TLEというコリプレッサーを呼び込み、遺伝子を静かにします。この記事では、EH1モチーフとは何か、どうやって働き、進化の中でどう変化し、そしてヒトの遺伝性疾患とどう関わる(あるいは関わらない)のかを解説します。
Q. EH1モチーフとは何ですか?まず結論だけ知りたいです
A. EH1モチーフ(Engrailed Homology 1)とは、DNAに結合する転写因子が、転写を抑える相棒「Groucho/TLEコリプレッサー」を呼び込むために使う、7〜8アミノ酸ほどの短い配列です。この小さな合図が相棒を標的の遺伝子まで連れてくることで、その遺伝子はOFF(抑制)になります。EngrailedやGoosecoid、Foxなど、体づくりを指揮する多くの転写因子が共通して使う、古くて汎用的な「抑制のための接続部品」です。
- ➤正体 → 転写因子がコリプレッサーを呼ぶための短い配列(short linear motif; SLiM)。単独で折り畳むドメインではない
- ➤合言葉 → 最小コアは FxIxxIL。とくにN末端のフェニルアラニン(F)が最重要
- ➤結合先 → Groucho/TLEのC末端にある「7枚羽根のWD40 βプロペラ」
- ➤進化 → 動物のごく初期から存在する一方、独立獲得と消失をくり返す可塑的なモジュール
- ➤臨床の注意 → 「EH1をもつ遺伝子の病気」と「EH1そのものの異常による病気」は分けて考える必要がある
🧬 EH1モチーフの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・名称 | イーエイチワン・モチーフ/Engrailed Homology 1(エングレイルド・ホモロジー1)。「EH」は Engrailed Homology の略 |
| 正体 | 転写因子がもつ7〜8アミノ酸ほどの短い線状モチーフ(SLiM)。折り畳んだドメインではない |
| 典型的な機能 | Groucho/TLEコリプレッサーの呼び込み(転写抑制) |
| コンセンサス配列 | 最小コア F-x-I-x-x-I-L/Fox型では約8残基 FS(I/V)XXΦΦX(Φ=疎水性残基) |
| 主な結合先 | Groucho/TLE/Grg の C末端 WD40 βプロペラ(中央孔) |
| 代表的にもつ因子 | Engrailed、Goosecoid、Nkx、Msx、Fox、Odd-skipped、T-box など |
※本記事はEH1モチーフの分子生物学的な基礎と遺伝性疾患との接点を扱う用語解説です。特定の検査を勧めるものではありません。
1. EH1モチーフとは ─ 転写因子がもつ「抑制の合図」
EH1モチーフは、DNAに結合する転写因子が、転写を抑える相棒であるコリプレッサーを呼び寄せるために使う、ごく短い配列です。1996年、SmithとJaynesがショウジョウバエの Engrailed(エングレイルド) という転写因子の「抑制に必要な領域」を機能的に切り分けたとき、Engrailedだけでなく goosecoid・Nk1・Nk2・msh といったクラスのホメオタンパク質にも共通して保存された配列として定義されました[1]。名前の「EH」は Engrailed Homology(エングレイルド相同性)に由来します。当初から、単なる系統マーカーではなく、実際に遺伝子を抑える「機能単位」として見いだされた点が重要です[1]。
💡 用語解説:短鎖線状モチーフ(SLiM)
タンパク質には、しっかり折り畳まれて働く「ドメイン」のほかに、ふだんはひものように柔らかく、相手に出会ったときだけ形を整える「短い配列(short linear motif;SLiM)」があります。EH1はこのSLiMの代表例で、単独では決まった形をもたず、Groucho/TLEに結合するときに初めて短いらせん(αヘリックス)を作ると考えられています。この性質が、EH1が少しくらい配列が変わっても働ける柔軟さの源になっています。
Groucho/TLE自身はDNAに直接くっつく力を持っていません。そのため、DNAの正しい場所にコリプレッサーを連れてくる「運び手」が必要になります。その運び手が、EH1モチーフをもつ転写因子です。実際にショウジョウバエの実験では、Engrailedがコリプレッサー Groucho と会合して遺伝子を抑えること、そしてその会合がEH1領域に依存することが示されました[2]。EH1という数アミノ酸の合図が、体づくり全体のパターン形成にまでスケールアップしていくのです。
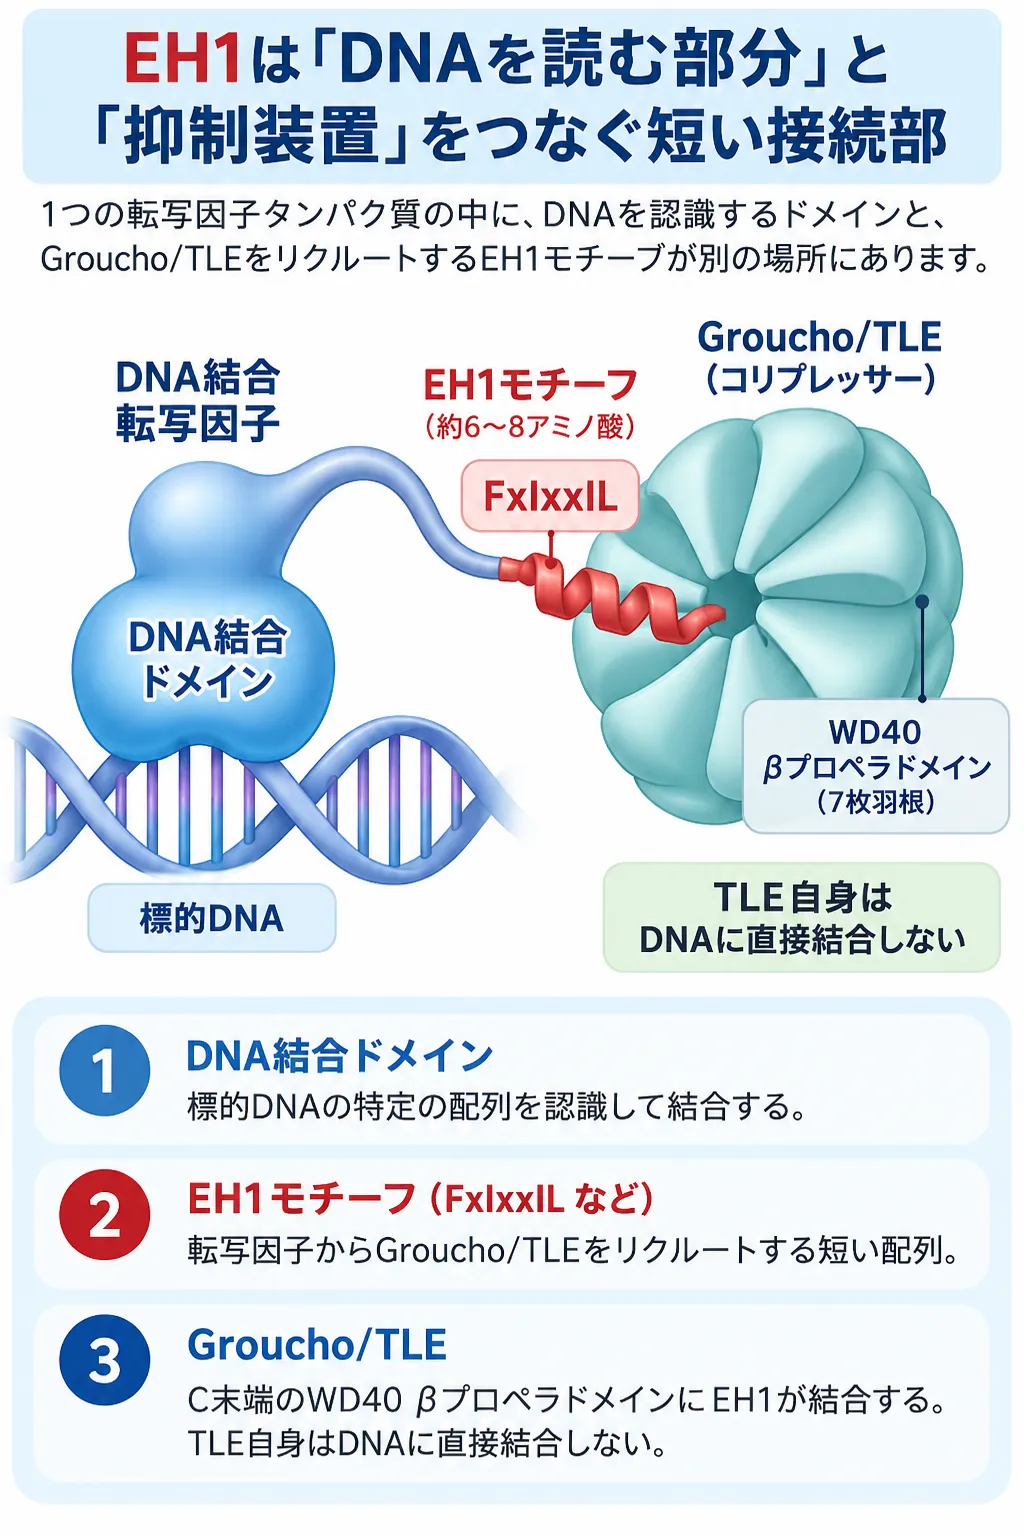
DNA結合転写因子はDNA結合ドメインで標的DNAを認識し、別の領域にあるEH1モチーフを介してGroucho/TLEコリプレッサーをリクルートします。EH1の代表的な配列FxIxxILなどは、Groucho/TLEのC末端WD40 βプロペラドメインに結合します。Groucho/TLE自体はDNAに直接結合せず、EH1をもつ転写因子を介して標的遺伝子へ動員されます。
2. コンセンサス配列と重要残基 ─ 「FxIxxIL」の意味
EH1でもっとも広く使われる最小の「合言葉」は、F-x-I-x-x-I-L と表されます(xは任意のアミノ酸)[8]。Foxファミリーまで含めて広くとらえると、約8残基の FS(I/V)XXΦΦX(Φは疎水性残基)と表現されます[11]。ただしこれは厳密な正規表現ではなく、あくまで比較のための目安です。ヒトの Goosecoid(GSC)は FSIDNILA、カエルの FoxD3 は FSIENIIG というように、実際の配列にはかなりの幅があります[11]。
重要度でいえば、まずN末端側のフェニルアラニン(F)が突出しています。ショウジョウバエのEngrailedでは、この保存されたPheを酸性アミノ酸に置き換えるだけで抑制活性が大きく低下しました[1]。次に大切なのが、その後ろに並ぶ I/L/V などの疎水性残基です。これらが一列に並んで短いらせんの「疎水面」を作り、その面でGroucho/TLEをつかまえると考えられています[11]。つまり、一次配列そのものよりも、「Fの芳香環+複数の疎水性側鎖を、立体的に一つの面へそろえて差し出せるか」が本質だといえます。
💡 用語解説:ミスセンス変異でなぜ機能が落ちるのか
ミスセンス変異とは、アミノ酸1個が別のアミノ酸に置き換わる変化のことです。EH1では、たった1個の要のフェニルアラニン(F)が酸性アミノ酸に変わるだけで、コリプレッサーとの結合面が壊れ、抑制の働きが大きく損なわれます。小さな合図だからこそ、1文字の変化が効いてしまうのです。
なお、あいだの Ser/Thr のような残基も、ただの「すき間」ではありません。Odd-skipped という因子の研究では、EH1内部の Thr を系統的に置き換えると、Groucho結合と抑制能が大きく変わることが示されました[7]。EH1は「Fと疎水残基だけ」の単純な二値コードではなく、周辺の残基によっても調整される、奥行きのある合図なのです。
3. Groucho/TLEを呼び込む仕組み ─ 遺伝子をOFFにするまで
EH1が遺伝子をOFFにするまでの流れは、次のように整理できます。まず、EH1をもつ転写因子が、標的遺伝子の エンハンサーやプロモーターにDNA結合します。次に、そのEH1ペプチドが Groucho/TLE のC末端にある7枚羽根のWD40 βプロペラに結合します。呼び込まれたGroucho/TLEは、ヒストンとの相互作用や HDAC(ヒストン脱アセチル化酵素)の動員など複数の機構を介して転写抑制に寄与します。Groucho/TLEによる抑制にはHDAC依存性・非依存性の機構があり、結果として標的遺伝子の転写が抑えられます。
ここで大切なのは、EH1が酵素のように化学反応を起こすわけではないという点です。EH1は、「DNAを認識する部品」と「クロマチンを抑える装置」を物理的につなぐアダプター(接続配列)にすぎません。だからこそ、たくさんの異なる転写因子が、同じGroucho/TLEという抑制装置に共通してアクセスできるのです。実際、ショウジョウバエの Sloppy-paired では、Groucho依存の抑制が体の前後のしま模様(pair-ruleストライプ)の位置決めを左右することが示されており、数アミノ酸の合図が胚全体の設計に効いてくることがわかります[6]。
💡 用語解説:WD40 βプロペラとは
Groucho/TLEのC末端にある構造で、7枚の羽根(ブレード)が中心に向かって並び、まるで扇風機やプロペラのように見えることから「βプロペラ」と呼ばれます。WD40リピートという繰り返し配列が折り畳まれてできており、その中央の「孔(あな)」の部分に、EH1のような短いモチーフがはまり込みます。
4. 立体構造でわかったこと ─ WRPWモチーフとの違い
EH1が実際にどうやってGroucho/TLEにはまるのかは、X線結晶構造によって明らかになりました。まず2002年、ヒトTLE1のWD40領域だけの構造(PDB:1GXR)が決定され、7枚羽根のβプロペラという受け手の形が示されました[5]。そして2006年、ヒトTLE1のWD40領域にEH1ペプチドが結合した複合体(PDB:2CE8)の構造が解かれ、EH1がβプロペラの中央孔を横切るように結合することがわかりました[9]。
図:EH1もWRPWも、Groucho/TLEのWD40 βプロペラ中央孔という「同じ表面」に結合するが、結合時の立体構造は大きく異なる(模式図)。
同じ2006年の研究では、Hairy/Hes系がもつ別の抑制モチーフ「WRPWモチーフ」がTLE1に結合した構造(PDB:2CE9)も同時に解かれました[9]。EH1とWRPWはβプロペラ中央孔の重なり合う場所を使いながら、まったく異なる形で結合します[9]。この「一つの表面で、配列の違う複数の短いモチーフを認識する」という仕組みが、なぜWRPWは配列が厳格に保存される一方、EH1は配列の許容度が高いのか、という違いをうまく説明します[9]。
🔬 EH1モチーフとWRPWモチーフの比較
| 項目 | EH1モチーフ | WRPWモチーフ |
|---|---|---|
| 代表的な配列 | F-x-I-x-x-I-L(柔軟) | Trp-Arg-Pro-Trp(厳格) |
| もつ因子 | Engrailed/Goosecoid/Pax/Nkx/Fox など | Hairy/Hes(WRPW)、Runx(関連するC末端VWRPY)など |
| 位置 | タンパク質の内部 | 多くはC末端 |
| 結合先 | どちらも Groucho/TLE の WD40 βプロペラ中央孔 | |
| 結合時の形 | 短い両親媒性αヘリックス | EH1とは別のコンフォメーション |
出典:Jennings et al. 2006(PDB 2CE8/2CE9)[9]。
この結果は、EH1を「小さなドメイン」ではなく、結合するときに初めて形を作るSLiMとして理解するうえでも重要でした。Fox配列群の解析でも、EH1は結合時に短いαヘリックスを作ると予測されています[11]。したがって、新しいEH1を探すときは「FxIxxILに一致するか」という文字列だけでなく、その配列が柔らかい領域(天然変性領域)にあって疎水面をもつらせんを作れるか、までを見る必要があります。
5. EH1をもつ転写因子ファミリー ─ 体づくりの司令塔たち
EH1が最初に見つかったのは ホメオボックスをもつ因子群(Engrailed・Goosecoid・Nkx・Msh/Msx)でしたが[1]、その後のゲノム解析で、はるかに広く分布することがわかりました。Copleyによる網羅解析では、ホメオボックスやフォークヘッド(Fox)に加え、T-box、C2H2型ジンクフィンガー、Doublesex系などにもEH1候補配列が見いだされました[6]。短いモチーフであるため、配列検索で見つかる候補のすべてが機能的EH1であるとは限りません。
とくにFoxファミリーは情報が豊富で、458個のFox配列を調べた解析では、19あるサブクラスのうち10(A・B・C・D・E・G・H・I・L・Q)にEH1様配列が検出され、海綿のような初期に分岐した動物にまで及んでいました[11]。個々の因子でも、変異を入れると結合と抑制が失われることが実験で示されています。たとえば Goosecoid のEH1領域はGroucho結合と抑制に「必要かつ十分」であり[3]、Odd-skipped[7]や FoxD3(Grg4と直接結合し、中胚葉誘導にも必要)[10]でも、モチーフ変異でGroucho/TLE結合と抑制が失われました。Pax5(BSAP)もGroucho系コリプレッサーを介して抑制を行いますが、Pax5で報告された結合はEH1ではなく、Paxの保存されたオクタペプチドモチーフとC末端領域を介するものです[4]。
⚠️ 注意:「配列が似ている」と「実際に働く」は別
EH1は短い配列なので、コンピュータ検索だけでは偽陽性(本物でないのに一致してしまう)が起こりやすいという難しさがあります。ある配列を本物のEH1と判断するには、進化的な保存性、転写因子ドメインとの位置関係、そして実際にGroucho/TLEと結合するかどうかの実験的な確認を、あわせて見る必要があります[6]。
当院サイトでは、EH1をもつ代表的な因子として MSX2遺伝子(Msx群)、NKX2-5遺伝子(NK群)、FOXG1遺伝子(Fox群)などを個別に解説しています。あわせて、WRPWモチーフをもつ Hairy/Enhancer of split〔E(spl)〕 や、その上流の Notchシグナル伝達 も参照すると、Groucho/TLEを介した抑制ネットワークの全体像がつかみやすくなります。
6. 進化 ─ 古いのに「変わり続ける」モジュール
EH1とGroucho系の起源はかなり古く、海綿・刺胞動物などの左右相称でない動物(前左右相称動物)の転写因子にもEH1様配列が見つかっています。刺胞動物にはGrouchoの相同分子も存在することから、EH1–Groucho型の抑制の仕組みは、左右相称動物が現れる前から成立していた可能性が高いと考えられます[6]。
ところが、EH1は「古いから決して失われない」モチーフではありません。短い配列であるがゆえに、独立した獲得・位置の変更・重複・消失をくり返す、進化的に可塑的なモジュールなのです。もっとも明瞭な消失例が FoxE1 です。単孔類(カモノハシ・ハリモグラ)や有袋類のFoxE1にはEH1が残っている一方、調べられた胎盤哺乳類ではすべて、共通する微小欠失によってEH1が失われていました[12]。パラログ(遺伝子重複でできたコピー)ごとに、あるものは保持し、あるものは失う――という「獲得と消失の力学」がはたらいています。
💡 用語解説:グアニン四重鎖(G-quadruplex)と複製の関係
FoxE1のEH1喪失は、単なる「選択による消失」だけでなく、DNAの物理的な性質とも結びつけて説明されています。祖先型EH1の周辺はグアニンに富み、グアニン四重鎖という特殊なDNA構造をとりやすい配列でした。実験では、この領域でDNA合成が止まる(複製の停止)ことが観察されており、こうした複製の障害が、胎盤哺乳類の祖先で微小欠失を起こしやすくした可能性が提案されています[12]。ただし、この構造が実際の欠失を「起こした」と直接観察されたわけではなく、あくまで機序モデルです。
同じような独立した消失は、Msx2/Msx3や鳥類のFoxE1でも報告されています[6][12]。EH1が重要であっても、別の抑制インターフェースや別のコファクター経路で機能が補われるなら、進化の中で取り除かれ得る――そのことを、これらの反復的な消失が示しています。EH1は「非常に古い分子インターフェースでありながら、短さゆえに柔軟に姿を変える」という、一見矛盾した二つの顔をもっているのです。
7. 遺伝診療との接点 ─ 混同してはいけない「二つの疾患」
EH1をもつ転写因子には、ヒトの発生に関わる重要な遺伝子が数多くあります。たとえば Six3 は前脳・眼の発生に関わり、その変異は 全前脳胞症と関連します。FOXE1 は甲状腺や口蓋の形成に必要で、その変異は Bamforth-Lazarus 症候群(甲状腺形成異常・口蓋裂など)と関連します。
⚠️ 最重要:「EH1をもつ遺伝子の病気」と「EH1そのものの病気」は別
ここで大きな注意が必要です。ヒトの FOXE1 は、胎盤哺乳類の系統で、すでに典型的なEH1を失っています[12]。それにもかかわらず、FOXE1変異はBamforth-Lazarus症候群を起こします。つまり、この病気を「EH1–TLE結合の異常」で説明するのは不適切です。「EH1をもつ(あるいは、もっていた)遺伝子に病気が関連すること」と、「EH1という配列そのものが壊れて病気になること」は、はっきり分けて考える必要があります。
現時点では、EH1のコア残基を直接壊すヒトの生殖細胞系列の病的変異が、立体構造・Groucho/TLE結合・患者の症状まで一貫して因果的に検証された代表例は限られています。EH1をもつ遺伝子そのものに疾患関連が知られていても、その病気が「EH1が壊れたから」起こると言えるかどうかは、別の証拠(ClinVar等の変異情報に加え、結合・抑制・発生モデルでの検証)が必要です。遺伝子検査で見つかった変化の意味を読み解くときも、この「機能単位ごとに分けて考える」姿勢が役立ちます。
🧬 遺伝子の働きと遺伝性疾患について
EH1モチーフそのものは分子生物学の基礎的な概念であり、単独で検査する対象ではありません。
EH1をもつ転写因子(Six3やFOXE1など)が関わる遺伝性疾患について遺伝学的な評価が必要と判断された場合に限り、臨床遺伝専門医による遺伝カウンセリングが関係することがあります。
この記事は用語を正しく知っていただくための解説であり、特定の検査をご案内するものではありません。
8. まだ分かっていないこと
EH1研究には、これからの課題も多く残されています。第一に、それぞれのEH1配列がGroucho/TLEにどれだけ強く結合するかという定量的なデータは、配列の多様性に比べてまだ十分に体系化されていません。第二に、翻訳後修飾による制御です。Odd-skippedの研究が示すように、EH1内の特定の Ser/Thr はGroucho結合と抑制に重要であり、そのリン酸化が結合を低下させる調節機構になり得る、という仮説が提案されています[7]。第三に、TLE1〜4や短縮型(AES/Grg5など)といったアイソフォームに対する選択性です。そして第四に、EH1とWRPWが同じ表面を奪い合うことによる、細胞核内での競合と協同性です。単離したペプチドの構造から、実際のクロマチン上での挙動へと研究を広げていくことが求められています。
9. よくある誤解
誤解①「小さいから重要ではない」
EH1はわずか7〜8アミノ酸ですが、変異させると結合喪失→抑制喪失→発生の異常まで一連の結果が実験で確かめられた、れっきとした機能単位です。小ささは無力さを意味しません。
誤解②「FxIxxILに一致すればEH1」
文字列の一致だけで判断すると偽陽性が生じます。大切なのは、保存性・柔らかい領域にあること・らせんの疎水面を作れること・実際にGroucho/TLEと結合すること、を合わせて確かめることです。
誤解③「FOXE1の病気はEH1が壊れたから」
ヒトのFOXE1は胎盤哺乳類の系統ですでにEH1を失っています。それでも病気は起こるため、Bamforth-Lazarus症候群を「EH1の異常」で説明するのは誤りです。
誤解④「古い配列だから不変」
EH1は動物の初期から存在する一方、独立した獲得・位置変更・消失をくり返す可塑的なモジュールです。「古い=ずっと同じ」ではありません。
まとめ ─ 小さな合図が支える「抑制」の世界
EH1モチーフについて最も確立している結論は、FxIxxIL を中心とする短い疎水性の配列が、Groucho/TLEのWD40 βプロペラへ転写因子を結び付け、遺伝子の抑制を可能にするという点です。この理解は、Engrailedや Goosecoid のモチーフ変異、Odd/FoxD3などの直接結合、そしてTLE1–EH1複合体(2CE8)の立体構造という、独立した複数の証拠に支えられています[1][3][9]。
EH1は、多様なDNA結合転写因子が共通のGroucho/TLE抑制装置へアクセスするために、進化の中でくり返し利用してきた小型・可塑的・進化可能なタンパク質間相互作用インターフェースです。その小ささこそが、発生制御での強力な保存機能と、系統ごとの獲得・消失という一見相反する特徴を同時に可能にしています。そして遺伝診療の視点からは、「遺伝子の機能を一つの側面だけで判断せず、機能単位ごとに、証拠に基づいて読み解く」という基本姿勢の大切さを、EH1はあらためて教えてくれます。
よくある質問(FAQ)
Q1. EH1モチーフとは何ですか?
EH1モチーフ(Engrailed Homology 1)とは、DNAに結合する転写因子が、転写を抑える相棒「Groucho/TLEコリプレッサー」を呼び込むために使う、7〜8アミノ酸ほどの短い配列(short linear motif;SLiM)です。1996年にEngrailedの保存された抑制領域として機能的に定義され、Goosecoid・Nkx・Msx・Foxなど多くの転写因子に共通して見られます。
Q2. EH1はどうやって遺伝子をOFFにするのですか?
EH1をもつ転写因子が標的遺伝子のDNAに結合し、そのEH1がGroucho/TLEのC末端にある「7枚羽根のWD40 βプロペラ」に結合します。呼び込まれたGroucho/TLEはHDACの動員など複数の機構を介して、その遺伝子の転写を抑えます。EH1自身は化学反応を起こすのではなく、DNA認識部品と抑制装置をつなぐアダプターとして働きます。
Q3. WRPWモチーフとは何が違うのですか?
どちらもGroucho/TLEのWD40 βプロペラ中央孔という「同じ表面」に結合しますが、結合時の立体構造はまったく異なります。WRPW(Hairy/Hesがもつ。Runxでは関連するC末端VWRPYモチーフ)は配列が厳格に保存されるのに対し、EH1は配列の許容度が高いのが特徴です。一つの表面で異なる形のモチーフを認識できることが、この違いを生んでいます。
Q4. FOXE1変異による病気は、EH1が壊れたことが原因ですか?
いいえ、そう単純には言えません。ヒトのFOXE1は、胎盤哺乳類の系統で進化的にすでに典型的なEH1を失っています。それでもFOXE1変異はBamforth-Lazarus症候群(甲状腺形成異常・口蓋裂など)を起こすため、この病気を「EH1–TLE結合の異常」で説明するのは適切ではありません。「EH1をもつ遺伝子の病気」と「EH1そのものの異常による病気」は、分けて考える必要があります。
Q5. EH1モチーフは検査できますか?
EH1モチーフそのものは分子生物学の基礎的な概念であり、単独の検査項目ではありません。当院ではEH1を対象とした検査は行っていません。EH1をもつ転写因子が関わる遺伝性疾患(全前脳胞症など)について遺伝学的な評価が必要な場合には、臨床遺伝専門医による遺伝カウンセリングの中で、必要な検査を検討します。
参考文献
- [1] Smith ST, Jaynes JB. A conserved region of engrailed, shared among all en-, gsc-, Nk1-, Nk2- and msh-class homeoproteins, mediates active transcriptional repression in vivo. Development. 1996;122(10):3141-3150. doi:10.1242/dev.122.10.3141. [PMC2729110/PubMed 8898227]
- [2] Jiménez G, Paroush Z, Ish-Horowicz D. Groucho acts as a corepressor for a subset of negative regulators, including Hairy and Engrailed. Genes Dev. 1997;11(22):3072-3082. doi:10.1101/gad.11.22.3072. [PMC316696/PubMed 9367988]
- [3] Jiménez G, Verrijzer CP, Ish-Horowicz D. A conserved motif in goosecoid mediates groucho-dependent repression in Drosophila embryos. Mol Cell Biol. 1999;19(3):2080-2087. doi:10.1128/MCB.19.3.2080. [PubMed 10022895]
- [4] Eberhard D, Jiménez G, Heavey B, Busslinger M. Transcriptional repression by Pax5 (BSAP) through interaction with corepressors of the Groucho family. EMBO J. 2000;19(10):2292-2303. doi:10.1093/emboj/19.10.2292. [PubMed 10811620]
- [5] Pickles LM, Roe SM, Hemingway EJ, Stifani S, Pearl LH. Crystal structure of the C-terminal WD40 repeat domain of the human Groucho/TLE1 transcriptional corepressor. Structure. 2002;10(6):751-761. doi:10.1016/S0969-2126(02)00768-2. [PubMed 12057191/PDB 1GXR]
- [6] Copley RR. The EH1 motif in metazoan transcription factors. BMC Genomics. 2005;6:169. doi:10.1186/1471-2164-6-169. [PMC1310626/PubMed 16309560]
- [7] Goldstein RE, Cook O, Dinur T, Pisanté A, Karandikar UC, Bidwai A, Paroush Z. An eh1-like motif in odd-skipped mediates recruitment of Groucho and repression in vivo. Mol Cell Biol. 2005;25(24):10711-10720. doi:10.1128/MCB.25.24.10711-10720.2005. [PubMed 16314497]
- [8] Jennings BH, Pickles LM, Wainwright SM, Roe SM, Pearl LH, Ish-Horowicz D. Molecular recognition of transcriptional repressor motifs by the WD domain of the Groucho/TLE corepressor. Mol Cell. 2006;22(5):645-655. doi:10.1016/j.molcel.2006.04.024. [PubMed 16762837/PDB 2CE8・2CE9]
- [9] Jennings BH, Pickles LM, Wainwright SM, Roe SM, Pearl LH, Ish-Horowicz D. Molecular recognition of transcriptional repressor motifs by the WD domain of the Groucho/TLE corepressor. Mol Cell. 2006;22(5):645-655. doi:10.1016/j.molcel.2006.04.024. [PubMed 16762837/PDB 2CE8・2CE9]
- [10] Yaklichkin S, Steiner AB, Lu Q, Kessler DS. FoxD3 and Grg4 physically interact to repress transcription and induce mesoderm in Xenopus. J Biol Chem. 2007;282(4):2548-2557. doi:10.1074/jbc.M607412200. [PubMed 17138566]
- [11] Yaklichkin S, Vekker A, Stayrook S, Lewis M, Kessler DS. Prevalence of the EH1 Groucho interaction motif in the metazoan Fox family of transcriptional regulators. BMC Genomics. 2007;8:201. doi:10.1186/1471-2164-8-201. [PubMed 17598915]
- [12] Sharma M, Larow VM, Dobychina N, Kessler DS, Krasilnikova MM, Yaklichkin S. The evolutionary loss of the Eh1 motif in FoxE1 in the lineage of placental mammals. PLoS One. 2023;18(12):e0296176. doi:10.1371/journal.pone.0296176. [PMC10752562/PubMed 38150428]






