

目次

「プロモーター」という言葉には、興行主・販売促進の担当者・顧客満足度の指標(NPS)などいくつもの意味がありますが、この記事で扱うのは分子生物学(遺伝子)のプロモーターです。プロモーターは、遺伝子の転写(DNAからRNAをつくる最初の段階)を始めるために欠かせない、遺伝子の上流にあるDNA領域です。ここにRNAポリメラーゼや転写因子が結合することで、「どの遺伝子を・いつ・どれくらい」働かせるかが決まります。この記事では、プロモーターの定義と位置・構造から、原核生物と真核生物の違い、エンハンサーやオペレーター・プライマーといったよく混同される用語との違い、そしてプロモーターの変化が病気にどうつながるのかまでを、臨床遺伝専門医の視点でわかりやすく解説します。
Q. プロモーターとは何ですか?まず結論だけ知りたいです
A. プロモーターとは、遺伝子の転写を開始するために必要な、遺伝子の上流(転写開始点のすぐ前)に位置するDNA領域のことです。ここにRNAポリメラーゼと基本転写因子が結合して転写が始まり、転写が始まる位置と向きが決まります。エンハンサーなどの調節エレメントと協力して、遺伝子の発現量を細かくコントロールする「遺伝子のスイッチの土台」にあたる部分です。
- ➤定義 → 転写開始に必要な、遺伝子上流のDNA領域。RNAポリメラーゼ・基本転写因子の結合部位
- ➤位置 → 転写開始点(+1)のすぐ上流。コアプロモーターは開始点の前後およそ35塩基ずつ
- ➤原核と真核の違い → 原核はσ(シグマ)因子が−35/−10配列を認識、真核は基本転写因子群を介して結合
- ➤似た用語との違い → エンハンサー・オペレーター・TATAボックス・プライマー・ターミネーターとは役割が異なる
- ➤病気とのつながり → プロモーターの変異やメチル化は遺伝子発現を変え、β-サラセミアやがんなどに関与する
🧬 プロモーターの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | プロモーター(promoter)。分子生物学では「遺伝子プロモーター」「プロモーター領域」「プロモーター配列」とも呼ばれる |
| 定義 | 遺伝子の転写開始に必要な、遺伝子上流のDNA領域。RNAポリメラーゼと転写因子が結合し、転写の開始位置・向きを決める |
| 位置 | 転写開始点(+1/TSS)のすぐ上流。コアプロモーターは転写開始点を含む、おおむね−40〜+40付近の領域[1] |
| 主な構成要素 | TATAボックス・BRE・イニシエーター(Inr)・DPEなど(いずれも一部のプロモーターにのみ存在) |
| 種類 | 恒常的プロモーター/誘導性プロモーター/組織特異的プロモーター。強さ(プロモーター強度)にも差がある |
| 医療との関わり | プロモーター領域の変異・多型やDNAメチル化が遺伝子発現を変え、遺伝性疾患やがんに関与することがある |
※本記事は一般の方と遺伝・分子生物学に関心のある方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
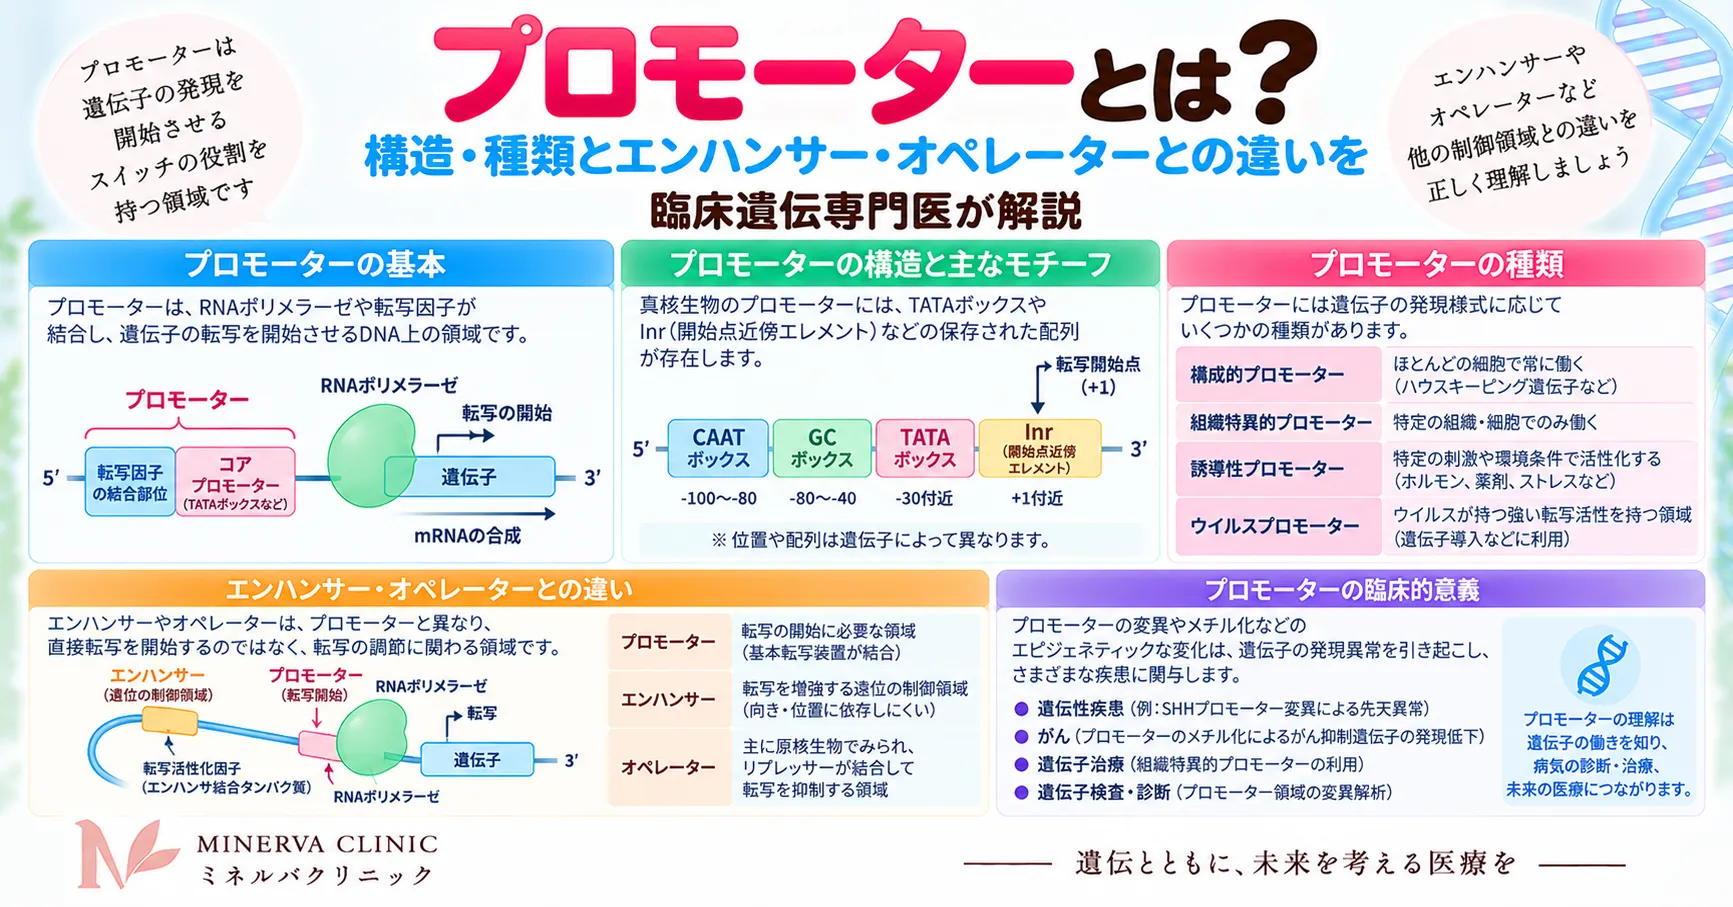
プロモーターは転写開始点の近くにあるDNA領域で、RNAポリメラーゼと転写因子による転写開始の土台になります。図では、コアプロモーターの構造と、エンハンサー・オペレーターなど関連する調節配列との違いを整理しています。
1. プロモーターとは? ─ 転写を始めるDNA領域
プロモーターとは、遺伝子の転写を開始するために必要な、遺伝子の上流(転写開始点のすぐ前)に位置するDNA領域のことです。DNAに書かれた遺伝情報は、まずセントラルドグマに従ってRNAへ写し取られます。この「DNA→RNA」の工程を転写と呼び、転写を担う酵素がRNAポリメラーゼです。RNAポリメラーゼは、やみくもにDNAに結合するわけではなく、遺伝子の直前にある「ここから読み始めなさい」という目印=プロモーターを手がかりに結合します。プロモーターは、いわば遺伝子のスタートラインにあたる配列です。
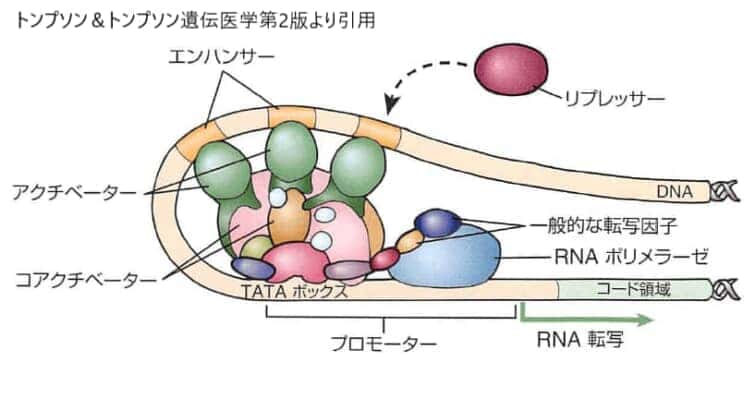
転写開始点の近くのDNA配列(プロモーター)に、基本転写因子とRNAポリメラーゼが結合して転写が始まる。遠位のエンハンサーやサイレンサーには、それぞれ特異的な転写因子が結合して転写を調節する。
プロモーターは、単なるRNAポリメラーゼの「駐車場」ではありません。ここには転写を活発にしたり抑えたりする調節タンパク質(転写因子)も結合します。そのため、同じ設計図(DNA)を持つ細胞でも、どの遺伝子のプロモーターがどれくらい使われるかによって、皮膚の細胞・神経の細胞・血液の細胞といった異なる細胞のふるまいが生まれます。特定の細胞のタイプ、発生の段階、あるいは外からの刺激に応じて遺伝子の使われ方が切り替わる——その調節の起点になるのがプロモーターです。
💡 用語解説:プロモーター領域・プロモーター配列・上流とは
「プロモーター領域」「プロモーター配列」は、いずれもプロモーターとほぼ同じ意味で使われます。「上流(じょうりゅう)」とは、転写が進む向きを川の流れにたとえたときの「川上」、つまり転写開始点よりも手前側(5′側)を指します。プロモーターは遺伝子の直上流にあり、転写開始点を含む前後の領域を占めます。DNAの並び(塩基配列)そのものが目印として働く点が特徴です。
なお、冒頭でも触れたとおり「プロモーター」という語には、興行・販売促進・NPS(ネット・プロモーター・スコア)など分子生物学とは無関係の意味も多くあります。本記事で扱うのは、あくまで遺伝子(DNA)のプロモーターです。「DNAのプロモーターとは」「生物のプロモーターとは」と検索された方は、この分子生物学的な意味で読み進めてください。
2. プロモーターの位置と構造 ─ コアプロモーターと要素
プロモーターの中心は、転写開始点の周囲にある「コアプロモーター」です。コアプロモーターは、転写開始点(+1)を含む、おおむね−40〜+40付近の領域で、RNAポリメラーゼと基本転写因子が最小限の転写を始めるために必要な部分です[1]。ここには、いくつかの決まった配列モチーフ(要素)が存在します。
コアプロモーターの主な要素
真核生物のRNAポリメラーゼIIが読む遺伝子では、コアプロモーターに次のような要素が知られています[1][2]。
| 要素 | 位置(転写開始点=+1を基準) | 特徴 |
|---|---|---|
| TATAボックス | 約−25〜−31 | コンセンサス配列はTATA(A/T)A(A/T)。基本転写因子TFIIDのTBP(TATA結合タンパク質)が結合する |
| BRE | TATAボックスの上流側 | TFIIB認識配列。一部のTATAボックスの上流に付随する |
| イニシエーター(Inr) | 転写開始点そのもの(+1周辺) | 最も高頻度に見られる要素。転写の開始位置の目印になる |
| DPE | Inrの+28〜+32 | 下流コアプロモーター要素。TATAレスのプロモーターで重要な役割を果たす |
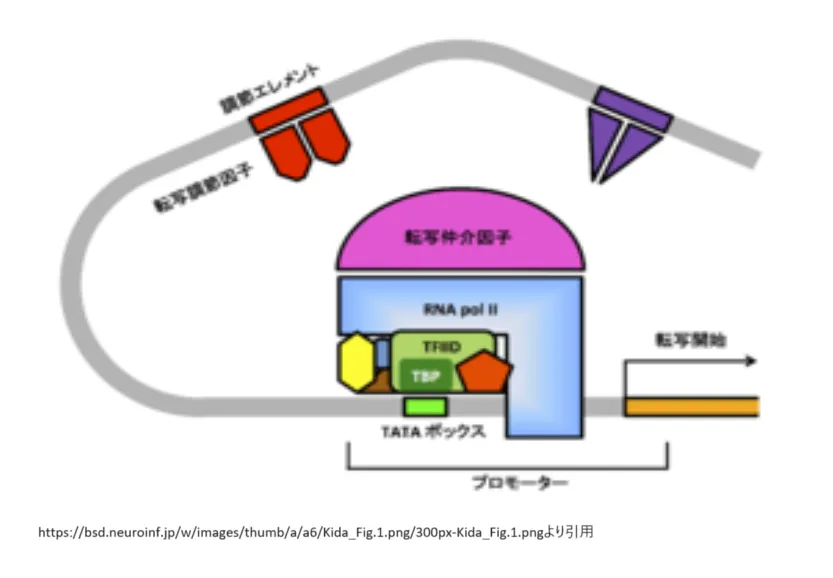
TATAボックスは真核生物のコアプロモーターに見られる代表的な要素で、TFIIDのサブユニットであるTBPが結合して転写開始点の目印になる。
⚠️ よくある誤解
「すべてのプロモーターにTATAボックスがある」というのは誤りです。TATAボックス・BRE・Inr・DPEなどの要素は、それぞれ一部のプロモーターにのみ存在し、あるプロモーターがこれらをすべて持つことも、まったく持たないこともあります[1]。TATAボックスを持たない「TATAレスプロモーター」も多く、そうしたプロモーターはGCに富む配列(CpGアイランド)を伴い、複数の転写開始点を持つことが少なくありません。ハウスキーピング遺伝子(どの細胞でも常に必要な遺伝子)に多いタイプです。
TATAボックスとそれを認識するTBPは、真核生物だけでなく古細菌にも共通して存在する、進化的にとても古い仕組みです[2]。転写の開始をどこで行うかという問題は、生命がごく初期から抱えてきた共通の課題だったことがうかがえます。コアプロモーターの上流には、さらに転写因子が結合する調節エレメント(近位プロモーター要素など)が続き、転写の強さを細かく調整します。
3. 原核生物と真核生物のプロモーターの違い
大きな違いは、RNAポリメラーゼがプロモーターを「直接」認識するか、「基本転写因子を介して」認識するかです。原核生物(大腸菌など)ではσ(シグマ)因子を伴ったRNAポリメラーゼが直接プロモーターに結合しますが、真核生物では複数の基本転写因子が先に集まってから、RNAポリメラーゼが動員されます。高校生物や大学初年次で学ぶ「プロモーター」も、この原核・真核の対比が理解の中心になります。
原核生物のプロモーター(−35/−10ボックスとσ因子)
原核生物のプロモーターには、転写開始点の上流に2つの重要な配列があります[3][4]。1つは−35領域(コンセンサス配列 TTGACA)で、主にσ因子がここを認識します。もう1つは−10領域(Pribnowボックス、コンセンサス配列 TATAAT)で、ここでDNAの二重らせんがほどけて「転写バブル」ができます。RNAポリメラーゼの本体(コア酵素)にσ因子が結合したものをホロ酵素と呼び、これがプロモーターを見つけて転写を始めます。転写開始後、RNAポリメラーゼがプロモーターを離れて伸長段階へ移行する過程で、σ因子との相互作用は大きく変化します。σ因子は必ずしも直ちに完全解離するわけではなく、一定距離までRNAポリメラーゼに残る場合もあります。
💡 用語解説:コンセンサス配列とσ因子
コンセンサス配列とは、多くのプロモーターを比べたときに「最も現れやすい平均的な並び」のことです。実際のプロモーターは6塩基のうち3〜4塩基しか一致しないことも多く、コンセンサスに近いほど強いプロモーター(転写が起こりやすい)になります。σ因子は、RNAポリメラーゼにプロモーターを正しく認識させる「案内役」で、種類を変えることで、環境やストレスに応じた別のプロモーター群を選んで働かせることができます。
真核生物のプロモーター(基本転写因子を介する)
真核生物では、RNAポリメラーゼが単独でプロモーターに結合することはできません。RNAポリメラーゼにはⅠ・Ⅱ・Ⅲの3種類があり、それぞれ担当する遺伝子とプロモーターが異なります。タンパク質をコードする遺伝子を転写するRNAポリメラーゼⅡの場合、TATAボックスなどのコアプロモーター要素に基本転写因子が順に集まって「転写開始前複合体」を作り、そこへRNAポリメラーゼⅡが動員されて初めて転写が始まります(詳しくは次章)。
オペロンとオペレーター(原核生物の発現調節)
原核生物では、関連する複数の遺伝子がひとまとまりで転写されるオペロンという仕組みがよく知られています。1961年にジャコブとモノーが提唱したラクトースオペロンでは、プロモーターのすぐ近く(一部重なる位置)にオペレーターという配列があり、ここにリプレッサー(抑制タンパク質)が結合するとRNAポリメラーゼが邪魔されて転写が止まります(負の制御)[6]。ラクトースがあるとその代謝産物がリプレッサーを外し、転写が始まります。プロモーターが「結合の場所」であるのに対し、オペレーターは「オン・オフを切り替える制御点」である——この役割の違いは、次章の用語整理でもう一度取り上げます。
4. 転写基本因子とRNAポリメラーゼ
真核生物のプロモーターでは、RNAポリメラーゼⅡが働く前に「基本転写因子」と呼ばれる一群のタンパク質が必要です。RNAポリメラーゼⅡによる転写には、TFIIA・TFIIB・TFIID・TFIIE・TFIIF・TFIIHの6種類の基本転写因子が関与します。これらがコアプロモーター上に順に集まって転写開始前複合体(PIC)を形成し、転写の正確な開始を可能にします。
| 基本転写因子 | 主なはたらき |
|---|---|
| TFIID | TATAボックスやInr、DPEなどのコアプロモーター要素を認識する中心的因子。TBP(TATA結合タンパク質)とTAF(TBP関連因子)から構成される |
| TFIIA | TBPとTATAボックスの結合を安定化する |
| TFIIB | TFIIDと相互作用し、RNAポリメラーゼⅡを転写開始点に正しく配置する |
| TFIIE | TFIIHの働きを調節し、転写開始に必要なDNAの開裂を助ける |
| TFIIF | RNAポリメラーゼⅡのプロモーターへの結合を安定化し、その後の伸長を助ける |
| TFIIH | ヘリカーゼ活性でDNAを開き、RNAポリメラーゼⅡのC末端ドメイン(CTD)をリン酸化して転写開始を促す |
TFIIDの中心にあるTBPがTATAボックスを認識することが、真核生物の転写開始の第一歩になります[1]。基本転写因子は、後で述べるエンハンサーやサイレンサーに結合する転写調節因子とも相互作用し、転写の活性化・抑制を細かく制御しています。転写のしくみをより広い文脈で知りたい方は、転写の概論や遺伝子発現の全体像もあわせてご覧ください。
5. プロモーターと混同されやすい用語の違い
プロモーターは「転写を始める土台となるDNA領域」であり、位置・作用・必須性の観点でよく似た用語と区別できます。ここでは、検索でも質問が多い5つの用語との違いを整理します。
| 用語 | 正体 | プロモーターとの違い |
|---|---|---|
| エンハンサー | 転写を増強するDNA領域 | プロモーターは開始点近傍で必須。エンハンサーは遠く離れていても働き、古典的には位置や向きへの依存性が低い調節配列として定義され、転写を増強する |
| サイレンサー | 転写を抑制するDNA領域 | プロモーターやエンハンサーとは逆に、転写を抑える調節エレメント |
| オペレーター | リプレッサーが結合する配列(原核) | プロモーターは結合の「場所」。オペレーターはオン・オフを切り替える「制御点」 |
| TATAボックス | コアプロモーター内の一要素 | TATAボックスはプロモーターの一部(包含関係)。プロモーター>TATAボックス |
| プライマー | 核酸合成の起点となる短い核酸 | プロモーターはDNA領域。プライマーはDNA複製やPCRで使う短い核酸で、まったく別の概念 |
エンハンサー・サイレンサーとの違い
最も質問が多いのがエンハンサーとの違いです。プロモーターが転写開始点のすぐ近くにあり、転写に必須であるのに対し、エンハンサーは標的の遺伝子から数十キロ塩基以上離れていることがあり、古典的には位置・向きへの依存性が低く、離れた位置からも転写を増強する調節配列として定義されます[5]。離れたエンハンサーがどうやってプロモーターに作用するかというと、間のDNAがループ(輪)を作って両者が物理的に近づく、というのが主要な考え方です。このループ形成には、コヒーシン・CTCF・メディエーターといったタンパク質が関わります[5]。一方のサイレンサーは、逆に転写を抑える配列です。プロモーター・エンハンサー・サイレンサーはいずれも、同じDNA分子上で働くシスエレメント(調節エレメント)の仲間です。
💡 補足:エンハンサーとプロモーターの距離作用
エンハンサーが遠くから働く仕組みは、DNAループが主要と考えられていますが、唯一・確定した機構ではありません。近年は「転写ハブ」など複数のモデルが提案されており、エンハンサーの種類や状況によって仕組みが異なる可能性が議論されています[5]。
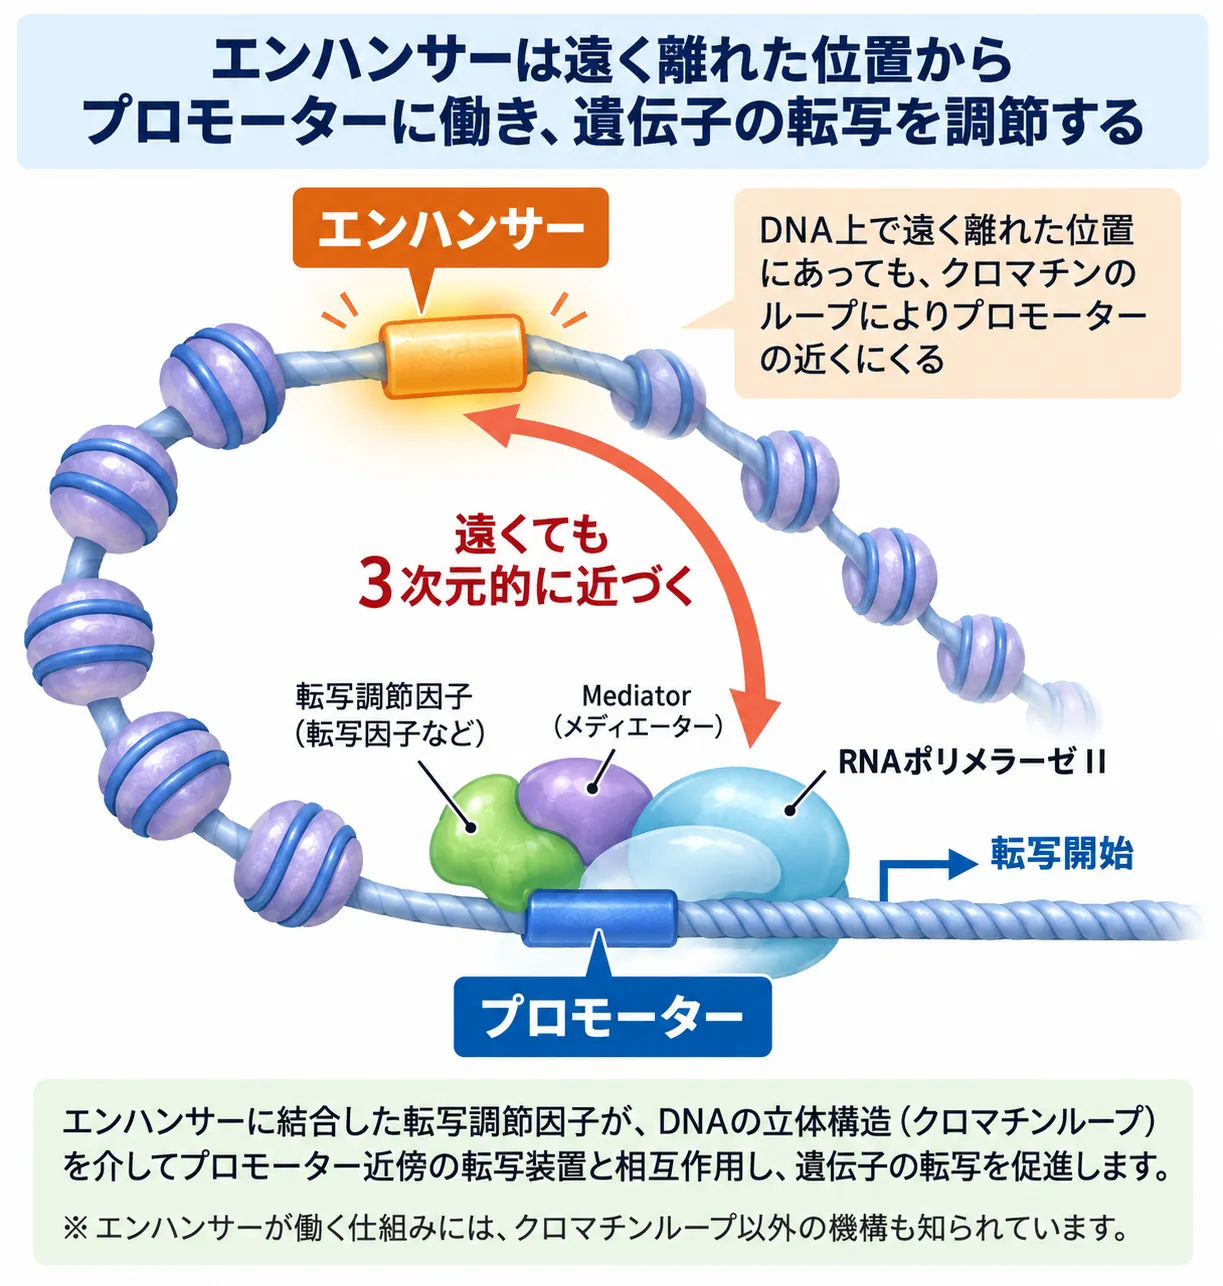
エンハンサーはDNA上ではプロモーターから遠く離れていても、クロマチンの立体構造によって空間的に近づくことができます。エンハンサーに結合した転写調節因子は、Mediatorなどを介してプロモーター近傍の転写装置と相互作用し、RNAポリメラーゼIIによる遺伝子の転写を調節します。
オペレーター・TATAボックス・プライマー・ターミネーターとの違い
オペレーターは原核生物でリプレッサーが結合する配列で、プロモーターと重なる/隣接する位置にあり、転写のオン・オフを切り替えます(前章のオペロン参照)。TATAボックスは独立した別物ではなく、コアプロモーターの中の一要素です(プロモーターがTATAボックスを含む、という包含関係)。プライマーは特に混同されやすいのですが、これはDNA複製やPCRで新しい鎖の合成を始めるための「短い核酸」であり、DNA領域であるプロモーターとはまったく異なるカテゴリの言葉です。最後にターミネーターは、転写を終わらせる配列で、転写を「始める」プロモーターと対になる存在です。
6. プロモーターの種類(恒常的・誘導性・組織特異的)
プロモーターは、いつ・どの細胞で働くかによって、大きく3つのタイプに分けられます。常にほぼ一定に働く恒常的プロモーター、特定の刺激や条件があるときだけ働く誘導性プロモーター、そして特定の組織・細胞でだけ働く組織特異的プロモーターです。また、コンセンサス配列にどれだけ近いかなどによって、転写の起こりやすさ(プロモーター強度:強いプロモーター/弱いプロモーター)にも差があります。
遺伝子工学の分野では、目的の遺伝子を細胞で発現させるために、ベクター(遺伝子の運び屋)へ強いプロモーターを組み込むことがよく行われます。ヒトサイトメガロウイルス由来のCMVプロモーターなどのウイルス性プロモーターは、多くの細胞で強く働くため広く使われています。ただし、こうした実験・産業用途のプロモーター選択は専門的な領域であり、本記事の主題(プロモーターという用語の理解)からは外れるため、ここでは概要にとどめます。
7. プロモーターと疾患・臨床的意義
プロモーターはタンパク質そのものを指定する部分ではありませんが、その変化は遺伝子の「発現量」を変えることで病気につながることがあります。臨床遺伝の現場では、タンパク質のアミノ酸配列を変える変異だけでなく、こうした発現量にかかわる変化にも注意が必要です。ここでは、遺伝性疾患とがんの両面から、代表的な仕組みを紹介します。
遺伝性疾患の例:β-サラセミア(HBBプロモーターの変異)
遺伝性の例としてよく知られるのがβ-サラセミアです。ヘモグロビンのβ鎖をつくるHBB遺伝子のプロモーターには、TATA・CAAT・重複したCACCCボックスといった要素があり、赤血球系の転写因子EKLFなどが結合して転写を調節しています[9]。このプロモーター領域に点変異が起こると、β-グロビンの転写量が減少し、β鎖の産生が部分的に低下するタイプ(β+型)のβ-サラセミアが生じます[9]。たとえばHBB −28(A>G)変異はTATA(ATA)ボックスを壊すことでHBBの転写を低下させる、代表的なプロモーター変異として知られています[10]。β-サラセミアは常染色体潜性(劣性)遺伝の形式をとり、こうした変異は遺伝子検査の対象になります。プロモーター領域の変化は、タンパク質の設計図(コード領域)に異常がなくても病気を引き起こしうる——これは臨床上とても重要なポイントです。
がんの例:TERTプロモーター変異とプロモーターのメチル化
がん(体細胞の変化)では、TERTプロモーター変異が代表的です。TERT遺伝子はテロメラーゼ(細胞の寿命に関わる酵素)の中心部品をコードします。そのプロモーターに生じるホットスポット変異(C228T・C250Tなど)は、新たに転写因子(ETSファミリー)の結合部位を作り出し、通常は抑えられているテロメラーゼを再活性化させます[7]。このタイプの変異は、コード領域ではなくプロモーターに起こる変異として、多くのがん種で見つかっています[7]。
もう一つの重要な仕組みが、DNAメチル化による発現の変化です。プロモーター領域(特にCpGアイランド)が高度にメチル化されると、その遺伝子の転写が抑制(サイレンシング)されます。がんでは、がん抑制遺伝子のプロモーターが高メチル化されて働かなくなることが知られており、配列の変異と同じように遺伝子の機能を失わせる「もう一つの経路」として重要視されています[8]。こうしたエピジェネティックな制御は、ヒストン修飾とも連動しています。
⚠️ 数値・確率の解釈における注意
プロモーター変異やメチル化と病気の関係は、集団を対象とした研究で得られた傾向です。特定の変異があるからといって、個人が必ず発症する・しないを断定できるわけではありません。また、TERTプロモーターのメチル化と発現の関係のように、研究によって結果の方向が一致していない領域もあります。検査結果の意味は、必ず主治医や臨床遺伝の専門家とご相談ください。
🩺 院長コラム【「設計図」だけでなく「スイッチ」も読む】
遺伝子検査というと、タンパク質の設計図であるコード領域の変異に注目しがちです。しかし遺伝医学では、その設計図を「いつ・どれだけ使うか」を決めるプロモーターや調節領域の変化も、同じくらい大切に考えます。β-サラセミアのように、コード領域が正常でもプロモーターの一文字の変化で発現量が下がり、症状につながることがあるからです。
「配列に異常が見つからなかった」ことが、必ずしも「問題がない」ことを意味しない——プロモーターの世界は、そのことを私たちにあらためて教えてくれます。遺伝の仕組みは、設計図とスイッチの両方を合わせて初めて読み解けるのです。
8. まとめ
プロモーターは、遺伝子の転写開始に必要な、遺伝子上流のDNA領域です。転写開始点の周囲にあるコアプロモーター(TATAボックス・Inr・DPEなどの要素を含む)を土台に、原核生物ではσ因子を伴うRNAポリメラーゼが直接、真核生物では基本転写因子を介してRNAポリメラーゼが結合し、転写が始まります。エンハンサー・サイレンサーなどの調節エレメントと協力して、遺伝子の発現を細かく制御する「スイッチの土台」がプロモーターです。エンハンサー・オペレーター・TATAボックス・プライマー・ターミネーターとは役割が異なり、混同しないことが理解の第一歩になります。そして、プロモーター領域の変異やメチル化は遺伝子発現を変え、β-サラセミアやがんなどの病気に関与することがあります。プロモーターを理解することは、遺伝子が「いつ・どれだけ働くか」という、遺伝と病気の核心に近づくことでもあります。
🧬 遺伝子や遺伝性疾患について相談したい方へ
遺伝子の働きや遺伝性の病気、遺伝の仕組みについて知りたい方は、
臨床遺伝専門医が在籍するミネルバクリニックの
遺伝カウンセリング・遺伝診療をご利用いただけます。
よくある質問(FAQ)
Q1. プロモーターとは何ですか?
プロモーターとは、遺伝子の転写(DNAからRNAをつくる最初の段階)を開始するために必要な、遺伝子の上流(転写開始点のすぐ前)に位置するDNA領域のことです。ここにRNAポリメラーゼと基本転写因子が結合して転写が始まり、転写の開始位置と向きが決まります。エンハンサーなどの調節エレメントと協力して、遺伝子の発現量を調整する「スイッチの土台」にあたります。
Q2. プロモーターとエンハンサーの違いは何ですか?
プロモーターは転写開始点のすぐ近くにあり、転写に必須のDNA領域です。一方エンハンサーは、標的の遺伝子から遠く離れていても働き、古典的には位置や向きへの依存性が低い調節配列として定義され、転写を「増強」する調節エレメントです。離れたエンハンサーは、間のDNAがループを作ってプロモーターに近づくことで作用すると考えられています。つまり、プロモーター=転写に必須の土台、エンハンサー=転写量を高める調節役、という違いがあります。
Q3. プロモーターとオペレーターの違いは何ですか?
どちらも原核生物のオペロンに出てくる配列ですが、役割が異なります。プロモーターはRNAポリメラーゼが結合する「場所」で、転写のスタートラインです。オペレーターはプロモーターの近く(一部重なる位置)にあり、リプレッサー(抑制タンパク質)が結合すると転写を止める「オン・オフの制御点」です。プロモーターが土台、オペレーターがスイッチ、とイメージすると分かりやすいでしょう。
Q4. プロモーターとプライマーの違いは何ですか?
名前が似ていますが、まったく別のものです。プロモーターは、遺伝子の転写を開始するための「DNA領域(配列)」です。プライマーは、DNA複製やPCRで新しい核酸鎖の合成を始めるために使う「短い核酸(オリゴヌクレオチド)」で、それ自体が合成の起点になります。プロモーターは目印となるDNA領域、プライマーは合成の材料・起点となる分子、という違いです。
Q5. 原核生物と真核生物のプロモーターはどう違いますか?
大きな違いは、RNAポリメラーゼがプロモーターを認識する方法です。原核生物(大腸菌など)では、σ(シグマ)因子を伴ったRNAポリメラーゼが、−35領域(TTGACA)と−10領域(Pribnowボックス、TATAAT)を直接認識して結合します。真核生物のRNAポリメラーゼIIによる転写では、基本転写因子群とRNAポリメラーゼIIがコアプロモーター上に転写開始前複合体を形成して転写を開始します。真核のほうがより多くの因子を介する、複雑なしくみになっています。
参考文献
- [1] Butler JEF, Kadonaga JT. The RNA polymerase II core promoter: a key component in the regulation of gene expression. Genes Dev. 2002;16(20):2583-2592. [Genes & Development]
- [2] Vo Ngoc L, Wang YL, Kassavetis GA, Kadonaga JT. The punctilious RNA polymerase II core promoter. Genes Dev. 2017;31(13):1289-1301. [Genes & Development]
- [3] Bae B, et al. Structure of a bacterial RNA polymerase holoenzyme open promoter complex. eLife. 2015. [PMC4593229]
- [4] Shimada T, Yamazaki Y, Tanaka K, Ishihama A. The whole set of constitutive promoters recognized by RNA polymerase RpoD holoenzyme of Escherichia coli. PLoS One. 2014. [PMC3946193]
- [5] Popay TM, Dixon JR. Coming full circle: On the origin and evolution of the looping model for enhancer–promoter communication. J Biol Chem. 2022;298(8):102117. doi:10.1016/j.jbc.2022.102117. [PMC9283939]
- [6] Tajbakhsh S, Cavalli G, Richet E. Integrated gene regulatory circuits: celebrating the 50th anniversary of the operon model. Mol Cell. 2011;43(4):505-514. doi:10.1016/j.molcel.2011.08.003. [Cell]
- [7] Chiba K, et al. Cancer-associated TERT promoter mutations abrogate telomerase silencing. eLife. 2015;4:e07918. [PMC4507476]
- [8] Ng JM-K, Yu J. Promoter hypermethylation of tumour suppressor genes as potential biomarkers in colorectal cancer. Int J Mol Sci. 2015;16(2):2472-2496. doi:10.3390/ijms16022472. [PMC4346847]
- [9] Origa R. Beta-Thalassemia. GeneReviews®. University of Washington, Seattle. [NCBI Bookshelf NBK1426]
- [10] Li J, Zhou Z, Sun H-X, et al. Transcriptome Analyses of β-Thalassemia −28(A>G) Mutation Using Isogenic Cell Models Generated by CRISPR/Cas9 and Asymmetric Single-Stranded Oligodeoxynucleotides (assODNs). Front Genet. 2020;11:577053. doi:10.3389/fgene.2020.577053. [PMC7580707]






