

目次
- 1 1. WRPWモチーフとは ─ 4文字でできた「呼び出しタグ」
- 2 2. 4つのアミノ酸 ─ W・R・P・Wの意味
- 3 3. WRPWモチーフのはたらき ─ 4アミノ酸で転写を抑える
- 4 4. 発見の歴史 ─ ショウジョウバエからヒトへ
- 5 5. 立体構造 ─ βプロペラの中央にはまり込むWRPW
- 6 6. YRPWとの違い ─ 「似た4文字」は「同じ働き」ではない
- 7 7. Ripplyでの再利用 ─ HES以外でも働くWRPW
- 8 8. 体節形成と疾患 ─ WRPWがつなぐ発生と病気
- 9 9. 遺伝診療との接点 ─ WRPWの視点が教えてくれること
- 10 10. よくある誤解
- 11 まとめ ─ 4文字がつなぐ、分子から体づくりまで
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

遺伝子の設計図から読み取られるタンパク質の中には、たった4つのアミノ酸という、ごく短い並びが決定的な意味をもつものがあります。その代表がWRPWモチーフ(ダブリュー・アール・ピー・ダブリュー・モチーフ)です。長さはわずか4文字。それでも、遺伝子のはたらきを「オフ」にする転写抑制のしくみを組み立てるうえで欠かせない部品として、ショウジョウバエからヒトまで進化の中で大切に保たれてきました。この記事では、WRPWモチーフとは何か、なぜ4アミノ酸だけで機能できるのか、そして体の形づくり(体節形成)や遺伝性疾患とどうつながるのかを、分子機構から臨床との接点まで解説します。
Q. WRPWモチーフとは何ですか?まず結論だけ知りたいです
A. WRPWモチーフとは、トリプトファン(W)・アルギニン(R)・プロリン(P)・トリプトファン(W)という4つのアミノ酸が並んだ、ごく短い配列のことです。Hairy/HES(ヘス)などの転写を抑える働きをもつタンパク質の末端にあり、Groucho/TLE(グルーチョ/ティーエルイー)という「共同抑制役」のタンパク質を呼び寄せて、遺伝子の働きをオフにする複合体をつくります。1996年の研究で、この4アミノ酸だけで転写を抑える力があることが実験的に示されました[1]。体の分節(体節)をつくるしくみとも深く関わり、その乱れは背骨や肋骨の形の異常につながることがあります。
- ➤正体 → トリプトファン・アルギニン・プロリン・トリプトファンの4アミノ酸(W–R–P–W)
- ➤どこにあるか → Hairy/HESなどbHLH転写抑制因子の、主にC末端(タンパク質の終わりの側)
- ➤役割 → 共同抑制役のGroucho/TLEを呼び寄せて、遺伝子をオフにする
- ➤なぜ重要か → わずか4アミノ酸で転写抑制とタンパク質どうしの結合の両方をこなす
- ➤臨床とのつながり → 体節形成を担うHES7などがこの配列をもち、経路の破綻は脊椎肋骨異形成症(せきついろっこついけいせいしょう)と関わる
🧬 WRPWモチーフの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・表記 | ダブリュー・アール・ピー・ダブリュー・モチーフ。一文字表記で W–R–P–W、三文字表記で Trp–Arg–Pro–Trp |
| 正体 | 4つのアミノ酸からなる、ごく短い配列(テトラペプチド)。折りたたまれた大きな立体構造をもたない |
| 存在する場所 | Hairy/Enhancer of split〔E(spl)〕/HESなど、bHLH型の転写抑制因子の主にC末端 |
| 主なはたらき | 共同抑制役 Groucho/TLE を呼び寄せ、遺伝子の転写を抑える複合体をつくる[1] |
| 関連する配列 | YRPW(HEY系がもつ近縁の配列)、WRPY/VWRPY(Runx系がもつ配列)など |
| 医療との関わり | 体節形成を制御する転写因子がこの配列をもち、その経路の破綻は背骨・肋骨の形成異常と関わる[10] |
※本記事はWRPWモチーフの分子機構と遺伝医学との接点を扱う用語解説です。特定の検査を勧めるものではありません。
1. WRPWモチーフとは ─ 4文字でできた「呼び出しタグ」
タンパク質は、アミノ酸という部品が数珠つなぎになってできています。その並びの中で、特定の機能をもつ短いパターンのことを「モチーフ」と呼びます。WRPWモチーフは、そのなかでも群を抜いて短い部類に入ります。長さはたった4アミノ酸。それでも、遺伝子のはたらきを抑える転写抑制のしくみで、はっきりとした役割をもっています。
WRPWモチーフのいちばん大切な役割は、DNAに直接くっつくことではありません。別のタンパク質を呼び寄せる「目印(タグ)」として働くことです。具体的には、Groucho/TLEという「共同抑制役(コリプレッサー)」のタンパク質を呼び込み、標的の遺伝子の近くに引き連れてくる、という仕事を担います。
💡 用語解説:転写・転写抑制・コリプレッサー
転写とは、DNAの遺伝情報をRNAへ写し取る、遺伝子が働く最初のステップです。この転写にブレーキをかけて遺伝子を「オフ」にすることを転写抑制といいます。その中心で働くのがリプレッサー(抑制因子)で、DNAに結びついて働きます。コリプレッサー(共同抑制役)は、自分ではDNAにくっつけないものの、リプレッサーに呼ばれて抑制を助けるタンパク質です。WRPWモチーフは、この「呼び寄せ」を担う短い配列です。
この分業のしくみを、ひとつのイメージにまとめると分かりやすくなります。DNAという「作業現場」に張り付くのは、bHLHという別の部分。そこから伸びた4アミノ酸のWRPWが、離れた場所にいるGroucho/TLEという「作業班」を現場へ呼び込む。こうして、遺伝子をオフにする複合体ができあがります。WRPWは、いわば「誰を呼ぶか」を指定する短い連絡先のような役割を果たしています[1]。
この「4文字の連絡先」という考え方は、遺伝子の働きを読み解くうえで示唆に富んでいます。タンパク質の機能というと、大きく折りたたまれた立体構造や酵素反応を思い浮かべがちです。しかしWRPWモチーフは、そうした大きな構造をもたないごく短い配列でありながら、細胞の中で確かな役割を果たしています。短いからといって重要でないとは限らない——WRPWは、そのことを教えてくれる代表例です。
2. 4つのアミノ酸 ─ W・R・P・Wの意味
WRPWという名前は、4つのアミノ酸を一文字ずつの記号で並べたものです。アミノ酸の一文字表記にあてはめると、それぞれ次のようになります。
Trp
Arg
Pro
Trp
最初と最後にあるW(トリプトファン)は、アミノ酸の中でもかさばった環状の構造をもつ「芳香族アミノ酸」です。相手のタンパク質のくぼみにぴったりはまり込むのに向いた性質をもっています。真ん中のP(プロリン)は、ペプチドの鎖に折れ曲がりをつくるアミノ酸で、WRPW全体を相手が認識しやすい特定の形に整える役割があると考えられています。この4残基のうち、とくに両端のトリプトファンの並びが、Groucho/TLEに認識されるうえで重要になります[4]。
💡 用語解説:モチーフとドメインの違い
ドメインは、ふつう数十から数百個のアミノ酸が集まって、それ自体でひとまとまりに折りたたまれた領域を指します。一方モチーフは、機能をもつもっと短い配列パターンを指すことが多い言葉です。WRPWは4アミノ酸しかないため、歴史的には「WRPWドメイン」と呼ばれた時期もありましたが、現在は配列そのものを指すときは「WRPWモチーフ」または「テトラペプチド(4アミノ酸のペプチド)」と呼ぶのが一般的です[2]。
WRPWモチーフは、Hairy/HESファミリーのタンパク質では、そのほとんどでC末端(タンパク質の終わりの側)に置かれています。DNAに結合するbHLH(塩基性ヘリックス・ループ・ヘリックス)という領域が前半にあり、そこから離れた末尾にWRPWがぶら下がっている、という配置です。前半でDNAをつかみ、末尾で相方を呼ぶ——役割が場所で分かれているのが、この仲間の特徴です。
3. WRPWモチーフのはたらき ─ 4アミノ酸で転写を抑える
WRPWモチーフの働きを決定づけたのが、1996年の研究です。この研究では、WRPWの4アミノ酸だけを、本来はまったく別の役割をもつDNA結合タンパク質にくっつけてみる、という実験が行われました。すると、その改変タンパク質は転写を抑える力を示し、Groucho/TLEを標的の場所へ呼び込むのに十分だったのです[1]。
この結果が意味することは、とても大きいものでした。WRPWは、単なる目印というだけでなく、それ自体で「転写を抑える働き」と「タンパク質どうしの結合」の両方をこなせる独立した機能単位だということです。わずか4アミノ酸で、これだけの仕事を担える配列は珍しく、当時の研究者を驚かせました[1]。
では、WRPWが呼び寄せる相手であるGroucho/TLEは、どんなタンパク質なのでしょうか。Grouchoはもともとショウジョウバエで見つかったコリプレッサーで、ヒトなどの脊椎動物ではTLE(Transducin-Like Enhancer of split)と呼ばれる仲間がこれにあたります[3]。Groucho/TLEは自分ではDNAにくっつけませんが、WRPWをもつさまざまな転写因子に呼ばれることで、多くの遺伝子のオン・オフを裏側から支えています。
💡 WRPWは「触媒」ではなく「認識のインターフェース」
酵素のように化学反応を起こす部品とは違い、WRPWモチーフは「誰と結びつくか」を決める認識の接点として働きます。数十から数百アミノ酸の酵素ドメインが自ら反応を進めるのに対し、WRPWは「相手を呼ぶ」ことに特化しています。だからこそ4アミノ酸という極端な短さでも成立するのです。
重要なのは、WRPWがすべての抑制作用を一手に担っているわけではない、という点です。Hairyファミリーの抑制因子には、bHLHやOrange領域など、ほかにも相手と関わるしくみがあります。ただ、WRPW自体については「Groucho/TLEを呼び込むのに必要かつ十分か」を直接調べた実験があり、その分子機能は強い根拠に支えられています[1]。
🩺 院長コラム【短い配列が、大きな意味をもつ】
遺伝子やタンパク質の世界では、「小さいもの」「短いもの」が見過ごされがちです。数百アミノ酸の大きな構造に目が向き、たった4文字の配列は注目されにくい。けれどもWRPWモチーフは、その短さゆえに「相手を呼ぶ」という一点に特化し、進化の中で大切に保たれてきました。
臨床遺伝専門医として文献を踏まえると、遺伝子の変化を読むときにも同じことが言えます。長い遺伝子のごく一部、わずか数塩基の変化が、タンパク質のはたらきを大きく変えることがあります。「小さいから影響も小さい」とは限りません。WRPWの研究は、分子のスケールでもそのことを示す一例です。
4. 発見の歴史 ─ ショウジョウバエからヒトへ
WRPWモチーフの研究は、ショウジョウバエの体づくりの研究から始まりました。1989年、体の分節(体節)のパターンや、成虫の剛毛(けんもう)の並びを制御するHairy(ヘアリー)というタンパク質の分子構造が報告されました。同じころ、神経のもとになる細胞の運命を左右するEnhancer of split〔E(spl)、エンハンサー・オブ・スプリット〕という関連タンパク質群も分子レベルで記載されました。これらが、のちにWRPWを比較する土台になります。
WRPWが「独立した機能領域」としてはっきり名前を与えられたのは、1992年のことです。この年の研究は、論文の題名そのものに「WRPW domains」を掲げ、Hairyのこの末端領域に変化が入るとHairyの働きが損なわれることを、遺伝学的に示しました[2]。さらにこの研究では、別種のショウジョウバエ(Drosophila virilis)でもbHLHとWRPWがよく保たれていることが確認され、WRPWが偶然の4文字ではなく、意味のある保存配列であることが強く示されました[2]。
決定的な前進は1994年に訪れます。Grouchoが、HairyやE(spl)などのbHLHタンパク質と直接結びつくことが示され、この結合が神経発生・体節形成・性決定という複数のしくみに関わることが実証されました。しかも、これらのbHLHタンパク質に共通するC末端のWRPWモチーフが、この結合に不可欠であることも明らかになりました[3]。これによりWRPWは、単なる分類の目印から、コリプレッサーをつなぐ「結合の接点」へと意味づけが変わりました。
そして1996年、先に述べたように、WRPWの4アミノ酸だけで転写抑制とタンパク質結合が成立することが実験的に確かめられ、このモチーフの機能像がほぼ完成しました[1]。研究の舞台は昆虫から哺乳類へと広がり、ヒトなどがもつHES(ヘス)というタンパク質でも、末端にTrp–Arg–Pro–Trpが保たれていることが明確になっていきました。WRPWは、昆虫だけの奇妙な配列ではなく、動物の体づくりを制御する転写因子に広く共通する特徴だったのです[1]。
🕰 WRPWモチーフ研究のあゆみ
| 年 | できごと |
|---|---|
| 1989年 | ショウジョウバエのHairyタンパク質と、Enhancer of split関連タンパク質の分子構造が報告される(WRPW研究の前史) |
| 1992年 | 「WRPW domain」が論文の題名で明示的に命名され、その機能が遺伝学的に解析される[2] |
| 1994年 | GrouchoがHairy/E(spl)系と直接結合し、その結合にWRPWが不可欠と実証される[3] |
| 1996年 | WRPWの4アミノ酸だけで転写抑制とGroucho/TLE動員が成立すると実証される[1] |
| 1999年 | HEY系で、WRPWの近縁配列「YRPW」が体系的に報告される[5][6] |
| 2004年 | 一部のHEY系ではYRPWが抑制に必須でないことが示される[7] |
| 2006年 | ヒトTLE1とWRPWペプチドの複合体の立体構造(PDB 2CE9)が解明される[4][9] |
| 2008年 | Ripply系が、WRPWを介してT-box因子を活性化因子から抑制因子へ変える機構が示される[8] |
5. 立体構造 ─ βプロペラの中央にはまり込むWRPW
WRPWモチーフが、相手のGroucho/TLEに実際にどうはまり込むのか。この「見た目」を原子レベルで明らかにしたのが、2006年の構造研究です。ヒトのTLE1というタンパク質の特定の領域と、WRPWペプチドが結合した状態が、X線結晶構造解析という手法で解かれました(PDB識別子 2CE9)[4][9]。
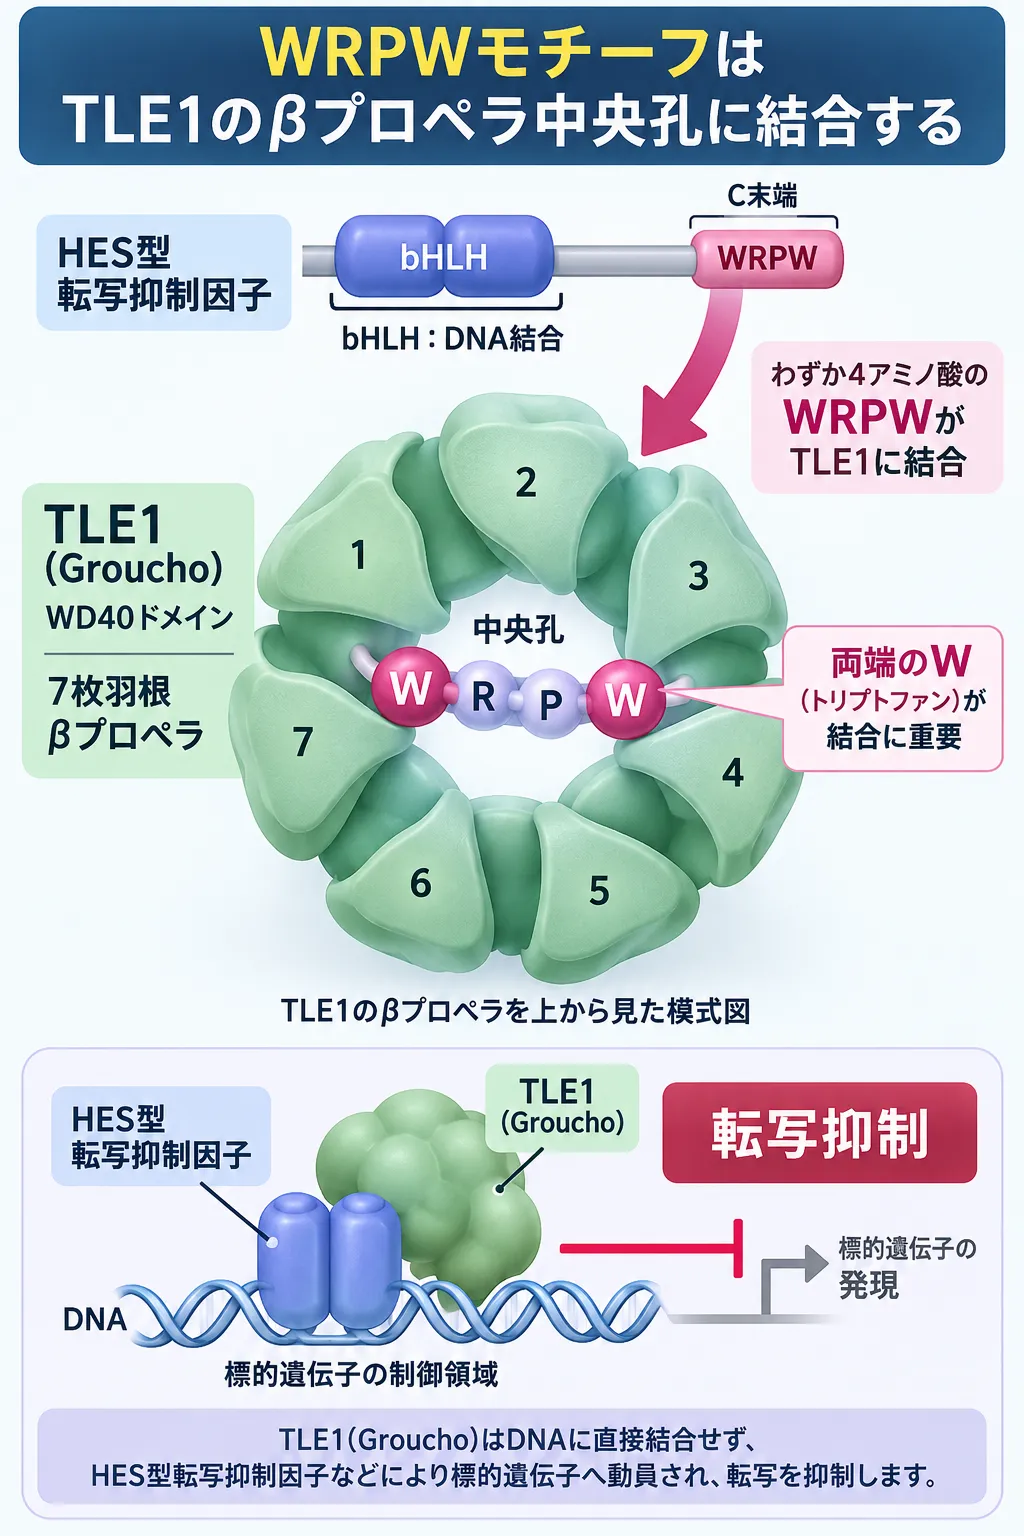
HES型転写抑制因子では、C末端のわずか4アミノ酸からなるWRPWモチーフ(Trp–Arg–Pro–Trp)が、TLE1(Groucho/TLE)の7枚羽根WD40 βプロペラの中央孔に結合します。これにより、DNAに直接結合しないTLE1がHES型転写抑制因子を介して標的遺伝子の制御領域へ動員され、転写抑制に関与します。WRPWの両端にあるトリプトファン(W)はTLE1との結合に重要です。
この構造で相手役をつとめるTLE1の領域は、WD40リピートという繰り返し配列からできたβプロペラ構造という形をしています。上から見ると、飛行機のプロペラや花びらのように、いくつもの「羽根」が中心軸のまわりに並んだ円盤状の構造です。WRPWペプチドは、この円盤の中央の穴(中央孔)を横切るように収まることが分かりました[4]。
💡 用語解説:βプロペラ構造とWD40リピート
WD40リピートとは、およそ40アミノ酸ほどの決まった配列がタンデム(縦列)にくり返す構造単位で、しばしばタンパク質どうしの結合を仲立ちします。このくり返しが集まると、羽根が輪をつくるようなβプロペラ構造ができあがります。その中央には浅い穴があり、短いペプチドや修飾された部分を受け止める結合の場になります。TLE1では、この中央孔がWRPWの受け皿になっているわけです。
この構造研究は、もうひとつ興味深いことを教えてくれます。Groucho/TLEには、WRPWとは別にeh1モチーフという、まったく違う配列で結合するタンパク質群も存在します。2006年の研究では、WRPWとeh1という2種類のペプチドが、同じβプロペラの中央孔という「重なり合う場所」に、それぞれ異なる形で収まることが示されました[4]。同じ受け皿を、性質の違う複数のパートナーが共有している——このことが、Groucho/TLEが多くの転写因子を相手にできる理由の一端になっています。
また、この立体構造は「なぜWRPWがこれほど厳密に保たれているのか」を説明するうえでも役立ちました。両端のトリプトファンが特定のくぼみにはまり込むため、そこがわずかに置き換わっただけでも結合が大きく変わりうる。だからこそ、WRPWの4文字は進化の中でほとんど動かせないほど強く保存されてきた、と理解できるのです[4]。
6. YRPWとの違い ─ 「似た4文字」は「同じ働き」ではない
WRPWとよく似た配列に、YRPWがあります。最初のW(トリプトファン)がY(チロシン)に置き換わったもので、HEY系と呼ばれるタンパク質群がもっています。1999年、マウス・ヒト・ショウジョウバエでこの仲間が体系的に記載され、通常のHairy/E(spl)系がもつWRPWの代わりに、YRPWが存在することが明記されました[5]。この特徴から、この仲間は「HEY(Hairy/Enhancer-of-split related with YRPW motif)」と名づけられました[6]。
ここで大切なのは、YRPWは「WRPWの弱い版」ではないという点です。2004年の研究では、アフリカツメガエルのXHRT1というHEY系タンパク質を調べたところ、C末端のYRPWを取り除いても転写を抑える力は失われず、Grouchoもこの配列を有意には認識しないことが示されました[7]。つまり、配列がよく似ていても、生化学的な働きまで同じとは限らないのです。実際、YRPWのY(チロシン)をW(トリプトファン)に戻すと、TLEと結合できるようになることも報告されており、両端のトリプトファンがいかに重要かが分かります[7]。
💡 用語解説:WRPY/VWRPYという別の親戚
もうひとつの近縁配列に、WRPY/VWRPYがあります。こちらは最後のW(トリプトファン)がY(チロシン)に置き換わったもので、Runx(ラント)系という別の転写因子群がもち、やはりGroucho/TLEを呼び寄せます。WRPWと機能的に関係しますが、配列としては別物です。「W?PW」「?RPW」のように見た目が似た配列は複数あり、どれもWRPWと同一とはみなせません。
この「似ているが同じではない」という点は、遺伝子や配列を扱ううえでの実践的な注意点でもあります。WRPWは4文字しかないため、配列を機械的に検索すると、HES型・HEY型・Runx型、さらには偶然一致しただけの短い並びまで、まとめて拾ってしまう危険があります。本当に機能するWRPWを見きわめるには、その配列がタンパク質の末端にあるか、Hairy/HES/Ripplyといった文脈の中にあるか、実際にGroucho/TLEと結びつくことが確かめられているか、まで踏まえて判断する必要があります。
⚠️ 表記の揺れ「WPRW」に注意
一部のデータベースや論文には「WPRW」という表記も見られますが、これは文字どおり読めばR(アルギニン)とP(プロリン)の順番が入れ替わった別配列です。同じ記録の中でWRPWとWPRWが混在している例もあり、多くの場合は転記・入力上の揺れと考えられます。配列そのものを確認せずに同じものとして扱うと、機能の解釈を誤るおそれがあります。
7. Ripplyでの再利用 ─ HES以外でも働くWRPW
WRPWモチーフは、Hairy/HESという一群のタンパク質だけのものではありません。まったく別の構造をもつRipply(リプリー)というタンパク質群も、WRPWをもっています。Ripplyは、bHLHをもたない小さなタンパク質ですが、WRPWを使ってGroucho/TLEを呼び寄せる点は、Hairy/HESと共通しています。
2008年の研究では、このRipplyの働きが具体的に示されました。Ripplyは、T-box転写因子という別の種類の転写因子と結びつき、同時にWRPWを介してGroucho/TLEを呼び込みます。その結果、本来は遺伝子をオンにする「活性化因子」だったT-box因子を、遺伝子をオフにする「抑制因子」へと切り替えてしまうのです[8]。
これはとても示唆的な例です。WRPWという4アミノ酸が、Hairy/HESという特定の祖先タンパク質に縛られず、まったく違う設計のタンパク質の中でも、同じ「コリプレッサーを呼び込む」というしくみを再利用できることを示しているからです。いわば、WRPWは付け替え可能な「共通部品(モジュール)」のように働いている、と考えることができます[8]。
そして、このRipplyの働きは、次の章で述べる体の分節形成と深く関わってきます。Ripplyが相手にするT-box因子の一部は、体節をつくるリズムの制御に関わっており、その調節が乱れると背骨や肋骨の形成に影響が出ることが分かってきています[8]。
8. 体節形成と疾患 ─ WRPWがつなぐ発生と病気
WRPWモチーフは、実験室の中だけの話ではありません。ヒトの体づくり、とくに背骨や肋骨のもとになる体節(たいせつ)の形成に、はっきりと関わっています。
胎児の体は、頭から尾に向かって、体節と呼ばれる細胞のかたまりが一定のリズムで規則正しくつくられていきます。このリズムを刻むしくみを体節時計(せつめつどけい/segmentation clock)と呼びます。体節時計の中心には、Notch(ノッチ)シグナルという細胞間の情報伝達のしくみがあり、その下流で働く抑制因子のひとつがHES7です[12]。
HES7は、WRPW型の配列をもつHESファミリーの一員で、Groucho/TLEを介した転写抑制に関与し、自身を含む時計遺伝子の発現を周期的に制御します。この負のフィードバックと発現・分解の時間遅延が、体節時計の振動を生み出す中心的な仕組みです。さらに、Notch経路の調節に関わるDLL3や糖鎖修飾酵素LFNG、体節境界の形成に関わるMESP2などが、時計の同期や周期情報の境界形成への変換を支えています[10][12]。
このしくみが乱れると、背骨や肋骨が正しくつくられません。実際、DLL3・HES7・MESP2・LFNGといった遺伝子に変化があると、脊椎肋骨異形成症(せきついろっこついけいせいしょう/spondylocostal dysostosis:SCDO)という、背骨や肋骨の重い形成異常を起こす病気につながることが知られています[10][11]。椎骨の分節異常や癒合、肋骨の癒合・配列異常などがみられ、多くの遺伝性SCDOは常染色体潜性(劣性、じょうせんしょくたいせんせい)の形で遺伝します[11]。
💡 用語解説:脊椎肋骨異形成症(SCDO)
背骨(脊椎)と肋骨が、胎児期の体節形成の乱れによって正しく形づくられない、まれな先天性の病気です。背骨のねじれ(側弯)や、椎骨の癒合・欠損などがみられ、体幹が短くなることがあります。原因遺伝子としてDLL3、HES7、MESP2、LFNG、TBX6などが知られます。Jarcho-Levin(ジャルコ・レビン)症候群は歴史的に脊椎・肋骨分節異常を示す疾患群に用いられてきた名称で、DLL3型だけを指す同義語ではありません[11]。
Ripply系も、この体節形成に深く関わります。マウスでRipply2を失わせると、背骨と肋骨に重い奇形が生じ、体軸の分節がうまくいかなくなることが報告されています[10]。RipplyがWRPWを介してGroucho/TLEを呼び込み、T-box因子であるTbx6などを制御していることを踏まえると、WRPWモチーフが体節形成というヒトの体づくりの根幹に、複数の経路から関わっていることが見えてきます。
こうしてみると、WRPWモチーフは「4アミノ酸の分子部品」であると同時に、背骨や肋骨の形づくりという、目に見える体の構造にまで影響が届くしくみの一部でもあることが分かります。分子のスケールの小さな配列が、発生というダイナミックな過程を経て、臨床で出会う疾患につながっている——WRPWは、その連なりを象徴する用語といえます。
🩺 院長コラム【基礎の用語が、診療の理解を支える】
WRPWモチーフは、日常の遺伝カウンセリングで患者さんに直接お話しする用語ではありません。けれども、体節形成に関わる遺伝子の変化がなぜ背骨や肋骨の形に影響するのか——その背景を理解するうえで、こうした基礎の分子のしくみは土台になります。
遺伝性疾患の診療では、原因が直ちに確定せず、表現型や家族歴、検査結果を段階的に評価することがあります。一つひとつの分子のはたらきを正確に押さえることは、検査結果の医学的意味を解釈する土台になります。基礎研究で明らかにされた分子機構は、臨床遺伝学における病態理解にもつながります。
9. 遺伝診療との接点 ─ WRPWの視点が教えてくれること
WRPWモチーフそのものは、日常の診療で単独に検査する対象ではありません。基礎研究が中心の分子生物学の用語です。それでも、遺伝診療の視点から見ると、WRPWの研究にはいくつか学べる点があります。
ひとつは、「短い配列の変化でも、大きな影響が出うる」という点です。WRPWはわずか4アミノ酸ですが、両端のトリプトファンが置き換わるだけで、Groucho/TLEとの結合が損なわれる可能性があります。遺伝子検査で見つかる変化(バリアント)を評価するときにも、変化した場所がタンパク質のどの機能領域にあたるのかを考えることが重要になります。
💡 用語解説:バリアント(遺伝子の変化)
「変異」や「バリアント」とは、遺伝子の設計図(DNAの並び)が、多くの人と異なっている状態を指します。病気につながるものもあれば、体質の個性にとどまるものもあります。WRPWのような機能的に重要な配列にあたる変化かどうかは、そのバリアントが体にどう影響しうるかを考えるうえで、判断材料のひとつになります。
もうひとつは、「配列が似ていても、働きは同じとは限らない」という点です。WRPWとYRPWの違いが示すように、見た目の類似だけから機能を決めつけることはできません。これは、遺伝子検査で見つかった変化の意味を慎重に見きわめる姿勢と、通じるものがあります。似ているからといって同じ結論を当てはめない——基礎研究のこの教訓は、臨床の判断にもあてはまります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。体節形成に関わる疾患のように、原因遺伝子が複数考えられる病気では、正確な診断に基づいて次の一歩を選ぶことが大切になります。WRPWのような基礎の用語は、その理解の土台として位置づけています。
10. よくある誤解
誤解①「4アミノ酸では意味がない」
WRPWはわずか4アミノ酸ですが、それ自体で転写抑制とタンパク質結合の両方をこなせる機能単位です。1996年の研究で、この4文字だけで転写を抑える力があることが実験的に示されています。
誤解②「WRPWがDNAにくっつく」
WRPWはDNAには結合しません。DNAをつかむのはbHLHという別の領域で、WRPWは離れた場所にいるGroucho/TLEを呼び寄せる役割に特化しています。前半でDNAをつかみ、末尾で相方を呼ぶ、という分業です。
誤解③「YRPWはWRPWと同じ」
YRPWは最初のWがY(チロシン)に置き換わった別配列です。一部のHEY系ではTLEを有意に呼び込まないことが示されており、似た4文字でも働きは同じとは限りません。
誤解④「昆虫だけの特殊な配列」
WRPWはショウジョウバエで見つかりましたが、ヒトを含む脊椎動物のHESにも保たれています。動物の体づくりを制御する転写因子に、広く共通する保存配列です。
まとめ ─ 4文字がつなぐ、分子から体づくりまで
WRPWモチーフは、トリプトファン・アルギニン・プロリン・トリプトファンというたった4つのアミノ酸からなる、ごく短い配列です。それでも、Groucho/TLEという共同抑制役を呼び寄せ、遺伝子をオフにする転写抑制のしくみを組み立てる、確かな機能をもっています[1]。1996年に4アミノ酸だけで機能が成立することが示され[1]、2006年には立体構造として、βプロペラの中央にはまり込む姿が明らかになりました[4]。
そしてWRPWは、Hairy/HESという一群にとどまらず、Ripplyのような別のタンパク質でも「コリプレッサーを呼び込む部品」として再利用されています[8]。その働きは、体節時計を通じて背骨や肋骨の形づくりにまで届き、経路の破綻は脊椎肋骨異形成症といった疾患と関わります[10][11]。分子のスケールの小さな配列が、発生という過程を経て、臨床で出会う病気にまでつながっている——WRPWモチーフは、遺伝医学における「基礎と臨床の地続きさ」を、短い4文字で象徴する用語だといえます。
よくある質問(FAQ)
Q1. WRPWモチーフとは何ですか?
WRPWモチーフとは、トリプトファン(W)・アルギニン(R)・プロリン(P)・トリプトファン(W)という4つのアミノ酸が並んだ、ごく短い配列です。Hairy/HESなどの転写を抑える働きをもつタンパク質の主にC末端にあり、Groucho/TLEという共同抑制役のタンパク質を呼び寄せて、遺伝子の働きをオフにする複合体をつくります。1996年の研究で、この4アミノ酸だけで転写を抑える力があることが実験的に示されました。
Q2. なぜ4アミノ酸だけで働けるのですか?
WRPWは、化学反応を起こす酵素のような部品ではなく、「誰と結びつくか」を決める認識の接点として働くからです。DNAに結合するのはbHLHという別の領域が担い、WRPWはGroucho/TLEを呼び寄せることに特化しています。1996年の研究では、WRPWの4アミノ酸だけを別のタンパク質にくっつけても転写抑制が起こり、Groucho/TLEを呼び込むのに十分であることが示されました。役割が「相手を呼ぶ」ことに絞られているため、短くても成立するのです。
Q3. WRPWとYRPWはどう違うのですか?
YRPWは、WRPWの最初のW(トリプトファン)がY(チロシン)に置き換わった配列で、HEY系と呼ばれるタンパク質群がもっています。見た目は似ていますが、働きは同じではありません。2004年の研究では、あるHEY系タンパク質でC末端のYRPWを取り除いても転写抑制が失われず、Grouchoもこの配列を有意には認識しないことが示されました。似た4文字でも、生化学的な働きまで同じとは限らないのです。
Q4. WRPWモチーフは病気と関係がありますか?
直接ではありませんが、深く関わっています。WRPW型の配列をもつHES7などの転写因子は、背骨や肋骨のもとになる体節をつくるリズム(体節時計)を制御しています。DLL3・HES7・MESP2・LFNGといった、この経路に関わる遺伝子に変化があると、背骨や肋骨の重い形成異常である脊椎肋骨異形成症(SCDO)につながることが知られています。WRPWそのものは検査対象ではありませんが、こうした疾患の分子的な背景を理解するうえで重要な用語です。
Q5. WRPWモチーフは検査で調べるのですか?
WRPWモチーフそのものを単独で調べる検査は、日常の診療では行いません。基礎研究が中心の分子生物学の用語です。ただし、WRPW型の配列をもつHES7や、関連するDLL3・MESP2などの遺伝子は、脊椎肋骨異形成症などの原因遺伝子として遺伝子検査の対象になることがあります。検査を検討する場合は、臨床遺伝専門医による遺伝カウンセリングのうえで、何を調べ何が分かるのかを整理して進めます。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Fisher AL, Ohsako S, Caudy M. The WRPW motif of the hairy-related basic helix-loop-helix repressor proteins acts as a 4-amino-acid transcription repression and protein-protein interaction domain. Mol Cell Biol. 1996;16(6):2670-2677. doi:10.1128/MCB.16.6.2670. PMID:8649374. [PMC231257]
- [2] Wainwright SM, Ish-Horowicz D. Point mutations in the Drosophila hairy gene demonstrate in vivo requirements for basic, helix-loop-helix, and WRPW domains. Mol Cell Biol. 1992;12(6):2475-2483. doi:10.1128/MCB.12.6.2475-2483.1992. PMID:1588951. [PMC364440]
- [3] Paroush Z, Finley RL Jr, Kidd T, et al. Groucho is required for Drosophila neurogenesis, segmentation, and sex determination and interacts directly with hairy-related bHLH proteins. Cell. 1994;79(5):805-815. doi:10.1016/0092-8674(94)90070-1. PMID:8001118. [PubMed 8001118]
- [4] Jennings BH, Pickles LM, Wainwright SM, Roe SM, Pearl LH, Ish-Horowicz D. Molecular recognition of transcriptional repressor motifs by the WD domain of the Groucho/TLE corepressor. Mol Cell. 2006;22(5):645-655. doi:10.1016/j.molcel.2006.04.024. PMID:16762837. [PubMed 16762837]
- [5] Kokubo H, Lun Y, Johnson RL. Identification and expression of a novel family of bHLH cDNAs related to Drosophila hairy and enhancer of split. Biochem Biophys Res Commun. 1999;260(2):459-465. doi:10.1006/bbrc.1999.0880. PMID:10403790. [PubMed 10403790]
- [6] Leimeister C, Externbrink A, Klamt B, Gessler M. Hey genes: a novel subfamily of hairy- and Enhancer of split related genes specifically expressed during mouse embryogenesis. Mech Dev. 1999;85(1-2):173-177. doi:10.1016/S0925-4773(99)00080-5. PMID:10415358. [PubMed 10415358]
- [7] Transcriptional repression by the bHLH-Orange factor XHRT1 does not involve the C-terminal YRPW motif. Biochim Biophys Acta. 2004. [PubMed 15451171]
- [8] Kawamura A, Koshida S, Takada S. Activator-to-repressor conversion of T-box transcription factors by the Ripply family of Groucho/TLE-associated mediators. Mol Cell Biol. 2008;28(10):3236-3244. doi:10.1128/MCB.01754-07. PMID:18332117. [PMC2423164]
- [9] A WRPW peptide bound to the Groucho-TLE WD40 domain (PDB 2CE9). RCSB Protein Data Bank. [RCSB PDB 2CE9]
- [10] Umair M, Younus M, Shafiq S, Nayab A, Alfadhel M. Clinical genetics of spondylocostal dysostosis: A mini review. Front Genet. 2022;13:996364. doi:10.3389/fgene.2022.996364. PMID:36506336. [PMC9732429]
- [11] Turnpenny PD, Whittock N, Duncan J, Dunwoodie S, Kusumi K, Ellard S. Novel mutations in DLL3, a somitogenesis gene encoding a ligand for the Notch signalling pathway, cause a consistent pattern of abnormal vertebral segmentation in spondylocostal dysostosis. J Med Genet. 2003;40(5):333-339. doi:10.1136/jmg.40.5.333. PMID:12746394. [PMC1735475]
- [12] Anderson MJ, Magidson V, Kageyama R, Lewandoski M. Fgf4 maintains Hes7 levels critical for normal somite segmentation clock function. eLife. 2020;9:e55608. doi:10.7554/eLife.55608. PMID:33210601. [PMC7717904]






