

目次

📚 入門シリーズ
この記事は「遺伝病を理解するためのヒトゲノム入門編」の【12】です。ひとつ前は【11】遺伝子の構造と産物、次は【13】転写因子とその調節です。全記事の一覧と学ぶ順番はヒトゲノム入門編・索引ページからご覧いただけます。

📍 クイックナビゲーション
転写とは、DNAに書かれた遺伝情報を、RNAという写し(コピー)に写し取る遺伝子発現の最初のステップです。ヒトの細胞では核の中で行われ、RNAポリメラーゼという酵素がDNAの片方の鎖(鋳型鎖)を読みながら、「開始→伸長→終結」の流れでRNAをつくります。こうしてできたRNAをもとにタンパク質がつくられる「DNA→RNA→タンパク質」という情報の流れがセントラルドグマです。本記事では、転写の流れと仕組み、複製・翻訳との違い、転写の向き、転写因子のはたらき、そして転写のしくみが乱れたときに起こる遺伝性疾患まで、臨床遺伝専門医の視点でわかりやすく解説します。
⏱️ 30秒でわかる要約
🧬 Q. 転写とは?(生物基礎のポイント)
DNAの塩基配列をRNAに写し取ることです。DNAのT(チミン)はRNAではU(ウラシル)に置き換わります。写し取るのはDNA全体ではなく、必要な遺伝子の部分だけです。
🔁 Q. 転写の流れは?どこで行われる?
ヒトの細胞では核の中で、①開始(プロモーターにRNAポリメラーゼが集まる)→②伸長(鋳型鎖を読みながらRNAを5′→3′の向きに伸ばす)→③終結(RNAが離れる)の順に進みます。できたRNAは加工されて核の外へ運ばれ、翻訳に使われます。
⚖️ Q. 複製・翻訳とはどう違う?
複製はDNAを丸ごとDNAにコピーすること、転写はDNAの一部をRNAに写すこと、翻訳はmRNAの情報をもとにタンパク質をつくることです。順番は転写が先、翻訳が後です。
\ 遺伝子・遺伝性疾患について臨床遺伝専門医に相談したい方へ /
臨床遺伝専門医が常駐し、遺伝子パネル検査・全エクソーム解析・リピート伸長検査の中から目的に合う検査を選べます。
取り扱っている遺伝子検査の一覧
1. 転写とは?セントラルドグマの中での位置づけ
転写とは、DNAの遺伝情報をRNAに写し取ることです。わたしたちのからだをつくる約2万個(2019年の集計で19,116個)のタンパク質をつくる遺伝子は、DNAという長い鎖の中に、アデニン(A)・チミン(T)・グアニン(G)・シトシン(C)という4種類の文字(塩基)の並びとして書き込まれています[16]。しかしDNAそのものは、いわば図書館に大切に保管された“原本”で、細胞が実際に働くときにはこの原本を直接使うことはありません。必要な情報だけを一時的に写し取り、その写しを使ってタンパク質という「実際に働く分子」をつくります。この最初の写し取りが転写(Transcription)です。転写でつくられる写しがRNA(リボ核酸)で、なかでもタンパク質の設計図となるものをメッセンジャーRNA(mRNA)と呼びます。RNAではDNAのチミン(T)の代わりにウラシル(U)が使われます[1]。
この「DNA→RNA→タンパク質」という一方向の情報の流れをセントラルドグマと呼びます。転写はその最初のステップであり、同時に遺伝子発現の“最大の調節ポイント”でもあります[1]。というのも、細胞は「どの遺伝子を、いつ、どれだけ写すか」を転写の段階で細かく決めているからです。同じ設計図(ゲノム)を持っていても、神経細胞と肝臓の細胞がまったく違う姿・機能を持つのは、それぞれの細胞で転写される遺伝子の組み合わせが異なるためです。転写の制御がうまくいかなくなると、細胞の機能不全だけでなく、個体の発生の異常や、さまざまな遺伝性疾患につながることが知られています[6]。
💡 用語解説:mRNA(メッセンジャーRNA)
mRNAは、DNAから写し取られた「タンパク質の設計図のコピー」です。DNAが図書館の原本だとすれば、mRNAはそのページを必要な分だけコピーして持ち出す“プリント”のようなものです。核の中で転写されたmRNAは、加工(プロセシング)を受けたのち核の外(細胞質)へ運ばれ、リボソームという“工場”でアミノ酸の並びに翻訳され、タンパク質になります[1]。原本であるDNAを持ち出さずにコピーだけを使うことで、遺伝情報を傷つけずに、必要なタンパク質を必要な量だけつくれるのです。詳しくはmRNA(メッセンジャーRNA)の解説をご覧ください。
セントラルドグマには例外もあります。ウイルスの一部では、RNAを鋳型にしてDNAをつくる逆転写という逆向きの流れが起こりますし、RNAの一部を書き換えるRNAエディティングも知られています。それでも、ヒトの通常の遺伝子発現においては「DNA→RNA→タンパク質」が基本の流れであり、転写はその出発点です。より上流の【10】DNAからタンパク質へ:転写・翻訳とセントラルドグマや、【11】遺伝子の構造と産物もあわせて読むと、遺伝子発現の全体像がつかみやすくなります。
セントラルドグマ:遺伝情報の一方向の流れ
(核の中に保管)
転写
(核の外へ運ばれる)
翻訳
(酵素・構造など)
本記事のテーマは、最初の矢印「転写」です。DNAの情報をRNAに写し取るこの一歩が、細胞の個性と健康を決めています。
2. DNA複製との違いと、ヒトがもつ3種類のRNAポリメラーゼ
転写は、DNAを鋳型にする点で、細胞分裂のときにゲノム全体をコピーする「DNA複製」と似ています。しかし、両者は大きく異なります。DNA複製はゲノム全体を写しますが、転写はゲノムのごく一部(遺伝子という単位)だけを標的とします[1]。もっとも大きな違いは、新しくつくられた鎖のふるまいです。DNA複製では新しい鎖が鋳型と結びついたまま二重らせんを保ちますが、転写ではRNAポリメラーゼが通り過ぎた直後に新生RNAが鋳型DNAからはがれ、DNAはもとの二重らせんに戻ります。そのため転写産物は、比較的短い一本鎖のRNA分子として放出されます[1]。真核生物のRNAポリメラーゼは1秒あたり約20塩基の速さでRNAを伸ばし、多数のRNAポリメラーゼが同じ遺伝子を次々に読むことで、1つの遺伝子から1時間に1,000本を超えるRNAがつくられることもあります[1]。
転写・複製・翻訳の違い(場所・鋳型・できるもの)
結論:複製は「DNA→DNA」、転写は「DNA→RNA」、翻訳は「mRNA→タンパク質」です。順番は転写が先で、翻訳が後です。ヒトの細胞では、複製と転写は核の中で、翻訳は核の外(細胞質)のリボソームで行われます[1]。生物基礎でよく問われる違いを表にまとめました。
ヒトのような真核生物では、核膜によって「転写(核の中)」と「翻訳(核の外)」が空間的にも時間的にも切り離されているため、写し取ったRNAを核の中で加工してから外へ送り出せます。また、1つの遺伝子から写し取られた前駆RNAが後述の選択的スプライシングを受けることで、1つの遺伝子から複数種類のタンパク質(アイソフォーム)をつくり分けられます。翻訳でmRNAの塩基3つ(コドン)が1つのアミノ酸に読み替えられるしくみは、【10】のページで詳しく扱っています。
💡 用語解説:RNAポリメラーゼ
RNAポリメラーゼは、DNAを鋳型にしてRNAを合成する“書き写し専用の酵素”です。DNAの二重らせんを部分的に開き、片方の鎖である鋳型鎖(アンチセンス鎖)に沿って、対応するリボヌクレオチド(A・U・G・C)を1つずつつなげてRNA鎖を伸ばしていきます。細菌では1種類のRNAポリメラーゼがすべての遺伝子を写しますが、ヒトを含む真核生物は、担当する遺伝子ごとに3種類(Pol I・Pol II・Pol III)を使い分けています[1][2]。
3. 転写の流れ(3ステップ):開始・伸長・終結
転写は「開始」「伸長」「終結」の3つのステップで進みます。まず開始では、RNAポリメラーゼが遺伝子の“スタート地点”に正しく位置取りをします。次の伸長では、鋳型に沿ってRNAを写し取ります。最後の終結で、写し終わったRNAが放出されます。順番に見ていきましょう。
転写の流れ(3ステップ)
開始:プロモーターと「開始前複合体」の組み立て
転写の開始は、遺伝子の“看板”にあたるプロモーターという領域から始まります。真核生物のRNAポリメラーゼは、プロモーターの配列を自力では認識できません。そこで、まず基本転写因子(General Transcription Factors)と呼ばれる一群のタンパク質がプロモーターに順序よく集まり、RNAポリメラーゼを正しい位置に呼び込む足場をつくります。この集合体を開始前複合体(PIC)と呼びます[2]。
Pol IIが写す多くの遺伝子では、転写開始点の少し上流に、AとTに富む「TATAボックス」という目印があります。最初にTATA結合タンパク質(TBP)を含むTFIIDという複合体がこのTATAボックスに結合します[2]。TBPはTATAボックスに結合するとDNAを約80度折り曲げ、転写を始めやすい形にします[17]。続いてTFIIB、TFIIFを伴ったPol II、TFIIE、TFIIHが順に加わり、基本的な転写装置が完成します[2]。さらに、離れた場所にあるエンハンサーからの情報を束ねる巨大なメディエーター複合体が仲立ちすることで、効率のよい転写が始まります[4]。
伸長と終結:RNA鎖が伸び、写し終えて放出される
開始のあと、RNAポリメラーゼは鋳型鎖に沿って移動しながら、DNAの塩基配列に対応するリボヌクレオチド(A・U・G・C)を選んでつなげ、RNA鎖を伸ばしていきます。これが伸長です。やがて遺伝子の終わりに達すると、RNAポリメラーゼはDNAから離れ、新しくできたRNAが放出されます。放出された前駆RNA(プレmRNA)は、次章で述べる加工を受けて成熟したmRNAになります。次の記事【13】遺伝子の発現 その2:転写因子とその調節では、開始をコントロールする転写因子のはたらきをさらに詳しく解説しています。
転写の向きは?鋳型鎖とコード鎖の見分け方
結論:RNAは5′→3′の向きにしか伸びないので、RNAポリメラーゼは鋳型鎖を3′→5′の向きに読みます[1]。DNAの2本の鎖のうち、RNAの鋳型として読まれる鎖を鋳型鎖(アンチセンス鎖)、読まれないほうの鎖をコード鎖(センス鎖・非鋳型鎖)と呼びます。できあがるmRNAは鋳型鎖と相補的なので、結果としてコード鎖と同じ並び(TがUに替わるだけ)になります。
試験などで「転写されるDNA(鋳型鎖)の塩基配列」からRNAを求めるときは、相補的な塩基に置き換えます(A→U、T→A、G→C、C→G)。たとえば鋳型鎖がAATCGGなら、できるRNAはUUAGCCです。一方、示された配列がコード鎖なら、TをUに置き換えるだけで答えになります。どちらの鎖かを先に確かめるのがコツです。センス鎖・アンチセンス鎖の呼び方と見分け方はアンチセンス鎖(センス鎖との違い)で詳しく解説しています。
4. 写しながら仕上げる:Pol IIの“しっぽ”(CTD)と共転写プロセシング
🔍 関連記事:スプライシングとは/選択的スプライシング/RNAプロセシング
写し取られたばかりのRNAは、そのままではまだ“未完成品”です。核の外へ送り出す前に、(1)5′末端に「キャップ」という保護帽をつける、(2)不要な部分(イントロン)を取り除いて必要な部分(エクソン)をつなぐスプライシング、(3)3′末端にポリA尾部という“しっぽ”をつける、という加工を受けます。これらをまとめてRNAプロセシングと呼びます。おどろくべきことに、これらの加工は転写が終わってから行われるのではなく、転写と同時進行(共転写)で進みます。
この見事な段取りを指揮しているのが、Pol IIの最大サブユニットの端から突き出たC末端ドメイン(CTD)という“しっぽ”です。CTDは7つのアミノ酸(YSPTSPS)の繰り返しでできていて、ヒトでは52回くり返されます。その特定の場所がリン酸化・脱リン酸化されることで、転写の段階に応じて必要な加工因子を呼び寄せます[3]。転写開始のときはSer5という位置がリン酸化されてキャップ付加酵素を呼び込み、伸長段階に入るとSer2がリン酸化されて、スプライシングや3′末端の加工に関わる因子を引き寄せます[3]。
💡 用語解説:スプライシングと選択的スプライシング
ヒトの遺伝子は、意味のある部分(エクソン)の間に、意味を持たない部分(イントロン)が挟まった“虫食い”の構造をしています。スプライシングとは、写し取ったRNAからイントロンを切り取り、エクソン同士をつなぎ合わせる編集作業です。さらに、つなぐエクソンの組み合わせを変えることで、同じ遺伝子から異なるタンパク質をつくり分けられます。これが選択的スプライシングで、遺伝子の数以上に多様なタンパク質を生み出すしくみです。
近年、このCTDのリン酸化は、核の中で転写装置が集まる“区画”をつくる液–液相分離(LLPS)のスイッチとしても注目されています。リン酸化される前のCTDは、メディエーターがつくる“しずく状の集合体(コンデンセート)”に取り込まれて高密度な転写開始の場をつくり、リン酸化が進むと今度はスプライシング因子が集まる別のしずくへと移ります[4]。この相の移り変わりが、混み合った核の中で「開始から加工へ」という一方向の流れを物理的に押し進める原動力になっていると考えられています[4]。
5. 転写因子とは?「いつ・どの遺伝子を写すか」を決める指揮者
ここまで見てきた転写の開始装置は、いわば“エンジン”です。しかし、いつ・どの遺伝子でこのエンジンを始動させるかを決める“指揮者”が必要です。その役割を担うのが転写因子(Transcription Factors)です。転写因子は、DNA上の特定の配列(プロモーターやエンハンサー)に結合するタンパク質で、遺伝子の発現をオンにしたりオフにしたりします。細胞の状態や発生の段階、外からの刺激に応じて、はたらく転写因子の組み合わせが変わることで、同じゲノムから細胞ごとに異なる遺伝子発現パターンが生まれます。
💡 用語解説:転写因子(わかりやすく)
転写因子は、遺伝子の“スイッチ担当”のタンパク質です。DNAの特定の場所にぴたりと結合し、その近くの遺伝子の転写を「始めなさい」「止めなさい」と指示します。1つの転写因子が多くの遺伝子をまとめて制御することもあり、まさに遺伝子ネットワークの司令塔です。転写因子について、はたらきや疾患との関わりをさらに詳しく知りたい方は転写因子(総論)もご覧ください。
転写因子は多くの遺伝子を束ねているため、その遺伝子に変化が起こると、影響が1つの臓器にとどまらず、複数の臓器にまたがる症候群として現れやすくなります。こうした病気は「転写調節の病気」としてまとめて理解されるようになっています[6]。はたらく量が変わることの影響の受けやすさは用量感受性(Dosage sensitivity)と呼ばれ、転写因子の遺伝子の変化を評価するときの大切な視点です。
6. エピジェネティクス:DNAを折りたたんで転写を制御する
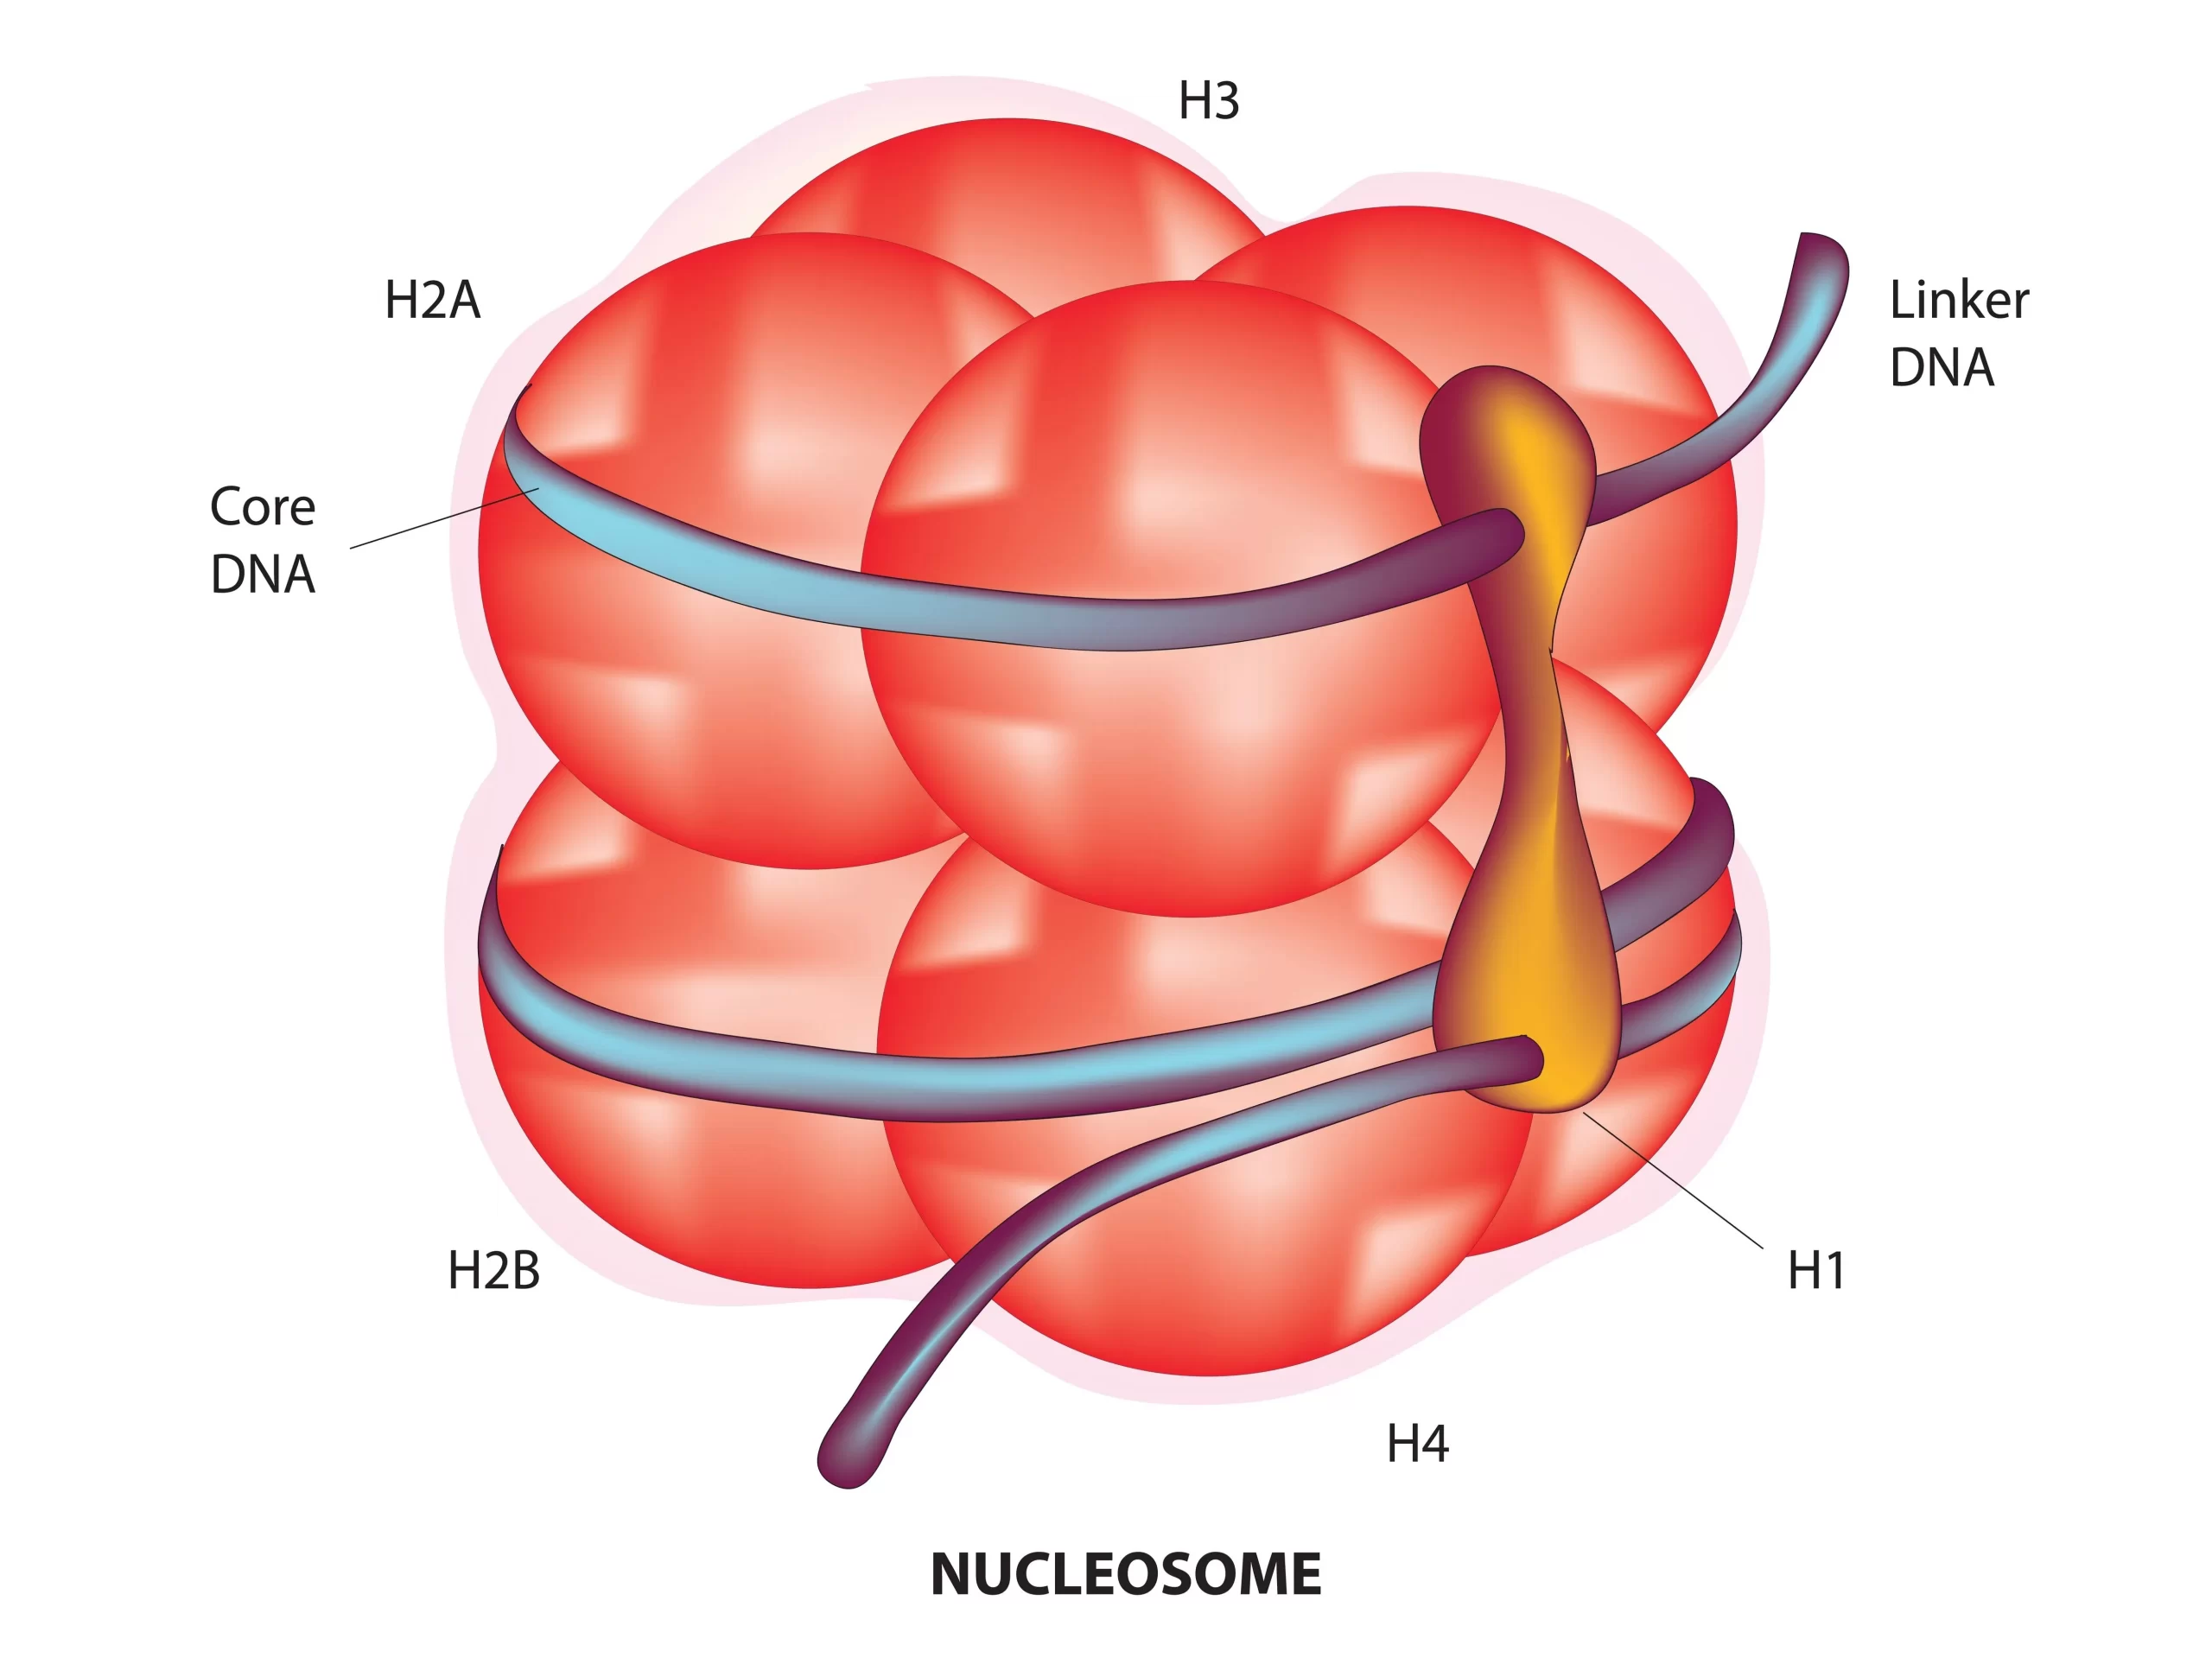
ヒトのDNAは、そのままでは1つの細胞あたり、引き伸ばすと約2メートルにもなり[18]、そのままでは小さな核に収まりません。そこでDNAはヒストンというタンパク質に巻きついて折りたたまれています。DNAが146塩基対ぶんヒストンの塊に巻きついた基本単位をヌクレオソームと呼びます。このヌクレオソームがつながって、クロマチンという構造をつくります。転写因子やRNAポリメラーゼがDNAに近づけるかどうかは、このクロマチンの“開き具合”で決まります。DNAの文字そのものは変えずに、この開閉によって遺伝子のオン・オフを調節するしくみがエピジェネティクスです[18][5]。
エピジェネティックな制御には、大きく「DNAメチル化」と「ヒストン修飾」があります。DNAメチル化は、シトシンとグアニンが並んだ配列(CpG)のシトシンに、DNAメチル化酵素が“メチル基”という小さな印を付ける反応です。プロモーター周辺のCpGアイランドがメチル化されると、その遺伝子は安定して転写されない状態になります[5]。この抑制は、メチル化されたCpGを読み取るMeCP2というタンパク質が、ヒストンのアセチル基を外す酵素(HDAC)を呼び込むことで起こります。アセチル基が外れるとクロマチンは固く凝縮し、遺伝子は“読めない状態”になります[19][5]。ちなみにMeCP2をコードするMECP2遺伝子の異常はレット症候群などの原因となり、当院ではMECP2遺伝子の解説ページでも取り上げています。反対に、ヒストンにアセチル基が付くとクロマチンはゆるみ、転写因子が近づきやすくなって発現が促されます。ヒストンメチル化のように、逆に発現を抑える向きにはたらく修飾もあります。
DNAメチル化による転写抑制は、発生の過程で「父由来・母由来のどちらのコピーを使うか」を決めるゲノムインプリンティングにも使われます[5]。代表例のH19遺伝子では、父由来のコピーの制御領域がメチル化されて沈黙し、母由来のコピーから写されます。この“親による使い分け”は、インプリンティング制御領域(ICR)のメチル化の差によって制御され、体細胞分裂を通じて厳密に維持されます[5]。インプリンティングの異常は、塩基配列ではなくメチル化の違いとして起こることがあるため、配列を読む検査だけでは見つからないことがあり、メチル化の状態を調べる検査が必要になります。エピジェネティクス全体については【15】エピジェネティクスでさらに詳しく解説しています。
7. 転写の破綻が引き起こす遺伝性疾患
転写は精密なしくみであるがゆえに、その一部が壊れるとさまざまな遺伝性疾患につながります。原因となる変異は、大きく「シス作用配列(プロモーターなど、その遺伝子の“看板”側)の変異」と「トランス作用因子(RNAポリメラーゼや転写因子といった“装置”側)の変異」に分けて考えると整理しやすくなります。
看板側(シス)の変異:転写量がじわりと狂う
遺伝性疾患の多くは、タンパク質そのものの設計図(コード領域)の変異が原因ですが、プロモーターなどの制御領域のたった1文字の変化でも、転写の量やタイミングが狂って病気を招くことがあります。たとえばβサラセミアでは、HBB遺伝子のプロモーター(TATAボックス付近)の変異によってTATAボックスの1文字の変化(−29 A→G)でβグロビンのRNAの合成が正常の約25%に低下し、比較的軽い型(β+サラセミア)になることが報告されています[7]。当院ではβサラセミアの解説ページも設けています。
もう一つの興味深い例が、レイデン型血友病Bです。F9遺伝子(血液凝固第IX因子)のプロモーターの変化により、幼少期は第IX因子が少なく出血しやすい状態ですが、思春期に第IX因子の量が急に増えて症状が軽くなっていく、という経過をたどります。思春期に増えるしくみとしては男性ホルモンの受容体の関与などが提案されていますが、すべては説明できていません[15]。血友病一般については血友病の総論ページもご参照ください。
装置側(トランス)の変異:転写因子や基本装置の異常
転写因子や、RNAポリメラーゼそのものといった“共通の装置”に変異が起こると、影響は1つの遺伝子にとどまらず、複数の臓器にまたがる症候群として現れやすくなります[6]。代表的なものを見ていきましょう。
まず脊髄小脳変性症17型(SCA17)は、基本転写因子TBPをコードするTBP遺伝子の中で、グルタミンをコードする配列(CAG/CAAリピート)が異常に長く伸びることで発症する常染色体顕性(優性)の神経変性疾患です[8]。伸びすぎたポリグルタミン鎖をもつTBPは核の中で凝集体をつくり、TFIIBなどほかの転写因子まで巻き込んで、転写を広く乱すと考えられています[8]。このようなリピート伸長(トリプレットリピート病)の解析は、当院のSCA17(TBPリピート伸長)遺伝子検査でも対象としています。
同じくリピート伸長が原因のハンチントン病でも、変異したハンチンチンが転写の調節を乱し、シナプスのはたらきや成長因子に関わる遺伝子の発現が下がることが、病気の進み方に関わると考えられています[9]。当院では原因遺伝子であるHTT遺伝子やハンチントン病の解説も行っています。
ヒストンをアセチル化する酵素CBP(およびp300)そのものの遺伝子が変化して起こるのがルビンシュタイン・テイビ症候群です。CREBBPの変化でCBPのヒストンアセチル化酵素としてのはたらきが損なわれることが、病態の中心と考えられています[11]。EP300の変化による型はルビンシュタイン・テイビ症候群2型として当院でも解説しています。
RNAポリメラーゼそのものの異常もあります。Pol IIの最大サブユニットPOLR2Aの新生突然変異(de novo変異)によるPOLR2A関連の病気では、報告された12人のうち8人に筋緊張低下、8人にてんかんがみられました[10]。Pol IやPol IIIのサブユニット異常は、リボソーム作りが滞り、p53に依存した細胞死や、顔の骨のもとになる神経堤細胞の不足を招くトリーチャー・コリンズ症候群の背景にあります[12]。Pol IIIのサブユニットの両アレル性変異では、脳の髄鞘化が障害される4H症候群(低髄鞘化白質ジストロフィー)が知られています[13]。さらに、メディエーター複合体のサブユニットMED12の変異は、同じ遺伝子の変異でありながら異なる臨床像(FG症候群やルジャン症候群)を生むことが報告されています[14]。これらは、普遍的にはたらく基本装置の異常が、なぜ特定の臓器に強く現れるのか——という発生生物学の大きな問いにもつながっています。
8. 転写と出生前診断・遺伝カウンセリングのつながり
🔍 関連記事:遺伝カウンセリングとは/臨床遺伝専門医とは/遺伝子検査一覧
ここまで見てきたように、転写のしくみは、βサラセミアのようなプロモーター変異から、SCA17やルビンシュタイン・テイビ症候群のような装置側の変異まで、数多くの遺伝性疾患の根本に関わっています。だからこそ、遺伝子検査の結果を正しく解釈するには、「その変異が転写のどの段階に、どのように影響するのか」という視点が欠かせません。とくに制御領域(プロモーター・エンハンサー)の変化は、コード領域の変化に比べて病気との関係を判断する材料が少ないことが多く、慎重に評価する必要があると考えています。
検査は「出生前」と「出生後」で目的も方法も異なります。出生前では、非侵襲的スクリーニングとしてのNIPTや、確定検査としての羊水検査・絨毛検査に続くターゲット遺伝子解析があります。出生後では、血液を用いた遺伝子パネル検査や、全エクソーム解析(WES)などの網羅的な解析が中心となります。インプリンティングの異常が疑われる場合は、前述のとおりメチル化の状態を調べる検査が必要になります。SCA17のようなリピート伸長は、通常の配列解析ではなくリピート数を測る専用の検査が用いられます。
💡 用語解説:新生突然変異(de novo変異)
新生突然変異(de novo変異)とは、両親のどちらも持っていないのに、子どもで初めて新しく生じた変異のことです。精子や卵子がつくられる過程、あるいは受精のごく初期に生じます。POLR2A関連の病気のように、家族歴がなくても子どもに症状が現れる転写の病気には、このタイプで起こるものがあります[10]。家族歴がないことは「遺伝性ではない」ことを意味しないため、正確な診断と遺伝カウンセリングが重要になります。詳しくはde novo変異(新生突然変異)の解説をご覧ください。
こうした検査を受けるかどうか、また結果をどう受け止めるかは、ご本人・ご家族にとって大きな意思決定です。ミネルバクリニックでは、臨床遺伝専門医が、遺伝形式や再発リスク、検査の限界までを含めて遺伝カウンセリングを行います。検査の数値だけでなく、その結果を受けてどう選んでいくかまで含めて考えることが大切だと考えています。転写という基礎のしくみを知っておくことは、そうした話し合いを落ち着いて進めるための土台になります。当院では、どの遺伝学的検査を選ぶか、結果をどう読むかについて、遺伝カウンセリングで情報提供と意思決定の支援を行っています。
9. よくある誤解
誤解①「転写と翻訳は同じ意味」
別のステップです。転写はDNAの情報をRNAに写すこと、翻訳はそのRNAをもとにタンパク質をつくることです。転写は核の中、翻訳は核の外(細胞質のリボソーム)で起こります。
誤解②「病気は設計図(DNA)の文字だけで決まる」
文字(配列)だけでは決まりません。同じ配列でも、どの遺伝子がどれだけ転写されるかで細胞の姿は変わります。プロモーターの1文字の変化やエピジェネティックな制御の乱れも、病気の原因になり得ます。
誤解③「家族歴がなければ遺伝性ではない」
そうとは限りません。転写の病気には、新生突然変異(de novo変異)で生じるものがあり、両親に同じ変異がなくても子どもに現れます。家族歴がないことは遺伝性を否定する根拠にはなりません。
誤解④「基本装置の異常は全身が均一に障害される」
意外にも臓器ごとに差が出ます。全細胞で共通に働くはずのRNAポリメラーゼの異常でも、特定の細胞(神経堤細胞など)に強く症状が現れます。その理由は完全には分かっておらず、細胞ごとの必要量の違いなどが考えられています。
臨床遺伝専門医からのメッセージ
よくある質問(FAQ)
🏥 遺伝子・遺伝性疾患のご相談
転写のしくみが関わる遺伝性疾患では、変異の種類によって選ぶ検査が変わります。ミネルバクリニックでは臨床遺伝専門医が常駐し、遺伝子パネル検査・全エクソーム解析・リピート伸長検査の中から、目的に合う検査を遺伝カウンセリングの中で選べます。
まだ検査を決めていない方は:遺伝カウンセリングとは | 全エクソーム検査(WES)
参考文献
- [1] Alberts B, Johnson A, Lewis J, et al. From DNA to RNA. In: Molecular Biology of the Cell. 4th ed. Garland Science; 2002. [NCBI Bookshelf NBK26887]
- [2] Cooper GM. Eukaryotic RNA Polymerases and General Transcription Factors. In: The Cell: A Molecular Approach. 2nd ed. Sinauer Associates; 2000. [NCBI Bookshelf NBK9935]
- [3] Hsin JP, Manley JL. The RNA polymerase II CTD coordinates transcription and RNA processing. Genes Dev. 2012;26(19):2119-2137. [DOI 10.1101/gad.200303.112]
- [4] Guo YE, Manteiga JC, Henninger JE, et al. Pol II phosphorylation regulates a switch between transcriptional and splicing condensates. Nature. 2019;572(7770):543-548. [DOI 10.1038/s41586-019-1464-0]
- [5] Bird A. DNA methylation patterns and epigenetic memory. Genes Dev. 2002;16(1):6-21. [DOI 10.1101/gad.947102]
- [6] Izumi K. Disorders of Transcriptional Regulation: An Emerging Category of Multiple Malformation Syndromes. Mol Syndromol. 2016;7(5):262-273. [DOI 10.1159/000448747]
- [7] Antonarakis SE, Irkin SH, Cheng TC, et al. beta-Thalassemia in American Blacks: novel mutations in the “TATA” box and an acceptor splice site. Proc Natl Acad Sci USA. 1984;81(4):1154-1158. [DOI 10.1073/pnas.81.4.1154]
- [8] Liu Q, Pan Y, Li XJ, et al. Molecular Mechanisms and Therapeutics for SCA17. Neurotherapeutics. 2019;16(4):1097-1105. [DOI 10.1007/s13311-019-00762-z]
- [9] Kumar A, Vaish M, Ratan RR. Transcriptional dysregulation in Huntington’s disease: a failure of adaptive transcriptional homeostasis. Drug Discov Today. 2014;19(7):956-962. [DOI 10.1016/j.drudis.2014.03.016]
- [10] Hansen AW, Arora P, Khayat MM, et al. Germline mutation in POLR2A: a heterogeneous, multi-systemic developmental disorder characterized by transcriptional dysregulation. HGG Adv. 2021;2(1):100014. [DOI 10.1016/j.xhgg.2020.100014]
- [11] Park E, Kim Y, Ryu H, et al. Epigenetic Mechanisms of Rubinstein-Taybi Syndrome. Neuromolecular Med. 2014;16(1):16-24. [DOI 10.1007/s12017-013-8285-3]
- [12] Noack Watt KE, Achilleos A, Neben CL, et al. The Roles of RNA Polymerase I and III Subunits Polr1c and Polr1d in Craniofacial Development and in Zebrafish Models of Treacher Collins Syndrome. PLoS Genet. 2016;12(7):e1006187. [DOI 10.1371/journal.pgen.1006187]
- [13] Perrier S, Michell-Robinson MA, Bernard G. POLR3-Related Leukodystrophy: Exploring Potential Therapeutic Approaches. Front Cell Neurosci. 2021;14:631802. [DOI 10.3389/fncel.2020.631802]
- [14] Lyons MJ. MED12-Related Disorders. In: Adam MP, et al., eds. GeneReviews®. University of Washington, Seattle; 2008 [updated 2021]. [NCBI Bookshelf NBK1676]
- [15] Shen G, Gao M, Cao Q, et al. The Molecular Basis of FIX Deficiency in Hemophilia B. Int J Mol Sci. 2022;23(5):2762. [DOI 10.3390/ijms23052762]
- [16] Piovesan A, Antonaros F, Vitale L, et al. Human protein-coding genes and gene feature statistics in 2019. BMC Res Notes. 2019;12(1):315. [DOI 10.1186/s13104-019-4343-8]
- [17] Parvin JD, McCormick RJ, Sharp PA, et al. Pre-bending of a promoter sequence enhances affinity for the TATA-binding factor. Nature. 1995;373:724-727. [DOI 10.1038/373724a0]
- [18] Alberts B, Johnson A, Lewis J, et al. Chromosomal DNA and Its Packaging in the Chromatin Fiber. In: Molecular Biology of the Cell. 4th ed. Garland Science; 2002. [NCBI Bookshelf NBK26834]
- [19] Jones PL, Veenstra GJ, Wade PA, et al. Methylated DNA and MeCP2 recruit histone deacetylase to repress transcription. Nat Genet. 1998;19(2):187-191. [DOI 10.1038/561]






