

目次
- 1 1. YRPWモチーフとは ─ HEYファミリーの「目印」
- 2 2. 名前の由来 ─ 「WRPW」から「YRPW」へ
- 3 3. 配列とドメイン構造 ─ YRPWはどこにあるのか
- 4 4. YRPWの意外な役割 ─ 「名前なのに必須ではない」
- 5 5. YRPWがなくても抑制できる理由 ─ 代替のしくみ
- 6 6. HEYタンパク質の翻訳後修飾 ─ YRPWの外で起きる調整
- 7 7. 進化 ─ YRPWはどこから来たのか
- 8 8. 疾患とのつながり ─ HEYの臨床的な顔
- 9 9. 遺伝診療との接点 ─ 用語をどう読み解くか
- 10 10. よくある誤解
- 11 まとめ ─ 「名前になった配列」の現在地
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

遺伝子やタンパク質の名前には、その「特徴」がそのまま刻まれていることがあります。YRPWモチーフもそのひとつで、これはチロシン(Y)・アルギニン(R)・プロリン(P)・トリプトファン(W)という、たった4つのアミノ酸が並んだ短い配列を指します。この4文字は、Notch(ノッチ)シグナルの下流で働く「HEY」という転写因子ファミリーの目印であり、ファミリーの名前そのものの由来にもなっています。ところが研究が進むと、この目印は「名前になるほど大切に保存されているのに、その働きはまだ完全には解明されていない」という、少し不思議な立ち位置にあることがわかってきました。この記事では、YRPWモチーフとは何か、なぜHEYの名前に選ばれたのか、そして転写のしくみや遺伝性の病気とどうつながるのかを、現在の医学的知見に基づいて解説します。
Q. YRPWモチーフとは何ですか?まず結論だけ知りたいです
A. YRPWモチーフとは、Tyr(Y)-Arg(R)-Pro(P)-Trp(W)という4つのアミノ酸からなる短い配列で、Notchシグナルの下流で働く「HEY」転写因子ファミリーを特徴づける目印です。HEYという名前自体が「Hairy/Enhancer-of-split-related with YRPW motif(YRPWモチーフをもつHairy/E(spl)関連因子)」の略で、この配列に由来します。YRPWはHEYの転写を抑える働きそのものには必須ではないことが実験で示されており、その固有の役割は現在も研究段階にあります。
- ➤正体 → Tyr-Arg-Pro-Trp の4アミノ酸。HEYタンパク質のC末端近くにある保存された短い配列
- ➤名前の由来 → HES/Hairyの「WRPW」に対し、先頭がTyr(Y)に変わった「YRPW」からHEYと命名された
- ➤メンバー差 → HEY1=YRPW、HEY2=YQPW、HEYL=YHSW。共通形は「Y-X-X-W」
- ➤意外な事実 → HESのWRPWと違い、YRPWは通常コリプレッサーTLEを呼び込まず、削っても抑制活性は保たれる
- ➤医療とのつながり → HEY1やHEY2は融合遺伝子や心疾患のGWASで名前が挙がるが、YRPW配列そのものが原因という証拠は未確立
🧬 YRPWモチーフの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・表記 | ワイ・アール・ピー・ダブリュー モチーフ(YRPW motif)。4つのアミノ酸の1文字表記をつなげた名前 |
| 配列 | Tyr(Y)-Arg(R)-Pro(P)-Trp(W)。HEYタンパク質のC末端側にある保存モチーフ |
| 属するファミリー | HES / HEYファミリー(bHLH-Orange型転写因子) |
| メンバーごとの配列 | HEY1=YRPW、HEY2=YQPW、HEYL=YHSW。共通コンセンサスはY-X-X-W[9] |
| 上流のしくみ | Notchシグナル伝達の主要な標的(下流因子)[4] |
| 医療との関わり | HEY1・HEY2は融合遺伝子や心疾患の遺伝研究で登場。ただしYRPW配列自体が疾患原因という証拠は限定的 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. YRPWモチーフとは ─ HEYファミリーの「目印」
タンパク質は、アミノ酸という部品が数珠つなぎになってできています。その並び順(配列)の中で、特定の役割を担う短いまとまりを「モチーフ」と呼びます。YRPWモチーフは、Tyr(チロシン)・Arg(アルギニン)・Pro(プロリン)・Trp(トリプトファン)という4つのアミノ酸が並んだ短い配列で、HEYと呼ばれる転写因子ファミリーのC末端(タンパク質の後ろ側)近くに保存されています。
HEYは、Notchシグナルという、細胞どうしが接触して情報をやりとりするしくみの下流で働く転写因子です[4]。転写因子とは、遺伝子のスイッチのオン・オフを制御するタンパク質のことで、HEYはおもに遺伝子の働きを抑える「抑制側」として振る舞います。哺乳類にはHEY1・HEY2・HEYLという3つの仲間があり、心臓や血管、体節(からだの節の元)、神経系など、発生のさまざまな場面で活躍します[2]。
💡 用語解説:アミノ酸の1文字表記
アミノ酸には、それぞれアルファベット1文字の記号が決められています。Y=チロシン、R=アルギニン、P=プロリン、W=トリプトファンです。「YRPW」とは、この4つが順番に並んでいることを表した略号にすぎません。同じように、後で出てくる「WRPW」は、先頭がW(トリプトファン)に変わった配列を意味します。ペプチド(アミノ酸が数個つながった短いもの)として、このような短い配列がタンパク質どうしの「合図」になることは珍しくありません。
ここで押さえておきたいのは、YRPWは「4残基のモチーフ」であると同時に、HEYサブファミリーの歴史的な命名の目印でもある、という二重の意味を持つ点です。つまりYRPWという言葉は、単なる配列を指すだけでなく、「HEYとはこういう仲間だ」という定義そのものを背負っています。次の章では、なぜこの4文字がファミリーの名前に選ばれたのかを見ていきます。
HEYが属するのは、bHLH-Oファミリーと呼ばれる大きなグループです。「O」はOrange(オレンジ)ドメインの頭文字で、DNAに結合するbHLHのすぐ後ろに、このOrangeという領域を持つことが共通の特徴です。同じbHLH-Oの中でも、HES(Hairy/Enhancer of split)とHEYは別のサブグループにあたります。両者はよく似た兄弟のような関係ですが、C末端の目印が「WRPW」ならHES系、「Y-X-X-W」ならHEY系という具合に、まさにこの短い配列で区別されます。HEYがおもに抑制側の転写因子として働くこと自体は、多くの研究で一致した見解です[4]。ただし、その抑制を実際に生み出すしくみは一つではなく複数あり、YRPWはそのうちの一つの「候補」にすぎなかった——という点が、この記事後半の大きな伏線になります。名前を背負うほど目立つ配列なのに、機能の中心からは少し外れている。この意外なねじれを、これから順にほどいていきます。
2. 名前の由来 ─ 「WRPW」から「YRPW」へ
YRPWという名前の由来を理解するには、その「兄貴分」にあたるWRPWモチーフを知っておく必要があります。古くから知られていたHairy/Enhancer of split〔E(spl)〕という転写抑制因子のグループは、C末端にWRPWモチーフ(Trp-Arg-Pro-Trp)を持つことで有名でした。このWRPWは、後で詳しく述べるように、抑制の相棒となるタンパク質を呼び込むための「握手の手」として働きます。
1999年、Leimeisterらはマウスの胚から、Hairy/E(spl)によく似た新しいbHLH遺伝子群をクローニングしました[1]。ところが、これらの新しいタンパク質は、C末端に古典的なWRPWではなく「KPYRPWG」という配列を持っていました。先頭のアミノ酸が、トリプトファン(W)からチロシン(Y)に置き換わっていたのです。この特徴から、研究者たちはこの遺伝子群を「HEY」(Hairy/E(spl)-related with YRPW motif = YRPWモチーフをもつHairy/E(spl)関連因子)と名づけました[1]。同じ時期に別のグループも同じ遺伝子群を見つけており、HRT・HERP・HESR・CHFなど複数の別名でも呼ばれます[2][3]。
🔤 WRPWとYRPW ─ 1文字の違いが名前を分けた
先頭がW(トリプトファン)→Y(チロシン)に変わっただけ。しかし、この1残基の違いが、後で述べるように「相棒選び」を大きく左右します[9]。
このとき、もう一つの重要な特徴も報告されました。HEYの仲間では、bHLH領域の中にある特徴的なプロリンが、すべてのメンバーでグリシンに置き換わっており、さらにYRPWのすぐ下流に「TE(I/V)GAF」という保存配列が続いていたのです[1]。名前の目印であるYRPWと、その後ろのTE(I/V)GAF。この二つがセットで、HEYという新しいファミリーの「顔」になりました。
HEYファミリーがいくつもの名前を持つのも、発見の経緯によるものです。同じ遺伝子群が、研究グループごとにHRT・HERP・HESR・CHF・gridlock(グリッドロック)など、異なる名前で報告されました[2][5]。たとえばNakagawaらは、これらを「HRT1・HRT2・HRT3」と名づけ、発生中の心臓・体節(からだの節の元)・咽頭弓といった特定の場所で規則正しく発現することを示しました[2]。名前は違っても、指しているのは同じHEY1・HEY2・HEYLです。こうした同義語の多さは、文献を読むときに人を混乱させるもとになりますが、「C末端にY-X-X-Wを持つ、Notch下流のbHLH-O型の抑制因子」という共通点さえ押さえておけば、名前の海で道に迷わずにすみます。逆に言えば、YRPWという4文字は、こうしたバラバラの呼び名を貫く共通のアイデンティティとして選ばれた、ともいえるのです。
3. 配列とドメイン構造 ─ YRPWはどこにあるのか
HEYタンパク質の全体像を整理すると、N末端(前側)から順に、DNAに結合するbHLH(塩基性ヘリックス・ループ・ヘリックス)領域、二量体化を安定させるOrangeドメイン、比較的長いC末端領域、そしてその中のY-X-X-Wモチーフと、続くTE(I/V)GAF配列、という並びになっています。つまりYRPWは、数十残基の大きな折り畳みドメインではなく、C末端領域にある「短い保存配列」だという点がまず大切です。
ここで注意したいのが、HEYファミリーの全員が厳密な「YRPW」を持つわけではないという点です。哺乳類で比べると、HEY1はYRPW、HEY2はYQPW(2番目がArg→Gln)、HEYLはさらに変化したYHSWを持っています[9]。そのため、ファミリー全体を正確に表すコンセンサス(共通配列)は、厳密な4残基ではなく「Y-X-X-W」(先頭がチロシン、末尾がトリプトファンで、間の2つは可変)と表現するのが安全です。
🧬 メンバーごとのC末端モチーフの違い
共通するのは先頭のY(チロシン)と末尾のW(トリプトファン)だけ。だからファミリー全体は「Y-X-X-W」と表すのが正確です[9]。
⚠️ 名前と実際の配列がずれる例
HEY2という遺伝子の正式名は「hairy/enhancer-of-split related with YRPW motif 2」ですが、実際の4残基は YRPW ではなく YQPWです。名前にYRPWと入っていても、そのタンパク質が厳密なYRPWを持っているとは限らない——遺伝子名と実配列は分けて考える必要があります。
ヒトのHEY1とマウスのHey1を比べると、55アミノ酸のbHLH領域とC末端の最後の13アミノ酸は完全に一致し、Orangeドメインも98%が同じという高い保存性が知られています[3]。HEYで最も強く保存され、機能もよく実証されている構造は、実はbHLHとOrangeの2つです。bHLHはDNAの認識・二量体(ダイマー)形成・複数の相棒との結合を担い、Orangeは二量体の安定化に寄与します。では、名前の由来にもなったYRPW自身は、いったい何をしているのでしょうか。ここからが、この記事の核心です。
DNAへの結合のしかたにも、HESとHEYで違いがあります。bHLH-O因子は、標的となる遺伝子の近くにある「Nボックス」や「Eボックス」と呼ばれる短いDNA配列を認識します。HEYの仲間は、CACGTGを中心とするクラスCのEボックスを好んで結合することが報告されており[6]、この点でもHESとは少しずつ性質が異なります。ただし、HEYが単独でどのDNA配列をどれだけ強く結合するかは、実験系や相手のタンパク質によって変わり、GATA因子などを介した「間接的な結合」も重要だと考えられています[9]。ここで改めて確認しておきたいのは、DNA結合・二量体化・相手選びという中心的な機能が、いずれもbHLHとOrangeに集約されているという事実です。名前の目印であるYRPWは、この主要機能の並びから少し離れた「C末端の付け足し」のような位置にあります。この配置の妙が、次章で述べるYRPWの意外な立場を理解する鍵になります。
4. YRPWの意外な役割 ─ 「名前なのに必須ではない」
YRPWを理解するうえで最も大切な考え方は、「HEYタンパク質の機能」と「YRPW配列そのものの機能」を分けて評価することです。多くの人は、名前の由来になるほど保存された配列なら、さぞ重要な働きをしているはずだと考えます。ところが実験結果は、その直感とは少し違う姿を見せてくれます。
出発点は、兄貴分のWRPWです。HES/HairyのWRPWモチーフは、Groucho/TLEコリプレッサーという「抑制の相棒」を直接呼び込みます[8]。2006年には、ヒトTLE1のWD40ドメインとWRPWペプチドが結合した結晶構造(PDB 2CE9)が解かれ、WRPWの先頭のトリプトファンが、TLE側の疎水性のポケットにぴたりとはまるようすが示されました[8]。
💡 用語解説:コリプレッサーとは
転写を抑える転写因子は、単独ではなく「補助役」を呼び寄せて働くことがよくあります。この補助役をリプレッサーに対してコリプレッサー(共抑制因子)と呼びます。Groucho/TLEはその代表格で、さらにヒストンを修飾する酵素などを引き連れて、遺伝子のまわりを「読まれにくい」状態に整えます。WRPWは、このGroucho/TLEを呼ぶための握手の手だった、というわけです。
ところがHEYでは事情が違います。HEY1やHEY2のYRPW/YQPWは、TLEを効率よく結合しません[9]。構造的に見ると、WRPWの先頭Trpが埋めていた疎水性ポケットを、HEYのチロシンではうまく満たせないためだと説明されます。決定的なのは、HEY1のYRPWの先頭YをWに置き換える(YRPW→WRPW)と、TLE1と結合できるようになるという実験です[9]。これは、たった1残基の違いが「相棒選び」を切り替えることを示す、最も明快なモチーフ変異実験です。
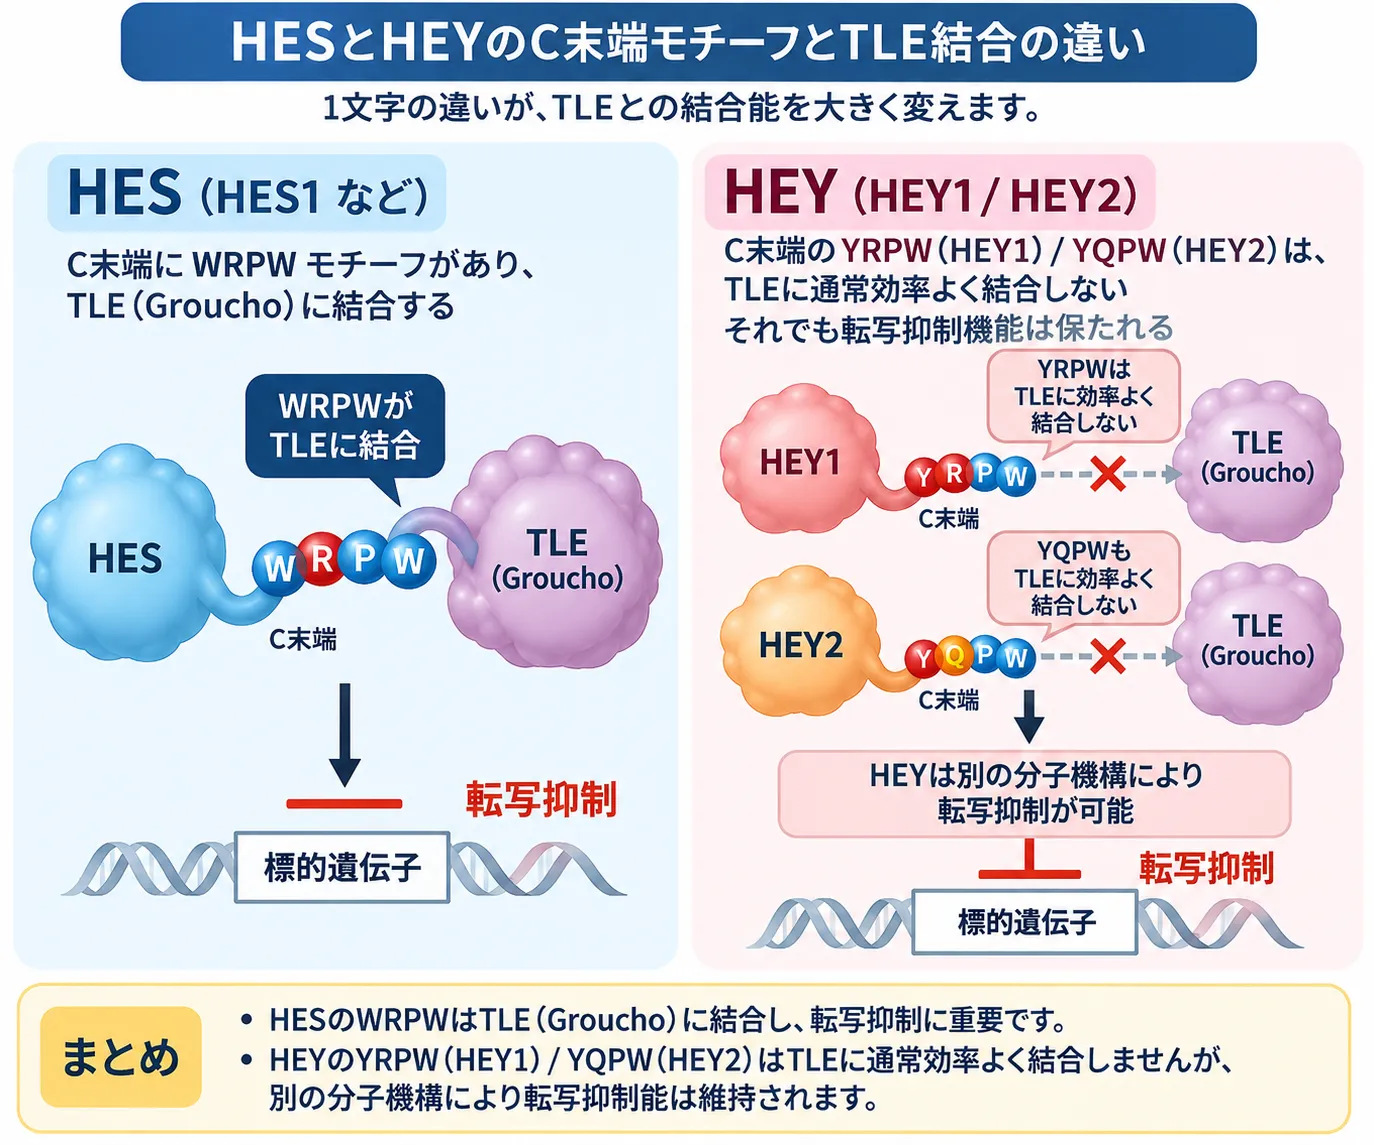
HESではC末端のWRPWモチーフがGroucho/TLEコリプレッサーに結合し、転写抑制に関与します。一方、HEY1のYRPWモチーフやHEY2のYQPWモチーフは通常TLEに効率よく結合せず、これらのC末端モチーフを欠失してもHEYの転写抑制活性が保たれることが報告されています。この違いから、HEYではHESのWRPW–TLE結合とは異なる機構が転写抑制を担うことが示されています。
💡 用語解説:ミスセンス変異(1文字の置き換え)
あるアミノ酸が別のアミノ酸に置き換わる変化をミスセンス変異といいます。ここで紹介した「Y→W」は、研究者が意図的に作り出したミスセンス型の改変で、病気の変異という意味ではありません。1文字を変えるだけでタンパク質のふるまいが変わることを確かめる、しくみ研究の手法です。
さらに、アフリカツメガエルのHEY(XHRT1)を使った研究では、C末端のYRPW(YRPWGTEIGAFの領域)を丸ごと削っても、転写を抑える活性は保たれたのです[6]。同じ研究で、XHRT1はGrouchoを呼び込まないことも確認され、加えてこのタンパク質がCACGTGを中心とするEボックス配列を好んで結合することも示されました[6]。つまりHEYの「抑制」は、WRPW→TLEというHES型の単純なしくみでは説明できないのです。
これらをまとめると、現在の証拠に最も忠実な結論は次のようになります。YRPWはHEYを定義する保存された短い配列だが、その固有の生化学的役割(保存されている理由)はまだ完全には解明されていない——。名前の由来でありながら、機能はミステリーのまま。それがYRPWの現在地です。
5. YRPWがなくても抑制できる理由 ─ 代替のしくみ
では、YRPWに頼らないHEYは、どうやって遺伝子を抑えているのでしょうか。答えは、bHLH領域にあります。HEY1・HEY2の強い抑制活性は、このbHLH領域にマッピングされており、この領域がN-CoRやmSin3Aという別のコリプレッサーと直接結合し、それらを介してHDAC(ヒストン脱アセチル化酵素)を呼び込みます[5][9]。さらにHEY2のbHLH領域は、もう一つのヒストン脱アセチル化酵素であるSIRT1(サーチュイン)とも結合し、抑制を強めます[9]。つまり、YRPWがなくても、クロマチンを抑える因子を呼び込む独立した分子経路が存在するのです。
💡 用語解説:ヒストン脱アセチル化酵素(HDAC)
DNAは、ヒストンというタンパク質に巻き付いて収納されています。ヒストンに付いた「アセチル基」という目印が外れると、DNAはぎゅっと締まって読まれにくくなります。この目印を外すのがHDACで、遺伝子を「オフ」にする方向に働きます。mSin3A・N-CoR・HDACは、こうした抑制を担う複合体としてよく知られています。
もう一つの鍵が、二量体(ダイマー)の形成です。HEYは、HEYどうし、あるいはHESと組んで、ホモ二量体・ヘテロ二量体をつくります。Orangeドメインがこれらの結合を安定させ、HES–HEYのヘテロ二量体は、それぞれのホモ二量体よりも安定で、DNA結合能が高くなる場合もあります[5]。HEYはさらに、GATA因子・RBPJκ・MyoD・HAND1/2・SRFなど多くの転写因子とも相互作用し、DNAに直接結合するだけでなく、相手の活性を変えることでも遺伝子の出力を制御します[9]。たとえば、GATA-4のような心臓の転写因子を抑えることも報告されています。
DNA結合・二量体化
SIRT1を呼び込む
クロマチンを締める
抑制
この一連のしくみは、いずれもYRPWを必要としません。だからこそ、YRPWを削っても抑制活性が保たれる、という一見不思議な実験結果とつじつまが合うのです。既知のHEYの相互作用ネットワークの大部分は、bHLH/Orange領域に集約されており、YRPWに直接ひもづく最も明瞭な事実は、むしろ「TLEを結合しない」という“しないこと”のほうだ、というのが現状です。
🩺 院長コラム【「保存されている=必須」とは限らない】
進化の中で保存されてきた配列は、重要な機能を担う可能性があります。しかしYRPWでは、保存性の高さだけから転写抑制に必須であるとは結論できません。強く保存されているのに、削っても抑制活性は保たれる。この「保存性の高さ」と「明確な必須機能の不在」のギャップは、細胞の種類によって変わる結合相手や、タンパク質の安定性、局在の調整など、通常の実験では見えにくい役割が隠れている可能性を示しています。ただしこれは現時点では仮説であり、直接の証拠はまだありません。
遺伝子の変化を解釈するときも、ある領域で既知の機能が確認されていないことだけを理由に「意味がない」と結論することはできません。未解明の点は未解明のまま区別して扱うことが、遺伝学的情報の解釈では重要です。
6. HEYタンパク質の翻訳後修飾 ─ YRPWの外で起きる調整
タンパク質は、つくられた後にさまざまな化学的な「装飾」を受けて機能を変えます。これを翻訳後修飾といいます。HEYでもいくつかの修飾が実証されていますが、興味深いことに、そのほとんどはYRPWから離れた場所で起きています。
まずリン酸化です。2016年の研究で、HEY1のSer68(68番目のセリン、bHLH領域内)が細胞分裂(有糸分裂)のときにリン酸化されることが示されました[14]。このたった1か所のリン酸化が、HEY1の安定性や、がん抑制因子p53を活性化する能力を左右することもわかっています[14]。HEYは固定された「抑制装置」ではなく、細胞周期に応じてリン酸化で微調整される、動的なタンパク質なのです。
次に、より包括的に解明されたのがSUMO化です。2024年の研究では、HEY1のK82・K90・K292という3つのリジンがSUMO化を受けること、そしてそのSUMO化を担うE3リガーゼがTRIM28であることが同定されました[15]。このSUMO化は単なる目印にとどまらず、機能的にも重要でした。SUMO化はHEY1のホモ二量体形成を助け、それによってEボックスへの結合を保ち、受容体チロシンキナーゼ(RTK)やNotch経路の因子を抑える——つまり血管新生を抑える方向に働くことが、培養内皮細胞やマウスの実験で示されました[15]。ここでも修飾部位はYRPWそのものではありません。
💡 用語解説:SUMO化とユビキチン化
どちらも、小さなタンパク質を目印として付ける修飾です。SUMO化は、相手の性質(結合のしやすさや居場所)を変える「調整」の意味合いが強い修飾です。一方、ユビキチン化は、多くの場合「もう分解してよい」という荷札として働き、プロテアソームという分解装置へと送られます。
タンパク質の寿命も調整されています。HEY1は短寿命のタンパク質で、プロテアソームによって分解されることが知られています[13]。2015年の研究では、FBXO45・PAM・SKP1というユビキチンリガーゼ関連の複合体がHEY1と結合することが同定されました。ただし、この複合体がHEY1自身をユビキチン化するという直接の証拠は得られず、むしろHEY1がこの複合体を核内へ運ぶ、という別の役割が提案されています[13]。
なお、YRPWの4残基そのものがリン酸化やSUMO化などを受けるという直接の証拠は、現時点では確認されていません。理屈のうえでは先頭のチロシンがリン酸化されうるとしても、「HEY1のYRPW中のチロシンが生理的にリン酸化される」と示した実験は見当たりません。既知の修飾と、あくまで可能性にとどまる修飾は、はっきり区別して考える必要があります。
7. 進化 ─ YRPWはどこから来たのか
HES/HEYファミリーは、動物界に古くから存在するbHLH-Oファミリーです。10種以上を対象にした比較ゲノム研究では、HES/HEY様の遺伝子は後生動物(多細胞動物)にのみ存在し、共通祖先で成立した可能性が示されています[10]。ただし、これは系統推定に基づくモデルであって、厳密なYRPWの4残基が動物のはじまりまでずっと保存されている、という意味ではありません。
実際、同じ解析では、刺胞動物イソギンチャクの一種(Nematostella vectensis)のHEY様配列には、対応するC末端の4残基モチーフが見いだされなかった例が報告されています[10]。つまり「HEY系統が存在すること」と「YRPWモチーフが存在すること」は同義ではなく、YRPW/Y-X-X-Wは進化の過程で獲得・変化・消失していると考えられます。魚類では、ゼブラフィッシュが哺乳類と同じ3遺伝子構成を持つ一方、フグの仲間では重複や高い分岐、消失の候補が見られるなど、系統ごとに複雑なパターンが知られています[10]。
興味深いのは、YRPWの下流のTE(I/V)GAFが強く残っているにもかかわらず、その領域を削っても抑制が維持される、という点です。この「高い保存性」と「明確な必須機能の不在」の食い違いは、YRPWの謎の中心にあり、その保存理由が未解明であること自体が、レビュー論文でも率直に述べられています[9]。
8. 疾患とのつながり ─ HEYの臨床的な顔
HEYファミリーは、発生・血管・心臓に深く関わります。マウスでHey1単独をなくしても大きな異常は出ませんが、Hey1とHey2を同時になくすと、血管の形成に重大な障害が起こり、胚が生存できません[7]。これは、YRPWとYQPWという異なるC末端を持つパラログ(似た遺伝子)が、生体内で互いに補い合う(機能的冗長性)ことを示しています。ただしこれは「YRPWが必須」という証拠ではなく、あくまでHEYタンパク質全体の重要性を示すものです。
臨床分子病理で最も目立つHEY関連の現象が、HEY1::NCOA2という融合遺伝子です。2012年、ゲノム規模の解析から、間葉性軟骨肉腫という腫瘍でHEY1とNCOA2が再発性に融合していることが同定され、その後も重要な診断マーカーとして検証されています[11]。ただしここで重要なのは「HEY1遺伝子とその融合」であって、YRPWという4残基そのものが腫瘍形成に必要だと示されたわけではありません。
💡 用語解説:融合遺伝子
融合遺伝子とは、本来は別々の2つの遺伝子が、染色体の組み換えなどによってつながり、1本の「キメラ遺伝子」になったものです。がんの分野では、特定の腫瘍に特徴的な融合遺伝子が診断の目印として使われることがあります。HEY1::NCOA2は、その一例です。
もう一つ、心臓の電気生理との関わりがあります。2013年の大規模なGWAS(ゲノムワイド関連解析)で、SCN5A–SCN10A領域およびHEY2近傍のありふれた変異(common variant)が、ブルガダ症候群と関連することが示されました[12]。HEY2は、心室の電気的な性質を調整する転写因子として位置づけられています。ただしここでも、疾患に関連するSNP(一塩基多型)とC末端のYQPW配列との間に、直接の因果関係が示されたわけではありません。
文献を踏まえて整理すると、証拠の強さには階層があります。強い証拠としては、HEY1/2がNotch下流の重要な発生・転写制御因子であること、HEY1::NCOA2が間葉性軟骨肉腫の分子異常として重要であること、HEY2の座位がブルガダ症候群と関連すること。限定的な証拠としては、YRPW自体が独立した疾患原因モチーフや治療標的であること。そして明確に否定的・限定的な証拠として、YRPWはHEYの通常の転写抑制に必須ではなく、HESのWRPWと違って通常TLEを呼び込まないこと。同じ遺伝子でも「どの部分の話か」によって意味が変わるため、遺伝子全体についての知見と特定のモチーフについての知見を区別して解釈する必要があります。
9. 遺伝診療との接点 ─ 用語をどう読み解くか
YRPWモチーフは、日常の遺伝子検査で直接調べる対象ではなく、基本的には基礎研究の領域にあるトピックです。それでも、遺伝診療の考え方を理解するうえで、いくつかの大切な示唆を与えてくれます。
第一に、「遺伝子や配列の機能を、一つの物差しだけで判断してはいけない」ということです。YRPWは、名前になるほど保存されているのに、転写抑制という一つの物差しでは「必須ではない」と出ました。これは、遺伝子検査で見つかった変化を読み解くときにも通じます。ある部分の働きが分かっていない、あるいは一見「影響が小さそう」に見えても、それだけで臨床的な意味がないとは言い切れません。逆に、名前や配列の印象に引きずられて過大評価するのも危険です。
第二に、「遺伝子の名前」と「実際の配列・機能」を分けて考える習慣です。HEY2という名前にYRPWと入っていても実配列はYQPWだったように、名前は歴史的経緯でつけられ、実態とずれることがあります。遺伝形式や変異の意味を検討するときも、名称の印象ではなく、一次情報に基づいて事実を確かめる姿勢が欠かせません。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合うのは、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのか、といった点です。検査を受けるかどうかを含め、決めるのはご本人であり、私たちは中立の立場で判断材料を整理する役割を担います。YRPWのような基礎的なトピックは、こうした「情報の読み解き方」を支える土台として位置づけています。
10. よくある誤解
誤解①「名前になるほど保存された配列だから、抑制に必須のはず」
直感に反して、YRPWを削ってもHEYの転写抑制は保たれます。抑制の主役はbHLH領域とそこに集まるコリプレッサーで、YRPWは必須ではありません。名前の由来と、機能上の必須性は別の話です。
誤解②「YRPWはWRPWと同じようにTLEを呼ぶ」
WRPWはGroucho/TLEを呼びますが、YRPW/YQPWは通常TLEを効率よく結合しません。先頭のY→W置換でようやくTLE結合能が生まれることが、そのことを裏づけています。
誤解③「HEYファミリーはみんなYRPWを持つ」
実際はHEY1=YRPW、HEY2=YQPW、HEYL=YHSWと少しずつ違います。共通するのは先頭Yと末尾Wだけで、正確には「Y-X-X-W」と表すのが適切です。
誤解④「YRPW配列そのものが病気の原因になる」
HEY1::NCOA2融合やHEY2近傍の変異は疾患と関連しますが、これはHEY遺伝子の話であって、YRPWの4残基が原因だと示されたわけではありません。両者は分けて考える必要があります。
まとめ ─ 「名前になった配列」の現在地
YRPWモチーフをめぐる研究が教えてくれるのは、「HEYタンパク質の機能」と「YRPW配列そのものの機能」を分けて評価することの大切さです。HEY1/2/LがNotchのエフェクター、心血管発生の因子、転写抑制因子として重要であることには、遺伝学・生化学・細胞生物学の強い証拠があります[4][7]。一方、YRPW/Y-X-X-W自体について直接得られている情報は、①WRPWと違いTLEを通常結合しない、②Y→WでTLE結合を獲得する、③削っても抑制が保たれる、という比較的限られた3点に集中しています[6][9]。
したがって、YRPWを単純に「転写抑制モチーフ」と書くのは、現在の証拠からは正確ではありません。より適切なのは、「HEYサブファミリーに特徴的な、保存されたC末端のY-X-X-Wモチーフ。HESのGroucho/TLE結合型WRPWと相同的な位置にあるが、通常はTLE結合能を失っており、その固有の保存機能はまだ解明されていない」という説明です。名前の由来でありながら、その本当の役割は、いまも研究者に問いを投げかけ続けています。今後、この領域だけを精密に編集した動物モデルや、C末端を含む複合体の高分解能構造などが、この謎に答えを与えてくれるかもしれません。
よくある質問(FAQ)
Q1. YRPWモチーフとは何ですか?
YRPWモチーフとは、チロシン(Y)・アルギニン(R)・プロリン(P)・トリプトファン(W)という4つのアミノ酸からなる短い配列で、Notchシグナルの下流で働く「HEY」という転写因子ファミリーの目印です。HEYという名前自体が「YRPWモチーフをもつHairy/E(spl)関連因子」の略で、この配列に由来します。
Q2. なぜ「YRPW」がHEYの名前になったのですか?
もともと知られていたHES/Hairyという抑制因子は、C末端に「WRPW」という配列を持っていました。1999年に見つかった新しい仲間は、その先頭がW(トリプトファン)からY(チロシン)に変わった「YRPW」を持っていたため、この特徴からHEYと名づけられました。1文字違いが、そのまま新しいファミリーの名前になったのです。
Q3. HEY1・HEY2・HEYLはみんなYRPWを持っていますか?
いいえ、少しずつ違います。HEY1はYRPW、HEY2はYQPW、HEYLはYHSWです。共通しているのは先頭のY(チロシン)と末尾のW(トリプトファン)だけで、ファミリー全体を正確に表すときは「Y-X-X-W」(間の2つは可変)と書くのが適切です。HEY2は名前に「YRPW」と入っていても、実際の配列はYQPWである点に注意が必要です。
Q4. YRPWは転写を抑えるために必須ですか?
転写抑制に必須ではありません。YRPWを丸ごと削っても、HEYの転写を抑える活性は保たれることが実験で示されています。HEYの抑制は、おもにbHLH領域と、そこに集まるN-CoR・mSin3A・HDAC・SIRT1といった補助因子が担っています。YRPWが強く保存されている理由は、まだ完全には解明されていません。
Q5. YRPWモチーフは病気と関係がありますか?
HEY1やHEY2という遺伝子・タンパク質は、間葉性軟骨肉腫のHEY1::NCOA2融合遺伝子や、ブルガダ症候群のGWASなどで名前が挙がります。ただし、これらはいずれも「HEY遺伝子」の話であって、YRPWという4残基の配列そのものが原因だと示されたわけではありません。YRPWは現時点では、独立した疾患原因や治療標的としては確立していません。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Hey genes: a novel subfamily of hairy- and Enhancer of split related genes specifically expressed during mouse embryogenesis. Mech Dev. 1999. [PubMed 10415358]
- [2] HRT1, HRT2, and HRT3: a new subclass of bHLH transcription factors marking specific cardiac, somitic, and pharyngeal arch segments. Dev Biol. 1999. [PubMed 10588864]
- [3] Characterization of the human and mouse HEY1, HEY2, and HEYL genes: cloning, mapping, and mutation screening of a new bHLH gene family. Genomics. 2000. [PubMed 10860664]
- [4] Members of the HRT family of basic helix-loop-helix proteins act as transcriptional repressors downstream of Notch signaling. Proc Natl Acad Sci U S A. 2000. [PubMed 11095750]
- [5] HERP, a novel heterodimer partner of HES/E(spl) in Notch signaling. Mol Cell Biol. 2001. [PubMed 11486045]
- [6] Transcriptional repression by the bHLH-Orange factor XHRT1 does not involve the C-terminal YRPW motif. Biochim Biophys Acta. 2004. [PubMed 15451171]
- [7] The Notch target genes Hey1 and Hey2 are required for embryonic vascular development. Genes Dev. 2004. [PubMed 15107403]
- [8] Molecular recognition of transcriptional repressor motifs by the WD domain of the Groucho/TLE corepressor. Mol Cell. 2006. [PubMed 16762837]
- [9] Delta-Notch—and then? Protein interactions and proposed modes of repression by Hes and Hey bHLH factors. Nucleic Acids Res. 2007. [PubMed 17586813]
- [10] Comparative and evolutionary analysis of the HES/HEY gene family reveal exon/intron loss and teleost specific duplication events. PLoS One. 2012. [PubMed 22808219]
- [11] Identification of a novel, recurrent HEY1-NCOA2 fusion in mesenchymal chondrosarcoma based on a genome-wide screen of exon-level expression data. Genes Chromosomes Cancer. 2012. [PubMed 22034177]
- [12] Common variants at SCN5A-SCN10A and HEY2 are associated with Brugada syndrome, a rare disease with high risk of sudden cardiac death. Nat Genet. 2013. [PubMed 23872634]
- [13] Hey bHLH proteins interact with a FBXO45 containing SCF ubiquitin ligase complex and induce its translocation into the nucleus. PLoS One. 2015. [PubMed 26068074]
- [14] HEY1 functions are regulated by its phosphorylation at Ser-68. Biosci Rep. 2016. [PubMed 27129302]
- [15] SUMOylation fine-tunes endothelial HEY1 in the regulation of angiogenesis. Circ Res. 2024. [PubMed 38166414]






