

目次
- 1 1. SUMO化とは ─ タンパク質に付ける「小さな目印」
- 2 2. SUMO化はどう進む ─ 3つのステップとリレー
- 3 3. ユビキチンとの違い ─ 「分解」ではなく「組み替え」
- 4 4. SUMOの種類 ─ SUMO1からSUMO4、そしてSUMO5
- 5 5. 細胞での働き ─ 核を中心とした「交通整理」
- 6 6. 疾患との関わり ─ がん・神経変性・感染症
- 7 7. 治療への応用 ─ TAK-981と白血病のヒ素治療
- 8 8. 遺伝診療との接点 ─ SUMO化をどう位置づけるか
- 9 9. 研究の最前線 ─ 「部位」から「ネットワーク」へ
- 10 10. よくある誤解
- 11 まとめ ─ SUMO化という「組み替えのシステム」
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

細胞の中では、タンパク質が作られた後にも、さまざまな小さな「タグ(目印)」が付けられて、その働きや居場所が細かく調整されています。こうした仕組みを翻訳後修飾(ほんやくごしゅうしょく)といいます。その代表格が「リン酸化」や「ユビキチン化」ですが、それらと並んで近年とても重要視されているのがSUMO化(スモか/SUMOylation)です。SUMOという小さなタンパク質を目印として付け外しすることで、細胞は自分の中のタンパク質どうしのつながりや配置を、すばやく組み替えています。この記事では、SUMO化とは何か、どんな仕組みで進むのか、そしてがん・神経変性・感染症といった病気や、TAK-981のような新しい薬とどうつながるのかを、遺伝専門医の視点でやさしく解説します。
Q. SUMO化とは何ですか?まず結論だけ知りたいです
A. SUMO化とは、SUMO(小さなユビキチン様タンパク質)を、標的となるタンパク質のリジンというアミノ酸に、外し直しができる形でくっつける翻訳後修飾のことです。よく似た仕組みの「ユビキチン化」がおもにタンパク質を分解へ送る目印なのに対し、SUMO化の主な役割は分解ではありません。タンパク質どうしのつながり、細胞の中での居場所、複合体の組み立て、酵素の働きなどを、短時間で切り替える「分子のスイッチ」や「接着面」として働きます。がんでは治療の標的として、神経変性や感染症では病気の理解の鍵として注目されています。
- ➤正体 → SUMOという小さなタンパク質を、標的のリジンに外し直しできる形で結合させる翻訳後修飾
- ➤主な役割 → 分解ではなく、タンパク質どうしのつながり・居場所・複合体を組み替える「スイッチ/接着面」
- ➤担い手 → E1・E2(UBC9)・E3という酵素のリレーで付き、SENPという酵素で外される
- ➤病気とのつながり → がん・神経変性・感染症で、防御にも病気の進行にも関わる
- ➤治療への応用 → SUMO化を止める薬TAK-981の臨床試験や、白血病のヒ素治療が代表例
🧬 SUMO化の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | スモか/SUMOylation(スモイレーション)。SUMOは Small Ubiquitin-like Modifier(小さなユビキチン様修飾因子)の略 |
| 定義 | SUMOタンパク質を、標的タンパク質のリジン残基に、外し直しができる形(可逆的)で共有結合させる翻訳後修飾 |
| 主なはたらき | タンパク質どうしの結合・細胞内の居場所・複合体形成・酵素活性を短時間で組み替える分子スイッチ。分解が主目的ではない |
| 担う酵素 | E1(SAE1–UBA2)→ E2(UBC9)→ E3(PIAS群など)のリレーで付加。SENPという酵素が付け外しを担当 |
| SUMOの種類 | ヒトではSUMO1・SUMO2・SUMO3・SUMO4が知られ、SUMO5も提唱されている |
| 医療との関わり | がん治療の標的(TAK-981など)、白血病のヒ素治療、神経変性・感染症の理解に関わる |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。特に断らないかぎり、ヒト・哺乳類のSUMO化を中心に説明しています。
1. SUMO化とは ─ タンパク質に付ける「小さな目印」
私たちの体の中では、遺伝子の設計図をもとにタンパク質が作られます。ところが、タンパク質は作られたら終わり、ではありません。作られた後にも、小さな分子を付けたり外したりして、その働きを細かく調整する仕組みが備わっています。これを翻訳後修飾といいます。リン酸化やアセチル化、ユビキチン化などがよく知られていますが、その仲間として重要なのがSUMO化です。
SUMOとは、Small Ubiquitin-like Modifier(小さなユビキチン様修飾因子)の頭文字をとった名前です。その名のとおり、タンパク質を分解へ導く目印として有名な「ユビキチン」とよく似た立体的な形をした、小さなタンパク質です。SUMO化とは、このSUMOを、標的となるタンパク質のリジンというアミノ酸に、共有結合という強い結びつきで付ける反応を指します[1]。そして大切なのは、この結合が外し直しのできる、行ったり来たりする(可逆的な)反応だという点です。付けたり外したりできるからこそ、細胞は状況に応じてタンパク質の性質を切り替えられます。
💡 用語解説:リジンと共有結合
タンパク質は、アミノ酸という部品が数珠つなぎになってできています。その一つがリジンで、側鎖の先にアミノ基(-NH₂)という手を持っています。SUMO化では、SUMOの末端とこのリジンの手が、イソペプチド結合という共有結合でしっかり結ばれます。共有結合は分子どうしがっちり結びつく強い結合ですが、SUMO化の場合は専用の酵素によって後から切り離すこともできる、という点が特徴です。
では、SUMO化はいったい何のためにあるのでしょうか。ここで最も誤解されやすいのが「SUMO化=タンパク質を分解する目印」という思い込みです。SUMO化の主な役割は、タンパク質を壊すことではありません[2]。むしろ、タンパク質どうしのくっつき方(相互作用)、細胞の中でのいる場所(局在)、DNAへの結合、複合体の組み立て、酵素としての働きなどを、短い時間で組み替える「分子のスイッチ」あるいは「接着面」と考えるほうが正確です。SUMOという小さな目印が付くことで、そのタンパク質は「この相手とくっつきやすくなる」「この場所へ移動する」といった性質を、一時的にまとうのです。
SUMO化は、細胞の中でも特に核(かく)の中で重要な働きをしています。遺伝子の読み取り(転写)、DNAのコピーと修復、核の内と外をつなぐ物質の出入り、細胞分裂のときの染色体の分配、ストレスへの対応、免疫や信号の伝達など、生命の根幹に関わる場面で幅広く働いています。次の章から、その仕組みと働きを順に見ていきましょう。
2. SUMO化はどう進む ─ 3つのステップとリレー
SUMO化は、複数の酵素がバトンをつなぐリレーのようにして進みます。まず、作られたばかりのSUMOは、まだそのままでは使えません。前駆体(じゅんび段階のSUMO)の末端が、SENPというはさみ役の酵素によって切りそろえられ、末端に「グリシン-グリシン」という2つのアミノ酸がむき出しになって、はじめて使える状態(成熟したSUMO)になります[3]。ここから、次の3つのステップが動きます。
1つめのステップでは、E1酵素(SAE1–UBA2)が、ATP(細胞のエネルギー通貨)の力を借りてSUMOを活性化し、自分の上に一時的に載せます[4]。2つめのステップでは、そのSUMOをE2酵素(UBC9)へと受け渡します。SUMO化のE2は、基本的にこのUBC9ただ1種類だけである、という点がとても特徴的です。3つめのステップで、UBC9が標的タンパク質のリジンにSUMOを付けます。このとき、E3酵素(PIAS群、RanBP2、ZNF451、NSMCE2など)が、反応を効率よく進めるための手助けをします[5]。
💡 用語解説:ψKxEという「合図の並び」
SUMOが付くリジンの周りには、多くの場合ψ(プサイ)-K-x-Eという決まったアミノ酸の並びがあります。ψは油になじみやすいアミノ酸、KがSUMOの付くリジン、xは何でもよく、Eはグルタミン酸です。UBC9はこの短い並びを立体的に読み取って、SUMOを付ける場所を見分けます[5]。ただし、この合図の並びを持たない場所にもSUMOは付くため、「この並びがあるから必ず付く/ないから付かない」と単純に決めることはできません。
ここでユビキチン化との大きな違いが1つあります。ユビキチン化では、多くの場合E3がなければ反応が進みません。ところがSUMO化では、UBC9自身がψKxEの並びを直接読み取れるため、すべての標的にE3が絶対に必要というわけではありません[1][5]。E3は「反応が起きやすい立体配置」を作ってあげる役割が中心で、標的を選ぶうえでも大切ですが、必須の門番ではないのです。この違いは、SUMO化という仕組みを理解するうえでの重要なポイントになります。
そして、一度付いたSUMOは、SENPという酵素のはたらきで外すことができます。SENPは、前述したSUMOの成熟(切りそろえ)と、付いたSUMOの取り外し(脱SUMO化)の両方を担います[3]。付ける酵素と外す酵素がそろっているからこそ、SUMO化は状況に応じて素早く「オン・オフ」を切り替えられる、動的な仕組みになっています。
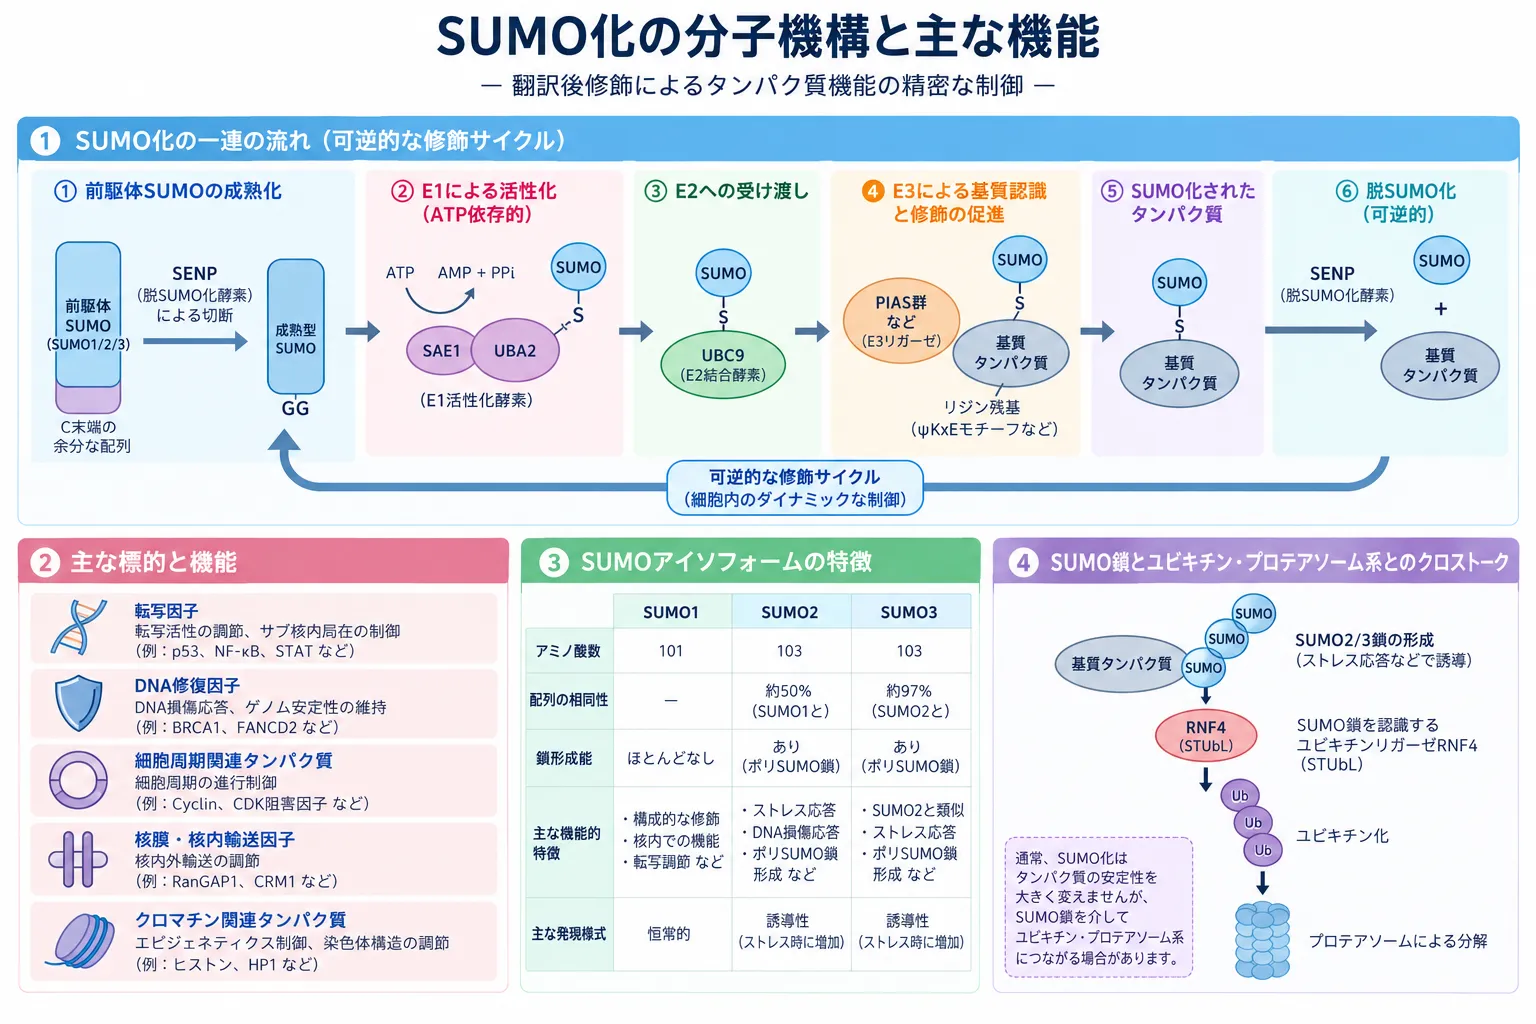
図:SUMO化の分子機構と主な機能。前駆体SUMOはSENPによる切断を受けて成熟し、E1酵素(SAE1–UBA2)によるATP依存的な活性化、E2酵素UBC9への受け渡しを経て、E3リガーゼなどの補助により標的タンパク質のリジン残基へ共有結合します。結合したSUMOはSENPによって再び除去できるため、SUMO化は可逆的な翻訳後修飾としてタンパク質間相互作用、転写、DNA修復、核輸送などを調節します。また、SUMO2/3が鎖を形成すると、STUbLであるRNF4に認識され、ユビキチン化を介してプロテアソーム分解へつながる場合があります。
3. ユビキチンとの違い ─ 「分解」ではなく「組み替え」
SUMOはユビキチンとよく似た形をしていますが、その役割は大きく異なります。ユビキチンは、標的タンパク質に鎖状に連なって付くと、多くの場合それが「分解してよい」という目印になり、ユビキチン・プロテアソーム系によって分解へと送られます。一方、SUMO化は基本的に分解の目印ではなく、タンパク質の「性質を組み替える」ための修飾です[2]。
ただし、SUMOとユビキチンはまったく無関係というわけではありません。SUMO2やSUMO3が鎖状に連なると、その鎖を読み取るRNF4という特別な酵素が働きます。RNF4は、SUMOの鎖を目印にして、そのタンパク質を今度はユビキチン化し、プロテアソームという分解装置へ送り込みます[6]。このような、SUMOを目印にしてユビキチンを付ける酵素をSTUbL(スタブル)と呼びます。つまり、SUMOとユビキチンは、状況によっては「バトンをつなぐ」関係になるのです。この連携は、後で説明する白血病のヒ素治療や、DNA修復、感染防御などで中心的な役割を果たします。
💡 SUMO化の不思議 ─ 少ししか付かないのに効果が大きい
SUMO化には、研究者を長く悩ませてきた不思議があります。ある瞬間に実際にSUMOが付いているタンパク質の割合は、ごくわずかであることが多いのです。それなのに、SUMO化の仕組み全体を止めると、細胞には大きな異変が起きます。この一見矛盾する現象は「SUMOの謎(SUMO enigma)」と呼ばれてきました。近年では、DNA修復に関わるタンパク質群が同時にまとめてSUMO化され、そのネットワーク全体が安定化する「グループ修飾」という考え方で、一部が説明されています[2]。一つひとつの修飾は小さくても、集団として働くことで大きな効果を生む、というわけです。
4. SUMOの種類 ─ SUMO1からSUMO4、そしてSUMO5
ヒトのSUMOには、いくつかの種類(アイソフォーム/パラログ)があります。よく用いられる分類はSUMO1からSUMO4までで、それぞれ性質が少しずつ異なります。まずは主な特徴を表で整理してみましょう。
🧬 SUMOアイソフォームの比較
| 種類 | 特徴とはたらき |
|---|---|
| SUMO1 | SUMO2/3とは配列がかなり異なる。RanGAP1という核輸送に関わるタンパク質を修飾する古典的な例で知られる。単独で付いたり、SUMO2/3の鎖の終端になったりすることが多い[7] |
| SUMO2 | SUMO3と成熟後の配列が約97%同じ。リジン11を中心に鎖状に連なりやすく、熱やDNA損傷などのストレス応答で重要[8] |
| SUMO3 | SUMO2と非常によく似ており、抗体や質量分析で区別しにくいため、多くの論文で「SUMO2/3」とまとめて表記される。マウスではSUMO2の欠損は致命的だが、SUMO3の欠損は許容される[9] |
| SUMO4 | 長らく役割が不明だったが、2025年、SUMO4が自分は結合せずにSENP1という酵素の働きを高め、DNA損傷時の過剰なSUMO化を抑える、という新しい役割が報告された[10] |
| SUMO5 | 2016年に報告された霊長類関連のパラログ。SUMO1〜4ほど独立した再現や生理的な合意が蓄積しておらず、確立したパラログとみなすには慎重さが必要[11] |
※SUMO2/3の鎖は主にリジン11でつながりますが、それ以外のつながり方もあるため、「SUMO鎖=リジン11だけ」と定義するのも正確ではありません[8]。
特に注目されているのが、SUMO4をめぐる2025年の発見です。従来、SUMOファミリーの役割は「標的に共有結合して目印になること」だと暗黙のうちに考えられてきました。ところがSUMO4は、自分自身は標的に結合しないまま、SENP1という「SUMOを外す酵素」の働きを高めることで、DNA損傷が起きたときに過剰にSUMO化が進みすぎるのを防いでいることが示されました[10]。これは、「SUMOの仲間=付くもの」という前提そのものを見直させる、重要な例外です。SUMOという言葉でひとくくりにされてきた分子たちが、実はそれぞれ異なる役割を持っていることが、少しずつ明らかになっているのです。
5. 細胞での働き ─ 核を中心とした「交通整理」
SUMO化は、細胞の中でも特に核の中で、さまざまな仕事の「交通整理」を担っています。ここでは代表的な4つの場面を見てみましょう。
① 遺伝子の読み取りとクロマチン
SUMO化は、遺伝子の読み取り(転写)に関わるタンパク質や、DNAを巻き取る構造(クロマチン)に関わるタンパク質を、まとめて標的にします。多くの場面では遺伝子の働きを抑える方向に関わりますが、細胞が大きく性質を変える(分化する)ときなどには、逆に高い活性を支えることもあります。つまりSUMO化は「常に抑制する目印」ではなく、状況に応じてネットワークをつなぎ替える文脈依存の調整役です[2]。急な熱ストレスのときには、SUMO2/3の分布が活性のあるクロマチン上で素早く再編され、強すぎるストレス反応にブレーキをかける役割も果たします。
② DNAの修復とゲノムの安定
DNAが両方の鎖とも切れてしまう「二本鎖切断」という深刻な傷が起きると、SUMO1・2・3と、PIAS1・PIAS4というE3酵素が傷の周りに集まり、修復に関わるタンパク質群の組み立てを支えます[12]。さらにRNF4が、SUMO化されたタンパク質をユビキチン化へつなぐことで、修復役を「呼び込む」だけでなく、適切なタイミングで「入れ替える・片づける」役割も果たします[6]。修復を進めるうえで、いつ・どこで・どのタンパク質を集め、いつ外すかという時間的な制御が、SUMOによって細かく調整されているのです。
③ 核の内と外をつなぐ輸送
実は、SUMO研究の出発点そのものが、核の出入り口に関わるタンパク質でした。1990年代の研究で、SUMO1が付いたRanGAP1というタンパク質が、核膜孔複合体(核の内外をつなぐ通路)に局在することが示されたのです[13]。その後、RanGAP1・SUMO1・RanBP2・UBC9からなる複合体は、核から外へ物質を運び出す仕組み(核外輸送)を組み立て直す装置として働くことも分かりました[14]。SUMOの仕組みと核-細胞質輸送が、物理的に直結している代表例です。
④ 信号の伝達と細胞の運命
SUMO化は、細胞の外からの刺激を核へ伝える信号の流れにも関わります。免疫を担うT細胞では、外からの刺激に応じて、RanGAP1–SUMO1/UBC9を含む核膜孔の装置が組み替えられ、免疫に関わる遺伝子のスイッチが調整されることが示されています[15]。また、細胞が生き残るか死ぬか(アポトーシス)という判断にも、SUMO化は一方向ではなく、状況次第で「生き残らせる」方向にも「死なせる」方向にも働きます。だからこそ、SUMOの総量だけを測っても細胞の運命は予測できず、どのタンパク質の、どの種類のSUMO化が変わったかを見分けることが大切になります。
6. 疾患との関わり ─ がん・神経変性・感染症
SUMO化と病気の関係は、「SUMOが多い=悪い」という単純なものではありません。病気の種類によって、SUMOが果たす役割はまったく異なります。ここでは、がん・神経変性・感染症の3つを取り上げます。
がん ─ SUMOへの「依存」が弱点になる
がん細胞は、盛んに増えるために、遺伝子の読み取りやコピー、DNAの傷への対応、タンパク質の処理といった作業を、正常な細胞よりも激しく行っています。その負荷を処理するために、SUMOの仕組みへの依存度が高まることがあります。このため、SUMO化を止めると、がん細胞が選択的に弱る場合があることが分かってきました。実際、SUMOのE1酵素を止める薬は、一部のがん細胞に対して選択的な弱点を突けることが示され、SUMO化が薬の標的になりうることが裏づけられました[16]。
神経変性 ─ 「保護」と「悪化」の両方の報告
神経変性の分野は、SUMO化の作用が一方向に決められない典型例です。パーキンソン病に関わるα-シヌクレインというタンパク質について、SUMO化が凝集や毒性を抑える(保護的だ)とする報告がある一方で[17]、SUMO化とユビキチン化の競合が分解を妨げ、病的な蓄積を促しうるとする報告もあります[18]。この違いは、実験に使ったモデル、修飾の程度、SUMOの種類、細胞の状態などによる可能性があり、「α-シヌクレインのSUMO化は保護的/有害」と一方に決着した問題ではありません。パーキンソン病やハンチントン病では、SUMO経路が病態と結びつくことが報告されていますが、SUMOは神経細胞が正常に働くためにも必要なので、全体を一律に止める治療は慎重に考える必要があります。
感染症 ─ 防御にも、ウイルスの乗っ取りにも
感染症では、SUMO化は宿主(私たちの体)の防御にも、ウイルス側の対抗手段にも使われます。単純ヘルペスウイルス(HSV-1)は、SUMO化された宿主のタンパク質を狙って壊すSTUbL様の働きを持つICP0というタンパク質で、宿主の防御を解除します[19]。一方、新型コロナウイルス(SARS-CoV-2)では、TRIM28というタンパク質がウイルスのNタンパク質のSUMO化を促し、Nタンパク質のRNA結合や集合、そして免疫抑制を強めると報告されています[20]。なお、この報告には後に図の一部について訂正(コレクション)が出ているため、今後の独立した再現も含めて評価していく必要があります。
💡 用語解説:TRIM28とSUMO化のつながり
TRIM28(KAP1とも呼ばれます)は、他のタンパク質にSUMOを付ける働き(SUMO E3活性)を持つタンパク質です。ミネルバクリニックの用語辞典では、TRIM28遺伝子について、KAP1によるSUMO化とエピジェネティックな制御の観点から別ページで解説しています。SUMO化が、遺伝子の働きの制御という大きなテーマとつながっていることが分かる一例です。
7. 治療への応用 ─ TAK-981と白血病のヒ素治療
SUMO化の研究は、基礎から治療へと応用が進みつつあります。ここでは代表的な2つの例を紹介します。
SUMO化を「止める」薬 ─ サブアスムスタット(TAK-981)
SUMOのE1酵素を止める薬として、サブアスムスタット(TAK-981)が臨床試験の段階に到達しています。この薬は、がん細胞に直接ストレスを与えるだけでなく、I型インターフェロン反応という免疫の仕組みを強く呼び起こし、自然免疫と獲得免疫を活性化することが、前臨床(動物や細胞を用いた段階)の研究で示されました[21]。2025年に公表された、初めてヒトに投与した試験(第I相試験)では、SUMO経路がねらいどおり抑えられていることや、インターフェロンに関わる指標の変化が確認され、一部の患者で部分的な反応や病状の安定が観察されました。ただしこれは予備的な結果であり、幅広いがんに対する有効性が確立したわけではありません[22]。抗体薬リツキシマブとの併用を調べた別の試験でも、一定の有望性が報告されていますが[23]、現時点でTAK-981はまだ研究段階の薬(治験薬)として評価すべき段階です。
💡 治療の判断は主治医と
ここで紹介している薬や治療法は、「SUMO化が治療の標的になりうる」という仕組みの一例として説明しているものです。効果や安全性、使える範囲は国や時期によって異なり、今後も更新されていきます。治療に関する判断は、必ず主治医とご相談ください。この記事は特定の治療をすすめるものではありません。
SUMO化を「利用する」治療 ─ 白血病のヒ素治療
SUMOと治療の関係で、最も成熟した実例は、SUMO化を止める薬ではなく、逆にSUMO化を利用する治療です。急性前骨髄球性白血病(APL)という血液のがんに対する亜ヒ酸(ヒ素)治療がそれにあたります。ヒ素は、この病気の原因タンパク質であるPML/PML–RARαのSUMO化を促します。すると、SUMOの鎖を読み取るRNF4がユビキチン化を行い、原因タンパク質をプロテアソームへ送って壊します[6][24]。つまり、病的なタンパク質をわざとSUMO化して分解へ導く、という戦略です。これは、「治療のためには必ずしもSUMO化を止める必要はなく、逆にSUMO化を仕掛けて分解へつなぐこともできる」という、治療生物学における重要な教訓を与えてくれました。
8. 遺伝診療との接点 ─ SUMO化をどう位置づけるか
ここで、遺伝診療の視点からSUMO化をどう位置づけるかを整理しておきます。まず大切なのは、SUMO化は、特定の一つの遺伝子の変化で起こる単一遺伝子疾患を、直接説明する経路ではないということです。SUMO化は、むしろ数多くの病気の背景で働く「共通の仕組み(システム)」であり、遺伝子診断で直接「SUMO化の検査」を行うような対象ではありません。この記事では、遺伝子やタンパク質の働きをどう読み解くか、という理解の土台として位置づけています。
そのうえで、SUMO化の研究は、遺伝子の働きを考えるときに一つの示唆を与えてくれます。それは、「タンパク質の役割を、目立つ機能だけで判断してはいけない」ということです。あるタンパク質が、SUMO化のような一見わかりにくい調整の仕組みを通じて、細胞の重要な制御に関わっていることがあります。SUMO E3活性を持つTRIM28のように、SUMO化に関わる遺伝子が、体の発生や遺伝子の制御に深く関わる例も知られています。遺伝子検査で見つかった変化が体にどう影響しうるかを考えるとき、こうした背景知識は判断材料の一つになります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。臨床遺伝専門医として文献を踏まえると、同じ遺伝子でも変化の性質によって意味合いが変わることは、成人の遺伝性腫瘍の診療で日々向き合う考え方と地続きです。私たちは中立の立場で判断材料を整理し、ご本人が納得して次の一歩を選べるよう支援する役割を担っています。
9. 研究の最前線 ─ 「部位」から「ネットワーク」へ
SUMO研究は、この5〜10年で大きく進展しました。ここでは、いくつかの重要な流れを紹介します。
1つめは、細胞に本来あるSUMO化を、正確に測る技術の進歩です。以前は、人工的に改変したSUMOを使って測る方法が主流でしたが、近年は、細胞や組織に本来あるSUMO化の場所を、リジン単位で直接、大規模に特定できるようになってきました[25]。この結果、培養したがん細胞と正常な組織とでは、SUMO化のありようがかなり異なることも分かり、「培養細胞の結果を、そのままヒトの体全体に当てはめる」ことの危うさが明らかになりました。
2つめは、研究の視点が「どのリジンにSUMOが付くか」から「そのSUMO化で周りのネットワークがどう変わるか」へ広がったことです。SUMO化は、一つひとつの修飾は小さくても、周囲のタンパク質のつながりを局所的に組み替えることで大きな効果を生みます。近接するタンパク質を捕まえる新しい手法によって、SUMO化が局所的な「タンパク質のつながりのハブ(拠点)」を作る様子が見えてきました[2]。これは、少ない修飾で大きな効果が出るという先ほどの「SUMOの謎」とも整合します。
3つめは、酵素どうしがSUMOを受け渡す瞬間の立体構造の解明です。2025年には、SUMOのE1酵素からE2酵素(UBC9)へSUMOが受け渡される過渡的な状態が、クライオ電子顕微鏡という技術で直接とらえられました[26]。反応がどの向きに、どんな幾何学で進むのかが、より具体的に分かってきています。
💡 SUMO研究が難しい理由
SUMO化の研究は、技術的にとても難しいことで知られます。実際にSUMOが付いている割合が低いこと、外れるのが速いこと、修飾が一時的であること、抗体の性能に差があることなどが重なるためです。実際、SUMOを検出する24種類の抗体を比べた研究では、感度や種類の見分け方に大きな差があることが示されました[27]。このため、確かな結論を出すには、抗体だけに頼らず、遺伝学・質量分析・試験管内での再現など、複数の異なる方法を組み合わせることが欠かせません。
こうした進展をふまえると、SUMO化を最もよく捉えるモデルは、「一つのリジンに小さな目印を付ける」ことではなく、外し直しのできる共有結合、非共有結合的な読み取り、SUMOの鎖、局所での酵素の濃縮、ユビキチンとの連携などを組み合わせて、細胞内のタンパク質のネットワークを時間的・空間的に組み替えるシステムだと考えることです。この見方は、転写・DNA修復・核輸送・がん治療・感染症まで、一見ばらばらに見えるSUMOの生物学を、統一的に説明してくれます。
10. よくある誤解
誤解①「SUMO化はタンパク質を分解する目印」
SUMO化の主な役割は分解ではありません。タンパク質どうしのつながりや居場所を組み替えるスイッチです。ただしSUMOの鎖がRNF4に読まれると、結果的にユビキチン化・分解へつながることもあります。
誤解②「ユビキチン化と同じもの」
形は似ていますが役割は異なります。ユビキチンは分解の目印になることが多いのに対し、SUMOは性質の組み替えが中心です。またSUMO化はE3がなくても進む場合がある点も違います。
誤解③「SUMOが多いほど悪い」
病気との関係は単純ではありません。がんでは弱点になり、神経変性では保護にも悪化にも働き、感染では防御にも乗っ取りにも使われます。総量だけでは判断できないのがSUMOの特徴です。
誤解④「SUMOの仲間はどれも同じ働き」
SUMO1〜4はそれぞれ性質が異なります。特にSUMO4は、自分は結合せずにSENP1を助けて過剰なSUMO化を抑えるという、他とは違う役割を持つことが2025年に示されました。
まとめ ─ SUMO化という「組み替えのシステム」
SUMO化は、SUMOという小さなタンパク質を、外し直しできる形で標的に付ける翻訳後修飾です。ユビキチン化とよく似た仕組みでありながら、その主な役割は分解ではなく、タンパク質どうしのつながり・居場所・複合体を、短時間で組み替えることにあります[2]。E1・E2(UBC9)・E3のリレーで付き、SENPで外される、というオン・オフの仕組みが、細胞の核を中心とした「交通整理」を支えています。
病気との関わりでは、がんでは治療の標的として、神経変性や感染症では病態を理解する鍵として、SUMO化が注目されています。SUMO化を止めるTAK-981の臨床試験や、逆にSUMO化を利用する白血病のヒ素治療は、その両面を示す好例です[21][24]。遺伝診療の視点から見ると、SUMO化は特定の遺伝子検査の対象ではありませんが、「遺伝子やタンパク質の働きを、目立つ機能だけで判断してはいけない」という理解の土台を与えてくれます。今後、内在性の解析や立体構造の研究がさらに進むことで、SUMOという仕組みの全体像が、より鮮やかに描かれていくでしょう。
よくある質問(FAQ)
Q1. SUMO化とは何ですか?
SUMO化(SUMOylation)とは、SUMO(小さなユビキチン様タンパク質)を、標的となるタンパク質のリジンというアミノ酸に、外し直しができる形で共有結合させる翻訳後修飾のことです。よく似た仕組みのユビキチン化が主にタンパク質を分解へ送る目印なのに対し、SUMO化の主な役割は分解ではなく、タンパク質どうしのつながりや細胞内の居場所を組み替える「分子のスイッチ」として働くことです。
Q2. SUMO化とユビキチン化はどう違うのですか?
SUMOとユビキチンは形が似ていますが、役割が異なります。ユビキチンは鎖状に付くとタンパク質を分解へ導く目印になることが多いのに対し、SUMO化はタンパク質の性質を組み替えるための修飾です。また、ユビキチン化は多くの場合E3酵素が必須なのに対し、SUMO化ではE2酵素のUBC9が付ける場所を直接見分けられるため、E3が絶対に必要とは限らない、という違いもあります。ただしSUMOの鎖がRNF4に読み取られると、ユビキチン化・分解へつながることもあります。
Q3. SUMOにはどんな種類がありますか?
ヒトでは、SUMO1・SUMO2・SUMO3・SUMO4が知られています。SUMO2とSUMO3は非常によく似ており「SUMO2/3」とまとめて表記されます。SUMO1はこれらとは配列がかなり異なります。SUMO4は長らく役割が不明でしたが、2025年に、自分は結合せずにSUMOを外す酵素を助ける、という新しい役割が報告されました。このほか、2016年にSUMO5も提唱されていますが、SUMO1〜4ほど確立したパラログとみなすには慎重さが必要とされています。
Q4. SUMO化は病気と関係がありますか?
関係することがあります。ただし「SUMOが多い=悪い」という単純な関係ではありません。がんでは、がん細胞がSUMOの仕組みに依存することがあり、それが治療の弱点になりえます。神経変性では、同じタンパク質でもSUMO化が保護的に働くという報告と、悪化させるという報告が併存しています。感染症では、宿主の防御にもウイルスの乗っ取りにも使われます。SUMO化は病気の背景で広く働く仕組みであり、特定の遺伝子検査で直接調べる対象ではありません。
Q5. SUMO化は治療に使えるのですか?
研究が進んでいます。SUMO化を止める薬サブアスムスタット(TAK-981)が臨床試験の段階にあり、免疫を活性化する働きも注目されています。ただし現時点では研究段階の薬であり、幅広いがんでの有効性が確立したわけではありません。一方、逆にSUMO化を利用する治療として、急性前骨髄球性白血病に対するヒ素治療がよく知られています。これは病的なタンパク質をSUMO化して分解へ導く仕組みを利用したものです。治療に関する判断は必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Ubch9 conjugates SUMO but not ubiquitin. FEBS Letters. 1997. [PubMed 9409737]
- [2] Protein group modification and synergy in the SUMO pathway as exemplified in DNA repair. Cell. 2012. [PubMed 23122649]
- [3] The poly-SUMO2/3 protease SENP6 enables assembly of the constitutive centromere-associated network by group deSUMOylation. Nature Communications. 2019. [Nature Communications]
- [4] Structures of the SUMO E1 provide mechanistic insights into SUMO activation and E2 recruitment to E1. EMBO Journal. 2005. [EMBO Journal]
- [5] Structural basis for E2-mediated SUMO conjugation revealed by a complex between ubiquitin-conjugating enzyme Ubc9 and RanGAP1. Cell. 2002. [PubMed 11853669]
- [6] RNF4 is a poly-SUMO-specific E3 ubiquitin ligase required for arsenic-induced PML degradation. Nature Cell Biology. 2008. [PubMed 18408734]
- [7] A novel ubiquitin-like modification modulates the partitioning of the Ran-GTPase-activating protein RanGAP1 between the cytosol and the nuclear pore complex. Journal of Cell Biology. 1996. [PubMed 8978815]
- [8] Polymeric chains of SUMO-2 and SUMO-3 are conjugated to protein substrates by SAE1/SAE2 and Ubc9. Journal of Biological Chemistry. 2001. [Journal of Biological Chemistry]
- [9] SUMO2 is essential while SUMO3 is dispensable for mouse embryonic development. EMBO Reports. 2014. [EMBO Reports]
- [10] SUMO4 promotes SUMO deconjugation required for DNA double-strand-break repair. Molecular Cell. 2025. [PubMed 40054443]
- [11] SUMO5, a novel poly-SUMO isoform, regulates PML nuclear bodies. Scientific Reports. 2016. [Scientific Reports]
- [12] Mammalian SUMO E3-ligases PIAS1 and PIAS4 promote responses to DNA double-strand breaks. Nature. 2009. [Nature Reviews Cancer 解説]
- [13] SUMO-1 modification and its role in targeting the Ran GTPase-activating protein, RanGAP1, to the nuclear pore complex. Journal of Cell Biology. 1998. [Journal of Cell Biology]
- [14] The RanBP2/RanGAP1*SUMO1/Ubc9 SUMO E3 ligase is a disassembly machine for Crm1-dependent nuclear export complexes. Nature Communications. 2016. [Nature Communications]
- [15] T-cell receptor signaling promotes assembly and function of the RanBP2/RanGAP1-SUMO1/Ubc9 nuclear pore subcomplex through PKC-θ. eLife. 2021. [eLife]
- [16] Probing the roles of SUMOylation in cancer cell biology by using a selective SAE inhibitor. Nature Cell Biology. 2017. [PubMed 28892090]
- [17] Sumoylation inhibits α-synuclein aggregation and toxicity. Journal of Cell Biology. 2011. [PMC3135405]
- [18] SUMOylation and ubiquitination reciprocally regulate α-synuclein degradation and pathological aggregation. Proceedings of the National Academy of Sciences USA. 2017. [PNAS]
- [19] A viral ubiquitin ligase has substrate preferential SUMO targeted ubiquitin ligase activity that counteracts intrinsic antiviral defence. PLoS Pathogens. 2011. [PLoS Pathogens]
- [20] TRIM28-mediated nucleocapsid protein SUMOylation enhances SARS-CoV-2 virulence. Nature Communications. 2024. [Nature Communications]
- [21] A small-molecule SUMOylation inhibitor activates antitumor immune responses and potentiates immune therapies in preclinical models. Science Translational Medicine. 2021. [Science Translational Medicine]
- [22] A first-in-human study of the SUMOylation inhibitor subasumstat in patients with advanced/metastatic solid tumors or relapsed/refractory hematologic malignancies. Cancer Research Communications. 2025. [PubMed 41134690]
- [23] Phase I/II study of subasumstat (TAK-981) in combination with rituximab in relapsed/refractory non-Hodgkin lymphoma. Clinical Lymphoma, Myeloma & Leukemia. 2025. [PubMed 40467383]
- [24] Arsenic degrades PML or PML–RARα through a SUMO-triggered RNF4/ubiquitin-mediated pathway. Nature Cell Biology. 2008. [Nature 関連解説]
- [25] Site-specific characterization of endogenous SUMOylation across species and organs. Nature Communications. 2018. [Nature Communications]
- [26] Cryo-EM structures reveal the molecular mechanism of SUMO E1–E2 thioester transfer. Nature Structural & Molecular Biology. 2025. [Nature Structural & Molecular Biology]
- [27] SUMO monoclonal antibodies vary in sensitivity, specificity, and ability to detect types of SUMO conjugate. Scientific Reports. 2022. [Scientific Reports]






