

目次
- 1 1. 前体節中胚葉(PSM)とは ─ 背骨をつくる「工場」
- 2 2. どこから来て、どこへ行くのか ─ 後ろで補充し、前で消費する流れ
- 3 3. 体節時計 ─ 背骨のリズムを刻む遺伝子の振り子
- 4 4. 時計を動かす4つのシグナル ─ Notch・Wnt・FGF・レチノイン酸
- 5 5. 「動」から「静」へ ─ 揺れる時計を固定された仕切りに変える
- 6 6. 細胞のふるまい ─ 動き・かたち・分裂
- 7 7. 最新の研究 ─ 一細胞解析とヒトのモデル
- 8 8. 病気とのつながり ─ 背骨・肋骨の分節異常
- 9 9. よくある誤解
- 10 まとめ ─ 背骨のリズムを刻む舞台
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

背骨(椎骨)や肋骨は、胎児の体の中で前から後ろへ、規則正しいリズムで一節ずつつくられていきます。そのリズムを刻む「工場」にあたるのが前体節中胚葉(ぜんたいせつちゅうはいよう/presomitic mesoderm, PSM)です。PSMの中では「体節時計」と呼ばれる遺伝子の振り子が時を刻み、一定の間隔で体節(somite)という節を切り出します。この時計や仕切りづくりがうまくいかないと、背骨や肋骨の分節に異常が生じ、脊椎肋骨異骨症(SCDO)や先天性側弯症につながります。この記事では、PSMとは何か、体節時計はどう動くのか、そしてその破綻がどんな病気に結びつくのかを整理します。
Q. 前体節中胚葉(PSM)とは何ですか?まず結論だけ知りたいです
A. 前体節中胚葉(PSM)とは、胎児の背中側にある「未分節の沿軸中胚葉」で、背骨・肋骨のもとになる体節を、前端から一対ずつ周期的に切り出していく組織です。PSMの後端には尾側の前駆細胞から新しい細胞が次々と加わり、前方へ進むにつれて成熟していきます。その中心では「体節時計(セグメンテーション時計)」という遺伝子発現の振動が時を刻み、一定間隔で仕切り(体節境界)をつくります。この時計や仕切りづくりに関わる遺伝子(HES7・DLL3・MESP2・TBX6・LFNG・RIPPLY2など)に変化が生じると、脊椎肋骨異骨症や先天性側弯症といった背骨・肋骨の分節異常が起こります。
- ➤正体 → 背骨・肋骨のもとになる体節を、前端から周期的に切り出す未分節の沿軸中胚葉
- ➤動かす仕組み → 中心にある「体節時計」がリズムを刻み、Notch・Wnt・FGF・レチノイン酸が位置と成熟を決める
- ➤動から静へ → 揺れ続ける時計の情報が、Mesp2・Tbx6・Ripplyによって「固定された仕切り」に変換される
- ➤病気とのつながり → 時計・仕切りに関わる遺伝子の変化が、脊椎肋骨異骨症や先天性側弯症を招く
- ➤最新の研究 → ヒトiPS細胞由来のPSMで時計を再現でき、患者さんの変異を実験で追える時代になった
🧬 前体節中胚葉(PSM)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | ぜんたいせつちゅうはいよう/presomitic mesoderm(PSM)。「沿軸中胚葉(えんじくちゅうはいよう)」の未分節の部分にあたる |
| どこにあるか | 胎児の背中側、いちばん新しくできた体節と、尾側の成長帯(尾芽)との間に、左右一対で存在する |
| 主なはたらき | 体節(背骨・肋骨・体幹の筋肉のもと)を、前端から一対ずつ周期的に切り出す |
| 中心の仕組み | 「体節時計(セグメンテーション時計)」という遺伝子発現の周期的な振動[2] |
| 関わる主な遺伝子 | HES7・DLL3・MESP2・TBX6・LFNG・RIPPLY2(時計・Notch・仕切りづくりに関与) |
| 医療との関わり | 破綻すると脊椎肋骨異骨症(SCDO)や先天性側弯症など、背骨・肋骨の分節異常を生じる[13][14] |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 前体節中胚葉(PSM)とは ─ 背骨をつくる「工場」
私たちの背骨は、たくさんの椎骨が規則正しく並んでできています。この「くり返しの構造」は、胎児のごく初期に、背中側の中胚葉が前から後ろへ順番に区切られていくことでつくられます。その区切りのもとになる一つひとつのかたまりが体節(somite)で、椎骨・肋骨・背中の皮膚の一部・体幹の筋肉へと分かれていきます。前体節中胚葉(PSM)は、この体節をつくり出す一歩手前の、まだ区切られていない材料の組織です[1]。
PSMは「沿軸中胚葉(paraxial mesoderm、背骨の左右にそって並ぶ中胚葉)」のうち、まだ体節に切り分けられていない後方の部分を指します。胎児の背中側で、いちばん新しくできた体節のすぐ後ろから、尾側の成長帯までのあいだに、背骨をはさんで左右一対に存在します。ここで大切なのは、PSMが単なる「体節の材料置き場」ではなく、後ろから細胞が補充され、前で消費されながら、細胞の状態・動き・遺伝子の働きが刻々と移り変わるとてもダイナミックな組織だということです[1]。
💡 用語解説:中胚葉・沿軸中胚葉・体節
受精卵は成長の途中で、外胚葉・中胚葉・内胚葉という3つの層に分かれます。このうち中胚葉(ちゅうはいよう)は、骨・筋肉・心臓・血液などをつくるもとになる層です。その中でも背骨の左右にそって並ぶ部分を「沿軸中胚葉」といい、そこから前から順に切り出される節が「体節」です。体節はやがて椎骨・肋骨・体幹の筋肉などに分かれていきます。
体節は、できたあとにさらに役割ごとに分かれていきます。腹側の部分は「硬節(こうせつ/sclerotome)」となって椎骨や肋骨をつくり、背側の部分は「皮筋節(ひきんせつ/dermomyotome)」となって背中の皮膚の一部や体幹の骨格筋のもとになります。つまり、PSMで刻まれた一つひとつの節の「数」と「位置」が、そのまま背骨の椎骨の数や並び、肋骨の配置へと引き継がれていきます。だからこそ、PSMの段階でのわずかなリズムの乱れが、生まれつきの背骨・肋骨の形の異常として表れるのです。
背骨のように体をくり返しの単位で区切る仕組みは、ヒトだけのものではありません。魚から鳥、ほ乳類まで、背骨を持つ動物(脊椎動物)に広く共通しており、それぞれの動物で体節がつくられるリズムや節の数は違っても、根っこにある分子の仕組みはよく似ています。この「共通の設計思想」があるからこそ、ニワトリやゼブラフィッシュ、マウスといった動物を使った研究の成果が、ヒトの背骨の発生や病気を理解するうえでの手がかりになります。裏を返せば、動物で分かった仕組みが、そのままヒトに当てはまるとは限らない部分もあり、ヒト自身での検証が近年とても重要になっています。
2. どこから来て、どこへ行くのか ─ 後ろで補充し、前で消費する流れ
胎児の体は、頭のほうから尾のほうへと、少しずつ長く伸びながらつくられていきます。PSMもこの流れの一部で、後端では新しい細胞が加わり、前端では体節として切り出されて消費されるという「入れ替わり」を続けています。胎児がぐんぐん伸びているのに、PSMという工場そのものは一定の大きさで保たれる——これは、後ろから材料が補われ続けているからです[1]。
後方の細胞は、尾側の成長帯(尾芽)の近くにいる軸性前駆細胞から供給されます。この前駆細胞の中には、神経にも中胚葉にもなれる「神経中胚葉前駆細胞(NMP)」と呼ばれる集団が含まれます。ただし、NMPがそのままPSMというわけではなく、この前駆細胞プールの中から中胚葉になる運命を選んだ細胞がPSMへ入っていく、と理解するのが正確です[1]。
PSMの中では、後方から前方へ進むにつれて細胞が「成熟」していきます。後方PSMではWntやFGFという信号の活性が高く、細胞はまだ未熟で、よく動き回っています。一方、前方PSMへ進むとこれらの信号が弱まり、代わりに「そろそろここで区切ろう」という仕切りづくり(境界形成)のプログラムが優勢になります。近年は、ヒトのiPS細胞(人工多能性幹細胞)からPSMに似た細胞をつくり出せるようになり、この成熟の過程を試験管の中で観察できるようになっています[11]。
後方PSMと前方PSMの境目あたりには、「決定前線(determination front、成熟の切り替え点)」と呼ばれるおおよその位置があります。ここより後ろの細胞はまだ運命が決まっておらず、前へ進んで決定前線を越えると、そのタイミングでの体節時計の状態に応じて「ここが次の仕切りだ」という運命が固定されます。胎児が伸びるにつれて決定前線も後ろへ移動していくので、時計のリズムと決定前線の移動速度の兼ね合いで、一つの体節の大きさが決まります。この決定前線を人為的にずらすと体節の境界位置が変わることが、ニワトリの実験で示されています[4]。
3. 体節時計 ─ 背骨のリズムを刻む遺伝子の振り子
体節が一定の間隔で規則正しくつくられるのは、PSMの中で「体節時計(セグメンテーション時計)」という仕組みが時を刻んでいるからです。この時計の中心にあるのは、HES7のようなbHLH型の転写抑制因子で、自分自身の働きを一定のリズムでオン・オフする「遅れをともなう負のフィードバック」です[2]。
💡 用語解説:転写抑制因子と負のフィードバック
転写因子は、遺伝子のスイッチを入れたり切ったりするタンパク質です。そのうち、遺伝子の働きを「止める」向きに働くものを転写抑制因子(リプレッサー)と呼びます。HES7は、つくられると自分自身の遺伝子の働きを止めます。すると自分がつくられなくなり、やがて分解されて消えると、再びつくられ始めます。この「つくる→止める→消える→またつくる」のくり返しが、時計の振り子になります。
マウスのHES7では、HES7タンパク質が自分自身の遺伝子と、時計の調節役であるLFNGの働きを抑えます。HES7タンパク質は寿命が短くすぐに分解されるため、抑えがすぐに解けて、また新しくつくられます。この「つくって、抑えて、壊れる」までの時間の遅れが、周期的な振動を生み出します。HES7を失ったマウスでは正常な周期的発現が失われ、逆にHES7タンパク質を分解されにくく安定化させても時計は壊れてしまいます。つまり、時計が動くには、負のフィードバックだけでなく「ちょうどよい遅れ」と「短い寿命」が欠かせないのです[2]。
よく誤解されるのですが、PSMの中を前方へ動いていくように見える遺伝子発現の「波」は、細胞そのものが波として前へ移動しているわけではありません。実際には、それぞれの細胞がその場でオン・オフをくり返しているタイミングが少しずつずれているために、全体として波が進むように見えているのです。ニワトリを使った古典的な研究で、この「波」が細胞の移動ではなく各細胞の時間的な発現変化から生じることが示されました[1]。時計の周期(一節をつくる時間)は動物の種類によって大きく異なります。
HES7は、単独で時計を回しているわけではありません。Notchシグナルの下流で働く「エフェクター(実行役)」でもあり、Notchの入力を受けて発現が調整されます。さらにHES7は、自分自身やLFNGの遺伝子の調節領域にあるDNA配列(E-boxやN-boxと呼ばれる目印)に結合して、それらの働きを抑えます。こうして「Notchからの入力」と「HES7による抑制」が組み合わさることで、リズムが生まれ、隣の細胞とも歩調がそろえられていきます。
時計の周期(一節をつくる時間)が何によって決まるのかは、今も活発に研究されている問いです。転写にかかる時間、mRNAがスプライシング(切り貼り)される時間、タンパク質がつくられて分解されるまでの時間——こうした一つひとつの「遅れ」の積み重ねが、周期の長さを左右すると考えられています。ヒトの周期がマウスより長い理由も、こうした分子レベルの反応速度の違いに手がかりがあると見られており、ヒトとマウスの細胞を比べる研究が進んでいます[12]。
なぜ細胞ごとにバラバラにならず、隣どうしでリズムがそろうのでしょうか。ここで働くのが、次の章で見るNotchシグナルによる「同期」の仕組みです。もし同期がなければ、それぞれの細胞が勝手なタイミングで振動してしまい、きれいな仕切りはできません。逆に、細胞を一度バラバラにしても、ふたたび集めると自然に歩調がそろっていくことが実験で観察されており、体節時計が「集団として自己組織化する」性質を持つことが分かってきています。
一つひとつの細胞のレベルで見ると、体節時計は必ずしも正確無比な振り子ではありません。単一の細胞の振動はゆらぎが大きく、不安定なこともあります。それでも組織全体としては安定したリズムが保たれるのは、隣どうしが絶えず情報をやり取りして、ゆらぎをならし合っているからです。多数の少し不正確な時計が、たがいに影響し合うことで、全体として信頼できる一つのリズムを生み出す——この「集団の力による安定化」は、体節時計の大きな特徴です[7]。
🩺 院長コラム【「時計」というたとえの上手さと落とし穴】
体節時計というたとえは、とても直感的で優れています。一定のリズムで背骨の節が刻まれていく様子は、まさに時を刻む振り子のようです。ただ、実際の胎児の体の中では、単純な一つの振り子と一本の境界線で全部が決まっているわけではありません。細胞の中の振動、隣の細胞との同期、前後方向の成熟、組織の物理的な動きなどが、たがいに影響し合って働いています。
遺伝医学では、「同じ遺伝子でも変異の性質しだいで表れ方が変わる」という考え方が重要です。背骨の分節も同じで、似た形の異常でも、その裏にある分子の仕組みは一つではありません。たとえの分かりやすさに頼りすぎず、そのつど仕組みに立ち返ることが大切です。
4. 時計を動かす4つのシグナル ─ Notch・Wnt・FGF・レチノイン酸
体節時計は、PSMの中だけで完結した孤立した仕組みではありません。細胞の外から届く4つの信号——Notch・Wnt・FGF・レチノイン酸——が、時計のリズムを整え、隣どうしの歩調を合わせ、「どこで区切るか」という位置の情報を与えています。ここでは、それぞれの信号がどんな役割を担っているのかを順番に見ていきます。いずれも、単独ではなく、たがいに影響し合って働いている点が特徴です。
Notch ─ 隣どうしの時計をそろえる
Notchシグナルは、隣り合った細胞どうしが直接やり取りするための仕組みで、体節時計では「隣どうしの時計の位相をそろえる(同期させる)」役割がとくに重要です。ゼブラフィッシュでは、Notchの働きが乱れても各細胞の振動はしばらく残りますが、隣どうしのタイミングが少しずつずれていき、後ろの体節ほど乱れます。Notchのリガンド(信号を出す側の分子)であるDeltaを介した局所的な同期が主な役割だと考えられています。近年の定量的な研究では、これまで軽視されていたDeltaD同士のペアにも働きがあることや、NotchがDelta自身の遺伝子の働きを促す「正のフィードバック」も明らかになりました[7]。ヒトの脊椎の分節異常では、Notch経路の遺伝子であるDLL3やLFNGの変化が関わります。Notch受容体のO-フコース糖鎖形成にはPOFUT1も関与します。
LFNGは、ゴルジ体でNotch受容体のO-フコース糖鎖にN-アセチルグルコサミンを付加し、リガンドに対する応答性を調節する糖転移酵素で、その発現自体もPSMの中で周期的に変動します。つまりNotch経路は、単に「オン・オフのスイッチ」ではなく、時計のリズムそのものを刻む部品として組み込まれているのです。NOTCH1やNOTCH2といった受容体、JAG1のようなリガンドも、Notch経路を構成する分子として知られています。
Wnt ─ 後方の未熟さを保つ
Wntシグナルは後方PSMで強く、前方へ向かって弱まる勾配をつくります。中心的な担い手であるβ-カテニン(遺伝子はCTNNB1)の活性が後方から前方へ変化することで、時計と「どこで成熟するか」という位置情報が結びつけられます[3]。Wntの標的であり調節因子でもある遺伝子がPSMの中で周期的に働くことも知られており、Wntは時計と機能的につながっています。
FGF ─ 「まだ区切らない」ブレーキ役
FGFシグナルも後方で高く前方で低い勾配をつくり、「細胞がいつ区切られる準備に入るか」を決めます。ニワトリでFGF8を操作すると、将来の体節境界の位置がずれることが示されました[4]。教科書では「FGF8一本の濃度勾配」と説明されがちですが、実際にはマウスではFGF4とFGF8が役割を分け合っており、単純化した表現である点には注意が必要です[5]。FGFの下流で働くERK/MAPKの活性も後方に偏った勾配をつくり、区切りの位置だけでなく細胞の動きにも影響します。
レチノイン酸(RA)─ 左右をそろえる
レチノイン酸(RA)は、すでにできた体節や前方の組織の側でつくられ、FGFを抑える向きに働きます。マウスでRAをつくれなくすると、体節が右側で遅れてでき、左右の体節時計の同期が乱れることが分かっています。RAには、左右非対称をつくる信号から体節時計を「守り」、左右の同期を保つ役割があると考えられています[6]。
FGFとレチノイン酸は、たがいに抑え合う「対向する勾配」をつくっている点も重要です。後方ではFGFが優勢で細胞を未熟なまま保ち、前方ではレチノイン酸が優勢になってFGFを抑え、細胞の成熟を後押しします。この綱引きのバランスが崩れる位置が、ちょうど決定前線のあたりにあたります。Wntについても、Notchのリズムと少しタイミングをずらしながら振動していることが分かっており、複数の信号の「位相の関係」そのものが、どこで区切るかという位置情報を担っている可能性が指摘されています[3]。
こうした4つの信号がからみ合うことで、古典的な「時計と決定前線(clock-and-wavefront)」の考え方は今も有用ですが、単純な機械というより、振動・同期・成熟・境界形成が組み合わさった分散システムとして理解するほうが正確だと考えられています[3]。
5. 「動」から「静」へ ─ 揺れる時計を固定された仕切りに変える
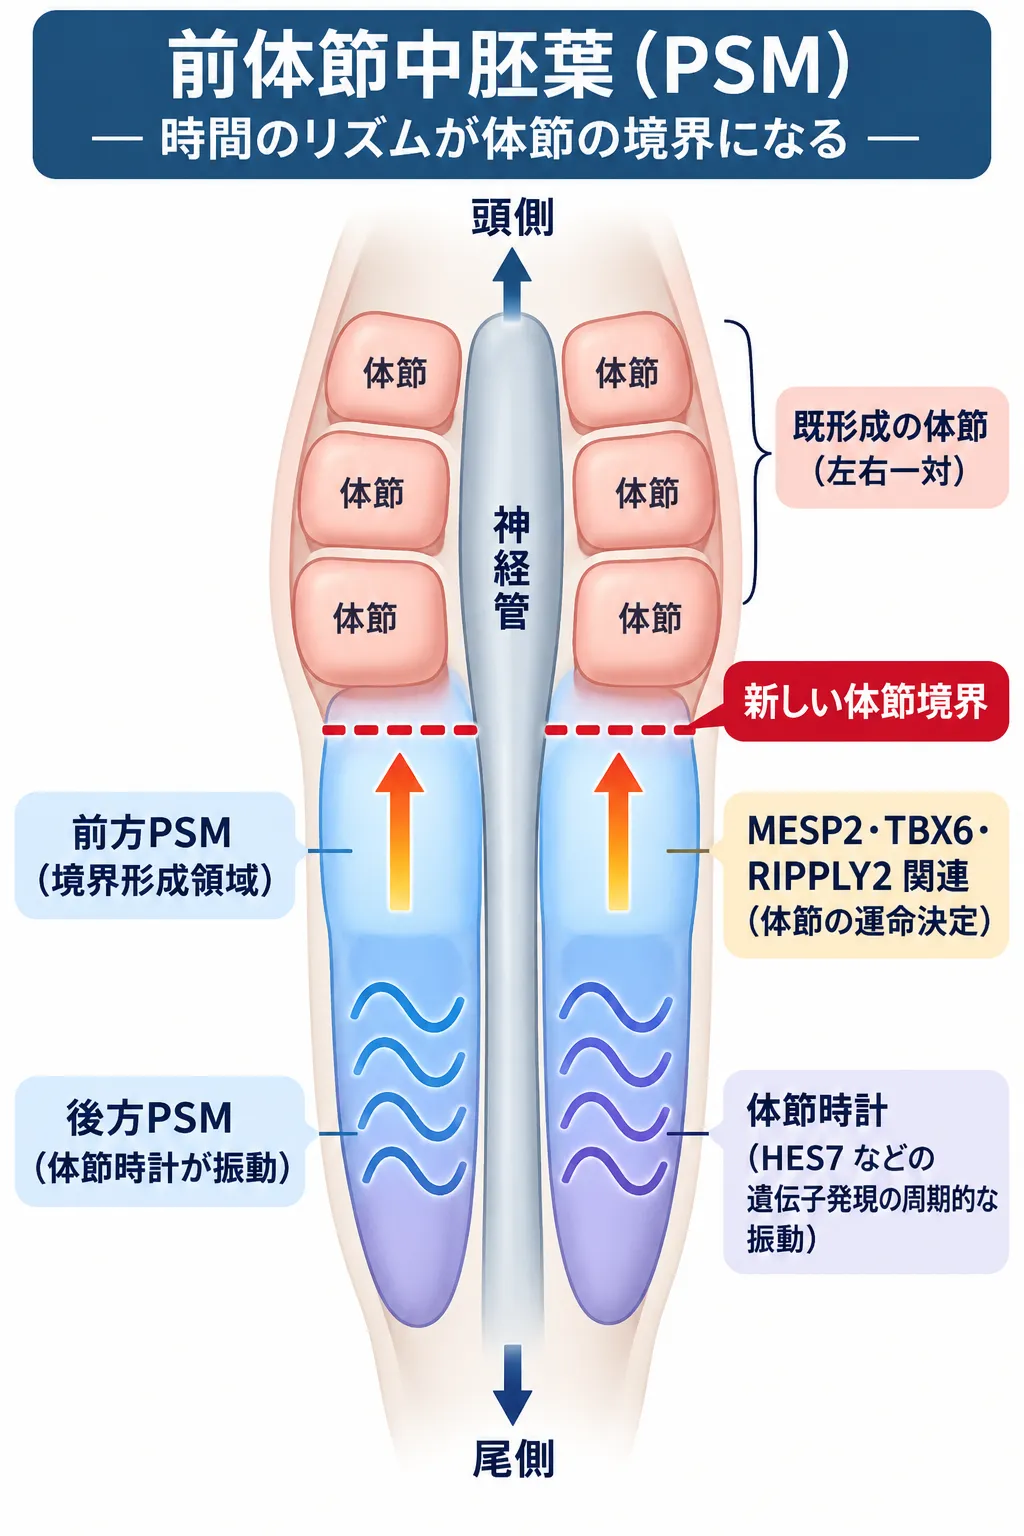
前体節中胚葉(PSM)では、後方領域でHES7などの遺伝子発現が周期的に振動する「体節時計」が働きます。細胞が前方へ成熟すると、MESP2・TBX6・RIPPLY2などが関わる境界形成プログラムへつながり、新しい体節境界が定められます。こうして胎児の頭尾軸に沿って、左右一対の体節が規則的に形成されていきます。
体節時計は「揺れ続ける動的な仕組み」ですが、できあがった体節は「固定された静的な仕切り」です。この「動」から「静」への変換を担うのが、前方PSMで働くMESP2・TBX6・RIPPLY2の連携です。TBX6はMESP2が働ける領域を用意し、MESP2はNotchの入力とTBX6の許容領域が交わるところで帯状に発現します[8]。
MESP2には、体節の「前後の向き」を決める役割もあります。一つの体節は、前半分と後半分で性質が異なり、この前後極性が正しく設定されることで、隣り合う体節どうしがきちんと接し、のちに椎骨が正しい向きで積み重なります。MESP2が帯状に発現する範囲やタイミングがずれると、この前後極性が乱れ、椎骨の形や向きの異常につながります。時計のリズムを「空間の地図」に翻訳するこの段階は、背骨の分節異常を理解するうえで、とりわけ臨床的に重要な部分です[8]。
近年の研究で、この変換の順序について新しい見方が出てきました。ゼブラフィッシュでは、Ripplyファミリー(Ripply1/2)がTBX6タンパク質を取り除くことで体節の境界を決めると同時に、時計遺伝子の発現も止めることが示されました。しかもRipplyタンパク質はすぐに減るのに、そのTBX6抑制効果は境界づくりが終わるまで持続します。これは「時計が止まる→境界ができる」という単純な因果の順序を見直す発見で、時計・成熟前線・境界回路がたがいにフィードバックし合っている可能性を示しています[9]。
💡 用語解説:抑制因子どうしのつながり
HES7のような時計の中心分子は、Hairy/E(spl)と呼ばれるHES/HEYファミリーの仲間です。これらは末端のWRPWモチーフでGroucho/TLEコリプレッサーという「抑える助っ人」を呼び寄せ、遺伝子の働きを止めます。Ripplyファミリーも同じGroucho/TLEを使うことが知られており、時計と仕切りづくりは、共通の「抑える仕組み」でつながっています。
6. 細胞のふるまい ─ 動き・かたち・分裂
PSMを理解するには、遺伝子の働きだけでなく、細胞そのものの「動き」や「かたち」も見る必要があります。ニワトリの長時間観察では、後方PSMの細胞は前方よりもランダムに活発に動いており、その動きの勾配はFGFに依存していました。FGFを強めても弱めても正常な動きの勾配が崩れ、細胞の動きを止めると体の伸びが遅くなりました[10]。FGFは「運命を決める信号」であると同時に、PSMの物理的な流れを制御する信号でもあるのです。
細胞のかたちの変化も重要です。中胚葉の細胞は、いったんバラバラの間葉系(かたちが不定で動きやすい状態)になりますが、体節ができるときには、境界の細胞から順に整列して上皮化(きれいに並んだ状態への変化)を起こします。新しい体節は、外側に整った上皮性の細胞、内側に間葉性の細胞を含む構造になります。この局所的なかたちの変化は、体節時計とは別の「かたちづくりのモジュール」として理解するのがよいと考えられています[1]。
この上皮化には、隣り合う細胞どうしの反発や接着を調整する分子(Eph/ephrinやカドヘリンなど)や、細胞の足場になる細胞外の繊維(フィブロネクチン)が関わります。バラバラだった細胞が、境界の位置を合図に、外側だけ整列して殻をつくり、内側にはやわらかい細胞を残す——こうしてできた体節が、のちに硬節と皮筋節へと分かれていきます。遺伝子のリズムという「時間の情報」が、細胞のかたちという「かたちの情報」へと橋渡しされる、いわば設計図から立体物への変換がここで起こります。
なお、細胞周期(細胞が分裂するサイクル)は、時計の振動そのものには必須ではないことが分かっています。ゼブラフィッシュで細胞分裂を止めても時計は動きますが、体節の中の細胞配置には異常が出ます。細胞分裂は「時計のエンジン」ではないものの、組織の量を保ち、正しい体節のかたちをつくるためには関わっている、というわけです[1]。
こうして見てくると、PSMは「一つの司令塔がすべてを決める」しくみではなく、たくさんの細胞が信号をやり取りしながら、全体として秩序を生み出す「創発(そうはつ)的なシステム」だと分かります。振動する時計、隣どうしの同期、後方から前方への成熟、細胞の動きとかたちの変化——これらが同時進行でかみ合うことで、背骨という精密なくり返し構造がつくられていきます。どれか一つが少しずれても、多くの場合はほかの仕組みが補いますが、補いきれないほどの乱れが生じたときに、目に見える形の異常として表れます。
7. 最新の研究 ─ 一細胞解析とヒトのモデル
PSMの研究は、モデル生物(ニワトリ・ゼブラフィッシュ・マウスなど)でそれぞれの強みを生かして進められてきました。近年は、一細胞RNA解析(scRNA-seq)や空間的な遺伝子発現の解析によって、PSMが「後方は未熟・前方は分節直前」という単純な二分法では割り切れない、連続的で多次元的な細胞状態の集まりであることが分かってきました[1]。ただし一細胞解析には注意も必要で、同じ種類の細胞でも時計の位相(振動のどの瞬間か)によって遺伝子の量が大きく変わるため、「別の細胞なのか」「同じ細胞の別のタイミングなのか」を見分ける工夫が求められます。
とくに大きな進歩が、ヒトの多能性幹細胞からiPS細胞由来のPSM様細胞やオルガノイドをつくれるようになったことです。ヒトのPSM様細胞では、HES7の時計を試験管の中で再現でき、その周期はマウス(約2.5時間)より長い約5時間で、FGF・WNT・Notchなどによって制御されることが示されました[11]。これにより、動物モデルと、ヒトの先天性疾患の遺伝学とのあいだを埋める実験系が手に入りつつあります。将来的には、患者さんで見つかった変異を導入して、「遺伝子の変化 → 時計の乱れ → 仕切りの異常」という流れを同じ系で追える可能性が開けています[12]。
こうしたヒト細胞のモデルは、病気の仕組みを「皿の上で」調べる道も開きます。たとえば、脊椎肋骨異骨症や先天性側弯症の患者さんで見つかった遺伝子の変化を、健康な細胞にゲノム編集で導入すれば、その変化が時計のリズムや境界づくりにどう影響するのかを、実際のヒト細胞で確かめられます。動物では表れ方が異なることもあるため、ヒト細胞で直接検証できる意義は大きく、「意義不明の変化」が本当に病気につながるのかを判断する材料にもなり得ます。まだ研究段階ではありますが、基礎研究と臨床のあいだをつなぐ有力な手段として期待されています。
こうしたヒトのモデルは、単に時計を眺めるためだけのものではありません。オルガノイド(立体的な細胞の集合体)の技術と組み合わせることで、体軸が伸びる様子や、体節が左右一対に切り出される過程の一部を、皿の上で再現しようという試みも進んでいます。空間的に遺伝子の働きを読み取る解析(空間トランスクリプトミクス)を重ねれば、「どの細胞が」「どの位置で」「どのタイミングで」振動しているのかを立体的にとらえられるようになります。動物では見えにくかったヒト特有の性質を、倫理的に扱える範囲で調べられることが、この分野の大きな前進です。
8. 病気とのつながり ─ 背骨・肋骨の分節異常
PSM研究の臨床的な意味がもっとも直接的に表れるのが、生まれつきの背骨・肋骨の分節異常です。体節づくりや体節の前後の向きづけが乱れると、椎骨や肋骨に半椎(片側だけの椎骨)、癒合(くっつき)、配列の乱れなどが生じ、脊椎肋骨異骨症(SCDO)や先天性側弯症として現れます。SCDOは、複数の連続した椎骨の分節異常・肋骨の異常・体幹の短さが特徴で、原因遺伝子としてDLL3・MESP2・LFNG・HES7などが知られ、多くは常染色体潜性(劣性)の遺伝形式をとります[15]。Jarcho-Levin症候群も、この分節異常の枠組みで理解される病気です。
HES7は、時計の仕組みとヒトの病気を直接結ぶ代表例です。2008年に、HES7の変異がヒトのSCDOを起こすことが示され、マウスで組み立てられていたHES7の負のフィードバック時計が、ヒトの脊椎の発生にも臨床的に重要であることが確立しました[13]。
一方で、TBX6に関連する先天性側弯症は、「時計遺伝子の異常がすべての原因」という単純な図式を否定します。まれな機能喪失型のTBX6変異と、比較的頻度の高い機能が弱いタイプ(ハプロ不全に関わる低機能アレル)とを複合ヘテロ接合で受け継ぐことが、先天性側弯症の重要な原因となり、解析されたグループでは最大で約11%を説明しうると報告されました[14]。TBX6はPSMの性質づけと仕切りづくりの領域設定に関わるため、この病気は「時計の振動そのもの」というより、時計の情報を正しい場所で境界に変換する段階の異常として理解できます。
💡 用語解説:似た形の異常でも原因はさまざま
同じ「椎骨の分節異常」に見えても、その裏ではミスセンス変異やナンセンス変異など、異なる遺伝子・異なる仕組みが働いていることがあります。発振の異常、同期の異常、運命決定の異常、境界形成の異常——これらを区別して考えられる点に、PSM研究の臨床的な価値があります。
臨床の現場では、脊椎肋骨異骨症(SCDO)と先天性側弯症は、しばしば重なりながらも区別して扱われます。SCDOは複数の連続した椎骨と肋骨が広く侵されるのに対し、先天性側弯症は半椎や椎体形成不全といった局所的な椎骨の異常から背骨が曲がるものを指すことが多く、両者は連続したスペクトラムとして理解されます。背骨・肋骨の分節異常で胸郭が十分に育たないと、呼吸に関わる問題を生じることがあり、Jeune症候群のような胸郭が狭くなる病気や、胸郭不全症候群(VEPTR)の枠組みとあわせて考えられることもあります。ただしJeune症候群は繊毛の異常による別の成り立ちの病気で、原因の仕組みは分節異常とは異なります。
遺伝形式の面では、SCDOの多くが常染色体潜性(劣性)で、両親がそれぞれ保因者(症状のない持ち主)である場合に子どもに現れます[15]。一方でTBX6関連の先天性側弯症のように、まれな変異と頻度の高い低機能タイプの組み合わせで発症するものもあり、単純な優性・劣性では割り切れないことがあります。さらに、動物実験では、遺伝的な素因に加えて、妊娠初期の一時的な酸素不足のような環境要因が重なると分節異常が出やすくなることも示唆されており、背骨の分節異常は「遺伝子と環境の相互作用」の視点でも研究が進んでいます。原因が絞られれば、家系での再発率の見通しや、次の妊娠での出生前の検査といった選択肢の話し合いにもつながります。
🩺 院長コラム【基礎研究の言葉が、家族の説明に変わるとき】
体節時計や前体節中胚葉という言葉は、一見すると診察室からは遠い、基礎研究の用語に思えるかもしれません。けれども、お子さんの背骨や肋骨の形について説明するとき、「なぜこうなったのか」という問いに向き合ううえで、こうした仕組みの理解はとても役に立ちます。発生のどの段階で、どの遺伝子の働きが影響したのかを整理できると、同じ「分節の異常」でも、その意味合いや今後の見通しが違って見えてくるからです。
遺伝診療では、原因がはっきりしない場合にも、検査で何が分かり、何が分からないのかを整理して説明することが重要です。基礎研究で積み上げられた知識を、ご本人やご家族が選択肢を検討するための判断材料へと翻訳することは、臨床遺伝専門医の役割の一つです。
ミネルバクリニックでは、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。背骨・肋骨の分節異常が疑われる場合には、脊椎肋骨異形成症NGSパネルや骨格異形成症の遺伝子パネル、原因遺伝子が絞られている場合には単一遺伝子疾患の出生前診断など、状況に応じた選択肢を話し合います。検査を受けるかどうかを含め、決めるのはご本人・ご家族であり、私たちは中立の立場で判断材料を整理する役割を担います。
遺伝学的検査では、はっきり病気に結びつくと分かる変化だけでなく、「病気との関係がまだ判断できない変化(意義不明のバリアント)」が見つかることもあります。とくにPSMに関わる遺伝子群のように、変異の性質によって影響の大きさが変わりうる場合は、検査結果をどう受け止めるかが大切になります。だからこそ、検査の前後で、何がどこまで分かるのか、見つかった変化がご本人やご家族にとってどんな意味を持つのかを、専門医とていねいに話し合う過程が欠かせません。なお、前体節中胚葉そのものは発生生物学の基礎概念であり、日常の診療で直接検査する対象ではありません。ここでは「背骨の分節異常をどう理解するか」の土台として位置づけています。
9. よくある誤解
誤解①「PSMは体節の材料置き場にすぎない」
PSMは静かな倉庫ではなく、後ろで補充・前で消費をくり返す動的な組織です。細胞の状態・動き・遺伝子の働きが刻々と移り変わり、その中心では体節時計が時を刻んでいます。
誤解②「遺伝子発現の波は細胞が移動している」
波のように見えても、細胞そのものが前へ流れているわけではありません。各細胞がその場でオン・オフするタイミングのずれが、全体として波に見えているだけです。
誤解③「背骨の分節異常はすべて同じ原因」
似た形の異常でも、発振の異常・同期の異常・境界形成の異常など、裏にある仕組みは一つではありません。HES7型とTBX6型では、乱れている段階が異なります。
誤解④「ヒトの体節時計は調べようがない」
近年はヒトのiPS細胞からPSM様細胞をつくり、試験管の中で時計を再現・観察できるようになりました。ヒト特有の遅い周期の解析も進んでいます。
まとめ ─ 背骨のリズムを刻む舞台
前体節中胚葉(PSM)は、背骨・肋骨のもとになる体節を、前端から一定のリズムで切り出していく発生の舞台です。その中心では体節時計が時を刻み、Notch・Wnt・FGF・レチノイン酸という信号が位置と成熟を決め、Mesp2・Tbx6・Ripplyが「揺れる時計」を「固定された仕切り」へと変換します。この一連の流れのどこかが乱れると、脊椎肋骨異骨症や先天性側弯症といった背骨・肋骨の分節異常が生じます[13][14]。
重要なのは、似た形の異常でも、その裏にある分子の仕組みは一つではないということです。発振・同期・運命決定・境界形成のどの段階が乱れたのかを区別できることに、この分野の臨床的な価値があります。ヒトのiPS細胞を使ったモデルの登場によって、こうした理解は今後さらに精密になっていくでしょう[11]。背骨という規則的な構造が、分子レベルの「時計」と境界形成機構によってつくられていることは、遺伝性疾患を理解するうえでの重要な土台になります。
よくある質問(FAQ)
Q1. 前体節中胚葉(PSM)とは何ですか?
前体節中胚葉(presomitic mesoderm, PSM)とは、胎児の背中側にある「未分節の沿軸中胚葉」で、背骨・肋骨のもとになる体節を、前端から一対ずつ周期的に切り出していく組織です。後端には尾側の前駆細胞から新しい細胞が加わり、前方へ進むにつれて成熟します。その中心では「体節時計」という遺伝子発現の振動が時を刻んでいます。
Q2. 体節時計(セグメンテーション時計)とは何ですか?
体節時計とは、PSMの中で遺伝子の働きが一定のリズムでオン・オフをくり返す仕組みで、体節が規則正しい間隔でつくられるもとになります。中心にはHES7のような転写抑制因子の「遅れをともなう負のフィードバック」があり、Notch・Wnt・FGF・レチノイン酸といった信号と協力して働きます。周期は動物によって異なり、マウスで約2〜2.5時間、ヒトの試験管内モデルで約5時間です。
Q3. PSMの異常はどんな病気につながりますか?
体節づくりや体節の前後の向きづけが乱れると、椎骨や肋骨に半椎・癒合・配列の乱れが生じ、脊椎肋骨異骨症(SCDO)や先天性側弯症として現れます。原因遺伝子にはDLL3・MESP2・LFNG・HES7・TBX6・RIPPLY2などがあり、これらが時計づくり・同期・運命決定・境界形成という異なる段階に分かれて関わっています。多くのSCDOは常染色体潜性(劣性)の遺伝形式をとります。
Q4. 背骨の分節異常は、どの遺伝子が原因かで対応が変わりますか?
似た形の異常でも、原因遺伝子や乱れている段階は一つではありません。たとえばHES7の変異は「時計そのもの」の障害、TBX6に関連する先天性側弯症は「時計の情報を仕切りに変換する段階」の障害と理解できます。TBX6では、まれな機能喪失型と頻度の高い低機能タイプを複合ヘテロ接合で受け継ぐことが原因になり、解析されたグループでは最大約11%を説明しうると報告されています。原因の違いは、遺伝形式や再発率を考えるうえでも意味を持ちます。
Q5. ヒトの体節時計は研究できるのですか?
できます。近年はヒトのiPS細胞(人工多能性幹細胞)からPSMに似た細胞をつくり、HES7の時計を試験管の中で再現・観察できるようになりました。ヒトの周期はマウスより長い約5時間で、FGF・WNT・Notchなどによって制御されることが分かっています。これにより、患者さんで見つかった変異を導入して仕組みを追う研究の道が開かれつつあります。
🏥 背骨・肋骨の分節異常と遺伝のご相談
前体節中胚葉(PSM)そのものは発生生物学の基礎概念であり、当院で直接検査する対象ではありません。
一方で、脊椎肋骨異骨症や先天性側弯症など、背骨・肋骨の分節異常に関わる遺伝性疾患については、臨床遺伝専門医による遺伝カウンセリングや遺伝学的検査が関係することがあります。
この記事は病気や仕組みを正しく知っていただくための解説です。
参考文献
- [1] Miao Y, Pourquié O. Cellular and molecular control of vertebrate somitogenesis. Nat Rev Mol Cell Biol. 2024;25(7):517-533. doi:10.1038/s41580-024-00709-z. [PubMed 38418851]
- [2] Bessho Y, Hirata H, Masamizu Y, Kageyama R. Periodic repression by the bHLH factor Hes7 is an essential mechanism for the somite segmentation clock. Genes Dev. 2003;17(12):1451-1456. doi:10.1101/gad.1092303. [PubMed 12783854]
- [3] Isomura A, Kageyama R. Progress in understanding the vertebrate segmentation clock. Nat Rev Genet. 2025;26(7):479-493. doi:10.1038/s41576-025-00813-6. [Nat Rev Genet 2025]
- [4] FGF signaling controls somite boundary position and regulates segmentation clock control of spatiotemporal Hox gene activation. Cell. 2001. [PubMed 11511349]
- [5] Naiche LA, Holder N, Lewandoski M. FGF4 and FGF8 comprise the wavefront activity that controls somitogenesis. Proc Natl Acad Sci U S A. 2011;108(10):4018-4023. doi:10.1073/pnas.1007417108. [PubMed 21368122]
- [6] Vermot J, Gallego Llamas J, Fraulob V, Niederreither K, Chambon P, Dollé P. Retinoic acid controls the bilateral symmetry of somite formation in the mouse embryo. Science. 2005;308(5721):563-566. doi:10.1126/science.1108363. [PubMed 15731404]
- [7] DeltaC and DeltaD ligands play different roles in the segmentation clock dynamics. Nat Commun. 2025. [PubMed 40069165]
- [8] Oginuma M, Niwa Y, Chapman DL, Saga Y. Mesp2 and Tbx6 cooperatively create periodic patterns coupled with the clock machinery during mouse somitogenesis. Development. 2008;135(15):2555-2562. doi:10.1242/dev.019877. [PubMed 18579680]
- [9] Yabe T, Uriu K, Takada S. Ripply suppresses Tbx6 to induce dynamic-to-static conversion in somite segmentation. Nat Commun. 2023;14(1):2115. doi:10.1038/s41467-023-37745-w. [PubMed 37055428]
- [10] Bénazéraf B, Francois P, Baker RE, Denans N, Little CD, Pourquié O. A random cell motility gradient downstream of FGF controls elongation of an amniote embryo. Nature. 2010;466(7303):248-252. doi:10.1038/nature09151. [PubMed 20613841]
- [11] Diaz-Cuadros M, Wagner DE, Budjan C, et al. In vitro characterization of the human segmentation clock. Nature. 2020;580(7801):113-118. doi:10.1038/s41586-019-1885-9. [PubMed 31915384]
- [12] Isomura A, Kageyama R. Progress in understanding the vertebrate segmentation clock. Nat Rev Genet. 2025;26(7):479-493. doi:10.1038/s41576-025-00813-6. [Nat Rev Genet 2025]
- [13] Sparrow DB, Guillén-Navarro E, Fatkin D, Dunwoodie SL. Mutation of Hairy-and-Enhancer-of-Split-7 (HES7) in humans causes spondylocostal dysostosis. Hum Mol Genet. 2008;17(23):3761-3766. doi:10.1093/hmg/ddn272. [PubMed 18775957]
- [14] Wu N, Ming X, Xiao J, et al. TBX6 null variants and a common hypomorphic allele in congenital scoliosis. N Engl J Med. 2015;372(4):341-350. doi:10.1056/NEJMoa1406829. [PMC4326244]
- [15] Umair M, Younus M, Shafiq S, Nayab A, Alfadhel M. Clinical genetics of spondylocostal dysostosis: A mini review. Front Genet. 2022;13:996364. doi:10.3389/fgene.2022.996364. [PMC9732429]






