

目次
- 1 1. OGT遺伝子とO-GlcNAc修飾 ─ 「栄養を感じる糖の目印」の設計図
- 2 2. 3つのアイソフォーム ─ 同じ遺伝子から生まれる「置き場所違い」の酵素
- 3 3. 構造と触媒の仕組み ─ 2つの部品が生む精密さ
- 4 4. 基質の見分け方 ─ たった1つの酵素が数千種類を扱えるわけ
- 5 5. OGAとの相互阻害 ─ 「付ける係」と「外す係」が握手する
- 6 6. 足場としての顔 ─ 糖を付けるだけではない
- 7 7. クロマチンとDNA修復 ─ 核の中でのOGT
- 8 8. 糖尿病・がん・細胞老化とのつながり
- 9 9. OGT関連先天性糖鎖異常症(OGT-CDG)
- 10 10. 検査と最新の治療研究
- 11 よくある誤解
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
私たちの体は、食事でとった糖の量を細胞ひとつひとつが感じ取り、その情報をもとにタンパク質の働きを微調整しています。この「栄養を感じるセンサー」の中心にいるのがOGT遺伝子です。OGTがつくる酵素は、数千種類ものタンパク質にO-GlcNAc(オー・グルクナック)という小さな糖の目印を付け外しし、代謝・遺伝子のスイッチ・細胞の生き死にまで幅広く調節しています。この働きが乱れると、2型糖尿病、がん、そしてX染色体につながる重い神経発達の障害(OGT-CDG)など、さまざまな病気に関わってきます。本記事では、OGTという遺伝子の姿と役割、そして最新の治療研究までを、遺伝専門医の視点からやさしく解説します。
Q. OGT遺伝子とは何をする遺伝子ですか?まず結論だけ知りたいです
A. OGTは「O-GlcNAc転移酵素」というタンパク質の設計図で、細胞内の栄養状態に応じて、他のタンパク質にO-GlcNAcという糖を1つだけ付ける唯一の酵素です。核・細胞質・ミトコンドリアにある数千種類ものタンパク質を修飾し、代謝や遺伝子発現、細胞の生存・増殖を調節します。哺乳類ではこの遺伝子がないと胚が育たず、生命維持に欠かせません。X染色体にあるため、変異による神経発達障害(OGT-CDG)は主に男の子に起こります。
- ➤基本の役割 → 栄養から作られるUDP-GlcNAcを材料に、タンパク質のセリン・スレオニンへO-GlcNAcを付ける唯一の酵素
- ➤2つの顔 → 糖を付ける「酵素」の顔と、複合体をつなぐ「足場」の顔。増殖には足場機能が欠かせない
- ➤病気とのつながり → 2型糖尿病のインスリン抵抗性、多くのがんでの過剰発現、細胞老化に関与
- ➤OGT-CDG → OGTの変異が起こすX連鎖性の知的障害・発達遅滞。主に男児に発症する
- ➤最新研究 → 全身毒性を避けるため、がん細胞だけで効く糖付き分解薬や光で操るOGTなどが開発中
🧬 OGT遺伝子の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. OGT遺伝子とO-GlcNAc修飾 ─ 「栄養を感じる糖の目印」の設計図
私たちの細胞は、タンパク質を作ったあとにさまざまな「飾り付け」をして、その働きを細かく調整します。この飾り付けを翻訳後修飾(PTM)と呼びます。リン酸を付けるリン酸化がよく知られていますが、それと並んで重要なのが、O-GlcNAc(オー・グルクナック)修飾です。これはタンパク質のセリンやスレオニンというアミノ酸に、N-アセチルグルコサミンという単糖を1つだけ付ける反応で、細胞内の栄養状態を感じ取る主要なしくみとして働いています[1]。
この糖を付ける反応を、細胞の中でたった1つの酵素が一手に引き受けています。それがOGT(O-GlcNAc転移酵素)です。OGT遺伝子はX染色体の長腕(Xq13.1)にあり、そこから作られる酵素は、核・細胞質・ミトコンドリアに存在する数千種類以上のタンパク質を標的にします[2]。O-GlcNAc修飾は3,000を超える核・細胞質・ミトコンドリアタンパク質に関与すると報告されており[3]、その影響範囲の広さがうかがえます。O-GlcNAcは、より一般的な糖鎖修飾(グリコシル化)の一種ですが、細胞外に分泌されるタンパク質に長い糖鎖を付ける通常のグリコシル化とは違い、細胞の内側で単糖1つを付け外しする点が特徴です。
📘 用語解説:ヘキソサミン生合成経路(HBP)とUDP-GlcNAc
OGTが糖を付けるとき、材料として使うのがUDP-GlcNAcという分子です。これは、細胞に取り込まれたグルコース(ブドウ糖)のうち、およそ2〜5%が流れ込む「ヘキソサミン生合成経路(HBP)」の最終産物です。つまり、栄養(糖)が豊富だと材料であるUDP-GlcNAcが増え、OGTによるO-GlcNAc修飾がさかんになります。逆に糖を取り除く酵素OGAが糖を外すことで、付いたり外れたりのサイクル(O-GlcNAcサイクリング)が回ります。OGTは、いわば「栄養の量を糖の目印に翻訳する装置」なのです。
OGTがどれほど生命に欠かせないかは、動物実験からも明らかです。マウスでOGT遺伝子を働かなくすると、胚が育たずに胎生致死(お腹の中で発生が止まる)となります[4]。個々の細胞レベルでも、OGTは増殖に必須であることが確認されています[5]。栄養を感じるという地味に見える役割が、実は発生や細胞の生存の根幹を支えているのです。
2. 3つのアイソフォーム ─ 同じ遺伝子から生まれる「置き場所違い」の酵素
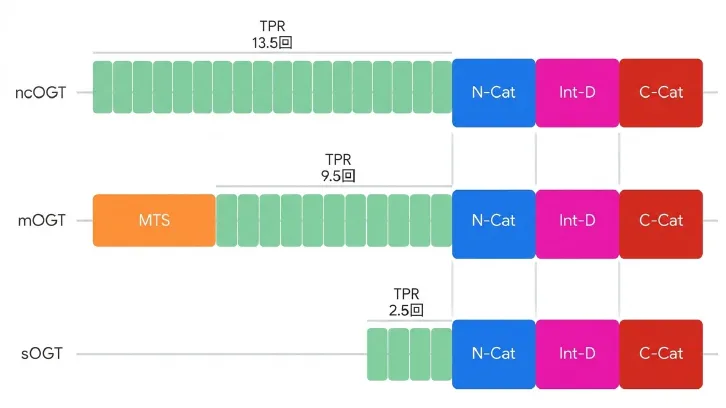
1つのOGT遺伝子からは、選択的スプライシングという仕組みによって、主に3種類のOGT(アイソフォーム)が作り分けられます。これらは糖を付ける触媒部分(C末端)はほぼ共通ですが、N末端側にあるTPRドメインの長さと、細胞内のどこに行くかを決める目印が異なります。その結果、置かれる場所と得意分野が変わってきます。
最も長いncOGTは核と細胞質に広く分布し、転写因子・ヒストン・キナーゼなど非常に多くのタンパク質を標的とします。mOGTはミトコンドリアへ移動する目印を持ち、ミトコンドリア内で働きます。最も短いsOGTは役割がまだ完全には解明されていません。特にmOGTは、過剰に発現させるとアポトーシス(プログラムされた細胞死)を引き起こすなど、強い細胞毒性を示すことが知られています。
ミトコンドリアの内部では、mOGTが糖を付け、専用の脱糖鎖酵素(OGAのミトコンドリア型)が糖を外すことで、活性酸素(ROS)のバランスやエネルギー産生を整えていると考えられています。ミトコンドリアの働きが心配な方向けの検査については、ミトコンドリア病遺伝子検査パネルでも解説しています。
3. 構造と触媒の仕組み ─ 2つの部品が生む精密さ
OGTの立体構造は、大きく2つの部分からできています。1つはN末端のTPRドメインで、34アミノ酸の繰り返しがらせん状に積み重なった、長い「トンネル」のような形をしています。ここが標的タンパク質を捕まえる役割を担います。もう1つがC末端の触媒ドメインで、実際に糖を移す反応を行います[6]。2011年に報告されたヒトOGTの結晶構造により、酵素がどのようにペプチド配列を認識し、糖を転移するのかの手がかりが得られました[6]。
触媒ドメインはさらに細かく分かれており、糖の供与体であるUDP-GlcNAcの結合ポケットを作る領域や、他の糖転移酵素には見られないOGT独自の「介在ドメイン(Int-D)」を含みます。OGTは金属イオンに頼らずに反応を進める反転型の糖転移酵素で、UDP-GlcNAcとペプチド基質が決まった順番で結合することで、糖が正しい向きに転移されるよう精密に制御されています。まず糖の供与体が結合し、それによってペプチドが適切に配置されるという「順序だった仕組み」が働いています。
📘 用語解説:TPRドメインとは
TPR(テトラトリコペプチドリピート)は、34個のアミノ酸からなる短い配列が何度も繰り返される構造で、タンパク質どうしが結合するための「握手する手」のような役割をします。OGTのTPRは十数回の繰り返しが積み重なって長いらせんとなり、その内側の空間(ルーメン)で標的タンパク質を捕まえます。後で述べるOGT-CDGの変異の多くは、このTPRドメインに集中しています。
なお、OGTの触媒に関わるアミノ酸の番号は、どのアイソフォームを基準に数えるかによって文献間で表記が異なることがあります。本記事では個々の残基番号を細かく特定するよりも、「TPRで捕まえて、触媒ドメインで糖を移す」という全体像を押さえていただくことを重視しています。
4. 基質の見分け方 ─ たった1つの酵素が数千種類を扱えるわけ
OGTの不思議なところは、数千種類ものタンパク質を修飾するのに、リン酸化酵素のような「はっきりした目印の配列(コンセンサス配列)」を持たない点です。ではどうやって多種多様な相手を見分けているのでしょうか。近年の研究から、OGTは少なくとも2通りの認識方法を使い分けていることが分かってきました。
1つ目は、TPRトンネルによる「主鎖認識」です。標的となるタンパク質の、決まった形をとらない柔らかい部分(天然変性領域と呼ばれます)が、TPRトンネルの内側に入り込みます。トンネルの中には保存されたアスパラギンという残基がはしごのように並んでおり、これがペプチドの背骨(主鎖)と水素結合を作ってしっかり固定します。この方法だと、アミノ酸の種類(側鎖)に強く依存せずに、いろいろな相手を安定して触媒ポケットへ送り込めるという利点があります。実際、OGTがHCF-1という重要な相手を捕まえるときの結合の強さは、ピコモルレベルというきわめて高い親和性に達すると報告されています[7]。
2つ目は、介在ドメイン(Int-D)を介した認識です。一部の基質は「短い線状モチーフ(SLiM)」と呼ばれる短い目印を持ち、これがOGTの介在ドメインにある専用のポケットに結合することが分かっています[8]。ファージディスプレイという手法を使った研究では、OGTの活性部位近くの「エキソサイト」に結合する高親和性のペプチド配列が同定されました[8]。基質はまずこのポケットに引っかかり、段階的に触媒ポケットへと導かれていくと考えられています。こうした複数の入り口を使い分けることで、OGTは構造的に多様な相手を高い選択性で扱えるのです。
5. OGAとの相互阻害 ─ 「付ける係」と「外す係」が握手する
細胞内のO-GlcNAcレベルは、糖を付けるOGTと、糖を外すOGA(O-GlcNAcase)という、たった1組の酵素ペアで厳密に管理されています。長らく、この2つは別々に働くと考えられてきました。ところが2023年、クライオ電子顕微鏡によるヒトOGT-OGA複合体の構造解析が、この2つの酵素が物理的に結合して互いを直接コントロールしていることを明らかにしました[9]。
構造解析によると、OGTは機能的に重要な「ハサミ型の二量体」を作ってOGAと結合します。この複合体では、OGAの長い柔軟な部分がOGTの基質結合溝を占領し、OGTが他の相手を修飾できないように物理的にふさぎます。逆にOGTが結合することで、OGA本来の二量体化が壊され、OGAの活性中心もふさがれて、OGAによる脱糖鎖もできなくなります[9]。この驚くべき「相互阻害」は、糖を付けてはすぐ外す、という無駄なサイクル(エネルギーの浪費)を防ぎ、細胞内の糖修飾のバランスを保つための、たいへん精巧なフィードバックの仕組みだと考えられています。
🔄 O-GlcNAcサイクリングと相互阻害のイメージ
↓ HBP
UDP-GlcNAc
(糖を付ける)
(糖を外す)
両者が結合して複合体を作ると、互いの活性部位をふさぎ合い(相互阻害)、無駄なサイクルを抑えて細胞内のバランスを保ちます。
6. 足場としての顔 ─ 糖を付けるだけではない
OGTには「糖を付ける酵素」という顔のほかに、それ自体が足場(スキャフォールド)タンパク質として複合体をつなぎとめる、もう1つの顔があります。この「非触媒的」な役割が近年注目されています。
象徴的なのが、HCF-1という転写因子を切断する働きです。HCF-1は細胞周期の制御に欠かせない因子ですが、OGTはこれを特殊な形で切断する「プロテアーゼ」としての機能も持っています。この切断は、グルタミン酸へのO-GlcNAc修飾をきっかけにペプチド結合が加水分解されるという珍しいメカニズムによるもので、栄養状態の変化がHCF-1の成熟と細胞増殖のシグナルへと変換されます。OGTがHCF-1をピコモルレベルの非常に高い親和性で結合することも報告されています[7]。
さらに興味深いのは、細胞の「生存」と「増殖」で必要な機能が異なるという発見です。デグロンという手法でOGTの機能を細かく分けて調べた研究によれば、細胞が生き続けるためには、ごくわずかな糖転移活性があれば十分である一方、細胞が正常に増殖するためには、OGTの非触媒的な足場機能が欠かせないことが示されました[5]。実際、OGTを枯渇させて増殖を止めた細胞に、糖転移活性を完全に失ったOGT変異体を補充すると、増殖が一部回復します[5]。これは、OGTが巨大な複合体を作り、物理的な相互作用によってさまざまなタンパク質の配置や安定性を支えているためと考えられます。
関連して、OGTを失った細胞ではプロテアソームの活性が異常に高まり、アミノ酸レベルの上昇を介してmTORが過剰に活性化し、最終的にミトコンドリアの機能障害から細胞死に至るという連鎖も報告されています[10]。OGTが単なる糖付けの酵素を超えた、細胞の恒常性の要であることがわかります。
7. クロマチンとDNA修復 ─ 核の中でのOGT
核の中で、OGTは遺伝子のオン・オフを左右する重要なエピジェネティクスの担い手でもあります。OGTの主な標的の1つがヒストンで、DNAを巻き取るタンパク質です。ヒストンH2Bの特定の場所へのO-GlcNAc修飾は、同じヒストン上の別の場所のモノユビキチン化を促し、これが転写が活発な領域の目印となって、下流のヒストンメチル化のカスケードを起動します。OGTは、いわば転写を活性化するスイッチ群の最上流に位置しているのです。
さらにOGTは、DNAの脱メチル化を担うTET酵素を安定化させ、5-メチルシトシンから5-ヒドロキシメチルシトシンへの変換を助けるなど、DNAのエピジェネティックな状態にも影響を与えます。
もう1つ重要なのがDNA修復での役割です。放射線や酸化ストレスでDNAの二重鎖が切れると、損傷部位にOGTが呼び集められ、ヒストンH2BのO-GlcNAc化が増えます。この修飾が修復タンパク質の集合を促し、DNA修復を進めるための足場を提供します[11]。OGTが枯渇するとゲノムが不安定になり、後で述べる細胞老化の引き金になります。核の中でも、OGTはDNA損傷応答(DDR)を統括する「ゲノムの守り手」として働いているのです。
8. 糖尿病・がん・細胞老化とのつながり
OGTの働きが乱れることは、いくつもの病気の根っこにつながっています。ここでは代表的な3つを見ていきます。
8.1 2型糖尿病とインスリン抵抗性
OGTはインスリンのシグナル伝達を抑える側に働き、2型糖尿病の成り立ちに深く関わります。高カロリー食や肥満で高血糖が続くと、HBPへの糖の流入が増え、UDP-GlcNAcが増加します。すると過剰なOGT活性が引き起こされ、インスリン受容体基質(IRS-1/IRS-2)や下流のAKTなどが不適切にO-GlcNAc化されます[12]。
具体的には、インスリン刺激に応じてOGTが細胞膜に呼び寄せられると、AKTの活性化に必要なリン酸化と競合してこれを妨げ、IRS-1とPI3Kの結合も弱めます[12]。その結果、骨格筋や脂肪組織では糖輸送体GLUT4の細胞膜への移動が妨げられ、末梢組織でのインスリン抵抗性が生じます。さらに肝臓では、転写因子FoxO1が核内に留まって糖新生の遺伝子を過剰に働かせ、空腹時血糖のさらなる上昇という悪循環を招きます[12]。糖代謝が気になる方は、糖尿病・肥満遺伝子検査(NGSパネル)もご参照ください。
8.2 がんとワールブルグ効果
がん細胞は、正常細胞と違って解糖系に強く依存した代謝(ワールブルグ効果)を好みます。この代謝シフトに伴ってHBPの流れも増え、乳がん・膵臓がん・大腸がん・前立腺がんなど多くの固形がんでOGTの過剰発現がみられます。OGTは、c-MYC、p53、NF-κB、HIF-1αといった発がんに関わる転写因子を直接O-GlcNAc化し、分解されにくくして安定化させます。これにより、腫瘍の増殖・アポトーシス回避・浸潤や転移が後押しされると考えられています。実際、膵臓がんの細胞では、KRAS変異によって高まったO-GlcNAc化が代謝酵素を活性化し、腫瘍の増殖を支えることが示されています[13]。
8.3 酸化ストレスと細胞老化
細胞老化(セネッセンス)は、強い酸化ストレスやDNA損傷の蓄積によって起こる、元に戻らない細胞周期の停止状態です。前述のとおり、OGTはヒストン修飾を介してDNA修復を統括し、細胞を酸化ストレスによるゲノム不安定性から守っています[11]。OGT活性が阻害されるとDNA修復が遅れ、細胞は損傷に耐えきれず、より早く老化へ移行します。一方で、この性質を逆手にとり、がん細胞などで意図的にOGTを阻害して増殖を永続的に止めるという治療戦略も研究されています。OGTは、守り手にも弱点にもなりうる「諸刃の剣」なのです。
9. OGT関連先天性糖鎖異常症(OGT-CDG)
近年の全エクソーム解析の進展により、OGT遺伝子のミスセンス変異が、X連鎖性の知的障害・発達遅滞・言語障害・特異な顔貌・微小頭症を特徴とする先天性糖鎖異常症(OGT-CDG)の原因になることが分かってきました[14]。OGTはX染色体にあるため、患者の多くは男性です。ただし稀に、X染色体不活化の偏りや新生突然変異により、女性(一卵性双生児の例など)にも発症が報告されています[15]。
9.1 変異の場所によるメカニズムの違い
OGT-CDGの変異は、N末端のTPRドメインと、C末端の触媒ドメインの両方で見つかっています。当初はTPRドメインの変異が中心と考えられていましたが、その後、触媒ドメインの変異(N567K、N648Y、C921Y など)も同定され、原因となる変異が特定のドメインに限られないことが確認されました[16]。それぞれ異なるメカニズムで細胞機能に影響しながら、最終的には共通の神経発達障害を引き起こします。
動物モデルでの検証も進んでいます。触媒活性が下がる変異(C921Y)を導入したマウスは、従来のOGT完全欠損マウスと違って生き延びるため、詳しい解析が可能になりました。このマウスでは、脳内のO-GlcNAcバランスの崩れとともに、体格の縮小と微小頭症が実証されており、ヒトのOGT-CDGの症状を再現しています[19]。また、この変異をもつ胚性幹細胞では自己複製能が低下することも報告されており[20]、発生の早い段階からOGTが重要であることを示しています。
📘 用語解説:先天性糖鎖異常症(CDG)とOGT-CDG
CDG(先天性糖鎖異常症)は、タンパク質などに糖鎖を付ける過程の異常で起こる、160種類以上の希少疾患の総称です。多くは細胞外に分泌されるタンパク質の糖鎖の異常ですが、OGT-CDGは細胞内のO-GlcNAc修飾に関わるという点で特殊です。そのため、通常のCDGで用いる血液のトランスフェリン検査では見つけにくく、診断には遺伝子解析が重要になります。CDG全般の検査については先天性糖鎖異常症(CDG)遺伝子検査をご覧ください。
9.2 遺伝カウンセリングの観点
OGT-CDGはX連鎖であるため、ご家族の遺伝カウンセリングでは特有の配慮が必要です。多くは男の子に症状が出ますが、保因者の女性は通常症状がないか軽度です。ただしX不活化の偏りによっては女性にも症状が出ることがあり、また新生突然変異として初めて家系に現れる場合もあります。次のお子さんの再発リスクや、ご家族の中での保因の可能性は、変異が生殖細胞系列にあるか新生であるかによって大きく変わります。遺伝形式を正確に把握することが、将来への備えの出発点になります。
10. 検査と最新の治療研究
10.1 OGT-CDGの診断と自然歴研究
OGT-CDGは、通常の生化学的なCDGスクリーニングでは検出されにくいため、診断には全エクソーム解析や全ゲノム解析といった網羅的な遺伝子検査が中心的な役割を果たします。原因不明の知的障害や発達遅滞のあるお子さんで、こうした検査によって初めてOGTの変異が見つかることがあります。
また、希少疾患の治療法開発には、病態の進行を追う自然歴研究が欠かせません。OGT-CDGを含むCDG全般については、米国の複数施設が参加する自然歴研究(Frontiers in CDG Consortium、NCT04199000)が進行中で、臨床的なバイオマーカーの探索やQOLの評価が行われています[21]。こうした基盤の整備が、将来の遺伝子治療などの治験準備につながっていきます。
10.2 「がん細胞だけで効く」糖付き分解薬(SCPs)
OGTは多くの病気に関わるため、長らく魅力的な創薬標的とされてきました。しかしOGTは全身の細胞で必須であるため、単純に酵素を阻害する薬は全身性の毒性という大きな課題を抱えていました。この壁を越えるため、細胞のコンテクストに応じて効く精密な技術が次々と開発されています。
その1つが、PROTAC(標的タンパク質分解誘導薬)とO-GlcNAcを組み合わせたSugar-Coated PROTACs(SCPs)です。PROTACは、病気の原因タンパク質をユビキチン・プロテアソーム系に誘導して分解する技術です。SCPsは、E3リガーゼセレブロン(CRBN)への結合部分にわざとO-GlcNAcを付けておくことで、そのままでは糖が邪魔をして働きにくい「不活性状態」にしてあります[22]。細胞内でOGAによってこの糖が外されると、活性型のPROTACへ変換されます[22]。この「酵素反応による代謝的なゲート」を利用し、OGA活性など細胞ごとの代謝状態の違いに応じて分解活性を制御することで、正常組織への影響を抑えながらBRD4などの標的を選択的に分解することを目指した研究が進められています。
10.3 光で操るOGT(Opto-OGT)
OGTの働きを、特定の場所・特定のタイミングでだけ操作するため、植物由来の青色光センサー(クリプトクロム2)とOGTを融合させたOpto-OGTという道具も開発されました[23]。暗い状態ではセンサーがOGTの活性部位をふさいでいて、ほとんど働きません。ところが青色光を当てるとセンサーが集まって構造が変わり、OGTの活性中心が現れて、数分単位で素早く糖付けをオンにできます[23]。さらにOGTを細胞膜に配置すれば、光を当てたときだけインスリン応答(AKTのリン酸化)を局所的に抑えることもでき、複雑なシグナル伝達の中でOGTの役割を解き明かす強力な研究ツールになっています。こうした技術は、OGTの「必須ゆえに全身毒性が心配」という性質を乗り越え、疾患特異的な治療への新しい道を開くものです。

よくある誤解
誤解①「O-GlcNAcは体の外の糖鎖と同じもの」
細胞外に分泌されるタンパク質に付く長い糖鎖と、O-GlcNAcは別物です。O-GlcNAcは細胞の内側で、単糖1つを付け外しする可逆的な修飾で、栄養センサーとして働きます。通常のCDG検査(血液のトランスフェリン)では見つかりにくいのはこのためです。
誤解②「OGT-CDGは男の子だけの病気」
X染色体にあるため患者の多くは男性ですが、女性にも発症しうることが報告されています。X不活化の偏りや新生突然変異が背景にあります。「女の子だから関係ない」と決めつけず、症状に応じて評価することが大切です。
誤解③「OGTは糖を付けるだけの酵素」
OGTには、糖を付ける酵素の顔だけでなく、複合体をつなぐ足場としての顔もあります。細胞の増殖には、糖付けとは別の足場機能が欠かせないことが分かっています。単純な「酵素」という理解では説明できません。
誤解④「OGTを阻害する薬でがんが治る」
OGT阻害はがん研究の重要なテーマですが、OGTは全身で必須のため、単純な阻害には毒性の課題があります。糖付き分解薬や光スイッチなどの精密技術は研究段階であり、確立した治療ではありません。過度な期待は禁物です。
よくある質問(FAQ)
🏥 神経発達障害・希少疾患の遺伝子診断のご相談
原因不明の発達遅滞・知的障害や、先天性糖鎖異常症(CDG)が疑われる場合の
遺伝子検査と遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
参考文献
- [1] The Making of a Sweet Modification: Structure and Function of O-GlcNAc Transferase. J Biol Chem. 2014. [PMC4263849]
- [2] Cryo-EM structure of human O-GlcNAcylation enzyme pair OGT-OGA complex. Nat Commun. 2023. [PMC10618255]
- [3] Combined Antibody/Lectin Enrichment Identifies Extensive Changes in the O-GlcNAc Sub-proteome upon Oxidative Stress. J Proteome Res. 2016;15(12):4318-4336. [PubMed 27669760]
- [4] The O-GlcNAc transferase gene resides on the X chromosome and is essential for embryonic stem cell viability and mouse ontogeny. Proc Natl Acad Sci U S A. 2000;97(11):5735-5739. [PMC18502]
- [5] Mammalian cell proliferation requires noncatalytic functions of O-GlcNAc transferase. Proc Natl Acad Sci U S A. 2021. [PMC7848692]
- [6] Structure of human O-GlcNAc transferase and its complex with a peptide substrate. Nature. 2011. [PubMed 21240259]
- [7] Identification of a Polypeptide Inhibitor of O-GlcNAc Transferase with Picomolar Affinity. J Am Chem Soc. 2024. [JACS 2024]
- [8] Phage display uncovers a sequence motif that drives polypeptide binding to a conserved regulatory exosite of O-GlcNAc transferase. Proc Natl Acad Sci U S A. 2023;120(42):e2303690120. [PubMed 37819980]
- [9] Cryo-EM structure of human O-GlcNAcylation enzyme pair OGT-OGA complex. Nat Commun. 2023. [PMC10618255]
- [10] OGT controls mammalian cell viability by regulating the proteasome/mTOR/mitochondrial axis. Proc Natl Acad Sci U S A. 2023. [PNAS 2023]
- [11] OGT mediated histone H2B S112 GlcNAcylation regulates DNA damage response. J Genet Genomics. 2015;42(9):467-475. [PubMed 26408091]
- [12] Protein O-GlcNAcylation in diabetes and diabetic complications. [PMC3985334]
- [13] O-GlcNAcylation promotes pancreatic tumor growth by regulating malate dehydrogenase 1. Nat Chem Biol. 2022. [Nat Chem Biol 2022]
- [14] Catalytic deficiency of O-GlcNAc transferase leads to X-linked intellectual disability. Proc Natl Acad Sci U S A. 2019. [PMC6660750]
- [15] Catalytic deficiency of O-GlcNAc transferase leads to X-linked intellectual disability (monozygotic female twins, N567K). Proc Natl Acad Sci U S A. 2019. [PNAS 2019]
- [16] O-GlcNAc transferase congenital disorder of glycosylation (OGT-CDG): Potential mechanistic targets revealed by evaluating the OGT interactome. J Biol Chem. 2024. [J Biol Chem 2024]
- [17] Generation of an Interactome for the Tetratricopeptide Repeat Domain of O-GlcNAc Transferase Indicates a Role for the Enzyme in Intellectual Disability. J Proteome Res. 2021. [J Proteome Res 2021]
- [18] A missense mutation in the catalytic domain of O-GlcNAc transferase links perturbations in protein O-GlcNAcylation to X-linked intellectual disability. FEBS Lett. 2020. [PubMed 31627256]
- [19] Neurodevelopmental defects in a mouse model of O-GlcNAc transferase intellectual disability. Dis Model Mech. 2024. [PMC11095632]
- [20] An O-GlcNAc transferase pathogenic variant linked to intellectual disability affects pluripotent stem cell self-renewal. Dis Model Mech. 2023. [PMC10309585]
- [21] Clinical and Basic Investigations Into Congenital Disorders of Glycosylation (FCDGC Natural History Study). ClinicalTrials.gov. [NCT04199000]
- [22] Enzyme-Activated Sugar-Coated Bifunctional Degraders. J Am Chem Soc. 2025. [JACS 2025;147:34672]
- [23] Spatiotemporal control of subcellular O-GlcNAc signaling using Opto-OGT. Nat Chem Biol. 2025;21(2):300-308. [PubMed 39543398]






