
目次
- 1 1. 岡崎フラグメントとは ─ 2本の鎖は同じようには作られない
- 2 2. 発見の歴史 ─ 1968年、日本から生まれた世界共通の用語
- 3 3. 大腸菌とヒトの違い ─ 断片の長さも道具も異なる
- 4 4. 岡崎フラグメントをつなぐ仕組み ─ 「成熟化」の3つの経路
- 5 5. ヌクレオソームとの関係 ─ 断片の長さを決めるもの
- 6 6. テロメアの末端複製問題 ─ ラギング鎖の「最後の断片」
- 7 7. つなぎ合わせに失敗すると何が起こるか
- 8 8. 岡崎フラグメントの処理と関係する遺伝性疾患
- 9 9. がん治療研究との接点 ─ PARP1とFEN1
- 10 10. 遺伝診療とのつながり
- 11 まとめ ─ 途切れながら作り、正確につなぐ
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事
📍 クイックナビゲーション
DNAは細胞が分裂するたびに丸ごとコピーされますが、2本の鎖のうち片方は、途中で何度も途切れながら短い断片として作られています。この短いDNA断片が岡崎フラグメント(おかざきフラグメント/Okazaki fragment)です。1968年に日本の岡崎令治・岡崎恒子夫妻らが報告し、発見者の名前がそのまま世界共通の用語になりました。岡崎フラグメントは作られたあと、プライマーの除去とすき間の連結という仕上げの工程を経て、切れ目のない1本の鎖になります。この工程に関わる遺伝子の変化は、エカルディ・グティエール症候群や原発性小人症などの遺伝性疾患と結びつくことがわかっており、PARP阻害薬など、がん治療の研究とも関係しています。この記事では、岡崎フラグメントの仕組みから病気との関わりまでを、臨床遺伝専門医の視点で解説します。
Q. 岡崎フラグメントとは何ですか?まず結論だけ知りたいです
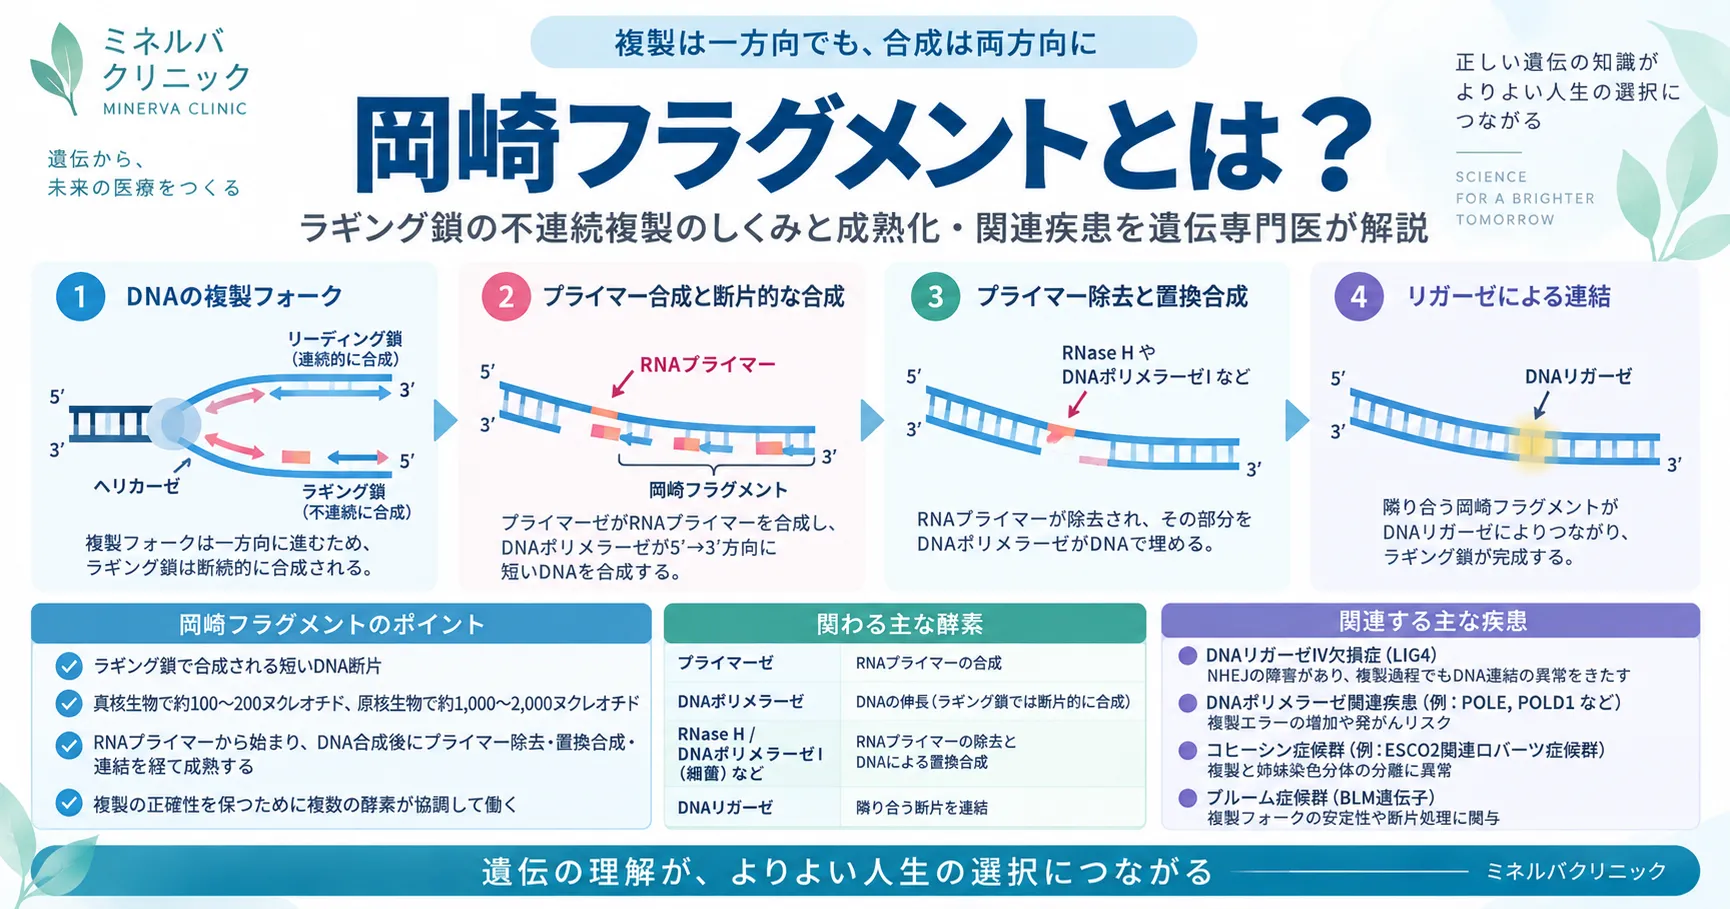
A. 岡崎フラグメントとは、DNA複製のときにラギング鎖(遅れて作られる側の鎖)で、いったん短い断片として作られるDNAのことです。DNAを作る酵素は一方向(5’→3’)にしか鎖を伸ばせないため、ほどける向きと逆向きに作る鎖は、少しずつ区切って作るしかありません。断片の先頭にはRNAプライマーが付いており、これを取り除いてDNAリガーゼでつなぐことで1本の鎖が完成します。ヒトでは断片は150〜200塩基ほどと短く、1回の細胞分裂で1,000万個以上がつなぎ合わされます[1]。
- ➤正体 → ラギング鎖で不連続に作られる短いDNA断片。1968年に岡崎夫妻らが報告した
- ➤なぜ断片になるか → DNAポリメラーゼは5’→3’方向にしか合成できず、ラギング鎖はほどける向きと逆向きに作る必要があるため
- ➤仕上げの工程 → RNAプライマーを取り除き(FEN1・Dna2・RNase H2)、DNAリガーゼIで連結する
- ➤病気との関わり → RNase H2の遺伝子変化はエカルディ・グティエール症候群、LIG1・DNA2・PRIM1・PCNAの変化も遺伝性疾患と関連する
- ➤治療研究 → PARP1は「つながっていない岡崎フラグメント」を感知する。FEN1阻害薬は前臨床段階の研究対象
🧬 岡崎フラグメントの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語名 | おかざきフラグメント/Okazaki fragment。岡崎断片とも呼ばれる |
| 定義 | DNA複製の際、ラギング鎖で不連続に合成される短いDNA断片。5’末端にRNAプライマーを持つ |
| 発見 | 1968年、岡崎令治・岡崎恒子らが米国科学アカデミー紀要(PNAS)に報告[2] |
| 長さ | 細菌では約1,200塩基、真核生物では約200塩基[1] |
| 仕上げに働く主な酵素(ヒト) | DNAポリメラーゼδ、FEN1、Dna2、RNase H2、DNAリガーゼI、PCNA |
| 医療との関わり | 関連遺伝子の変化による遺伝性疾患(エカルディ・グティエール症候群、原発性小人症、免疫不全など)、PARP阻害薬の作用機序の研究 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 岡崎フラグメントとは ─ 2本の鎖は同じようには作られない
細胞が分裂する前には、約30億塩基対のゲノムを正確にコピーするDNA複製が行われます。DNAは2本の鎖がらせん状に絡み合った構造をしており、複製ではこのらせんをほどきながら、それぞれの鎖を鋳型(いがた)にして新しい相手の鎖を作っていきます。らせんをほどく酵素はヘリカーゼと呼ばれ、ほどけている先端部分はY字形に見えることから複製フォークと呼ばれます。新しくできたDNAは、元の鎖1本と新しい鎖1本の組み合わせになるため、この複製の方式を半保存的複製といいます。
ここで問題になるのが、新しい鎖を作る酵素DNAポリメラーゼの性質です。DNAポリメラーゼは、すでにある鎖の3’末端(さんダッシュまったん)に次のヌクレオチドを1つずつ付け足すことしかできず、鎖は必ず5’→3’の方向にしか伸びません。また、ゼロから合成を始めることもできず、足場となる短い「プライマー」が必要です[1]。
💡 用語解説:5’と3’、逆平行とは
DNAの鎖には向きがあり、糖の炭素番号にちなんで一方の端を5’(ごダッシュ)末端、反対の端を3’(さんダッシュ)末端と呼びます。二重らせんを作る2本の鎖は、互いに逆向きに並んでおり、これを「逆平行」といいます。詳しくはDNAの基本構造の解説をご覧ください。DNAポリメラーゼは3’末端にしか部品を付け足せないため、2本の鎖を同じやり方で同時に作ることができません。これが岡崎フラグメントが生まれる根本的な理由です。
2本の鎖は逆向きに並んでいるため、複製フォークがほどけていく方向に対して、片方の鎖は5’→3’の向きのまま切れ目なく伸ばし続けられます。これをリーディング鎖(先行鎖)といいます。もう一方の鎖は、フォークが進む向きとは逆向きに作らなければなりません。そこで細胞は、らせんが少しほどけるたびに新しいプライマーを置き、そこから後ろ向きに短いDNAを合成するという作業を繰り返します。こうして途切れ途切れに作られる鎖がラギング鎖(遅延鎖)で、その一つひとつの断片が岡崎フラグメントです[1]。
つまり、DNA複製は片側が連続、もう片側が不連続という「半不連続複製」で進みます。出芽酵母のゲノム解析では、ゲノムの50%がラギング鎖として岡崎フラグメントの形で複製されると述べられています[3]。ゲノムの半分が、いったん細切れの状態を通ってから完成するということです。この仕組みは細菌からヒトまで共通しており、生物がDNAを複製するための基本原理の一つになっています。臨床の場面でも、複製の途中で生じる「切れ目」がきちんとつながらないと、DNAの切断や遺伝子の変化の原因になりうるため、この仕組みの理解は遺伝性疾患を考えるうえでの土台になります。
2. 発見の歴史 ─ 1968年、日本から生まれた世界共通の用語
1950年代にDNAの二重らせん構造が明らかになったあと、研究者たちは「逆向きに並んだ2本の鎖を、一方向にしか伸ばせない酵素がどうやって同時にコピーしているのか」という問題に直面していました。この謎に答えを出したのが、名古屋大学の岡崎令治(おかざき れいじ)博士と岡崎恒子(おかざき つねこ)博士らの研究グループです。
岡崎夫妻らは、大腸菌などに放射性同位元素で目印を付けたDNAの材料をごく短時間だけ取り込ませ、できたばかりのDNAの大きさを調べました。その結果、新しく合成された直後のDNAは短い断片として存在し、時間がたつと長いDNAに組み込まれていくことを見いだしました。この成果は1968年、「DNA鎖伸長の機構:新生鎖の不連続性の可能性」と題して米国科学アカデミー紀要(PNAS)に発表されています[2]。同じ年のうちに、これらの短い断片は「岡崎フラグメント」と呼ばれるようになり、連続したリーディング鎖と不連続なラギング鎖からなる半不連続複製のモデルが教科書の定説になりました[4]。
その後の研究で、岡崎フラグメントはRNAのプライマーから合成が始まり、このプライマーが取り除かれてから断片同士がつながることがわかりました。細菌でも真核生物でも、断片はRNAプライマーで始まり、プライマーがフラップ(はみ出した一本鎖)として押しのけられ、切り取られたあとに連結されるという基本の流れは共通しています[1]。
一方で、発見の直後から残された疑問もありました。大腸菌でパルス標識の実験をすると、ラギング鎖だけでなくリーディング鎖由来とみられる短い断片も検出され、「リーディング鎖も実は不連続なのではないか」という議論が長く続いていたのです。2019年には、この「50年来の岡崎フラグメント問題」に対し、リーディング鎖は大部分が連続的に合成されているという結論が示されました。ただし、複製フォークの停止と再開などにより、リーディング鎖も完全に途切れないわけではないと考えられています[4]。半世紀を経ても研究が続いていることは、この発見の重みを物語っています。
🩺 院長コラム【教科書の用語の向こうにある研究】
岡崎フラグメントは、高校の生物や医学部の生化学でも扱われるDNA複製の基本概念です。遺伝医学の文献では、免疫不全や小頭症、神経症状を示す遺伝性疾患の原因遺伝子として、岡崎フラグメントの合成や成熟化に関わる因子が報告されています。そのため、この仕組みは基礎生物学だけでなく、遺伝性疾患の病態を理解するうえでも重要です。
複製の途中にできる「切れ目」をどう処理するかは、細胞にとって毎回の分裂で必ず解かなければならない課題です。その処理の一部がうまくいかないだけで、全身の症状として現れることがある。基礎研究の知識は、遺伝子検査の結果を読み解くうえでの重要な手がかりになると考えています。
3. 大腸菌とヒトの違い ─ 断片の長さも道具も異なる
岡崎フラグメントを介した不連続複製の原理は、細菌から真核生物まで共通しています。しかし、断片の長さや使われる酵素には、はっきりとした違いがあります。細菌の岡崎フラグメントは約1,200塩基と長いのに対し、真核生物では約200塩基と短く、ヒトでは1回の細胞分裂の準備のために1,000万個を超える断片を作ってつなぐ必要があります[1]。
なぜこれほど長さが違うのでしょうか。細菌の複製酵素(DNAポリメラーゼIIIホロ酵素)は1秒間に約1,200塩基という速さで鎖を伸ばし、30分ほどで分裂する細菌の増殖速度に見合っています。断片を短くすると連結作業が追いつかなくなる可能性があり、長い断片のほうが効率的だと考えられています。一方、真核生物ではDNAがヌクレオソームに巻き付いた状態で存在しており、断片の長さはこのヌクレオソームの間隔によって決まることが示されています[1]。
🔬 大腸菌とヒト(真核生物)の岡崎フラグメントの比較
| 比較項目 | 大腸菌(原核生物) | ヒト・酵母(真核生物) |
|---|---|---|
| 断片の長さ | 約1,200塩基 | 約200塩基(ヌクレオソーム間隔に依存) |
| プライマーを作る酵素 | DnaGプライマーゼ | DNAポリメラーゼα・プライマーゼ複合体 |
| プライマーの構造 | 短いRNA | RNA(約8〜10塩基)+DNA(約20〜22塩基) |
| 断片を伸ばす酵素 | DNAポリメラーゼIII | DNAポリメラーゼδ |
| スライディングクランプ | βクランプ | PCNA(リング状の三量体) |
| プライマーの除去 | DNAポリメラーゼI(5’→3’分解活性)、RNase H | FEN1、Dna2、RNase H2 |
| 連結する酵素 | DNAリガーゼ | DNAリガーゼI(LIG1) |
※Balakrishnan & Bambara(2013)の記載をもとに作成[1]。
真核生物のラギング鎖では、まずDNAポリメラーゼαとプライマーゼの複合体が、約8〜10塩基のRNAと、それに続く約20〜22塩基のDNAからなる「開始プライマー」を作ります[1]。次に、RFC(複製因子C)と呼ばれる装着役のタンパク質が、リング状のタンパク質PCNAをDNAにはめ込みます。PCNAはDNAの上を滑るように動く「留め具」で、ここにDNAポリメラーゼδが結合して断片を長く伸ばしていきます。
💡 用語解説:プライマーとPCNA(ピーシーエヌエー)
プライマーとは、DNA合成の「書き出し」となる短い核酸のことです。DNAポリメラーゼは何もないところから合成を始められないため、まずプライマーゼという酵素が短いRNAを作ります。PCNA(増殖細胞核抗原)は、ドーナツ形のリングがDNAを取り囲むタンパク質で、ポリメラーゼがDNAから外れずに合成を続けられるよう支える役割を持ちます。PCNAは連結に関わる酵素とも結合し、岡崎フラグメントを仕上げる作業全体の調整役になります[1]。
ここでもう一つ重要なのが、DNAポリメラーゼαには誤りを直す校正機能(3’→5’エキソヌクレアーゼ活性)がないという点です。そのため、プライマーに続く約20塩基は、校正機能を持つDNAポリメラーゼδが作る部分よりも誤りが入りやすいと考えられています[1]。この部分を後から置き換える仕上げの工程は、単につなぐだけでなく、複製の正確さを保つ意味も持っています。なお、プライマーのRNAを分解する酵素RNase Hには1型と2型があり、1型は連続した4個以上のリボヌクレオチドを必要とするのに対し、2型は1個のリボヌクレオチドでも認識できるという違いがあります[1]。1型についてはRNase H1の解説もご覧ください。
4. 岡崎フラグメントをつなぐ仕組み ─ 「成熟化」の3つの経路
合成された岡崎フラグメントは、そのままでは先頭にRNAプライマーが付いた短い断片にすぎません。これを切れ目のない1本の鎖に変える工程を岡崎フラグメント成熟化(Okazaki fragment maturation)と呼びます。成熟化は、①プライマー部分を取り除く、②残ったすき間(ニック)を連結する、という2つの反応からなります。真核生物では、この工程に複数の経路があり、状況に応じて使い分けられています[1]。
💡 用語解説:フラップとニック
フラップとは、二本鎖DNAの一部がはがされて、一本鎖のまま「旗」のように垂れ下がった部分のことです。ニックとは、DNAの片方の鎖で、隣り合うヌクレオチドの間の結合(リン酸ジエステル結合)だけが途切れている状態を指し、塩基が欠けているわけではありません。岡崎フラグメントの成熟化では、プライマーをフラップとして押し出して切り取り、最後に残ったニックをDNAリガーゼでつなぎます。DNA断片を酵素でつなぐ反応はライゲーションとも呼ばれます。
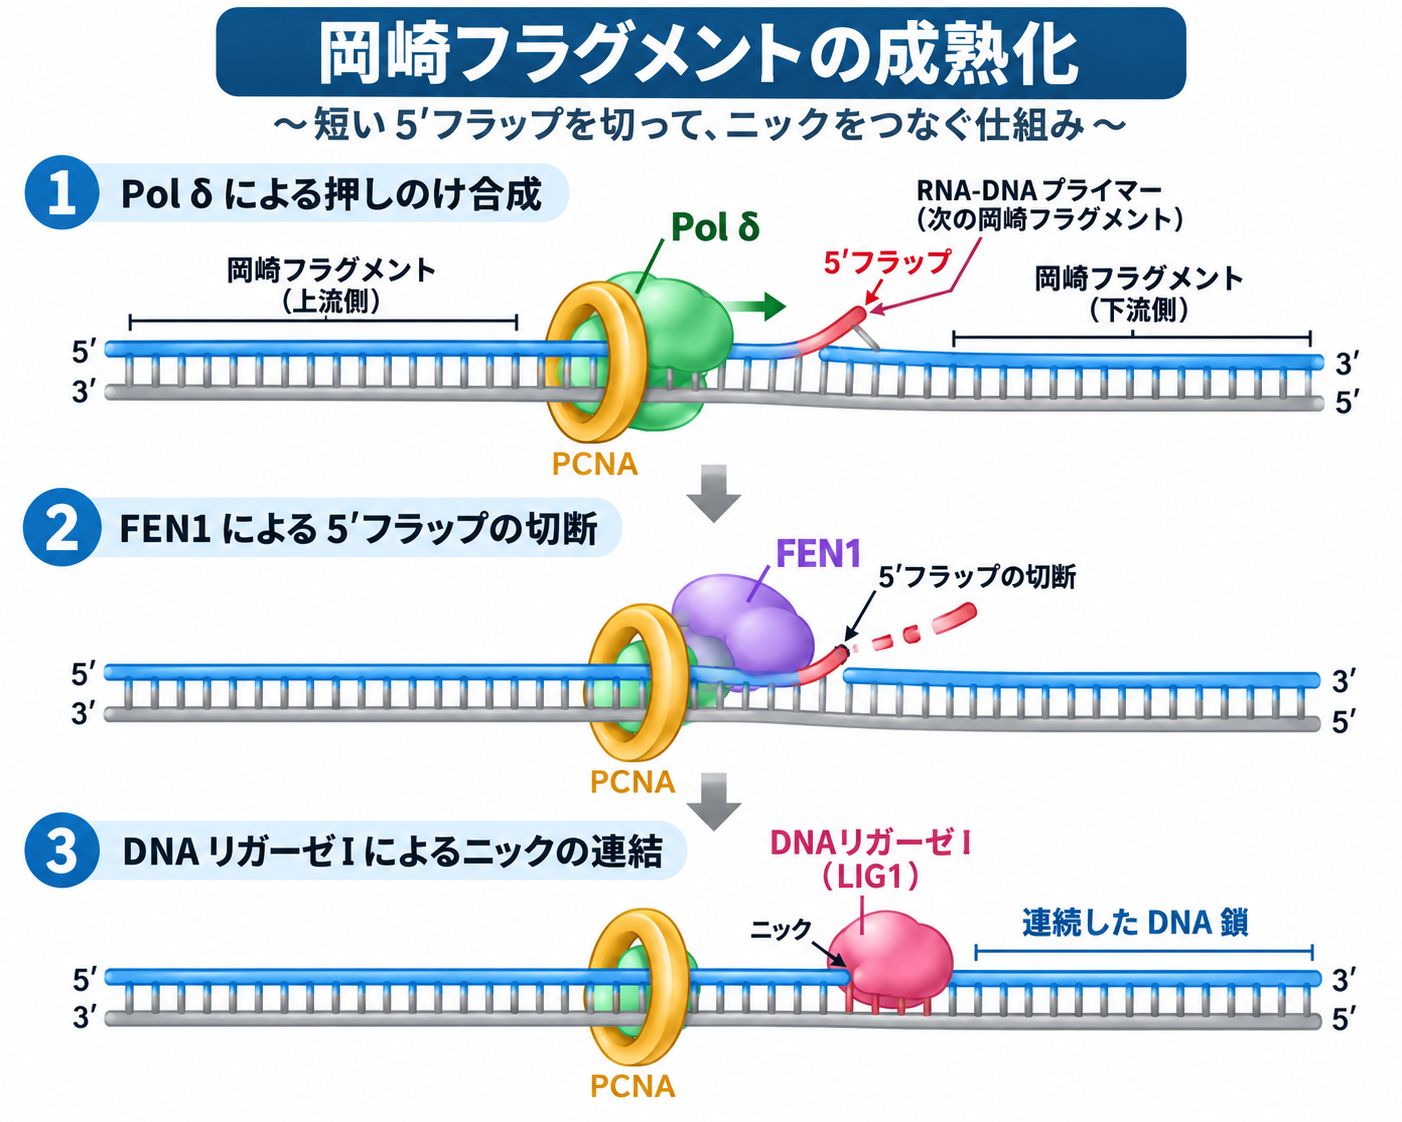
岡崎フラグメントの成熟化では、DNAポリメラーゼδ(Pol δ)が前方の断片に到達すると鎖置換合成によって5′フラップを形成します。FEN1がこのフラップを切断し、最後にDNAリガーゼI(LIG1)が残ったニックを連結することで、切れ目のないDNA鎖が完成します。
🧩 成熟化の基本的な流れ(ショートフラップ経路)
| 段階 | 何が起こるか |
|---|---|
| ① 追いつく | DNAポリメラーゼδが断片を伸ばし、前方にある次の岡崎フラグメントの先頭に到達する |
| ② 押しのける | そのまま合成を続けて、前の断片のプライマー部分を一本鎖のフラップとして押しのける(鎖置換合成) |
| ③ 切り取る | FEN1がフラップの付け根を認識し、フラップを切り取ってニックを作る |
| ④ つなぐ | DNAリガーゼIがニックを連結し、切れ目のない鎖が完成する |
※②と③は数回繰り返され、開始プライマー全体が取り除かれます[1]。
ショートフラップ経路 ─ ポリメラーゼδとFEN1の連携
真核生物で主に使われるのが、DNAポリメラーゼδとFEN1が連携するショートフラップ経路です。ラギング鎖を伸ばすポリメラーゼδは、前方の岡崎フラグメントにぶつかると、その先頭部分を押しのけながら合成を続け、5’側のフラップを作ります。FEN1は、構造を見分けて切るヌクレアーゼ(エンドヌクレアーゼ)で、フラップの付け根に結合し、フラップの自由な末端を自分の活性部位に通してから1回だけ切断します[1]。
酵母のタンパク質で再構成した実験では、多くの場合、ポリメラーゼδの校正機能(3’→5’エキソヌクレアーゼ活性)とFEN1の切断が協調して、10塩基より短いフラップを作っては切ることが示されています。校正機能を失った変異型のポリメラーゼδでは押しのけ合成が強くなることから、校正機能が押しのけ過ぎを抑えていると考えられています[1]。こうして開始プライマーが数回に分けて取り除かれたあと、DNAリガーゼIがニックを封じます。PCNAはFEN1とDNAリガーゼIの両方と結合して、それぞれの働きを高めることが知られています[1]。
ロングフラップ経路 ─ Dna2とRPAによる予備の仕組み
FEN1が一時的に離れてしまうなどして切断が遅れると、フラップはどんどん長くなります。フラップが22塩基を超えるとRPAが安定して結合し、FEN1では処理しにくくなります[1]。このときに働くのが、ヌクレアーゼとヘリカーゼの両方の活性を持つDna2(ディーエヌエーツー)です。Dna2はRPAを外しながら長いフラップを何か所かで切り、RPAが結合できない5〜6塩基程度まで短くします。残った短いフラップはFEN1が切り取り、リガーゼが連結します[1]。
この経路には、Pif1(ピフワン)というヘリカーゼも関係しています。Pif1はポリメラーゼδの押しのけ合成を助けて、長いフラップを作りやすくする側に働きます。酵母では、Pif1を欠くとDna2の欠損による致死性が回避されることから、Pif1があるためにDna2が必要になると解釈されています[1]。また、Exo1(エクソワン)という別のヌクレアーゼも、FEN1の予備として働きうることが報告されています。再構成実験では、大部分のフラップはショートフラップ経路で処理され、ロングフラップ経路が必要になるのは一部と考えられています[1]。
RNase H2の役割とPCNAによる調整
もう一つの手段が、RNA・DNAの混成部分のRNAを分解する酵素RNase H2です。RNase H2は、プライマーが作られるとすぐにRNA部分の分解を始められますが、RNAとDNAの境目にある最後の1個のリボヌクレオチドとDNAの間は切ることができません。そのため、残った部分は押しのけ合成とフラップの切断で処理されます[1]。RNase H2はプライマーの処理だけでなく、複製のときにDNAに誤って取り込まれたリボヌクレオチドを取り除く修復(リボヌクレオチド除去修復)でも中心的な役割を担っており、この働きが後述する病気と深く関わります。
これらの酵素の働きを取りまとめているのがPCNAです。PCNAにはポリメラーゼδ、FEN1、DNAリガーゼIが結合し、酵素を順番に受け渡すことで成熟化が進むと考えられてきました[1]。PCNAやFEN1はリン酸化・アセチル化・ユビキチン化などのユビキチン化を含む翻訳後修飾を受け、それによって結合の強さや働く経路が変わることも報告されています[1]。PCNAのリング上で3つの酵素が同時に働くのか、順番に入れ替わるのかについては、現在も研究が続いています。
5. ヌクレオソームとの関係 ─ 断片の長さを決めるもの
真核生物のDNAは、ヒストンというタンパク質の芯に巻き付いてヌクレオソームという単位を作り、これが連なってクロマチンを形成しています。複製フォークが通過すると、ヌクレオソームはいったん外れますが、新しくできたDNAの上にすぐに組み直されます。
2012年に発表された出芽酵母の研究では、連結される直前の岡崎フラグメントを大量に配列解析した結果、断片の長さがヌクレオソームの繰り返し間隔にそろっていること、そして断片同士のつなぎ目がヌクレオソームとヌクレオソームの間ではなく、ヌクレオソームの中心付近に集まることが示されました[3]。さらに、クロマチンの組み立てを妨げたり、ラギング鎖のポリメラーゼの働きを変えたりすると、断片の長さや分布が変わりました[3]。これは、複製フォークの直後に組み立てられた新しいヌクレオソームが、ポリメラーゼδの押しのけ合成を止める「壁」として働き、断片の終わりを決めていることを示唆しています。
💡 用語解説:エピジェネティクスとヒストンの受け渡し
エピジェネティクスとは、DNAの配列を変えずに、遺伝子のオン・オフの状態を細胞分裂後も引き継ぐ仕組みのことです。その情報の多くはヒストンに付いた化学的な目印(修飾)として保存されています。複製のたびに親のヒストンを2本の新しい鎖へ偏りなく分配しないと、遺伝子の使われ方の記憶が崩れてしまう可能性があります。
岡崎フラグメントの合成は、このエピジェネティックな記憶の受け継ぎとも関わっています。酵母などの研究から、親のヒストンH3-H4をリーディング鎖へ受け渡すのはポリメラーゼεのサブユニット(Dpb3/Dpb4、ヒトではPOLE3/POLE4)であり、ラギング鎖への受け渡しにはヘリカーゼの構成要素Mcm2(エムシーエムツー)が関わることが示されています[5]。さらに、ラギング鎖側では、ポリメラーゼαやポリメラーゼδのサブユニット(Pol32)もヒストンの受け渡しに関与することが報告されました[6]。岡崎フラグメントを作る装置が、DNAだけでなくクロマチンの状態の複製にも関わっているということです。この分野は研究が進行中であり、ヒトの病気との直接の関係はまだ十分にわかっていません。
なお、エカルディ・グティエール症候群の原因遺伝子の中には、複製に合わせて必要になるヒストンの合成に関わるLSM11やRNU7-1も含まれています[7]。複製とクロマチンの組み立てが密接に結びついていることは、病気の側からも裏づけられつつあります。
6. テロメアの末端複製問題 ─ ラギング鎖の「最後の断片」
岡崎フラグメントの仕組みからは、もう一つの有名な問題が導かれます。それが末端複製問題です。ヒトの染色体は直線状で、その両端にはテロメアと呼ばれる繰り返し配列があります。
ラギング鎖では、プライマーを置いてから後ろ向きに合成する作業を繰り返しますが、染色体のいちばん端では、染色体末端側の最後のRNAプライマーを取り除いたあと、その5’末端側のすき間を埋めるための上流側3’OH末端が存在しないため、複製のたびに鎖の端が少しずつ短くなってしまいます。これが末端複製問題の基本的な考え方です。
生殖細胞や一部の幹細胞などでは、テロメラーゼという逆転写酵素が自分の持つRNAを鋳型にしてテロメアの配列を付け足し、この短縮を補っています。一方、多くの体細胞ではテロメラーゼの働きが弱く、分裂を重ねるとテロメアが短くなり、やがて分裂が止まるとされています。テロメアの維持に関わる遺伝子の変化は、先天性角化不全症やテロメア関連の肺線維症などの遺伝性疾患の原因にもなります。末端複製問題は、岡崎フラグメントによる不連続複製が直線状の染色体にもたらす宿命ともいえる現象です。
7. つなぎ合わせに失敗すると何が起こるか
ヒトの細胞では、1回の分裂のたびに1,000万個を超える岡崎フラグメントを作ってつなぐ必要があります[1]。その一部でも処理が遅れたり失敗したりすると、DNAには一本鎖の切れ目やすき間が残ります。これが複製フォークの進行を妨げる複製ストレスの原因となり、次の複製でフォークが崩れれば二本鎖切断につながることもあります。
長いフラップとリピート配列の不安定化
FEN1が働かず長いフラップが残ると、フラップは折れ曲がってヘアピンのような二次構造を作ることがあります。こうした構造はFEN1でもDna2でも切りにくく、処理が難しくなります[1]。特に、CAG/CTGのような3塩基の繰り返し配列は二次構造を作りやすい配列です。1998年の出芽酵母の研究では、FEN1に相当する遺伝子RAD27を欠損させると、CTG繰り返し配列が長さ依存的に不安定になり、伸長の頻度が大きく増えることが示されました[8]。繰り返し配列の伸長は、ハンチントン病や筋強直性ジストロフィーなどのリピート伸長病の原因となる変化であり、岡崎フラグメントの処理はその成り立ちを考える手がかりの一つとされています。ただし、ヒトの各疾患で実際にどの経路がどの程度関与しているかは疾患ごとに異なり、酵母の結果をそのまま当てはめることはできません。
複製に由来する構造変化とミスマッチ修復
複製フォークが止まったり壊れたりすると、別の場所の似た配列を鋳型にして合成を再開してしまうことがあり、これが微小な重複や複雑な構造変化の原因になると考えられています。こうした複製に由来するコピー数変化の考え方は、FoSTeS/MMBIRとして知られています。また、ラギング鎖に残る切れ目は、複製の誤りを正すミスマッチ修復が「どちらの鎖が新しい鎖か」を見分ける手がかりの一つとして利用されると考えられています。ミスマッチ修復の異常はリンチ症候群などと関わる仕組みです。岡崎フラグメントの処理は、こうしたゲノムを守る複数の仕組みと互いに影響しあっています。
🩺 院長コラム【「複製の後始末」という視点】
遺伝子の病気というと、特定のタンパク質が作れなくなることを思い浮かべる方が多いと思います。しかし岡崎フラグメントの仕組みを知ると、DNAをコピーした後の「後始末」がうまくいかないことも病気の原因になりうることがわかります。切れ目が残る、余分な部分が残る、RNAの断片がDNAに残る。どれも小さな異常ですが、分裂のたびに積み重なれば影響は大きくなります。
遺伝性腫瘍に関わるDNA修復遺伝子も、同じ「ゲノムを守る仕組み」の一部です。複製と修復は相互に密接に関係しているため、ひと続きの仕組みとして理解することが、遺伝子検査の結果を解釈するうえで重要です。
8. 岡崎フラグメントの処理と関係する遺伝性疾患
岡崎フラグメントを作り、つなぐ酵素の多くは、生きていくうえで欠かせません。そのため、これらの遺伝子の働きが完全に失われると生存できないと考えられており、ヒトの病気として見つかるのは、働きが一部だけ低下する変化(低機能型の変化)である場合が多いとされています。ここでは代表的な疾患を整理します。
エカルディ・グティエール症候群とRNase H2
エカルディ・グティエール症候群(Aicardi-Goutières症候群、AGS)は、脳を中心に障害が起こる炎症性の遺伝性疾患です。アイカルディ・ゴーティエ症候群と表記されることもあります。2006年、RNase H2を構成する3つのサブユニットの遺伝子(RNASEH2A・RNASEH2B・RNASEH2C)のいずれかの変化でAGSが起こることが報告され、その臨床像や免疫の所見が先天性のウイルス感染症と似ていることが示されました[9]。
ただし、AGSの原因はRNase H2だけではありません。OMIMでは、TREX1(AGS1)、RNASEH2B(AGS2)、RNASEH2C(AGS3)、RNASEH2A(AGS4)、SAMHD1(AGS5)、ADAR(AGS6)、IFIH1(AGS7)、LSM11(AGS8)、RNU7-1(AGS9)の9つの型が整理されています[7]。多くは常染色体劣性(潜性)遺伝ですが、TREX1やADARの特定の変化、IFIH1の変化では常染色体優性(顕性)遺伝の形をとります[10]。頭部CTでの大脳基底核や白質の石灰化、MRIでの白質の変化が特徴で、経過の中で最大4割ほどの方に手足の指や耳のしもやけ様の皮膚症状が現れるとされています[10]。
💡 用語解説:I型インターフェロン異常症とcGAS-STING経路
インターフェロンは、ウイルスに感染したときに体が作る防御のためのタンパク質です。AGSでは、ウイルスがいないのにこの防御反応が続いてしまうため、「I型インターフェロン異常症(インターフェロノパチー)」の代表的な病気とされています。細胞の中でDNAの異物を感知する仕組みの一つがcGAS-STING経路で、本来は核の中にあるはずの自分のDNAが細胞質に出てくると、これをウイルス由来と誤認して炎症反応が起こります。
では、なぜRNase H2の働きが落ちると炎症が起こるのでしょうか。RNase H2はプライマーの処理にも関わりますが、病態の中心と考えられているのは、複製の際にDNAに誤って取り込まれたリボヌクレオチドの除去です。RNase H2を完全に欠くマウスの胎児では、ゲノムDNAに1細胞あたり100万個を超えるリボヌクレオチドが蓄積し、DNA損傷が生じて発生が止まることが報告されています[11]。さらに、RNase H2が欠損した細胞ではゲノムの不安定化によって小核(微小核)が生じ、この小核の膜が破れると、細胞質のDNAセンサーcGASが小核の中のDNAに集まって炎症反応を起こすことが示されました[12]。RNA・DNAの混成分子(Rループを含む)の関与も議論されていますが、どの核酸がどの程度炎症を引き起こすのかは、現在も研究が続いている段階です。
DNAリガーゼI、DNA2、PRIM1、PCNAなどの変化
AGS以外にも、岡崎フラグメントの合成や成熟化に関わる遺伝子の変化で起こる病気が報告されています。いずれも報告数は限られており、希少な疾患です。
🧬 岡崎フラグメントの合成・成熟化に関わる遺伝子と報告されている疾患
| 遺伝子(役割) | 報告されている疾患・特徴 |
|---|---|
| LIG1(DNAリガーゼI:ニックの連結) | 両アレルの変化による免疫不全。3家系5人の報告で、低γグロブリン血症、リンパ球減少、赤血球の大球性変化がみられ、重症度は軽い抗体欠乏から造血幹細胞移植を要する複合免疫不全まで幅があった[13] |
| DNA2(Dna2:長いフラップの処理) | 両アレルの変化による小頭性原発性小人症。血縁のない4人で両アレル性の低機能型変化が同定された[14] |
| PRIM1(プライマーゼ:RNAプライマーの合成) | 両アレルの変化による原発性小人症。5人で報告され、患者細胞では複製ストレスとS期の延長がみられた[15] |
| POLA1・POLD1など(複製ポリメラーゼ) | POLA1、POLD1、POLD2、POLE、POLE2の変化が、免疫不全を伴うことの多い原発性小人症に関与すると報告されている[15] |
| PCNA(スライディングクランプ) | ホモ接合のp.Ser228Ileによる疾患(毛細血管拡張性運動失調症様疾患2型)。低身長、難聴、早老、毛細血管拡張、神経変性、光線過敏が報告され、FEN1やDNAリガーゼIとの結合が変化していた[16] |
※いずれも報告例は限られており、症状の幅や頻度については現時点では明確なデータが十分に示されていません。
これらの疾患に共通するのは、成長の障害(小頭症や低身長)と、免疫や神経の症状が組み合わさる傾向があることです。細胞分裂を盛んに繰り返す胎児期の成長や、増殖の速いリンパ球では、複製の効率がわずかに落ちるだけでも影響が出やすいと考えられています。PCNAの変化の例では、DNA複製そのものには目立った影響がみられず、DNA修復の異常が主体であったことも報告されています[16]。同じ複製の装置でも、どの働きが損なわれるかによって症状が異なるということです。原発性小人症の遺伝学的な背景については、原発性小人症の解説もあわせてご覧ください。
9. がん治療研究との接点 ─ PARP1とFEN1
岡崎フラグメントの処理は、がん治療の研究でも注目されています。その入口となったのが、DNAの切れ目を感知する酵素PARP1に関する発見です。
PARP1は「つながっていない岡崎フラグメント」を感知する
PARP1は、DNAの切れ目に結合してポリADPリボースという鎖を作り、修復タンパク質を呼び寄せる酵素です。2018年の研究では、正常なS期(DNA複製の時期)の細胞で見られるポリADPリボースのほとんどが複製の場所にあり、DNAリガーゼIやFEN1の働きを妨げると、その量が10倍以上に増えることが示されました[17]。この結果から、PARP1は連結されずに残った岡崎フラグメントを感知し、一本鎖切断の修復に関わるXRCC1を呼び寄せて処理を助ける「予備の仕組み」として働くと考えられています[17]。
💡 用語解説:合成致死とHRD
合成致死とは、2つの遺伝子のうち片方だけが働かなくても細胞は生き延びるのに、両方が同時に働かなくなると細胞が死ぬ関係のことです。BRCA1やBRCA2の変化によって相同組換え修復がうまく働かない状態をHRD(相同組換え修復欠損)といい、HRDのがん細胞はPARP阻害薬に弱いことが知られています。
PARP阻害薬がBRCA変化のあるがん細胞に効く理由は、長く「修復されない切れ目が二本鎖切断になるため」と説明されてきました。2021年の研究では、それに加えて、複製の際に生じる一本鎖のすき間(複製ギャップ)が感受性を決める重要な要因であると報告されています[18]。この研究では、BRCA1を欠く細胞で岡崎フラグメントの処理に異常があり、PARP1・XRCC1・DNAリガーゼIIIによる予備の連結経路が働くかどうかが、薬への反応を左右することも示されました[18]。PARP阻害薬の効き方を理解するうえで、ラギング鎖の処理が新たな視点を加えたことになります。
FEN1阻害薬の研究 ─ 前臨床段階
FEN1そのものを薬で止める研究も進んでいます。2025年に報告されたMSC778は、FEN1の働きを強く、選択的に抑える低分子化合物で、細胞内でFEN1に結合してクロマチンへの結合を強め、BRCAが欠損した細胞を選択的に死滅させることが示されました[19]。がん細胞株のスクリーニングではユーイング肉腫の細胞が感受性を示し、その感受性はSLFN11という遺伝子の発現に左右されていました。また、PARP1、USP1、PARG、ATRといったDNA損傷応答に関わる因子との組み合わせで、相乗的に細胞を殺す効果も報告されています[19]。
ただし、これらはいずれも細胞や動物を用いた前臨床の研究結果であり、FEN1阻害薬が承認された治療薬として使われているわけではありません。ヒトでの有効性や安全性は、現時点では明確なデータが示されていません。ここでは、岡崎フラグメントの処理ががん研究の標的にもなっているという一例として紹介しています。
10. 遺伝診療とのつながり
岡崎フラグメントそのものを検査することは、日常の診療ではありません。しかし、この仕組みに関わる遺伝子は、遺伝子検査の結果を読み解くときにしばしば登場します。遺伝形式の面では、ここで紹介した疾患の多くは常染色体劣性(潜性)遺伝であり、両親がそれぞれ1つずつ変化を持つ保因者である場合に、お子さんに発症する可能性があります。一方で、AGSの一部のように常染色体優性(顕性)遺伝の形をとるものもあります[10]。遺伝形式が違えば、ご家族の再発率の考え方も変わります。
遺伝子診断の面では、小頭症や成長の障害、免疫不全、原因のわからない脳の炎症などがある場合に、全エクソーム検査(WES)や染色体不安定症候群の遺伝子パネル検査などで、複製に関わる遺伝子の変化が見つかることがあります。これらの遺伝子には細胞の生存や増殖に重要なものが多く、疾患で同定される変化には機能を部分的に低下させる低機能型(hypomorphic)のものも多いため、病気との関係を判断するには、変化の種類や機能への影響を慎重に評価する必要があります。臨床的意義が確定しないバリアント(VUS)として報告されることもあります。
遺伝カウンセリングの面では、検査で何がわかり何がわからないのか、見つかった変化がご本人やご家族にとってどのような意味を持つのかを整理することが重要になります。当院では、臨床遺伝専門医が遺伝子検査の前後に遺伝カウンセリングを行い、正確な診断に基づいて次の選択肢を検討できるよう情報を提供しています。岡崎フラグメントの研究そのものは基礎研究が中心の分野ですが、関連する遺伝子の知識は、検査結果の解釈に直接関わる基盤になります。
誤解①「DNAは両方の鎖とも連続的に作られる」
DNAポリメラーゼは5’→3’方向にしか合成できないため、片方のラギング鎖は短い断片に分けて作られます。これが岡崎フラグメントです。
誤解②「断片はただつなげば終わり」
先頭のRNAプライマーと、校正機能のないポリメラーゼαが作った部分を取り除いてから連結します。この工程は複製の正確さを保つ意味も持ちます。
誤解③「基礎研究の話で病気とは無関係」
RNase H2、LIG1、DNA2、PRIM1、PCNAなどの変化は、エカルディ・グティエール症候群や原発性小人症、免疫不全と関連すると報告されています。
誤解④「FEN1阻害薬はすでに治療に使われている」
FEN1阻害薬は細胞や動物での前臨床研究の段階です。承認された治療薬ではありません。
まとめ ─ 途切れながら作り、正確につなぐ
岡崎フラグメントは、DNAポリメラーゼが一方向にしか鎖を伸ばせないという制約のもとで、逆向きの鎖を複製するために生まれた仕組みです。1968年に岡崎夫妻らが報告して以来[2]、プライマーの除去と連結を担う酵素、ヌクレオソームとの関係[3]、ヒストンの受け渡しなど、研究は大きく広がってきました。ヒトでは1回の分裂で1,000万個を超える断片がつながれており[1]、その処理のわずかな乱れが、エカルディ・グティエール症候群[9]や原発性小人症、免疫不全などの遺伝性疾患につながることがあります。PARP1による感知の仕組み[17]やFEN1阻害薬の研究のように、がん治療の研究とも接点を持っています。教科書の用語として知られる岡崎フラグメントは、ゲノムの安定性と遺伝性疾患を理解するための基礎の一つです。
よくある質問(FAQ)
Q1. 岡崎フラグメントとは何ですか?
DNA複製のときに、ラギング鎖(遅れて作られる側の鎖)で不連続に作られる短いDNA断片のことです。DNAポリメラーゼは5’→3’方向にしか鎖を伸ばせないため、ほどける向きと逆向きに作る鎖は、区切りながら合成されます。断片の先頭にはRNAプライマーがあり、これを取り除いてDNAリガーゼで連結することで1本の鎖になります。
Q2. なぜ「岡崎」という名前がついているのですか?
1968年に、名古屋大学の岡崎令治博士と岡崎恒子博士らが、新しく合成されたDNAが短い断片として存在することを報告したためです。発見者の名前から「岡崎フラグメント」と呼ばれるようになり、現在も世界共通の用語として使われています。
Q3. 岡崎フラグメントの長さはどのくらいですか?
細菌では約1,200塩基、ヒトなどの真核生物では約200塩基とされています。真核生物では断片の長さがヌクレオソームの間隔によって決まることが示されており、ヒトでは1回の細胞分裂で1,000万個を超える断片が作られ、つなぎ合わされます。
Q4. 岡崎フラグメントのつなぎ合わせに関わる酵素は何ですか?
ヒトでは主に、断片を伸ばすDNAポリメラーゼδ、はみ出したプライマー部分(フラップ)を切り取るFEN1、長いフラップを処理するDna2、RNA部分を分解するRNase H2、すき間を連結するDNAリガーゼI、これらの働きを調整するPCNAが関わります。
Q5. 岡崎フラグメントは病気と関係がありますか?
関係する場合があります。RNase H2の遺伝子の変化はエカルディ・グティエール症候群の原因の一つとなり、DNAリガーゼI(LIG1)の変化は免疫不全、DNA2やPRIM1の変化は原発性小人症、PCNAの変化は毛細血管拡張性運動失調症様疾患2型と関連すると報告されています。いずれも報告数は限られた希少な疾患です。
Q6. 岡崎フラグメントとPARP阻害薬にはどんな関係がありますか?
PARP1は、連結されずに残った岡崎フラグメントを感知して修復を助けることが報告されています。BRCA1などの変化があるがん細胞では、ラギング鎖の処理の異常によって一本鎖のすき間(複製ギャップ)がたまりやすく、これがPARP阻害薬への感受性に関わると考えられています。なお、FEN1阻害薬は前臨床研究の段階で、承認された治療薬ではありません。
🏥 遺伝子検査・遺伝カウンセリングのご案内
複製やDNA修復に関わる遺伝子を含む遺伝性疾患の検査について、
臨床遺伝専門医が検査の前後に遺伝カウンセリングを行い、
正確な診断に基づいて次の選択肢を整理します。
参考文献
- [1] Balakrishnan L, Bambara RA. Okazaki Fragment Metabolism. Cold Spring Harb Perspect Biol. 2013;5(2):a010173. doi:10.1101/cshperspect.a010173. [PMC3552508]
- [2] Mechanism of DNA chain growth. I. Possible discontinuity and unusual secondary structure of newly synthesized chains. Proc Natl Acad Sci U S A. 1968. [PMC224714]
- [3] Intrinsic coupling of lagging-strand synthesis to chromatin assembly. Nature. 2012. [PubMed 22419157]
- [4] Burgers PM. Solution to the 50-year-old Okazaki-fragment problem. Proc Natl Acad Sci U S A. 2019;116(9):3358-3360. doi:10.1073/pnas.1900372116. [PNAS]
- [5] Coordination of histone chaperones for parental histone segregation and epigenetic inheritance. Genes Dev. [PMC10982699]
- [6] DNA polymerase delta governs parental histone transfer to DNA replication lagging strand. Proc Natl Acad Sci U S A. [PNAS]
- [7] AICARDI-GOUTIERES SYNDROME 1; AGS1. OMIM. [OMIM 225750]
- [8] Expansion and length-dependent fragility of CTG repeats in yeast. Science. 1998. [PubMed 9452383]
- [9] Mutations in genes encoding ribonuclease H2 subunits cause Aicardi-Goutières syndrome and mimic congenital viral brain infection. Nat Genet. 2006. [Nature Genetics]
- [10] Aicardi-Goutières Syndrome. GeneReviews. [NBK1475]
- [11] Enzymatic removal of ribonucleotides from DNA is essential for mammalian genome integrity and development. Cell. 2012. [PubMed 22579044]
- [12] cGAS surveillance of micronuclei links genome instability to innate immunity. Nature. 2017. [PubMed 28738408]
- [13] Biallelic mutations in DNA ligase 1 underlie a spectrum of immune deficiencies. J Clin Invest. 2018. [JCI]
- [14] Tarnauskaitė Ž, et al. Biallelic variants in DNA2 cause microcephalic primordial dwarfism. Hum Mutat. 2019;40(8):1063-1070. doi:10.1002/humu.23776. [Human Mutation]
- [15] Parry DA, et al. PRIM1 deficiency causes a distinctive primordial dwarfism syndrome. Genes Dev. 2020;34(21-22):1520-1533. doi:10.1101/gad.340190.120. [PMC7608753]
- [16] Hypomorphic PCNA mutation underlies a human DNA repair disorder. J Clin Invest. 2014. [PMC4071375]
- [17] The Importance of Poly(ADP-Ribose) Polymerase as a Sensor of Unligated Okazaki Fragments during DNA Replication. Mol Cell. 2018. [PMC6060609]
- [18] Replication gaps are a key determinant of PARP inhibitor synthetic lethality with BRCA deficiency. Mol Cell. 2021. [Molecular Cell]
- [19] Mechanistic insights into the monotherapy and combination potential of FEN1 inhibition in cancer therapy. Nucleic Acids Res. [PMC12684391]