

目次
- 1 1. ネオモルフ変異とは ─ 「新しい働き」が生まれる変異
- 2 2. マラーの5分類 ─ ネオモルフはどこに位置するか
- 3 3. 「機能獲得(GOF)」とネオモルフは同じではない
- 4 4. ネオモルフが生じる分子の仕組み
- 5 5. IDH1 R132H ─ 「ネオモルフ≠単なるGOF」を示す教科書的な例
- 6 6. PTEN・CALR・NPM1 ─ ヒトのがんに見るネオモルフ
- 7 7. 融合遺伝子EWS–FLI1 ─ 新しい「DNAの読み方」を作る
- 8 8. ネオモルフをどう見分けるか ─ 検証の考え方
- 9 9. 遺伝診療との接点 ─ バリアント解釈になぜ効くか
- 10 10. よくある誤解
- 11 まとめ ─ 「新しい働き」という視点
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
「遺伝子が変わる」と聞くと、多くの人は「働きが弱くなる」か「働きが強くなる」かのどちらかを思い浮かべます。ところが実際の変異には、そのどちらでもない第三の道があります。野生型(もともとの正常な遺伝子)にはなかったまったく新しい働きを獲得する変異、それがネオモルフ変異(neomorphic variant)です。1932年に遺伝学者マラーが提唱した変異の分類は、いまも分子医学やがんゲノム医療で使われ続けています。この記事では、ネオモルフとは何か、なぜ「機能亢進」とひとくくりにできないのか、そしてバリアント(遺伝子の変化)を読み解く際になぜ大切なのかを、実例をまじえて解説します。
Q. ネオモルフ変異とは何ですか?まず結論だけ知りたいです
A. ネオモルフ変異とは、野生型の遺伝子産物がもっていた正常な機能を単に弱めたり強めたりするのではなく、変異によって「野生型にはなかった新しい働き」(新しい酵素反応・新しい結合相手・新しい細胞内の居場所・新しい発現のしかたなど)が生まれる変異のことです。1932年にマラーが分類した5つの型(アモルフ・ハイポモルフ・ハイパーモルフ・アンチモルフ・ネオモルフ)のひとつで、いわば「量が変わる」のではなく「質が変わる」変異です。がんで有名なIDH1という酵素の変異が、その代表例として知られています。
- ➤意味 → 正常機能の増減ではなく、野生型になかった新しい機能・発現が生まれる変異
- ➤GOFとは別物 → 「機能獲得(GOF)」は量的な増強も含む広い言葉。ネオモルフは「新しい質」に限られる
- ➤代表例 → IDH1 R132H(新しい酵素反応で2HGを産生)、CALR・NPM1の新規C末端、融合遺伝子EWS–FLI1
- ➤臨床での意味 → 「腫瘍抑制遺伝子だから機能低下」と単純に決めつけられない場合がある
- ➤治療との関わり → 正常細胞にはない「新しい病的活性」そのものを薬の標的にできる可能性がある
🧬 ネオモルフ変異の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | ネオモルフ変異/neomorphic variant(neomorphic allele)。「新機能獲得変異」と説明されることもある |
| 定義 | 野生型の遺伝子産物にはない新しい機能または発現様式を生じさせる変異。古典的には、野生型遺伝子のコピー数を増減しても新しい表現型が大きく変わらないことで見分けられた[1] |
| 分類上の位置 | マラーの機能的アレル分類(アモルフ・ハイポモルフ・ハイパーモルフ・アンチモルフ・ネオモルフ)の1つ[1] |
| 典型的な分子機構 | 新しい酵素反応・新しい基質・新しい結合相手・異常な細胞内局在・異所性の発現・融合タンパク質 |
| 代表例 | IDH1 R132H[4]、PTEN A126G[6]、CALR変異[8]、NPM1変異[9]、EWS–FLI1[11] |
| 医療との関わり | がんの発症機構の理解、変異特異的な分子標的薬、バリアント解釈(病的意義の判定)に関わる |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. ネオモルフ変異とは ─ 「新しい働き」が生まれる変異
遺伝子の変異(バリアント)が体に及ぼす影響を考えるとき、多くの人は「働きが弱くなる」か「働きが強くなる」かの二択で想像しがちです。しかし遺伝学には、そのどちらにも当てはまらない型があります。ネオモルフ変異とは、変異によって野生型の遺伝子産物にはなかった、質的に新しい機能や発現のしかたが生まれる変異のことです[1]。
「新しい機能」とは具体的に、新しい酵素反応を始める、これまで結合しなかった相手と結びつく、本来とは違う細胞内の場所で働く、いつもとは違う組織や時期に発現する、といったことを指します。いずれも「もとの働きの量が増えた・減った」では説明できない変化です。この考え方は、いまも遺伝学のデータベースに受け継がれており、たとえばショウジョウバエの遺伝子情報を集めたFlyBaseでは、ネオモルフのアレルを「野生型と比べて新しい機能または発現パターンをもつ産物を作ると推定され、野生型遺伝子のコピーを増減してもその表現型が影響されない」ものと定義しています[1]。要するに、「活性が上がる」のではなく「活性の中身が別のものに変わる」のがネオモルフの本質です。
💡 用語解説:野生型(やせいがた)とアレル
「野生型」とは、集団の中で標準的とされる、正常な機能をもつ遺伝子の型のことです。これに対して、DNAの並びが変化したものが変異型です。同じ遺伝子の座(場所)に入りうる、それぞれの型のことをアレル(対立遺伝子)と呼びます。ネオモルフとは、この「変異型アレル」の性質を、機能の面から分類したときの1つのタイプです。
この分類の出発点となったのが、20世紀を代表する遺伝学者ハーマン・マラー(H. J. Muller)が1932年に発表した古典的な研究です[1]。マラーは、変異が遺伝子の働きにどう影響するかによって、変異を5つの型に整理しました。現代の分子遺伝学では、そこで導入された言葉を、DNA・RNA・タンパク質のレベルの具体的な仕組みに対応させながら使っています。次の章で、その5分類を見ていきましょう。
2. マラーの5分類 ─ ネオモルフはどこに位置するか
マラーの分類は、変異アレルが「野生型の機能に対してどう振る舞うか」で5つに分けられます。この枠組みは、変異が表現型に与える効果を整理する教育的な道具としても現代に受け継がれています[2]。まず全体像を図で見てみましょう。それぞれが機能に与える影響の方向が異なります。
① アモルフ(amorph)=機能が完全に消える
正常な機能が実質的にゼロになる型で、いわゆる機能喪失(ヌル)のことです。遺伝子の全欠失、早い段階での翻訳停止(それに続くナンセンス依存分解=NMDによるmRNAの分解)、酵素の触媒機能の完全消失などが典型です。
② ハイポモルフ(hypomorph)=機能が弱まる
正常な機能は残っていますが、その量や効率が低下している型です。発現量の低下、タンパク質が不安定になる、部分的な触媒能の低下などが原因になります。残った活性の量によって、症状の重さが段階的に変わりやすいのが特徴です。詳しくはハイポモルフ変異の解説もご覧ください。
③ ハイパーモルフ(hypermorph)=同じ機能が過剰になる
野生型と同じ種類の機能が、量的に過剰になる型です。過剰発現、分解の低下、正常なシグナルの恒常的な活性化などが該当します。ここで大切なのは、あくまで「もとと同じ働きが増えている」という点です。
④ アンチモルフ(antimorph)=野生型を邪魔する
変異産物が、正常な野生型産物の働きまで妨害してしまう型です。現代でいうドミナントネガティブ(優性阻害)がこれに対応します。たとえば、機能しない変異タンパク質が正常タンパク質と二量体(ダイマー)を組んで、複合体全体を動かなくしてしまう、といった具合です。
⑤ ネオモルフ(neomorph)=別の機能を新設する
そして本記事の主役、ネオモルフです。上の4つが「正常機能が減る・増える・邪魔される」という、いわば同じ土俵の上での変化だったのに対し、ネオモルフだけは「別の機能をまるごと新しく作る」という、質の異なる変化です。新しい酵素反応、新しい基質、新しい結合、新しい局在、新しいDNA認識、異所性の発現、融合による新しい配列などがこれに当たります。
💡 4分類 vs ネオモルフ ─ ひとことで言うと
アモルフ/ハイポモルフ=正常機能が減る。ハイパーモルフ=正常機能が増える。アンチモルフ=正常機能を邪魔する。そしてネオモルフ=別の機能を作る。この「別の機能を作る」という一点が、ネオモルフを他の4つと決定的に分けています。
🩺 院長コラム【「変異=機能が壊れる」だけではない】
遺伝子の変異と聞くと、「働きが壊れる(弱くなる・なくなる)」ものだとイメージされる方が多いように感じます。もちろん、実際の病的変異の多くは機能喪失型です。しかし、遺伝学の世界にはもっと多彩な変化があり、ネオモルフのように「新しい働きを獲得する」変異も確かに存在します。
同じ遺伝子の変異でも、その「性質」によって意味がまったく変わることがあります。変異の名前や場所だけでなく、それがタンパク質の働きにどう影響するのかまで踏み込んで考えることが重要です。ネオモルフという概念は、遺伝子変異を機能面から読み解く必要性を示しています。
3. 「機能獲得(GOF)」とネオモルフは同じではない
ここで、混同されやすい重要な区別を整理しておきます。論文でよく使われる「機能獲得(gain-of-function、GOF)」という言葉と、ネオモルフは同義ではありません。GOFは「野生型より働きが強い・多い」状態を幅広く指す言葉で、その中には量的な増強も、新しい質の機能も含まれてしまいます。
マラーの分類に照らすと、正常な機能を量的に強めるのはハイパーモルフであり、野生型産物を妨害するドミナントネガティブは原則としてアンチモルフ、そして新しい質の機能を生み出すものがネオモルフです。ところが日本語で「機能亢進変異」とだけ言うと、ハイパーモルフとネオモルフ、場合によってはアンチモルフまで、ひとまとめに混同してしまいます。論文を読むときは、「そのGOFが具体的に何を意味しているのか」を個別に確認する必要があります。
⚠️ 特に混同しやすい ─ ネオモルフとドミナントネガティブ
ドミナントネガティブ(=アンチモルフ)は、変異産物が存在することで正常産物の働きまで下げてしまうものです。一方ネオモルフは、変異産物が別の反応・相互作用・局在・発現を新しく始めるものです。方向がまったく違います。ただし、1つの変異タンパク質が両方の性質を併せもつこともあり、分類は必ずしもきれいに1つには収まりません。
この「切り分けの難しさ」を象徴するのが、がん抑制遺伝子TP53(p53)をめぐる議論です。2004年のOliveらは、生理的な発現量のp53ミスセンス変異をマウスに導入すると、単純な機能喪失(p53ヌル)とは異なる腫瘍のパターンが生じることを示し、変異p53が新機能的な作用をもつことを支持しました[12]。ところが2019年のBoettcherらは、CRISPRで作った同一背景のヒト白血病モデルなどを用いた解析から、少なくとも骨髄系のがんでは、TP53ミスセンス変異が選ばれる主な理由はドミナントネガティブ効果であり、明確な新機能(ネオモルフ的GOF)は検出できなかったと報告しています[13]。つまり「ミスセンスだからネオモルフ」と一般化するのは適切ではなく、変異の種類・細胞の種類・発現量・残った野生型アレルの有無・測定する表現型によって、アンチモルフ的な効果とネオモルフ的な効果のどちらが前面に出るかが変わりうる、というのが現在の慎重な読み方です。
4. ネオモルフが生じる分子の仕組み
ネオモルフは、たった1つの決まった仕組みを指す言葉ではありません。「もとにはなかった新しい生物学的な出力」が生まれさえすれば、そこに至る道すじはさまざまです[3]。代表的なパターンを見ていきましょう。
新しい酵素反応・基質特異性
最も「純粋」なネオモルフです。酵素が、これまでとは違う化学反応を始めたり、別の物質(基質)を扱うようになったりします。後で詳しく述べるIDH1 R132Hや、PTEN A126Gがこの型です。
新しいペプチド配列・ドメイン構成
「新しいドメイン(機能単位)」という言い方には少し注意が必要です。1個のミスセンス変異だけで、まったく新しいドメインが突然できることは通常ありません。より典型的なのは、フレームシフト変異によって新しい末端(C末端)の配列ができたり、大きな構造変化で既存のドメインが新しい組み合わせになったりするケースです。CALRやNPM1がこの型に当たります。
💡 用語解説:ミスセンス変異とフレームシフト変異
ミスセンス変異は、DNAの1文字が変わることで、タンパク質のアミノ酸が1つ別のものに置き換わる変異です。フレームシフト変異は、塩基が挿入・欠失することで、そこから先の「読み枠」がずれてしまい、それ以降のアミノ酸配列がまるごと変わってしまう変異です。フレームシフトでは、まったく新しい末端の配列(新規C末端)ができることがあり、これがネオモルフの入り口になることがあります。
異常な細胞内局在(ミスローカライゼーション)
タンパク質が本来いるべき場所から移動することがあります。ただ機能が失われるだけなら機能喪失ですが、「本来いない場所で新しい働きを始める」とネオモルフになります。NPM1の変異がこの好例です。
新しいタンパク質相互作用
これまで結合しなかった相手と、新しく結びつくようになるパターンです。変異したCALRが受容体MPLと病的に結合する例が、非常に明瞭です。
異所性の発現(発現の場所・時期が変わる)
ネオモルフは、タンパク質の配列そのものが変わらなくても成立します。遺伝子の発現を調整する領域(調節領域)が構造変化を受けることで、本来とは違う場所や時期に遺伝子が発現し、新しい表現型が現れることがあります。ショウジョウバエの古典的な変異(アンテナペディアなど、触角が脚に変わる変異)がこのタイプで、FlyBaseにもネオモルフのアレルとして登録されています[1]。
融合タンパク質
2つの遺伝子がつながって1つになる融合遺伝子は、分子的に見れば新機能獲得の代表的な仕組みです。もとのどちらのタンパク質にもなかった働きを生み出します。EWS–FLI1がこの代表例です。
5. IDH1 R132H ─ 「ネオモルフ≠単なるGOF」を示す教科書的な例
現代の分子医学で最も明瞭なネオモルフの1つが、IDH1(イソクエン酸脱水素酵素1)という酵素のR132H変異です。この例は「ネオモルフは純粋な機能獲得とは違う」ことを、はっきりと教えてくれます。
正常なIDH1は、イソクエン酸をα-ケトグルタル酸に変える反応を担っています。ところがR132H変異では、この正常な反応の能力が低下する一方で、α-ケトグルタル酸をR-2-ヒドロキシグルタル酸(2HG)へと変える、まったく新しい反応を獲得します[4]。つまり同じ1つの変異が、「もとの機能の低下」と「新しい機能の獲得」を同時に示すのです。これは、マラーの分類が必ずしも「1つの変異=1つの型」という排他的な箱ではないことも物語っています。
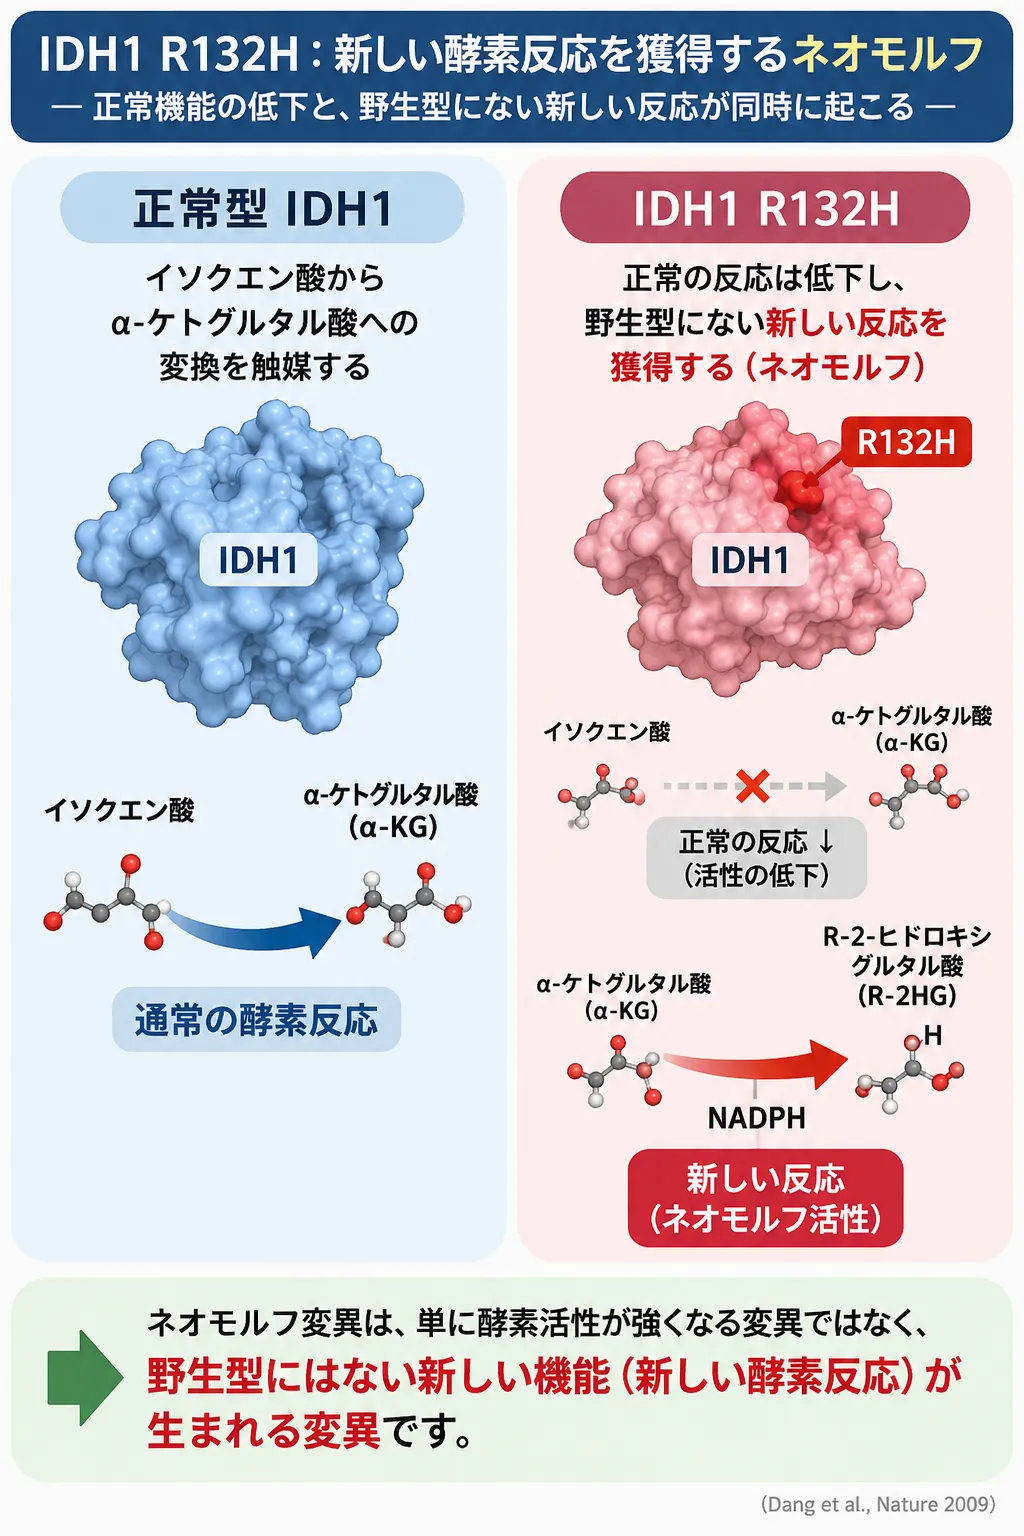
正常型IDH1はイソクエン酸からα-ケトグルタル酸(α-KG)への変換を触媒します。一方、IDH1 R132H変異ではこの正常な酵素活性が低下するとともに、α-KGからR-2-ヒドロキシグルタル酸(R-2HG)を産生する新しい酵素活性を獲得します。これは、単に正常機能が強くなるのではなく、野生型にはない新しい機能が生じる「ネオモルフ」を理解する代表的な例です。
2009年にDangらが発表した研究は、この変異が2HGという物質を新たに産生することを、酵素反応・結晶構造の解析・患者の腫瘍組織中の2HG蓄積という3つの面から結びつけた点で、分子ネオモルフの決定的な例となりました[4]。「酵素活性が上がった」のではなく「酵素反応の中身が別のものに変わった」──この違いこそがネオモルフの核心です。
さらにその下流では、2HGが単なる生化学的な珍現象にとどまらないことも示されました。2010年のFigueroaらの研究では、IDH変異をもつ急性骨髄性白血病(AML)が特徴的なDNAの過剰メチル化を示し、2HGを産生するIDHの導入がエピゲノムの変化を誘導して、TET2という酵素の機能を妨げ、血液細胞の分化を障害することが示されています[5]。新しい酵素反応が、病気の表現型を生む因果の鎖にしっかり組み込まれているわけです。
💡 用語解説:2HG(2-ヒドロキシグルタル酸)とオンコメタボライト
2HGは、変異したIDHが新たに作り出す代謝物です。正常な細胞にはほとんど存在しないため、この物質そのものが、変異細胞を見分ける目印にも、薬の標的にもなります。がんを進める代謝物という意味で「オンコメタボライト」と呼ばれることもあります。
6. PTEN・CALR・NPM1 ─ ヒトのがんに見るネオモルフ
PTEN A126G ─ 「腫瘍抑制遺伝子=機能低下」を崩す例
PTENは通常、細胞増殖を促すPI3K–AKT経路にブレーキをかける腫瘍抑制遺伝子として理解されています。「腫瘍抑制遺伝子の変異=機能が低下する」と考えるのが自然です。しかし、前立腺がんから同定されたA126G変異では話が違いました。2015年のCostaらの研究によれば、この変異は単純なPTENの機能喪失ではなく、酵素としての基質特異性が変化し、新しい酵素活性(PI 5-ホスファターゼ方向の活性)を獲得していました[6]。
これは臨床のゲノム解釈のうえで非常に重要な示唆を与えます。遺伝子を「がん遺伝子だから機能獲得」「腫瘍抑制遺伝子だから機能喪失」と二分するだけでは、個々の変異の本当の分子作用を見誤る可能性がある、ということです。
CALR ─ 「新しい配列 → 新しい結合 → 病気」の明確な鎖
骨髄増殖性腫瘍(MPN)と呼ばれる血液疾患に見られるCALR(カルレティキュリン)変異は、その多くがフレームシフトによって共通の新しいC末端配列を作り出します。2016年のMartyらは、変異CALRを発現させたマウスで血小板の増加や骨髄増殖性の病態を再現し、その発症にMPL(血小板をつくる指令を受け取る受容体)が不可欠であることを示しました[7]。
さらに同年のElfらの研究では、新しいC末端がもつ正の電荷が、MPLとの物理的な結合とがん化に必要であることが、変異を加える実験で示されました[8]。これは「CALR本来のはたらき(分子のお世話役=シャペロン機能)が強くなった」のではなく、病的な受容体との結合という、まったく新しい相互作用を獲得したと考えるのが適切です。「変異 → 新しい配列 → 新しい結合相手 → 新しいシグナル → 病気」という、ネオモルフの因果の鎖が非常にきれいに見える例です。
NPM1 ─ 「局在の変化」と「新しい機能」の境界
NPM1(ヌクレオフォスミン)の変異は、急性骨髄性白血病(AML)で最も多い変異の1つで、遺伝子のエクソン12(従来エクソン11とも表記)に生じます[9]。この変異では、フレームシフトによってタンパク質のC末端に新しい「核外に出るための信号(NES)」が形成され、同時に本来の核小体への局在に必要なトリプトファンという目印が変化します。その結果、NPM1が異常に細胞質へ移動してしまいます[9]。
ただし、「細胞質へ移った=ネオモルフ」と即断はできません。局在が変わるだけなら、既存機能の喪失でも説明できるからです。より強いネオモルフの根拠は、2023年のWangらの研究にあります。変異型NPM1(NPM1c)が、HOXA/BやMEIS1といった白血病を進める遺伝子の活性化領域に結合し、それらの転写を維持する「転写のハブ(増幅装置)」として働く、新しい機能が実証されました[10]。単なる場所替えではなく、移った先で新しい仕事を始めている、というわけです。
7. 融合遺伝子EWS–FLI1 ─ 新しい「DNAの読み方」を作る
ユーイング肉腫という骨・軟部のがんで見られるEWS–FLI1は、EWSR1という遺伝子とFLI1という遺伝子がつながってできる融合タンパク質です。融合遺伝子をすべて厳密な意味でネオモルフのアレルと呼ぶわけではありませんが、分子的には新機能獲得の代表的な仕組みです。
2014年のRiggiらの研究によれば、EWS–FLI1はGGAAという配列の繰り返し(マイクロサテライト)に結合し、通常はほとんど調節能を示さない領域を、開かれたクロマチンへと変えて新たなエンハンサー(遺伝子の発現を強める領域)を作り出す一方で、既存のETS転写因子を押しのけて別のエンハンサーを抑制することが示されました[11]。もとのEWSにもFLI1にもなかった「新しいDNA・クロマチンの読み方のロジック」を生み出しているのです。これはネオモルフ的な分子機能の好例と言えます。
💡 用語解説:エンハンサーとクロマチン
エンハンサーは、遺伝子の発現を強めるスイッチのようなDNA領域です。クロマチンは、DNAがタンパク質に巻きついてできた構造で、これが「開く」と遺伝子が読まれやすくなり、「閉じる」と読まれにくくなります。EWS–FLI1は、本来何もないような場所を無理やり開いて新しいスイッチを作る、という新しい働きをしています。がんが本来の調節領域を乗っ取る現象はエンハンサー・ハイジャッキングとも呼ばれます。
8. ネオモルフをどう見分けるか ─ 検証の考え方
ネオモルフを証明するのは、実は簡単ではありません。「変異体が野生型と違う」というだけでは足りず、単純な機能喪失(ヌル)でも、部分的な機能低下でも、過剰な正常機能でも、ドミナントネガティブでも説明できない「新しい機能」があることを示す必要があるからです。
古典的には、遺伝子量(コピー数)を増減しても変異の表現型が大きく変わらないこと(用量テスト)が、ネオモルフを見分ける手がかりでした[1]。現在はこれに加えて、次のような多角的な手法を組み合わせます。
🔬 ネオモルフを見分ける主な検証法
| 手法 | 何を確かめるか |
|---|---|
| 野生型・ヌル・変異体の3者比較 | 変異体だけがもつ、ヌルにはない表現型や分子的な出力を示す |
| 内在性のCRISPRノックイン | 過剰発現による人工的な影響を除き、生理的な発現量でも新機能が再現されるか |
| 酵素反応・代謝物の測定 | 野生型にはない新しい反応産物(例:IDH1の2HG)ができるか |
| 構造解析 | 活性部位や結合面が、新しい基質・相手を許すように変化しているか |
| 局在の可視化+復元実験 | 新しい局在が病態と因果的に結びつくか(局在を戻すと表現型が消えるか) |
| 相互作用の解析 | 変異体だけがもつ新しい結合相手が生じているか(例:CALR–MPL) |
| RNA-seq・ChIP-seq等 | 野生型・ヌルにはない新しい結合部位・発現プログラムが生じているか |
※特に説得力が高いのは、野生型・ヌル・変異体を同じ条件で比較し、変異体だけがもつ新しい反応を、それを壊す操作で表現型ごと消せると示す設計です。
とくに重要なのが、内在性の発現量での検証です。人工的に大量のタンパク質を作らせる強制過剰発現は、通常なら出会わないタンパク質どうしを結合させたり、異常な凝集を起こしたりして、それ自体が「偽の新機能」を作り出してしまうことがあります。だからこそ、候補が見つかった後は、CRISPRによる内在性のノックインや患者由来の細胞、動物モデルで確かめ直すことが望まれます。
近年は、大規模なゲノム解析からネオモルフを予測しようとする試みも進んでいます。2026年にNature Genetics誌で発表されたTagoreらの研究では、転写因子の活性シグネチャーを手がかりに、TCGA(がんゲノムアトラス)の583,089件もの変異イベントを解析し、機能獲得・機能喪失・ネオモルフなどに分類する枠組みを示しました[14]。ただし、こうした計算的な予測は古典的な用量テストそのものではなく、腫瘍組織のネットワークの状況に依存するため、著者ら自身も個別の実験検証の必要性を認めています[14]。
9. 遺伝診療との接点 ─ バリアント解釈になぜ効くか
ネオモルフという概念は、遺伝子検査の結果を読み解く臨床の現場でも大切です。ポイントは、遺伝子ごとの一般的な傾向(遺伝子レベルの機序)と、個々の変異の性質(バリアントレベルの機序)は分けて考える必要がある、ということです。ある遺伝子の病的変異の大多数が機能喪失型であっても、個別のミスセンス変異・フレームシフト・融合がネオモルフである可能性は残ります。PTEN A126Gは、まさにその原則を示す例でした[6]。
また、ネオモルフだからといって必ずしも「優性(顕性)遺伝」を意味するわけではありません。マラーの分類はアレルの機能的な関係を表す枠組みであり、家系における優性・劣性や浸透率とは別の軸です。ただし、新しい機能が1コピーでも十分な作用を生む場合は、結果として優性の表現型を示しやすくなります。
⚠️ 「変異の種類の名前」だけでは機能の方向は決まらない
ACMG/AMPのガイドラインには、機能喪失が既知の疾患機序である遺伝子で、機能を失わせる変異を強めに評価する基準(PVS1)があります。ただし、フレームシフトや翻訳停止(stop-gain)を見ただけで「必ず機能喪失(アモルフ)」と決めつけるのは危険です。3′側(遺伝子の後ろ寄り)のフレームシフトがNMDを逃れて新しいC末端を翻訳すれば、CALRやNPM1のように、かえってネオモルフのタンパク質を作りうるからです。「変異の種類のラベル」だけでは、機能の方向は判断できません。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。ネオモルフのように「機能の向きが単純ではない変異」があるという知見は、検査で見つかった変化をていねいに読み解くうえでの土台になります。なお、ネオモルフそのものは基礎研究・がんゲノム研究が中心の領域であり、日常の診療で直接この分類を検査するわけではありません。ここでは「遺伝子の働きをどう読み解くか」を理解するための考え方として位置づけています。
10. よくある誤解
誤解①「機能亢進変異=すべてネオモルフ」
違います。「機能亢進(GOF)」には、量が増えるハイパーモルフも含まれます。ネオモルフは「量」ではなく「新しい質」の機能が生まれたものに限られます。両者を分けて考えることが大切です。
誤解②「ネオモルフ=ドミナントネガティブ」
別物です。ドミナントネガティブ(アンチモルフ)は正常産物を邪魔するもの、ネオモルフは新しい働きを始めるもの。方向がまったく違います。ただし両方の性質を併せもつ変異もあります。
誤解③「腫瘍抑制遺伝子の変異は必ず機能低下」
そうとは限りません。PTEN A126Gのように、腫瘍抑制遺伝子でも新しい病的活性を獲得することがあります。「がん遺伝子か腫瘍抑制遺伝子か」だけで機能の向きを決めつけると、個別変異を見誤ります。
誤解④「新機能だから治療できない」
むしろ逆のこともあります。正常細胞にはない「新しい病的活性」そのものを標的にできる可能性があります。変異IDHが作る2HGを狙う薬の開発は、その考え方に基づく戦略の一例です。
まとめ ─ 「新しい働き」という視点
ネオモルフ変異は、「遺伝子の変異=機能が壊れる」という素朴なイメージに、静かに見直しを迫る概念です。変異は、機能を弱めたり強めたりするだけでなく、野生型にはなかった新しい機能をまるごと作り出すことがあります[1]。IDH1が新しい酵素反応で2HGを作り[4]、CALRが新しい結合相手を獲得し[8]、NPM1が移った先で新しい転写の仕事を始め[10]、EWS–FLI1が新しいDNAの読み方を作る[11]──いずれも「量の変化」では説明できない出来事です。
臨床の観点から見れば、ネオモルフは「遺伝子の機能を、その名前や変異の種類だけで判断してはいけない」という教訓を与えてくれます。同じ遺伝子の変異でも、その性質によって意味が変わり、治療の考え方も変わりうる。だからこそ、変異を1つずつ、その分子作用まで含めてていねいに読み解くことが、正確な診断とその先の選択につながります。ネオモルフという視点は、これからのゲノム医療において、変異を深く理解するための欠かせない切り口の1つです。
よくある質問(FAQ)
Q1. ネオモルフ変異とは何ですか?
ネオモルフ変異(neomorphic variant)とは、野生型(もともとの正常な遺伝子)の産物がもっていた機能を単に弱めたり強めたりするのではなく、変異によって「野生型にはなかった新しい機能や発現のしかた」が生まれる変異のことです。新しい酵素反応、新しい結合相手、新しい細胞内の居場所、新しい発現パターンなどが該当します。1932年にマラーが提唱した変異の5分類(アモルフ・ハイポモルフ・ハイパーモルフ・アンチモルフ・ネオモルフ)の1つで、「量」の増減ではなく「質的に新しい機能」が生じる変異です。
Q2. 「機能獲得(GOF)」とネオモルフは同じですか?
同じではありません。「機能獲得(GOF)」は「野生型より働きが強い・多い」状態を幅広く指す言葉で、量的に増強するハイパーモルフも、新しい質の機能を作るネオモルフも含んでしまいます。ネオモルフは、そのうち「野生型になかった新しい質の機能」に限られる、より狭い概念です。論文を読むときは、その「GOF」が具体的に何を意味しているのかを個別に確認する必要があります。
Q3. ネオモルフとドミナントネガティブはどう違いますか?
ドミナントネガティブ(マラー分類のアンチモルフに対応)は、変異産物が存在することで正常な野生型産物の働きまで下げてしまうものです。一方ネオモルフは、変異産物が別の反応・結合・局在・発現を新しく始めるものです。方向がまったく違います。ただし、1つの変異タンパク質が両方の性質を併せもつこともあり、分類は必ずしも1つに限定されません。
Q4. ネオモルフ変異の代表例を教えてください。
最も有名なのは、がんに関わるIDH1という酵素のR132H変異です。正常な反応能力が低下する一方で、2HGという物質を作る新しい酵素反応を獲得します。ほかに、酵素の基質特異性が変わるPTEN A126G、新しいC末端で受容体MPLと結合するCALR変異、移った先で新しい転写の仕事を始めるNPM1変異、新しいエンハンサーを作る融合遺伝子EWS–FLI1などが知られています。
Q5. ネオモルフはバリアント解釈でなぜ重要なのですか?
遺伝子ごとの一般的な傾向と、個々の変異の性質は必ずしも一致しないからです。ある遺伝子の病的変異の大多数が機能喪失型であっても、個別の変異がネオモルフである可能性は残ります。とくにフレームシフトや翻訳停止を見ただけで「必ず機能喪失」と決めつけると、CALRやNPM1のように新しいC末端を作ってネオモルフになる例を見落とすおそれがあります。変異の種類のラベルだけで機能の向きを判断しないことが大切です。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] FlyBase Reference Report: Muller, 1932, Further studies on the nature and causes of gene mutations. Proc. 6th Int. Congr. Genet. 1: 213–255. [FlyBase FBrf0002371]
- [2] Henson K, Cooper MM, Klymkowsky MW. Turning randomness into meaning at the molecular level using Muller’s morphs. Biol Open. 2012;1(4):405-410. doi:10.1242/bio.2012031. [PMC3509460]
- [3] The molecular basis of genetic dominance. J Med Genet. 1994. [PubMed 8182727]
- [4] Cancer-associated IDH1 mutations produce 2-hydroxyglutarate. Nature. 2009. [PubMed 19935646]
- [5] Leukemic IDH1 and IDH2 mutations result in a hypermethylation phenotype, disrupt TET2 function, and impair hematopoietic differentiation. Cancer Cell. 2010. [PubMed 21130701]
- [6] Costa HA, Leitner MG, Sos ML, et al. Discovery and functional characterization of a neomorphic PTEN mutation. Proc Natl Acad Sci U S A. 2015;112(45):13976-13981. doi:10.1073/pnas.1422504112. [PubMed 26504226]
- [7] Calreticulin mutants in mice induce an MPL-dependent thrombocytosis with frequent progression to myelofibrosis. Blood. 2016. [PubMed 26608331]
- [8] Mutant Calreticulin Requires Both Its Mutant C-terminus and the Thrombopoietin Receptor for Oncogenic Transformation. Cancer Discov. 2016. [PubMed 26951227]
- [9] Both carboxy-terminus NES motif and mutated tryptophan(s) are crucial for aberrant nuclear export of nucleophosmin leukemic mutants in NPMc+ AML. Blood. 2006. [PubMed 16455950]
- [10] Wang XQD, Fan D, Han Q, et al. Mutant NPM1 Hijacks Transcriptional Hubs to Maintain Pathogenic Gene Programs in Acute Myeloid Leukemia. Cancer Discov. 2023;13(3):724-745. doi:10.1158/2159-8290.CD-22-0424. [PubMed 36455589]
- [11] EWS-FLI1 utilizes divergent chromatin remodeling mechanisms to directly activate or repress enhancer elements in Ewing sarcoma. Cancer Cell. 2014. [PubMed 25453903]
- [12] Mutant p53 gain of function in two mouse models of Li-Fraumeni syndrome. Cell. 2004. [PubMed 15607980]
- [13] A dominant-negative effect drives selection of TP53 missense mutations in myeloid malignancies. Science. 2019. [PubMed 31395785]
- [14] Tagore S, Tsang S, Tangermann C, et al. Pan-cancer inference and validation of hypermorphic, hypomorphic and neomorphic mutations. Nat Genet. 2026;58(2):329-340. doi:10.1038/s41588-025-02482-x. [PubMed 41673304]






