

目次
- 1 1. FREM1遺伝子とは ─ 「土台づくり」と「免疫」の二役
- 2 2. FREM1がつくる「2つのタンパク質」
- 3 3. フレーザー複合体 ─ 3つのタンパク質が支え合う
- 4 4. FREM1が関わるシグナル伝達
- 5 5. 両方のコピーが変わると ─ 常染色体劣性の病気
- 6 6. 片方のコピーが変わると ─ 常染色体優性の三角頭蓋
- 7 7. もう1つの顔 ─ TILRRと免疫・炎症
- 8 8. TILRRとHIV・動脈硬化 ─ 炎症をめぐる研究
- 9 9. がんとの関わり ─ 腫瘍でのFREM1
- 10 10. 遺伝診療とのつながり ─ 診断と検査の考え方
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

FREM1(フレムワン)は、一見すると正反対の2つの役割を1つの遺伝子でこなす、たいへんユニークな遺伝子です。ひとつは、赤ちゃんの体ができあがる過程で、皮膚や腎臓、顔の形づくりを支える「土台づくり」の役割。もうひとつは、体を守る免疫の中で炎症の強さを調節する「スイッチ役」です。この遺伝子に変化が起きると、MOTA症候群やBNAR症候群、三角頭蓋(さんかくとうがい)といった、それぞれ性質の違う病気につながることが分かっています。この記事では、FREM1がどのような遺伝子で、なぜ異なる機能を持つのか、そしてどのような疾患や検査に関わるのかを、現在の医学的知見に基づいて解説します。
Q. FREM1遺伝子とは何ですか?まず結論だけ知りたいです
A. FREM1は、細胞と細胞のあいだを埋める「細胞外マトリックス」というネットワークをつくる大きなタンパク質と、免疫の炎症シグナルを強める小さなタンパク質(TILRR)という、性質の異なる2種類のタンパク質をつくる遺伝子です。前者は赤ちゃんの発生期に皮膚・腎臓・顔などの形づくりを支え、後者は炎症の強さを調整します。両方のコピーに変化が起きると、MOTA症候群・BNAR症候群・先天性の腎尿路の異常などが起こり、片方のコピーだけの変化では三角頭蓋(前頭縫合早期癒合症)のリスクが高まります。
- ➤場所 → 第9染色体の短腕(9p22.3)にある遺伝子
- ➤2つの顔 → 発生を支える「全長型FREM1(QBRICK)」と、免疫を調節する「TILRR」
- ➤土台づくり → FRAS1・FREM2と3つで組んで「フレーザー複合体」をつくり、皮膚や腎臓の形づくりを支える
- ➤両方の変化 → MOTA症候群・BNAR症候群・先天性腎尿路異常(常染色体劣性)
- ➤片方の変化 → 三角頭蓋(前頭縫合早期癒合症・常染色体優性、不完全浸透)
🧬 FREM1遺伝子の基本情報
| 項目 | 内容 |
|---|---|
| 遺伝子名 | FREM1(FRAS1-related extracellular matrix 1/フレムワン) |
| 染色体上の場所 | 第9染色体短腕 9p22.3 |
| 主な産物 | 全長型FREM1(別名QBRICK・キューブリック)と、短いアイソフォームTILRR(ティルアール) |
| はたらき | 発生期の細胞外マトリックス形成と、免疫・炎症シグナルの調節 |
| 関連する主な疾患 | MOTA症候群、BNAR症候群、先天性腎尿路異常(CAKUT)、三角頭蓋(前頭縫合早期癒合症) |
| 遺伝形式 | 両方の変化=常染色体劣性(潜性)/片方の変化=常染色体優性(顕性・不完全浸透) |
※本記事はFREM1の機能と関連疾患について解説するもので、特定の検査を勧めるものではありません。
1. FREM1遺伝子とは ─ 「土台づくり」と「免疫」の二役
FREM1は、ヒトの第9染色体の短腕、9p22.3という場所にある遺伝子です。名前の「FRAS1-related extracellular matrix 1」が示すとおり、細胞と細胞のあいだを埋めて組織の構造を支える細胞外マトリックス(さいぼうがいマトリックス)に関わるタンパク質をつくります。細胞外マトリックスは、いわば細胞たちが並ぶ「土地」と「地盤」のようなもので、赤ちゃんの体ができあがる過程で、どの細胞がどこに配置され、どう積み重なっていくかを物理的に支えています。
FREM1が特別なのは、1つの遺伝子から性質のまったく異なる2種類のタンパク質がつくられる点です。ひとつは、細胞外マトリックスに沈着して発生期の組織の形づくりを支える長い「全長型FREM1」。もうひとつは、免疫の炎症シグナルを増幅する短い「TILRR(ティルアール)」と呼ばれる分子です。同じ遺伝子から、体の「かたちをつくる仕事」と「体を守る仕事」という、まるで別の職業のタンパク質が生まれてくる——これがFREM1の最大の特徴です。
なぜ、1つの遺伝子がこれほど違う仕事を掛け持ちできるのでしょうか。その鍵は、遺伝子の「読み方」を変えることで別々のタンパク質を作り分けられる、という生き物の巧みな仕組みにあります。限られた数の遺伝子から、必要に応じて多様なタンパク質を生み出すこの戦略は、ヒトの体をつくるうえでとても効率的です。FREM1は、その戦略が「発生」と「免疫」というまったく異なる分野にまたがって使われている、めずらしい例だといえます。
この記事では、まず発生期に働く全長型FREM1と、それが関わる病気を見ていき、後半で免疫を調節するTILRRの世界に進みます。同じ遺伝子の話ですが、関わる臓器も、起きる病気も大きく違うので、ふたつを分けて理解すると全体像がつかみやすくなります。読み進めるときは、「いま話しているのは発生の顔なのか、免疫の顔なのか」を意識すると、混乱せずについてこられるはずです。
2. FREM1がつくる「2つのタンパク質」
FREM1遺伝子は、読み取り方(転写の始まる場所や、つなぎ合わせの仕方)によって、大きく2種類のタンパク質をつくり分けます。この読み分けを支えているのがスプライシングという仕組みで、1つの遺伝子から複数の「型」(アイソフォーム)を生み出します。
全長型FREM1(QBRICK)─ 発生の足場
ヒトの全長型FREM1は、2,179個のアミノ酸からなる大きなタンパク質です。細胞の外に分泌され、細胞外マトリックスの一員として働きます。その構造は、いくつもの部品(ドメイン)が数珠つなぎになった、モジュール式の設計になっています。とくに目を引くのが、構造を保つのに欠かせない12回くり返す「CSPGリピート」という部分です。このリピートが12個であることから、トランプのクイーン(12番=Q)とレンガ(BRICK)にちなんで、全長型FREM1にはQBRICK(キューブリック)という愛称が付けられています。
C末端側には、カルシウムと強く結合すると形が大きく変わる「Calx-βドメイン」や、糖鎖と結びついて細胞や周囲のマトリックスへの接着を助ける「C型レクチンドメイン」があります。全長型FREM1は、こうした部品を組み合わせて、発生期の組織のあいだをつなぎ止める「のり」であり「足場」として働きます。
全長型FREM1のはじまり(N末端)には、細胞の外へ運び出すための「行き先ラベル」であるシグナルペプチドが付いています。このラベルがあるおかげで、FREM1は細胞の中で作られたあと、分泌されて細胞外マトリックスへと送り出されます。タンパク質の表面には、糖鎖が付く部位(N結合型・O結合型のグリコシル化部位)が複数あり、これがタンパク質の安定性や、ほかの分子とのくっつきやすさを左右しています。マウスでは全長型FREM1は2,191個のアミノ酸からなり、ヒトの2,179個とよく似た構造をしていることから、この設計が進化の中で大切に保たれてきたことがうかがえます。細胞膜を貫かず、分泌されてマトリックスに沈着するという性質は、FREM1が「膜の受容体」ではなく「土台の建材」として働くことをよく表しています。
TILRR ─ 免疫を強めるスイッチ
もう一方のTILRR(Toll-like/interleukin-1 receptor regulator)は、715個のアミノ酸からなる小さめの糖タンパク質です。FREM1遺伝子の内部にある「隠れた読み取り開始点」から転写されるため、全長型FREM1が持つCSPGリピートの大部分を欠いています。その代わり、受容体と結びつくのに必要なCalx-βドメインとC型レクチンドメインは残しています。この部品の違いが、発生期の足場という役割と、免疫の調節役という役割の分かれ道になっています[6]。
💡 用語解説:アイソフォームとスプライシング
1つの遺伝子は、必要な部分(エクソン)と、いったん捨てられる部分(イントロン)が交互に並んでできています。この並びを切り貼りして、必要な部分だけをつなぎ合わせる作業がスプライシングです。つなぎ方を変えると、同じ遺伝子から少しずつ違うタンパク質(アイソフォーム)がつくれます。FREM1の全長型とTILRRは、まさにこの読み分けで生まれる「兄弟」のような関係です。
TILRRは、全長型FREM1にはない特有のはじまり(N末端の短い配列)を持っています。この目印となる配列があるおかげで、全長型FREM1とTILRRを区別することができ、専用の抗体を使って血液中のTILRRだけを選んで検出する方法の開発にも応用されています。同じ遺伝子から生まれる兄弟でも、「どこから読み始めるか」が違うだけで、こうして見分けがつくようになるのです。
TILRRという型は、生き物の進化のなかで比較的あとから登場したと考えられています。FREM1遺伝子そのものは背骨を持つ動物(脊椎動物)に広く保存されていますが、TILRRの型は、硬骨魚(こうこつぎょ)の枝分かれよりあとの動物、つまりカエルなどの両生類以降の四肢動物で見られるようになったと報告されています[6]。研究では、TILRRに相当するペプチド配列が四肢動物のFREM1には存在する一方、魚のFREM1には見られず、無脊椎動物にはFREM1もTILRRも存在しないことが示されました[6]。免疫のシグナルを細かく微調整するこの共受容体は、進化の過程で、隣り合う非コードDNAがエクソンの配列に取り込まれることで後から付け加えられた、比較的新しい仕組みだと考えられています[6]。
3. フレーザー複合体 ─ 3つのタンパク質が支え合う
発生期の全長型FREM1が力を発揮するのは、単独ではありません。皮膚などの発生過程で、真皮(しんぴ)の側にある間葉系(かんようけい)細胞から分泌されたFREM1は、上皮(じょうひ)の基底膜(きていまく)という薄い膜の下層に沈着します。そこでFREM1は、FRAS1とFREM2という2つの仲間のタンパク質と、3つで組んで「フレーザー複合体(Fraser Complex)」という集まりをつくります。
この3つのタンパク質には、たがいに支え合う「相互安定化」という関係があります。マウスを使った研究では、3つのうちどれか1つの遺伝子が欠けると、複合体全体が崩れ、残りの2つも基底膜にとどまれなくなることが確かめられています[5]。実際、細胞に3つを一緒につくらせると、これらは1つのまとまった複合体(三量体)を形成しました[5]。3人で手をつないで初めて立っていられる、というイメージです。1人が手を離すと、全員が倒れてしまうのです。
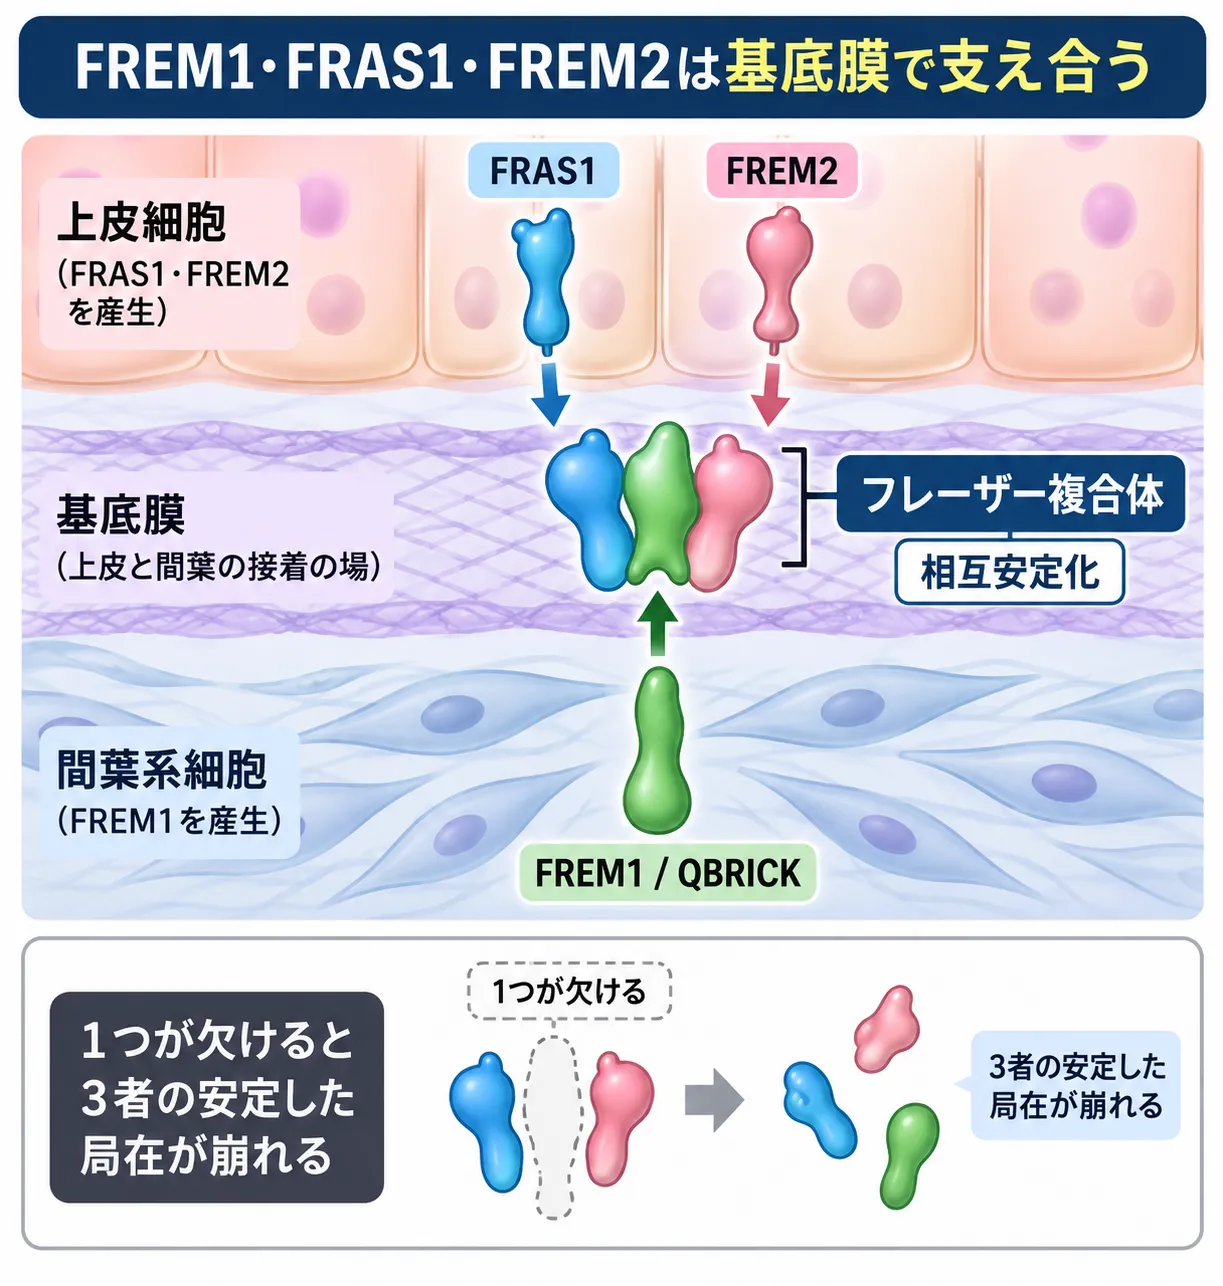
発生期の基底膜では、間葉系細胞から分泌されたFREM1(QBRICK)と、上皮側から供給されるFRAS1・FREM2がフレーザー複合体を形成し、互いの安定した局在を支えます。いずれか1つが欠けると他の構成因子も基底膜に安定して局在できなくなり、複合体全体の機能が損なわれます。
支え合う
3つのタンパク質のうち、FRAS1とFREM2は上皮の細胞の中で作られたあと、細胞内のアダプタータンパク質であるGRIP1の助けを借りて細胞膜へ運ばれ、そこで酵素による切り離し(シェディング)を受けて細胞外マトリックスへ放出されます。この運び役であるGRIP1が働かないマウスでも、フレーザー複合体は崩れることが知られており、複合体が正しく組み上がるには、それぞれのタンパク質が正しい場所へ届けられることが前提になっていることが分かります[5]。
このフレーザー複合体は、上皮の細胞と間葉系の細胞をつなぎ止める「アンカー(いかり)」の役割を果たし、発生期の組織の形づくりに欠かせません。実際、この複合体は上皮と間葉をつなぐ「アンカリング・コード(いかりの綱)」を形づくると考えられています。複合体がうまく働かないと、上皮と間葉の接着が弱まり、胎児期に大きな水ぶくれ(水疱)ができてしまいます。これは、この分野で古くから知られる「bleb(ブレブ)」と呼ばれるマウスの変異体でくわしく観察されてきました[5]。なお、よく似た仲間のFREM3も基底膜に存在しますが、こちらはFREM1たちの複合体とは別に、独立して働いていることが分かっています。
この「3つで支え合う」という性質は、病気を理解するうえでとても重要です。FRAS1やFREM2の重い機能喪失は、まぶたが目をおおう(潜伏眼球)、指がくっつく(合指症)、腎臓がつくられない(腎無発生)などを特徴とするFraser症候群(フレーザー症候群)を引き起こします。FREM1の変化は、これと一部が重なりながらも、少し違った一連の病気を引き起こします。次の章から、そのシグナルの仕組みと病気を見ていきます。
4. FREM1が関わるシグナル伝達
全長型FREM1は、ただ細胞をくっつける「のり」であるだけではありません。細胞どうしがやりとりする信号(シグナル)のネットワークにも組み込まれています。
顔の形づくり(頭蓋顔面の発生)では、ソニック・ヘッジホッグ(Shh)シグナル伝達経路という重要な信号系が、頭蓋神経堤(しんけいてい)細胞という細胞でのFREM1の量を調節しています。マウスの頭蓋神経堤由来間葉を用いた研究では、Shhの下流で働くGLI転写因子がFrem1の転写開始点付近に結合し、Frem1発現を誘導すること、さらにFREM1が頭蓋神経堤細胞の増殖を促進することが示されています[17]。SHH遺伝子の異常が顔の中央の形成に関わることは、この経路の重要性を示しています。
また、FREM1にはRGD配列を介してインテグリンα8β1と相互作用する性質が示されており、発生期の上皮・間葉相互作用に関与すると考えられています。さらに、マウスを用いた研究では、FREM1が成長因子PDGFCと結合し、PDGFRα下流のシグナルの強さと持続時間、TIMP1発現、細胞外マトリックスの再構築を調節することが報告されています[16]。FREM1は、基底膜の構造維持だけでなく、発生期の細胞外シグナルの調節にも関与するタンパク質です。
🩺 院長コラム【「同じ遺伝子」でも起こる病気が違う理由】
遺伝子の話でよく誤解されるのが、「1つの遺伝子=1つの病気」というイメージです。FREM1は、その思い込みをきれいに裏切ってくれます。両方のコピーが変化したときと、片方だけが変化したときとで、まったく違う病気が現れるのです。これは、タンパク質が「どれだけ足りているか」という量の問題が、体の場所ごとに違う結果を生むためです。
臨床遺伝学では、同じ遺伝子でも変化の種類、位置、遺伝形式、タンパク質機能への影響によって臨床的な意味が変わります。したがって、検査結果を「変化があった・なかった」だけで読むのではなく、その変化がどの転写産物やタンパク質機能にどのような影響を与えるのかまで評価することが重要です。
5. 両方のコピーが変わると ─ 常染色体劣性の病気
FREM1の両方のコピー(両アレル)に病的な機能喪失の変化があると、フレーザー複合体が崩れ、発生の異常が現れます。この場合の遺伝の仕方は常染色体劣性(潜性)で、両親がともにその変化を1つずつ持つ「保因者」であるとき、子どもに病気が現れる確率は理論上25%とされています[1]。両アレルの変化で起こる病気には、MOTA症候群・BNAR症候群・FREM1関連の先天性腎尿路異常があり、これらは症状が一部重なる「連続したスペクトラム」を形づくっています[1]。診断は、分子遺伝学的検査によってFREM1の両アレルに病的な変化が確認されることで確定します[1]。
ここで大切なのは、劣性の病気を起こす変化が、多くの場合「タンパク質が作れなくなる」タイプ(機能喪失変化)だという点です。具体的には、途中で読み取りが止まってしまうナンセンス変異、読み枠がずれてしまうフレームシフト変異、つなぎ合わせがうまくいかなくなるスプライス部位変異、あるいは遺伝子の一部がまるごと失われる大きな欠失などです[1]。こうした変化が父由来・母由来の両方に起きると、全長型FREM1がほとんど作れなくなり、フレーザー複合体を組めなくなります。同じ「両アレルの機能喪失」でも、どの臓器に強く影響が出るかによって、次に述べる3つの病気として現れるのです。
💡 用語解説:機能喪失変化とアレル
私たちは1つの遺伝子を、父親由来・母親由来で2つずつ持っています。この1つ1つを「アレル」と呼びます。ナンセンス変異やフレームシフト変異、スプライス部位変異などによってタンパク質が正しく作れなくなることを「機能喪失」といいます。父由来・母由来の2つとも機能喪失になる(両アレル性の変化)と、常染色体劣性の病気が現れます。2つの異なる変化が父母それぞれから伝わる場合は複合ヘテロ接合と呼ばれます。
🧬 FREM1の両アレル変化で起こる主な病気
| 疾患名 | 目の症状 | 顔・鼻の症状 | 腎・尿路の症状 |
|---|---|---|---|
| MOTA症候群 | 高頻度・重度(上まぶたの欠損、小眼球症、潜伏眼球) | くさび状に伸びる前髪の生え際、両眼開離、鼻尖裂 | まれ |
| BNAR症候群 | 通常は見られない | 幅広い鼻尖・正中鼻裂(鼻先が割れる) | 高頻度(腎無発生・腎異形成) |
| FREM1関連CAKUT | 見られない | 見られない | 中心的な特徴(膀胱尿管逆流・腎低形成) |
MOTA症候群(マニトバ眼毛肛門症候群)
MOTA症候群(Manitoba oculotrichoanal syndrome、OMIM 248450)は、カナダ・マニトバ州のオジ・クリー族で最初に報告された、とてもまれな症候群です[3]。目の著しい異常(上まぶたの欠損、小眼球症、無眼球症、潜伏眼球)を特徴とし、患側の目に向かってくさび状に伸びる異常な前髪の生え際や、眉毛の欠損、両眼開離、鼻先が割れる鼻尖裂といった顔の特徴が目立ちます[1]。おなかの壁の異常(臍帯ヘルニア)や肛門の狭窄が見られることもありますが、知能や運動の発達は通常は保たれます[1]。オジ・クリー族では、エクソン8から23にまたがる大きな欠失が、集団に受け継がれてきた「創始者変異」として高い頻度で見つかっています[1]。
BNAR症候群
BNAR症候群(bifid nose, renal agenesis, and anorectal malformations、OMIM 608980)は、MOTA症候群と多くの症状を共有しますが、最大の違いは、MOTAで目立つ重い目の異常が通常は見られないことです[2]。主な特徴は、正中鼻裂(鼻先の陥凹や幅広い鼻先)、肛門の狭窄や前方への偏り、そして腎臓の奇形(腎無発生、腎異形成など)です[1]。FREM1がBNAR症候群の原因になることは、2009年に初めて報告されました[2]。
FREM1関連CAKUT(先天性腎尿路異常)
一部の方では、顔や目の異常を伴わず、腎臓・尿路だけの先天性腎尿路異常(CAKUT)だけが現れることがあります[1]。腎臓の発生初期に、FREM1は尿管芽(にょうかんが)と後腎間葉(こうじんかんよう)という2つの組織の精密なやりとりに欠かせず、このプロセスが妨げられると、膀胱尿管逆流や腎低形成、腎無発生といったさまざまな泌尿器の奇形が起こります[1]。
先天性横隔膜ヘルニア(CDH)とのつながり
FREM1の両アレル性機能不全と先天性横隔膜ヘルニア(CDH)との関連も報告されています。ヒトでは複合ヘテロ接合性FREM1変異を持つ孤立性CDHの症例が報告され、マウスモデルでもFrem1欠損により横隔膜形成異常が示されています[7]。マウスの研究では、FREM1が発育中の横隔膜の前部に現れ、欠損するとその場所の細胞増殖が低下することが確かめられました[7]。さらにFREM1は、肺の分かれ方の形成では転写因子GATA4と、腎臓の発生では細胞外マトリックスのタンパク質SLIT3と、遺伝的に協力し合う関係(遺伝的相互作用)を示すことが証明されています[8]。FREM1が、ただ構造を保つだけでなく、GATA4のような転写因子が担うシグナルの経路のなかで重要な働き手になっていることを示す発見です[8]。
6. 片方のコピーが変わると ─ 常染色体優性の三角頭蓋
ここまでは両方のコピーが変化する劣性の病気でした。ところがFREM1では、片方のコピーだけの変化(ヘテロ接合性の変化)でも病気のリスクが上がることが分かっています。片方のコピーが失われて、タンパク質の量が半分程度に減る状態を「ハプロ不全(ハプロふぜん)」と呼びます。FREM1のハプロ不全は、単独型の前頭縫合早期癒合症(ぜんとうほうごうそうきゆごうしょう)/三角頭蓋2型(TRIGNO2、OMIM 614485)のリスクを大きく高めます[4]。
頭蓋骨のつなぎ目(縫合線)は、乳幼児期に急速に大きくなる脳を受け止めるための、骨の成長スペースとして働きます。FREM1は、左右の前頭骨のあいだ(のちの前頭縫合部)の骨をつくる前の細胞や、そのすぐ下の硬膜(こうまく)で強く働いています[4]。9p22.3の小さな欠失や、タンパク質の働きに重要なアミノ酸を変えるミスセンス変異(例:p.Glu1500Val)は、前頭縫合が早く閉じてしまう原因となります[4]。この結果、額がキール(船底)状にとがった三角頭蓋や、顔の中央部の低形成が現れます。
💡 不完全浸透 ── 変化があっても必ず発症するわけではない
FREM1の三角頭蓋は、片方のコピーに変化があっても、全員が発症するわけではありません。これを不完全浸透(ふかんぜんしんとう)といいます。実際、片方のコピーの変化が親から受け継がれても、親には症状がないこともあります。マウスの研究でも、変化を2つ持つ個体では前頭縫合の癒合が進む一方、1つだけの個体では症状の現れ方にばらつきがありました[4]。つまり、遺伝子の変化は「発症する可能性を高める」ものであって、「必ず発症する」ものではないのです。
この仕組みの解明によって、FREM1に変化を持つマウスが、ヒトの三角頭蓋(前頭縫合早期癒合症)を再現する動物モデルとして確立されました[4]。同じFREM1の変化でも、「両方のコピーの機能喪失=劣性のMOTA/BNAR/CAKUT」と「片方のコピーのハプロ不全=優性の三角頭蓋」というように、変化の量的な効果によって病気の姿がガラリと変わる——これがFREM1という遺伝子を理解するうえで、最も大切なポイントです。
7. もう1つの顔 ─ TILRRと免疫・炎症
ここまでは発生を支える全長型FREM1の話でした。ここからは、もう1つの顔であるTILRRの世界に入ります。TILRRは、主としてIL-1R1の共受容体として免疫応答と炎症シグナルを調節するアイソフォームとして研究されています。TILRRは子宮頸部(しきゅうけいぶ)の上皮細胞や単核球(たんかくきゅう)、血管の内皮細胞など、幅広い場所で働いています[9]。
IL-1R1の「共受容体」として
体に病原体が入ったり組織が傷ついたりすると、自然免疫が最前線で反応します。その中心のひとつが、インターロイキン-1(IL-1)という炎症を起こすサイトカインと、その受け皿であるIL-1受容体タイプI(IL-1R1)です。TILRRは、このIL-1R1の「共受容体(きょうじゅようたい)」として働きます[10]。共受容体とは、受容体のそばに寄り添って、その働きを強めたり調整したりする「補佐役」のことです。
TILRRはC末端のレクチンドメインで細胞膜に結びつき、IL-1R1とくっつくことで、受容体の量とIL-1の結合しやすさを高めます[9]。さらに、細胞の内側にアダプター分子MyD88を強く呼び寄せ、その下流のNF-κB(エヌエフカッパービー)シグナル経路を大きく増幅します[9]。その結果、IL-6やIL-8といったさまざまな炎症性サイトカイン・ケモカインの産生が高まります[9]。TILRRは、いわば炎症のボリュームつまみを大きくひねる「増幅器」なのです。
この「増幅」の意味を、もう少していねいに見てみましょう。IL-1受容体は、リガンドであるIL-1を受け取ると、細胞の内側にあるTIR(ティーアイアール)ドメインという部分にMyD88を集めて、炎症の信号を細胞の中へ伝えます。TILRRがそばにいると、このMyD88の集まり方が強まり、同じ量のIL-1でもより大きな信号が生まれます。免疫の反応は、強すぎても弱すぎても体に不都合を生むため、こうした共受容体による微調整は、応答の大きさや続く時間をきめ細かくコントロールする役目を果たしています。インターロイキンのシグナルは自然免疫の要であり、その微調整役としてTILRRが働いていると考えると、この分子の位置づけが見えてきます。
結合を強化
呼び寄せ
炎症を増幅
血液中を流れるTILRR
長いあいだ、TILRRは細胞の表面にとどまるタンパク質だと考えられてきました。ところが近年、専用の抗体を使った検出法によって、TILRRが溶けた状態で血液(血漿)のなかを流れていることが分かりました[9]。さらに、研究対象者の血漿中TILRR濃度には個人差があり、複数の炎症性サイトカインやケモカインの濃度との相関が報告されています[9]。この発見は、TILRRが局所だけの増幅器ではなく、全身の炎症の状態を映し出す新しいバイオマーカー(病気の目印となる指標)になりうることを示唆しています[9]。
8. TILRRとHIV・動脈硬化 ─ 炎症をめぐる研究
HIV-1への自然な抵抗性との関連
FREM1のわずかな遺伝的な違いが、HIV-1(ヒト免疫不全ウイルス1型)の粘膜からの感染しやすさに関わることが報告されています。ケニア・ナイロビの「Pumwani(パムワニ)性労働者コホート」という長期の追跡研究のなかで、感染リスクの高い状況に繰り返しさらされながらもHIV-1に感染しない、特異な女性グループが見いだされました。この自然な抵抗性の背景に、FREM1のゲノムワイド関連解析(GWAS)によって、あるひとつの一塩基多型(SNP、rs1552896)のマイナーアレルが強く関連することが突き止められました[11]。この多型は感染に抵抗性を示す表現型と有意に関連していました[11]。
HIV-1が膣の粘膜から感染するには、ウイルスが入り込んで増える標的細胞(活性化した細胞など)が必要です。生殖器の粘膜でTILRRの働きが高い状態だと、NF-κB経路を通じた炎症が過剰になり、皮肉にもHIV-1の標的細胞が局所に多く集まるため、感染のリスクが上がると考えられています[12]。逆に、この保護的な多型を持つ人では、TILRRの型の発現が遺伝的に抑えられ、粘膜での過剰な炎症が抑えられていることが、抵抗性のメカニズムだと考えられています[12]。ここでも、TILRRによる「炎症の増幅」という同じ仕組みが鍵を握っています。
動脈硬化と治療標的としての可能性
炎症は、動脈硬化(アテローム性動脈硬化症)ができて進む過程の中心的な要因です。組織を調べた研究では、健康な血管ではTILRRの発現はごく低いのに対し、心筋梗塞のあとの血液中の単球や、動脈硬化の病変部ではTILRRの発現が著しく上がっていることが確かめられています[10]。病変部でTILRRがIL-1R1と複合体をつくると、炎症に関わる遺伝子が異常に活性化し、単球・マクロファージが病変に入り込むのを後押しします[10]。
マウスを使った研究では、TILRR遺伝子を欠損させたり、TILRRの働きを特異的なモノクローナル抗体で阻害したりすると、動脈硬化の病変が小さくなるだけでなく、病変内のマクロファージが減り、コラーゲンや平滑筋細胞が増えることが確かめられました[10]。これは、病変が破れにくい「安定したプラーク」へと変わったことを意味します[10]。IL-1そのものではなく、炎症を局所で過剰に「増幅」する補佐役のTILRRを狙うことは、正常な感染防御を保ちながら、病的な炎症だけを抑える、より的をしぼった治療の考え方として研究が進められています[10]。ただし、これは現時点では基礎研究・動物モデルの段階の知見であり、ヒトの治療として確立されたものではありません。
9. がんとの関わり ─ 腫瘍でのFREM1
近年の大規模な遺伝子発現の解析から、FREM1を含む細胞外マトリックスのタンパク質の発現の乱れが、いくつかのがんの進行や予後と関わることが分かってきました。淡明細胞型腎細胞癌(たんめいさいぼうがたじんさいぼうがん、KIRC)では、腎臓の正常な形づくりに重要なFREM1・FRAS1・FREM2の発現が、正常な腎組織に比べて有意に低下していることが報告されています[13]。この発現低下は、進行した病理ステージや高い悪性度、遠隔転移の存在と関連し、発現が低い患者さんは予後が不良である傾向が示されています[13]。さらに、FREM1などの発現は腫瘍の周囲に集まる免疫細胞のパターンとも相関しており、細胞外マトリックスの崩れが、がんの浸潤や、がんが免疫から逃れる環境づくりに関わる可能性が示唆されています[13]。
腫瘍でのFREM1をめぐっては、TILRRの型に注目した研究もあります。乳がんでは、隣り合う正常組織に比べて腫瘍部でのTILRR(FREM1の型)の発現が低下していることが報告され、この低下が生存期間の短縮や、腫瘍内への免疫細胞(CD8陽性・CD4陽性のT細胞)の入り込みの低下と関連することが示されています[14]。局所での免疫細胞の動員が妨げられることが、がんの進行を許してしまう可能性が指摘されています[14]。一方で、脳の腫瘍である神経膠芽腫(しんけいこうがしゅ)の幹細胞では、複合体の仲間であるFREM2が細胞膜の上に過剰に現れることが見いだされ、このFREM2を目印に狙う特殊な小型抗体(ナノボディ)を使った、がん細胞をねらい撃ちする研究も進められています[15]。
このように、FREM1とその仲間は、がんの種類や組織の状況によって異なる発現の動きを示し、それぞれが予後バイオマーカーや治療標的の候補として研究されています。ただし、これらはデータベース解析や基礎実験にもとづく研究段階の知見であり、日常の診断や治療に使えるものではありません。基礎知見として位置づけて読んでいただくのがよいでしょう。がんの領域で「同じ遺伝子群が、組織によって守り手にも進行の指標にもなりうる」という複雑さは、細胞外マトリックスというネットワークが、いかに多面的に体をかたちづくっているかを物語っています。
10. 遺伝診療とのつながり ─ 診断と検査の考え方
FREM1は、遺伝診療の現場で「1つの遺伝子を、変化の性質まで踏み込んで読む」ことの大切さを教えてくれる遺伝子です。両アレルの機能喪失なのか、片方のコピーのハプロ不全なのかで、想定される病気も、家族の中での受け継がれ方も変わってきます。したがって、検査結果を解釈するときには、見つかった変化がどのタンパク質(全長型FREM1なのか、TILRRに関わる領域なのか)に、どんな影響を与えるのかまで考える必要があります。
💡 診断が難しい状況について
FREM1に関わる病気は、いずれも世界的にも報告例の限られる希少な疾患です。原因がわからないまま検査を重ねる状況や、診断名がつくまでに時間がかかることは、多くの希少・遺伝性疾患に共通する経過です。診断確定までに時間を要することがあるため、既知の医学的情報と検査の限界を整理しながら評価を進めることが重要です。臨床遺伝専門医は、こうした状況で、これまでに分かっている医学的な事実を整理し、次にどの検査を選ぶのが妥当かを一緒に考える役割を担います。
腎臓・尿路の先天的な異常(CAKUT)や、頭蓋骨の縫合が早く閉じる頭蓋骨縫合早期癒合症のように、複数の遺伝子が関わりうる病態では、多数の遺伝子をまとめて調べる次世代シークエンシング(NGS)のパネル検査やエクソーム解析のなかで、FREM1が候補として調べられることがあります。原因となる遺伝子の変化が特定できれば、ご家族の中での保因者の確認や、次のお子さんを考えるうえでの出生前診断・着床前診断といった選択肢についても、正確な情報にもとづいて検討できるようになります[1]。
FREM1に関わる病気の多くは、胎児期や出生後まもなくの身体的な特徴(目・鼻・腎臓・横隔膜・頭蓋の形など)から疑われます。超音波などの画像検査で腎臓や横隔膜の異常が見つかった場合や、出生後に顔や頭の形の特徴が見られた場合に、原因を調べる過程でFREM1を含む遺伝子検査が検討されることがあります。出生前の段階での評価と、出生後に血液などを用いて行う遺伝学的な評価とでは、使える検査も、分かることも異なります。どの段階で、どの検査を選ぶのが妥当かは、症状や家族歴によって変わるため、専門的な判断が必要です。
大切なのは、遺伝子の変化が見つかったときに、それが「必ず発症する」を意味するとは限らないという点です。とくに三角頭蓋のように不完全浸透を示す病気では、変化があっても症状が出ないこともあります。逆に、劣性の病気では、両親はそれぞれ変化を1つずつ持つ「保因者」でありながら、まったく症状がないのが普通です。こうした遺伝の仕組みは、一般の方には直感的に分かりにくいものです。だからこそ、検査の結果は数字や有無だけで判断せず、臨床遺伝専門医による遺伝カウンセリングのなかで、その変化が持つ意味や、ご家族への影響をていねいに確認していくことが重要になります。正確な診断にもとづいて、利用可能な選択肢とその限界を確認しながら方針を検討することが重要です。
よくある質問(FAQ)
Q1. FREM1遺伝子とは何ですか?
FREM1は、第9染色体の短腕(9p22.3)にある遺伝子で、性質の異なる2種類のタンパク質をつくります。ひとつは赤ちゃんの発生期に皮膚・腎臓・顔などの形づくりを支える「全長型FREM1(QBRICK)」、もうひとつは免疫の炎症シグナルを強める「TILRR」です。同じ遺伝子から、体の「かたちをつくる仕事」と「免疫を調節する仕事」という別々の役割のタンパク質が生まれます。
Q2. FREM1の変化で、どんな病気が起こりますか?
変化の起き方によって現れる病気が変わります。父由来・母由来の両方のコピーが機能を失うと、MOTA症候群・BNAR症候群・先天性腎尿路異常(CAKUT)など、常染色体劣性(潜性)の病気が起こります。一方、片方のコピーだけの変化(ハプロ不全)では、三角頭蓋(前頭縫合早期癒合症)のリスクが高まり、これは常染色体優性(顕性)で不完全浸透を示します。
Q3. なぜ同じ遺伝子なのに、違う病気が起こるのですか?
FREM1のタンパク質が「どれだけ足りているか」という量の問題が、体の場所ごとに違う結果を生むためです。両方のコピーが失われて全長型FREM1がほとんど作れないと、フレーザー複合体が崩れて発生の異常(MOTA・BNARなど)が起こります。片方だけが失われて量が半分程度に減る(ハプロ不全)と、頭蓋骨の縫合の閉じ方に影響して三角頭蓋のリスクが上がります。同じ遺伝子でも、変化の量的な効果で病気の姿が変わるのです。
Q4. 三角頭蓋の変化があると、必ず発症しますか?
いいえ、必ず発症するわけではありません。FREM1による三角頭蓋は不完全浸透を示し、片方のコピーに変化があっても症状が出ないことがあります。実際、変化が親から受け継がれても、親には症状が見られないこともあります。遺伝子の変化は「発症する可能性を高める」ものであって、「必ず発症する」ものではないため、結果の解釈には遺伝カウンセリングが重要です。
Q5. TILRRとは何ですか?なぜ免疫に関わるのですか?
TILRRは、FREM1遺伝子から作られるアイソフォームの1つで、主としてIL-1R1の共受容体として免疫の炎症シグナルを調節する分子として研究されています。IL-1受容体(IL-1R1)の「共受容体(補佐役)」として働き、細胞内にMyD88という分子を呼び寄せてNF-κB経路を活性化することで、炎症のシグナルを強めます。近年は、TILRRがHIV-1への抵抗性や動脈硬化と関わることも研究されていますが、これらは主に基礎研究の段階の知見です。
Q6. FREM1はどんな検査で調べられますか?
先天性腎尿路異常(CAKUT)や頭蓋骨縫合早期癒合症のように、複数の遺伝子が関わりうる病態では、多数の遺伝子をまとめて調べる次世代シークエンシング(NGS)のパネル検査やエクソーム解析のなかで、FREM1が候補として調べられることがあります。原因となる変化が特定できれば、家族内の保因者の確認や、出生前診断・着床前診断といった選択肢についても、正確な情報にもとづいて検討できるようになります。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] FREM1 Autosomal Recessive Disorders. GeneReviews. [NCBI Bookshelf NBK1728]
- [2] FREM1 mutations cause bifid nose, renal agenesis, and anorectal malformations syndrome. Am J Hum Genet. 2009. [PubMed 19732862]
- [3] Novel FREM1 mutations expand the phenotypic spectrum associated with Manitoba-oculo-tricho-anal (MOTA) syndrome and bifid nose renal agenesis anorectal malformations (BNAR) syndrome. Am J Med Genet A. 2013. [PubMed 23401257]
- [4] Heterozygous mutations of FREM1 are associated with an increased risk of isolated metopic craniosynostosis in humans and mice. PLoS Genet. 2011. [PMC3169541]
- [5] Breakdown of the reciprocal stabilization of QBRICK/Frem1, Fras1, and Frem2 at the basement membrane provokes Fraser syndrome-like defects. Proc Natl Acad Sci U S A. 2006. [PMC1567684]
- [6] Bioinformatics Analysis of the FREM1 Gene—Evolutionary Development of the IL-1R1 Co-Receptor, TILRR. Biology (Basel). 2012. [PMC4009816]
- [7] Deficiency of FRAS1-related extracellular matrix 1 (FREM1) causes congenital diaphragmatic hernia in humans and mice. Hum Mol Genet. 2013. [PMC3561915]
- [8] Novel Frem1-Related Mouse Phenotypes and Evidence of Genetic Interactions with Gata4 and Slit3. PLoS One. 2013. [PMC3594180]
- [9] TILRR (Toll-like Interleukin-1 Receptor Regulator), an Important Modulator of Inflammatory Responsive Genes, is Circulating in the Blood. J Inflamm Res. 2021. [PMC8478437]
- [10] The IL-1RI Co-Receptor TILRR (FREM1 Isoform 2) Controls Aberrant Inflammatory Responses and Development of Vascular Disease. JACC Basic Transl Sci. 2017. [PMC5582195]
- [11] A genetic polymorphism of FREM1 is associated with resistance against HIV infection in the Pumwani sex worker cohort. J Virol. 2012. [PMC3486297]
- [12] The Potential Role of FREM1 and Its Isoform TILRR in HIV-1 Acquisition through Mediating Inflammation. Int J Mol Sci. 2021. [PMC8346017]
- [13] Comprehensive analysis of FRAS1/FREM family as potential biomarkers and therapeutic targets in renal clear cell carcinoma. Front Pharmacol. 2022. [PMC9558830]
- [14] TILRR (FREM1 isoform 2) is a prognostic biomarker correlated with immune infiltration in breast cancer. Aging (Albany NY). 2020. [PMC7732299]
- [15] In Vitro Functional Validation of an Anti-FREM2 Nanobody for Glioblastoma Cell Targeting. Antibodies (Basel). 2025. [PMC11843905]
- [16] Wiradjaja F, Cottle DL, Jones L, Smyth I. Regulation of PDGFC signalling and extracellular matrix composition by FREM1 in mice. Dis Model Mech. 2013;6(6):1426-1433. doi:10.1242/dmm.013748. PMID:24046351. [PMC3820265]
- [17] McLaughlin MT, Sun MR, Beames TG, et al. Frem1 activity is regulated by Sonic hedgehog signaling in the cranial neural crest mesenchyme during midfacial morphogenesis. Dev Dyn. 2023;252(4):483-494. doi:10.1002/dvdy.555. PMID:36495293. [PMC10066825]
関連記事






