

目次
- 1 1. NMDエスケープと最終エクソン則とは
- 2 2. なぜNMDが起きるのか ─ 「位置の記憶」を作るEJC
- 3 3. なぜ「50〜55塩基」なのか
- 4 4. 最終エクソン則を支える古典的な実験
- 5 5. 例外のしくみ ─ EJCだけがすべてではない
- 6 6. 2025年の新知見 ─ 「白黒のスイッチ」から「連続的なものさし」へ
- 7 7. 病気の重さが変わる ─ 「エスケープ=良性」ではない
- 8 8. バリアント解釈への影響 ─ ACMG/AMPのPVS1
- 9 9. 遺伝診療との接点 ─ 用語がどこで役立つか
- 10 10. よくある誤解
- 11 まとめ ─ 「壊されない」の本当の意味
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
遺伝子に「変異(バリアント)」が見つかったとき、その変異が体にどう影響するかは、じつは「変異のタイプ」だけでは決まりません。同じ「タンパク質を途中で止めてしまう変異」でも、その設計図(mRNA)が細胞の品質管理で壊されるか、それとも壊されずに残るかで、病気の重さが大きく変わることがあります。この「壊されずに残る」現象をNMDエスケープ、その起こりやすさをおおまかに言い当てる経験則を最終エクソン則(last-exon rule)と呼びます。この記事では、NMDエスケープと最終エクソン則とは何か、なぜ「50〜55塩基」という数字が出てくるのか、そしてなぜ「壊されずに残る=良性(無害)」とは言えないのかまでを、遺伝専門医の視点でやさしく整理します。
Q. NMDエスケープと最終エクソン則とは何ですか?まず結論だけ知りたいです
A. NMD(ナンセンス変異依存mRNA分解)は、途中でタンパク質づくりを止めてしまう「異常な設計図(mRNA)」を細胞が見つけて壊す品質管理のしくみです。この分解を免れることをNMDエスケープといいます。哺乳類では、途中終止の位置が遺伝子のいちばん最後のかたまり(最終エクソン)や、その一つ手前のエクソンの末端付近にあると、NMDを免れやすい——これが最終エクソン則(50〜55塩基ルール)です。ただしこれはあくまで目安であり、免れたからといって病気が軽くなるとは限りません。むしろ壊れかけのタンパク質が残ることで、より重い病気になる場合もあります。
- ➤NMDとは → 途中終止した異常なmRNAを細胞が壊す品質管理のしくみ
- ➤エスケープとは → その分解を免れて、mRNAが残ること
- ➤最終エクソン則 → 途中終止が最後のエクソン内などにあると免れやすいという経験則
- ➤50〜55塩基は目安 → 白黒のスイッチではなく、確率が連続的に変わる
- ➤臨床での意味 → 「エスケープ=良性」ではない。残る切断タンパク質の評価が次の課題になる
🧬 用語の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | NMD(エヌ・エム・ディー)/ナンセンス変異依存mRNA分解。エスケープは「回避」。最終エクソン則は「50〜55塩基ルール」とも呼ばれる |
| NMDの役割 | 途中で終わる異常なmRNA(タンパク質の設計図)を見つけて壊す、細胞の品質管理システム |
| エスケープの条件 | 途中終止コドン(PTC)より下流にエクソン接合部複合体(EJC)が残らない、など |
| おおまかな目安 | PTCが最終エクソン内、または一つ手前のエクソンの末端から約50〜55塩基以内なら回避しやすい |
| 医療との関わり | 遺伝子検査で見つかった変異の「病的か否か」の判定(ACMG/AMPのPVS1)に直接関わる |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. NMDエスケープと最終エクソン則とは
私たちの体の中では、遺伝子(DNA)の情報がいったんmRNAという「作業用の設計図」に写し取られ、それをもとにタンパク質がつくられます。ところが、DNAに変化(バリアント)があると、本来よりずっと手前で「ここで終わり」という合図が入ってしまうことがあります。この早すぎる終了の合図を未成熟終止コドン(PTC)と呼びます。PTCができると、そのままでは中途半端で不完全なタンパク質がつくられてしまいます。
💡 用語解説:PTC(未成熟終止コドン)とナンセンス変異
コドンとは、mRNAの文字(塩基)3つ1組で「どのアミノ酸を置くか」を指定する暗号です。その中に「ここで終わり」を意味するストップコドンがあります。本来より手前に、この終了の合図がうっかり生まれてしまったものがPTCです。1文字の置き換わりで途中終止になるものをナンセンス変異、文字がずれて途中終止になるものをフレームシフト変異といいます。
細胞は、こうした中途半端な設計図をそのまま使わないように、見張り役のしくみを備えています。それがNMD(ナンセンス変異依存mRNA分解)です。NMDは、PTCを持つ異常なmRNAを見つけ出して分解し、有害になりうる不完全なタンパク質がつくられるのを未然に防ぎます[10]。ヒトのmRNAのうち、病気につながる変異を持つものだけでなく、正常なmRNAの約1割も、このNMDによって量が調整されていると考えられています[10]。
ところが、すべての途中終止がNMDで壊されるわけではありません。PTCの位置によっては、この分解を免れて設計図が残ることがあります。これがNMDエスケープです。そして、その「免れやすい位置」をおおまかに言い当てる経験則が最終エクソン則です。実務的には、次のように表現するのがもっとも正確です。PTCが最終エクソン内、または一つ手前のエクソン(最後から2番目のエクソン)の末端から約50〜55塩基以内にあると、NMDを回避しやすい——というものです。
2. なぜNMDが起きるのか ─ 「位置の記憶」を作るEJC
最終エクソン則を理解するには、mRNAがどう作られるかを少し知る必要があります。遺伝子の情報は、いらない部分(イントロン)が切り取られ、必要な部分(エクソン)がつなぎ合わされて、はじめて使える設計図になります。このつなぎ合わせの作業をスプライシングといい、それを担う巨大な装置をスプライソソームと呼びます。
重要なのは、このつなぎ目にできる「目印」です。スプライソソームは、エクソンとエクソンのつなぎ目(exon–exon junction)の少し上流、およそ20〜24塩基のところに、タンパク質の複合体を置いていくことが実験で確かめられています[3]。この目印をエクソン接合部複合体(EJC)といいます。EJCは、いわば「ここでエクソンをつなぎました」というスプライシングの履歴を、細胞質まで運んでいく付箋のような存在です。
💡 用語解説:EJC(エクソン接合部複合体)
EJCは、mRNAのエクソンのつなぎ目のそばに置かれるタンパク質の集まりです。正常な翻訳(タンパク質づくり)では、mRNAの上を進むリボソームという装置が、通り道にあるEJCを次々と取り外していきます。つまり「きちんと最後まで読まれた設計図」からはEJCが外れているのがふつうです。この「EJCが外れているかどうか」が、正常と異常を見分ける手がかりになります。
正常なタンパク質づくりでは、終了の合図はふつう最後のつなぎ目より下流、つまり最終エクソンの中にあります。ですから翻訳が終わったとき、その下流にはもうEJCは残っていません。ところが、PTCによってずっと手前で翻訳が止まってしまうと、そのPTCより下流にあるEJCが取り外されないまま残ります。この「終了した場所より下流に、外し忘れられたEJCが残っている」という状況こそが、細胞に「これは異常な設計図だ」と知らせる引き金になります。
その引き金が引かれると、終了地点にはUPF1やSMG1、翻訳終結にかかわるeRF1・eRF3といった因子が集まってひとつの複合体(SURF複合体)をつくり、下流に残ったEJC側の因子(UPF2・UPF3など)と機能的につながります。この連結によってUPF1というタンパク質にリン酸が付き、mRNAの分解が進みます[4]。もう少していねいに言うと、SURFが下流のEJCと出会うことで、複合体はいったん組み替えられ、UPF1のリン酸化を経て分解を実行する段階へと進みます。ここで働くUPF1は、mRNAの上を動く「モーター」のようなはたらきを持つタンパク質で、そのリン酸化が下流の分解因子を呼び込む合図になります。つまりNMDは、「翻訳の終了」と「スプライシングの履歴」という2つの情報が細胞質で照らし合わされて初めて発動する、二段構えのしくみなのです。
この「2つの情報の照合」という考え方は、1990年代にbinary specification(二値的な指定)という言葉で整理されました。核の中でスプライシングによって付けられた「目印」を、細胞質での翻訳が読み出す——どちらか一方だけでは異常と判定されず、両方がそろって初めてPTCが「異常な終止」と認識される、という考え方です。その後、EJCという目印の実体が同定され、UPFタンパク質を終止コドンの下流に人工的に配置するだけでNMDを誘導できることが示され、さらにSURFとEJCの連結が生化学的に裏づけられたことで、この二値的な考え方はしくみのレベルで確かめられていきました。逆に言えば、最終エクソンにあるPTCでは、その下流にスプライシング由来のEJCが原理的に存在しないため、この主要な引き金が働きにくくなります。これが、最終エクソンでNMDエスケープが起こる中心的な理由です。
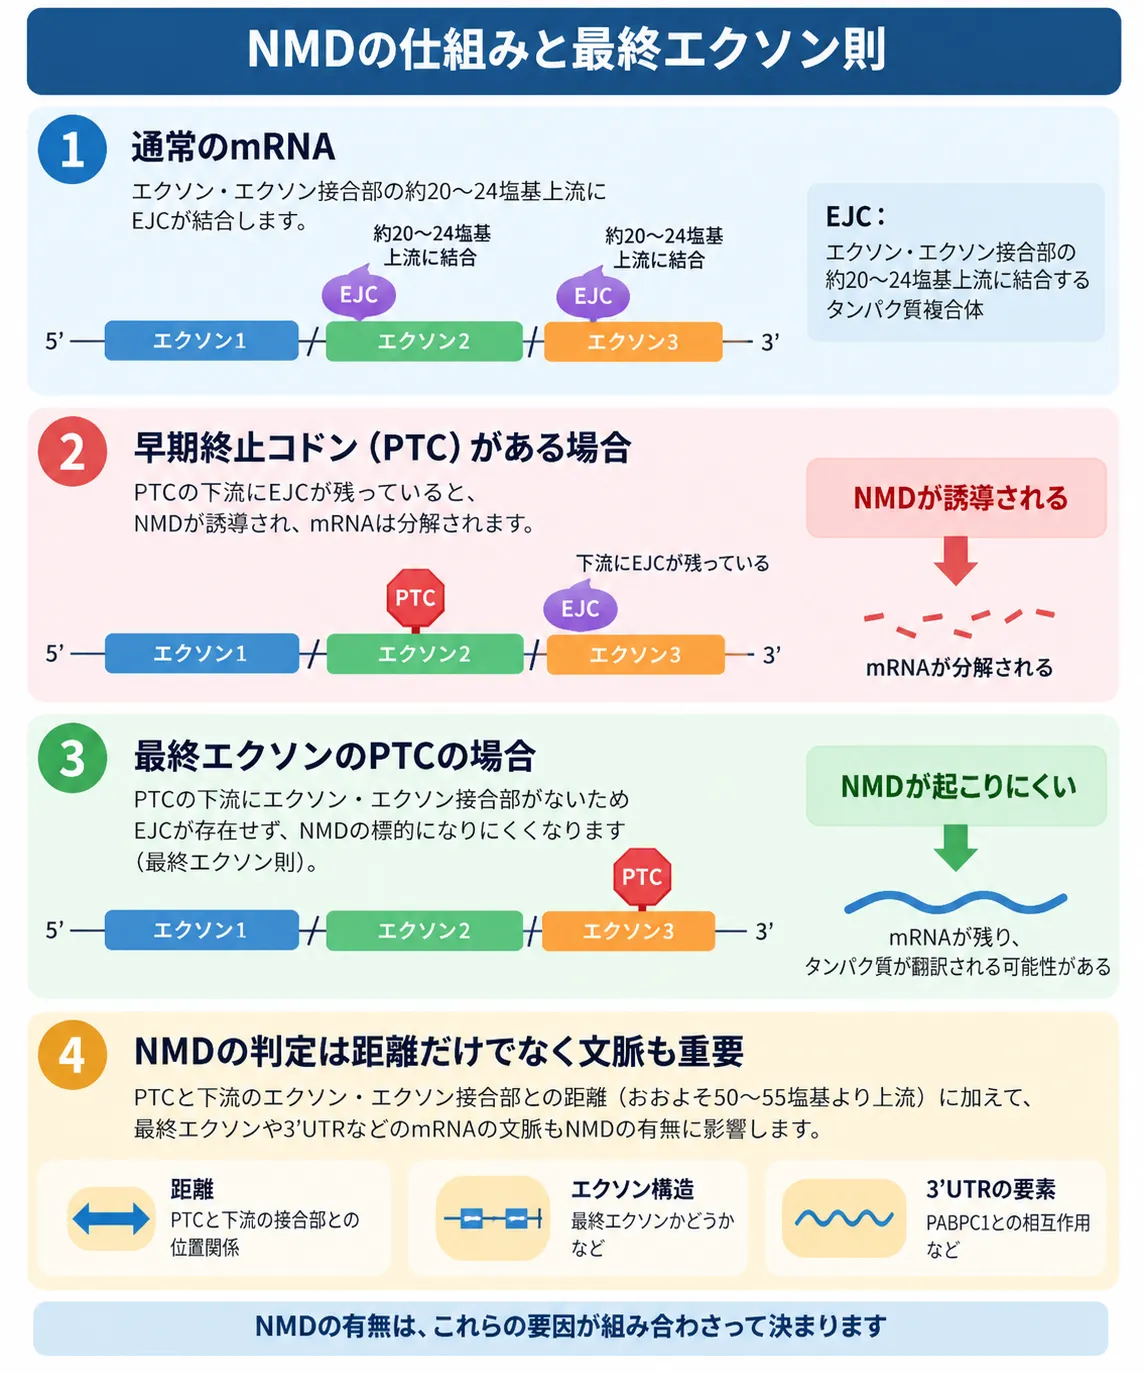
図:NMD(ナンセンス変異依存mRNA分解)と最終エクソン則の概要。PTC(途中終止コドン)より十分下流にEJC(エクソン接合部複合体)が残る場合はNMDが誘導され、mRNAが分解されやすくなります。一方、PTCが最終エクソン内にある場合は、その下流にエクソン–エクソン接合部がないためEJCが残らず、NMDを回避しやすくなります。ただし、NMDの有無や程度は単純な位置だけで決まるものではなく、PTCと下流の接合部との距離、エクソン構造、3′UTRの文脈など複数の要因に左右されます。
3. なぜ「50〜55塩基」なのか
ここでひとつ疑問が浮かびます。EJCはつなぎ目の20〜24塩基上流に置かれるのに、なぜ目安の数字は「50〜55塩基」なのでしょうか。この値は、EJCが置かれる位置だけでなく、翻訳を終えたリボソームや周りのタンパク質が占める空間、翻訳に伴ってEJCが外される範囲などを合わせた、経験的な境界です。つまり物理法則で決まる厳密な線ではなく、「だいたいこのあたりを境にNMDが起きやすくなる/起きにくくなる」という、実際のデータから引かれた目安なのです。
流れを整理すると、次の図のようになります。PTCの位置によって、その下流にEJCが残るかどうかが変わり、それが分解か回避かの分かれ道になります。
「最終エクソン則」と「50〜55塩基ルール」は、同じ原理を別の角度から言い表したものです。前者は「最終エクソンには下流のつなぎ目がない」ことを強調し、後者は「最後から2番目のエクソンの末端付近にも回避しやすい領域がある」ことを明示します。したがって、この規則は最終エクソンだけを見るものではなく、「翻訳を終えた地点より十分下流に、EJCが残っているかどうか」という、位置と立体配置の規則として理解するのが正確です。次章以降で見るように、近年のデータは、この50〜55塩基を「固定された白黒のスイッチ」とみなすべきではないことを示しています。
🩺 院長コラム【「変異のタイプ」だけで結論を出さない】
遺伝子検査の結果を読むとき、私が臨床遺伝専門医としていつも意識しているのは、「変異の名前や種類だけで結論を出さない」ということです。ナンセンス変異やフレームシフト変異は、一見すると「タンパク質を壊す重い変異」に見えます。ですが、その設計図(mRNA)が実際に壊されるのか、それとも残るのか——ここまで踏み込まないと、体への影響は見えてきません。
NMDと最終エクソン則は、まさにこの「一段深く読む」ための知識です。変異の位置がエクソンのどこにあり、その下流にEJCが残るのか。同じ遺伝子の同じタイプの変異でも、位置が違えば結果が変わりうる——この考え方は、私が成人の遺伝性腫瘍の診療で日々向き合っている姿勢と地続きです。
4. 最終エクソン則を支える古典的な実験
最終エクソン則は、ある1本の論文で突然発見されたものではありません。位置による効果の発見 → スプライシングとの関係 → EJCの同定 → 分子機構の解明、という段階を積み重ねて成り立ってきました。その出発点のひとつが、HBB遺伝子(β-グロビン)を使った研究です。
1994年、HallとTheinは、患者さん由来のβ-グロビンを解析し、最終エクソン(第3エクソン)に途中終止をもつ場合には、β-グロビンmRNAの量が減らないことを示しました[1]。これに対し、より手前のエクソンに途中終止をもつmRNAは大きく減っていました。同じ「途中終止」でも、位置によって設計図が残るか消えるかが分かれる——NMDエスケープが臨床の症状にも直結することを示した、初期の強い証拠です。
1998年には、ヒトβ-グロビンを使った実験で、PTCと最後のイントロンの相対的な位置を人工的に変えると、NMDの受けやすさも切り替わることが示されました[2]。この研究では、PTCが最後のイントロンから十分上流にある場合にはmRNAが正常の1〜2割程度まで減る一方、イントロンの位置やPTCとつなぎ目の距離を変えると受けやすさを切り替えられることが確かめられました。これは、PTCそのものの配列ではなく、スプライシングでできたつなぎ目とPTCの相対的な位置が重要だという、直接的な証拠でした。その後、スプライソソームがつなぎ目の20〜24塩基上流にEJCを物理的に置くことがマッピングされ[3]、さらに終了地点でSURF複合体が下流のEJCとつながってUPF1のリン酸化と分解を引き起こす、という一連の分子回路が生化学的に明らかにされました[4]。こうして、位置による経験則は、単なる統計的な相関から、しくみに裏づけられた規則へと結びつけられていったのです。
この歴史から見えてくるのは、最終エクソン則が段階を追って成り立ってきた、ということです。位置による効果の発見から、スプライシングとの関係、EJCという目印の同定、UPF因子とEJCの機能的なつながりの解明、そして「終了の状況(終結コンテクスト)」を重視するモデルへ——という積み重ねです。そして後で見る2025年の大規模な内在性ゲノム編集のデータは、この基本モデルを否定するものではなく、「予測の精度を上げるには、距離以外の要因も一緒に考える必要がある」という形で、モデルを更新するものだと理解できます。
5. 例外のしくみ ─ EJCだけがすべてではない
最終エクソン則は非常に有用な目安ですが、NMDが起きるかどうかはEJCだけで決まるわけではありません。いくつかの補助的なしくみが、回避のしやすさを左右します。
poly(A)尾部とPABPC1への「近さ」
mRNAの末端には、poly(A)尾部と呼ばれる「A」の連なりがあり、そこにPABPC1というタンパク質が結合しています。正常な翻訳終了では、このPABPC1が終了装置のすぐ近くにあって、正しい終了を助けます。逆に、PTCからPABPC1までの機能的な距離が大きいと、NMDの因子が優勢になりやすくなります。実際、正常な終了の下流に長い配列を人工的に足すとNMDが誘発され、反対にpoly(A)尾部をPTCの近くに折りたたんで近づけるとNMDが抑えられることが示されています[5]。つまりNMDは、一次元の距離だけでなく、mRNAの立体的な配置にも左右されるのです。
長い3′UTRとEJCに依存しないNMD
終止コドンから下流の、タンパク質に翻訳されない領域を3′UTRと呼びます。この3′UTRが極端に長いと、EJCがなくてもNMDが起こることがあります。実際、免疫グロブリンμ(ミュー)の設計図を使った実験では、EJCの有無だけでは説明できず、3′UTRそのものの長さが重要な決め手になる系が報告されています。また、T細胞受容体βの設計図では、古典的な境界のルールから外れたところでNMDが起こる例(境界に依存しないNMD)も観察されています。ここで大切なのは、最終エクソンにPTCができると、そのPTCから本来の末端までの領域すべてが「新しい3′UTR」として扱われる、という点です。つまり同じ最終エクソン内でも、どこで途中終止するかによって、この異常な3′UTRの長さが大きく変わります。ですから「最終エクソンだから一律に回避する」とは言えず、同じエクソン内でもNMDの効率が均一である理由はありません。もっとも、「長い3′UTRなら必ずNMDが起こる」わけでもありません。正常なヒトの設計図には、長い3′UTRを持ちながら安定なものが多数あり、特定のRNAの配列や構造、結合するタンパク質によってUPF1の作用から守られていることも分かっています。つまり3′UTRの長さは、確率を変える一つの特徴であって、単独で結果を決める規則ではないのです。
翻訳の再開始と、ごく手前のPTC
最終エクソン則とは反対に、遺伝子のいちばん5′端(先頭)に近いところにも、NMDを免れやすい領域があります。先頭近くで途中終止しても、その下流にある別の開始点から翻訳がやり直される(再開始する)ことがあり、その結果NMDが弱まるのです。ただし、その境界の位置は遺伝子ごとに異なるため、ある遺伝子で得られた「先頭から何コドンまで」という値を、そのまま別の遺伝子の診断にあてはめることはできません。
選択的スプライシングと「どの設計図か」
見落とされやすいのが選択的スプライシングです。同じDNAの変異でも、エクソンのつなぎ方が異なる複数のアイソフォーム(設計図のバリエーション)が作られることがあります。ある設計図ではPTCより十分下流につなぎ目が残り、別の設計図ではそのつなぎ目が存在しない、あるいはPTCが最終エクソンに移る、ということが起こります。そのため、同じ変異が「NMDされる設計図」と「されない設計図」を同時に生むことがあるのです。診断の場面では、「変異は最後から2番目のエクソンにある」と言うだけでは不十分で、臨床的に重要などの設計図の、どのつなぎ目に対して、何塩基離れているかを指定する必要があります。
このほか、PTBP1などのRNA結合タンパク質が、すでにmRNAに結合したUPF1を能動的にはずしてNMDから守ることや、PTCで毎回きちんと終了せず一定の割合で読み飛ばす翻訳リードスルーが起こると、下流のEJCが取り外されてNMDが弱まることも知られています。NMDは、これら複数の要因が競い合って決まる、確率的な現象なのです。
6. 2025年の新知見 ─ 「白黒のスイッチ」から「連続的なものさし」へ
最終エクソン則の理解は、近年の大規模な実験によって大きく更新されました。2025年に報告された研究では、ヒトのLMNA遺伝子そのものに、ゲノム編集を使ってあらゆる位置に途中終止を1つずつ作り込む「飽和ゲノム編集」という手法が用いられました。722個のPTCと211個の対照について、NMDを止める前と後でmRNAの量を測定した大規模な解析です[6]。
その結果、最後から2番目のエクソンでは、50〜55塩基のところで急にオン・オフが切り替わるのではなく、PTCとつなぎ目の距離に応じて、NMDの活性が連続的(なだらか)に変化することが示されました[6]。また、5′端では最初の約21コドンでNMDがほとんど起こらず、その直後の数コドンで急に活性化するという、先頭側の回避領域も観察されました。さらに、本来なら強くNMDが起こるはずの内部エクソンでも、読み飛ばし(リードスルー)が起こりやすい配列のところでは、例外的にNMDを免れるものが見つかりました[6]。
⚠️ ここが重要
この研究は、最終エクソン則が「集団全体の傾向をつかむ第一近似としては有用」である一方、個々の変異のmRNA量を厳密に予測するものではないことを示しました。したがって「最終エクソンだから必ず回避する」「56塩基上流だから必ず分解される」といった白黒の断定は、いまの実験データとは合いません。NMDは、PTCの位置・3′UTRの長さ・PABPC1・RNA結合タンパク質・再開始・リードスルー・設計図の種類・細胞の状態などが競い合って決まる、確率的な現象と捉えるほうが正確です。
7. 病気の重さが変わる ─ 「エスケープ=良性」ではない
NMDには、有害になりうる「途中で切れたタンパク質」がつくられるのを防ぐ、いわばブレーキの役割があります。このため、同じ遺伝子でも、手前のPTCがNMDされて設計図が減る場合と、下流のPTCが回避されて切断タンパク質がつくられる場合とで、まったく異なる、時にはより重い病気になることがあります。
HBB(β-グロビン)はその典型例です。手前のエクソンのPTCは、NMDによってmRNAが減り、多くはβサラセミアのうち、両親から2つそろって発症するタイプ(潜性・劣性)につながりやすいことが知られています。一方、最終エクソンのPTCではmRNAが残り、C末端(後ろ側)が切れたβ-グロビンがつくられるため、片方の変異だけで発症する「顕性(優性)βサラセミア」を生じうることが示されています[1]。「最後のエクソンだから軽い・良性だろう」という推論の、ちょうど逆を示した例です。
SOX10遺伝子やMPZ遺伝子でも、同じ原理が観察されています。2004年の研究では、途中終止でつくられるタンパク質は、それ自体が周りの正常なタンパク質のはたらきを邪魔するドミナントネガティブ作用をもつものの、実際に重い症状(PCWHなど)が現れるのは、その変異mRNAがNMDを免れて切断タンパク質を大量につくれた場合だ、と示されました[7]。「変異タンパク質に潜在的な毒性がある」だけでは足りず、そのタンパク質を実際につくれるだけのmRNAが残るかが症状を決めるのです。
💡 用語解説:ハプロ不全とドミナントネガティブ
ハプロ不全とは、2本ある遺伝子のうち片方が働かなくなり、「量が半分に減る」ことで起きる状態です。NMDで設計図が壊されると、多くはこのタイプになります。一方ドミナントネガティブは、壊れかけのタンパク質が残って、正常なほうの足を引っ張る状態です。NMDを免れると、こちらが起こりやすくなります。同じ遺伝子でも、どちらになるかで病気の重さが変わりうる、という点が診療では重要になります。
逆に、後ろ側の失われる領域が機能的にそれほど重要でなければ、回避するPTCでも臨床的な影響が小さいことがあります。よく知られた例がBRCA2遺伝子のK3326Xです(解剖学的には最終エクソンではなく、最後から2番目のエクソンにある回避型の変異です)。C末端の93個のアミノ酸を失いますが、遺伝性乳がん・卵巣がんを高い確率で起こす「病的」変異とは扱われていません。ただし、大規模な研究ではがんリスクをわずかに上げるとの報告もあり、「生物学的効果がまったくゼロ」と「メンデル遺伝病を起こす高い浸透率の変異」は同義ではない、という点にも注意が必要です。一方、同じく回避型でもBRCA1遺伝子のp.Arg1835Terのように、切断による機能障害が確立していて「病的」と分類される例もあります。「mRNAが残ること」と「タンパク質が機能を保つこと」は、まったく別の問題なのです。
こうして見ると、正しい因果の順序が浮かび上がります。変異があり、それが設計図の構造を決め、そこからNMDの有無や程度が決まり、実際に残るmRNAの量が決まり、そこから予測されるタンパク質が決まり、最後にその遺伝子に固有の病気のしくみと臨床的な証拠に照らして意味づけられる——という流れです。「最終エクソンだから良性」も「ナンセンス変異だから病的」も、この長い因果の鎖の途中を飛ばして結論に跳んでしまう点で、どちらも危うい早とちりだといえます。
8. バリアント解釈への影響 ─ ACMG/AMPのPVS1
ここまでの話は、遺伝子検査で見つかった変異が「病的か否か」を判定する国際的な枠組みに、直接かかわってきます。2015年に公表されたACMG/AMPのガイドラインでは、ナンセンス・フレームシフト・標準的なスプライス部位の変異など、機能喪失(LoF)を起こす変異に対して、もっとも強い病的方向の証拠として「PVS1」という項目が導入されました[8]。ただしこの枠組みは、変異のタイプだけで自動的に病的と決めるものではなく、その遺伝子で機能喪失が実際に病気を起こすしくみなのか、どの設計図が関わるのか、といった点を前提に考えることになっています[8]。
2018年には、このPVS1の使い方をさらに精密にする指針が示されました[9]。そこでは、NMDが起こると予測される変異と、NMDを免れて切断タンパク質をつくると予測される変異を、同じ強さで扱わないという判断の流れ(ディシジョンツリー)が提唱されています。とくに最終エクソンや、最後から2番目のエクソンの末端付近では、PVS1を機械的に最強で付けるのではなく、切断されるタンパク質の量、失われる重要な機能領域、その領域より下流に確立した病的変異があるか、疾患に関連する設計図か、といった点を評価する必要がある、とされています[9]。
⚠️ 二つの「早とちり」に注意
臨床の現場では、「最終エクソン・回避位置だから良性だろう」という推論も、「ナンセンス/フレームシフトだからPVS1で最強、すなわち病的だろう」という推論も、どちらも不適切です。より正しい流れは、変異 → 設計図の構造 → NMDの有無や程度 → 残るmRNAの量 → 予測されるタンパク質 → その遺伝子に固有の病気のしくみ → 臨床的な証拠、という順にたどることです。これはACMG/AMPの枠組みと、NMDの実験生物学の双方に整合します。
実際、遺伝子や疾患ごとに作られた個別の仕様書の中には、「最終エクソン、または最後から2番目のエクソン末端の約50〜55塩基以内はNMD回避と予測する」としたうえで、PVS1の強さを別の判断の流れで決める実装例があります。その一方で、遺伝子によっては、NMDを免れるC末端の切断そのものが確立した病気のしくみであるため、比較的強いPVS1を認める個別ルールもあります。つまり、50〜55塩基ルールはPVS1の強さを自動的に決める規則ではなく、あくまで「次にどこを評価するか」を教えてくれる分岐点なのです。
なお、こうした指針を取りまとめてきたClinGenの体制は変化を続けています。2026年時点では、変異解釈に関する推奨は、集約された最新のガイダンスを確認するのが妥当です。制度や指針は更新されうるため、実務では該当する遺伝子・疾患ごとの最新の仕様を優先して参照することが大切です。
9. 遺伝診療との接点 ─ 用語がどこで役立つか
NMDエスケープと最終エクソン則は、抽象的な分子生物学の話に見えて、実際には遺伝子診断・遺伝形式・遺伝カウンセリングのすべてに関わる、実務的な概念です。遺伝子検査で「タンパク質を途中で止める変異」が見つかったとき、その変異が体にどう影響するかを見きわめるには、まず「その変異がどの設計図の、どの位置にあり、NMDされると予測されるか」を確認することが出発点になります。
実務的には、NMDの判定はゲノム上の座標ではなく、どの設計図(transcript)を基準にするかで変わります。同じ変異でも、ある設計図では最後から2番目のエクソンにあり、別の設計図では最終エクソンになる、ということが起こりうるからです。ですから「11個中10番目のエクソン」という番号だけでは情報として不十分で、どの疾患関連の設計図を使ったか、その設計図での最後のつなぎ目はどこか、PTCからそこまで何塩基あるか、といった点まで押さえておくのが望ましいとされています。とくに変異がスプライシングそのものを変える場合には、もとのエクソン構造ではなく、実際に予測・確認された「切り貼りの結果」でPTCの位置を計算し直す必要があります。
また、境界の近くにあるPTCについては、二値化しすぎない表現が実際のデータに合っています。50〜55塩基のちょうど境目あたりでは、NMDの効率は連続的に変わるため、報告の際には「NMDされると予測」「NMDを回避すると予測」といった確率的な言い方を用い、必要なら「境界の近くのため不確実性がある」と注記するほうが正確です。そして何より、NMDの予測に入る前に、そもそもその遺伝子で「機能が失われること」が病気を起こすしくみなのかを確認することが大切です。機能喪失が病気につながらない遺伝子や、しくみが機能獲得・優性阻害に限られる遺伝子では、ナンセンス変異というタイプだけを理由に強い病的評価を付けることはできません。
RNAを使った検査は、判定がNMDの有無で大きく変わる場面では特に価値があります。変異のある側の設計図が減っているか残っているかを、RT-PCRやRNAシーケンスなどで実際に確かめられるからです。ただし、患者さんの血液で得たRNAの結果が、脳や心臓・筋肉といった、病気の舞台となる組織での状態をそのまま反映するとは限りません。組織によってRNA結合タンパク質の量が異なり、NMDの効率が変わりうるためです。さらに、「RNAが残っている」ことは「正常に機能するタンパク質ができる」ことを意味しません。回避型ではRNAが残ると予測されるからこそ、その次に、残るタンパク質の機能や、正常なタンパク質の足を引っ張らないかが評価の中心になります。こうした限界と順序を踏まえたうえで、複数の情報を統合して評価していくことになります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何が分かり何が分からないのか、見つかった変異がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのか、といった点を、中立の立場で一緒に整理していきます。NMDや最終エクソン則は、そうした場面で「見つかった変異をどう読み解くか」を支える理解の土台のひとつです。なお、NMDそのものは基礎研究が中心の分野であり、日常の診療で直接検査する対象ではありません。ここでは、正確な判定に基づいて次の一歩を選ぶための、背景知識として位置づけています。
10. よくある誤解
誤解①「最終エクソンなら安全」
最終エクソンのPTCはNMDを免れやすいですが、安全という意味ではありません。むしろ切断タンパク質が残ることで、HBBの顕性βサラセミアのように、より重い病気につながることがあります。
誤解②「50〜55塩基は絶対の境界」
これはあくまで目安です。2025年の大規模研究では、この境界の近くでNMDの活性が連続的に変化することが示されました。「49塩基だから0%、56塩基だから100%」という生物学ではありません。
誤解③「ナンセンス変異=必ず病的」
変異のタイプだけでは病的とは決まりません。その遺伝子で機能喪失が病気を起こすしくみか、設計図が残るか、残るタンパク質が何を失うか——ここまで見て初めて評価できます。
誤解④「NMDされないなら量は正常」
mRNAが残ることと、正常に機能するタンパク質ができることは別問題です。回避型ではmRNAが残るからこそ、次に切断タンパク質の機能が評価の中心になります。
まとめ ─ 「壊されない」の本当の意味
NMDエスケープと最終エクソン則は、「途中で止まる変異が、細胞の品質管理を免れて設計図として残る」という現象と、その起こりやすさを言い当てる経験則です。EJCという「スプライシングの履歴」を手がかりに、細胞は正常と異常を見分けています[3][4]。最終エクソンでPTCが回避されやすいのは、その下流にEJCが残らないからでした。
ただし、50〜55塩基は白黒のスイッチではなく、確率が連続的に変わるものさしです[6]。そして何より、NMDを免れることは「良性」を意味しません。HBBやSOX10が示すように、設計図が残ることが、かえって有害な切断タンパク質をつくる条件になることもあります[1][7]。臨床遺伝の現場では、NMDエスケープは最終結論ではなく、「安定した切断タンパク質がつくられる可能性が高まったので、次にそのタンパク質を評価しよう」という、次の解析への分かれ道と考えるのがもっとも安全です。変異のタイプや位置だけで早とちりせず、一段深く読む——その姿勢こそが、遺伝子検査の結果を正確に受け止める第一歩になります。
よくある質問(FAQ)
Q1. NMDエスケープとは何ですか?
NMD(ナンセンス変異依存mRNA分解)は、途中でタンパク質づくりを止めてしまう異常な設計図(mRNA)を、細胞が見つけて壊す品質管理のしくみです。NMDエスケープとは、その分解を免れて、mRNAが壊されずに残ることをいいます。壊されないため、後ろ側が切れた不完全なタンパク質がつくられる可能性があります。
Q2. 最終エクソン則(50〜55塩基ルール)とは何ですか?
途中終止コドン(PTC)が、遺伝子のいちばん最後のかたまり(最終エクソン)の中や、その一つ手前のエクソンの末端から約50〜55塩基以内にあると、NMDを免れやすい、という経験則です。これは「最終エクソンには下流のつなぎ目がなく、NMDの引き金となるEJC(目印)が下流に残らない」ことを反映しています。ただし固定された境界ではなく、あくまで目安です。
Q3. なぜ「50〜55塩基」という数字なのですか?
EJC(つなぎ目の目印)はつなぎ目の20〜24塩基上流に置かれますが、実際のNMDの境界は、翻訳を終えたリボソームや周りのタンパク質が占める空間なども合わさって、経験的に約50〜55塩基あたりになります。2025年の大規模研究では、この境界の近くでNMDの強さが連続的に変化することが示されており、白黒のスイッチではなく「目安」と理解するのが正確です。
Q4. NMDを免れれば、病気は軽くなるのですか?
そうとは限りません。NMDには、有害になりうる切断タンパク質がつくられるのを防ぐブレーキの役割があります。免れると、その切断タンパク質が残り、正常なタンパク質の足を引っ張る(ドミナントネガティブ)ことで、かえって重い病気になる場合があります。HBB(β-グロビン)やSOX10がその例で、「エスケープ=良性」とは言えません。
Q5. この用語は遺伝子検査とどう関係しますか?
遺伝子検査で「タンパク質を途中で止める変異」が見つかったとき、その変異が病的かどうかを判定する国際的な枠組み(ACMG/AMPのPVS1)に直接関わります。NMDされるか免れるかで、証拠の強さの付け方が変わるためです。判定は変異のタイプだけでなく、設計図の構造・NMDの予測・残るタンパク質の機能などを合わせて行います。検査結果の意味については、臨床遺伝専門医にご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子検査の結果の意味や、見つかった変異が体にどう影響しうるかについて
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Nonsense codon mutations in the terminal exon of the beta-globin gene are not associated with a reduction in beta-mRNA accumulation: a mechanism for the phenotype of dominant beta-thalassemia. Blood. 1994. [PubMed 8161774]
- [2] Intron function in the nonsense-mediated decay of beta-globin mRNA: indications that pre-mRNA splicing in the nucleus can influence mRNA translation in the cytoplasm. RNA. 1998. [PubMed 9671053]
- [3] The spliceosome deposits multiple proteins 20-24 nucleotides upstream of mRNA exon-exon junctions. EMBO J. 2000. [PubMed 11118221]
- [4] Binding of a novel SMG-1-Upf1-eRF1-eRF3 complex (SURF) to the exon junction complex triggers Upf1 phosphorylation and nonsense-mediated mRNA decay. Genes Dev. 2006. [PubMed 16452507]
- [5] Posttranscriptional gene regulation by spatial rearrangement of the 3′ untranslated region. PLoS Biol. 2008. [PubMed 18447580]
- [6] Genomic stop codon scanning reveals quantitative principles of nonsense-mediated mRNA decay. 2025. [PubMed 41509423]
- [7] Molecular mechanism for distinct neurological phenotypes conveyed by allelic truncating mutations. Nat Genet. 2004. [PubMed 15004559]
- [8] Standards and guidelines for the interpretation of sequence variants: a joint consensus recommendation of the American College of Medical Genetics and Genomics and the Association for Molecular Pathology. Genet Med. 2015. [PubMed 25741868]
- [9] Recommendations for interpreting the loss of function PVS1 ACMG/AMP variant criterion. Hum Mutat. 2018. [PubMed 30192042]
- [10] Quality and quantity control of gene expression by nonsense-mediated mRNA decay. Nat Rev Mol Cell Biol. 2019. [PubMed 30992545]






