

目次
- 1 1. 成長板とは ─ 骨を伸ばす「軟骨の成長エンジン」
- 2 2. 成長板の4つの層 ─ 縦断地図で見る軟骨内骨化
- 3 3. 静止層の幹細胞ニッチ ─ 「1種類ではなかった」という最新像
- 4 4. IHH–PTHrP ─ 成熟スピードを決める「距離センサー」
- 5 5. FGFR3 ─ 成長の「分子ブレーキ」
- 6 6. SOX9とRUNX2 ─ 「軟骨から骨へ」を切り替える二人の指揮者
- 7 7. 血管侵入とECMの切替え ─ 軟骨が骨へ変わる現場
- 8 8. 肥大軟骨細胞の最終運命 ─ 旧モデルと新モデル
- 9 9. 遺伝子と病気のつながり ─ どの層が壊れると何が起こるか
- 10 10. よくある誤解
- 11 まとめ ─ 成長板は「静的な軟骨板」ではなく「動く器官」
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
子どもの身長が伸びるのは、骨の両端近くにある成長板(せいちょうばん/growth plate)という、うすい軟骨の板が働いているからです。ここでは軟骨内骨化(なんこつないこっか/endochondral ossification)という仕組みが休みなく回り、軟骨がつくられては骨へ置き換わることで、骨が長く伸びていきます。この記事では、成長板がどんな層でできているのか、どんな遺伝子とシグナルが伸び方を決めているのか、そしてその破綻がなぜ低身長や骨の病気につながるのかを、遺伝医学の視点から解説します。近年はマウスだけでなくヒトの成長板を細胞レベルで読み解く研究も進み、「教科書の4層モデル」が静かに更新されつつあります。
Q. 成長板と軟骨内骨化とは何ですか?まず結論だけ知りたいです
A. 成長板とは、骨の端の近くにある軟骨の板で、骨が長く伸びる「成長エンジン」です。軟骨内骨化とは、まず軟骨で骨の型(鋳型)をつくり、それを少しずつ本物の骨に置き換えていく骨の作り方のことです。成長板の中では、幹細胞から生まれた軟骨細胞が、増える→大きくふくらむ(肥大する)→まわりの土台(マトリックス)を作り替える、という順番で並び、最後に血管が入り込んで軟骨が骨へ変わります。この流れをIHH/PTHrP・FGFR3・SOX9・RUNX2といった遺伝子とシグナルが細かく調整しています。これらのどれかが乱れると、軟骨無形成症などの低身長や骨系統疾患が起こります。子どもの身長が伸びる仕組みと、骨折治癒のうち軟骨性仮骨を経る二次治癒には、軟骨内骨化という共通の仕組みが関わります。
- ➤正体 → 成長板は骨端側から骨幹端側へ層が並んだ「軟骨の成長エンジン」。単なるすき間ではなく、幹細胞から骨までを空間に並べた発生装置
- ➤4つの層 → 静止層 → 増殖層 → 前肥大・肥大層 → 骨化前線、と役割の違う軟骨細胞が縦に並ぶ
- ➤司令塔 → 単独の「主役経路」はなく、IHH–PTHrP(成熟のスピード調整)、FGFR3(伸びのブレーキ)、SOX9→RUNX2(軟骨から骨への切替え)が連携する
- ➤最新知見 → 静止層は1種類ではなく、複数の幹細胞様の集団が層をなすことが、ヒトの研究でも示されつつある
- ➤病気とのつながり → 各層の破綻が軟骨無形成症・カンポメリック異形成症・鎖骨頭蓋異形成症などの低身長・骨系統疾患を生む
🦴 成長板・軟骨内骨化の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | 成長板(せいちょうばん)/骨端線(こつたんせん)とも。英語は growth plate、physis。軟骨内骨化は endochondral ossification |
| どこにあるか | 手足の長い骨(長管骨)や背骨・肋骨などの端の近く。体の骨の大部分がこの方式でつくられる |
| はたらき | 骨を縦(長軸方向)に伸ばす。軟骨をつくり、それを骨へ置き換えることを繰り返す |
| 主な司令塔 | IHH–PTHrP、FGFR3、BMP、WNT、SOX9、RUNX2、VEGF、MMP13/MMP9 などが連携 |
| 閉じる時期 | ヒトでは思春期の終わりごろに成長板が閉じ、身長の伸びが止まる(マウスでは同じ意味では完全には閉じない) |
| 医療との関わり | 低身長・骨系統疾患の理解の土台。成長ホルモン治療や、FGFR3を標的とする新しい薬の作用点でもある |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 成長板とは ─ 骨を伸ばす「軟骨の成長エンジン」
骨は、いちど出来上がったら固定される石材のような存在ではありません。とくに子どもの骨は、端の近くにある成長板という軟骨の板を「工場」として、日々少しずつ長くなっています。成長板は、骨の端にある関節側の部分(骨端)と、骨の幹の部分(骨幹端)のあいだにはさまれた、うすい軟骨の層です。ここでは軟骨内骨化という骨の作り方が働いています。
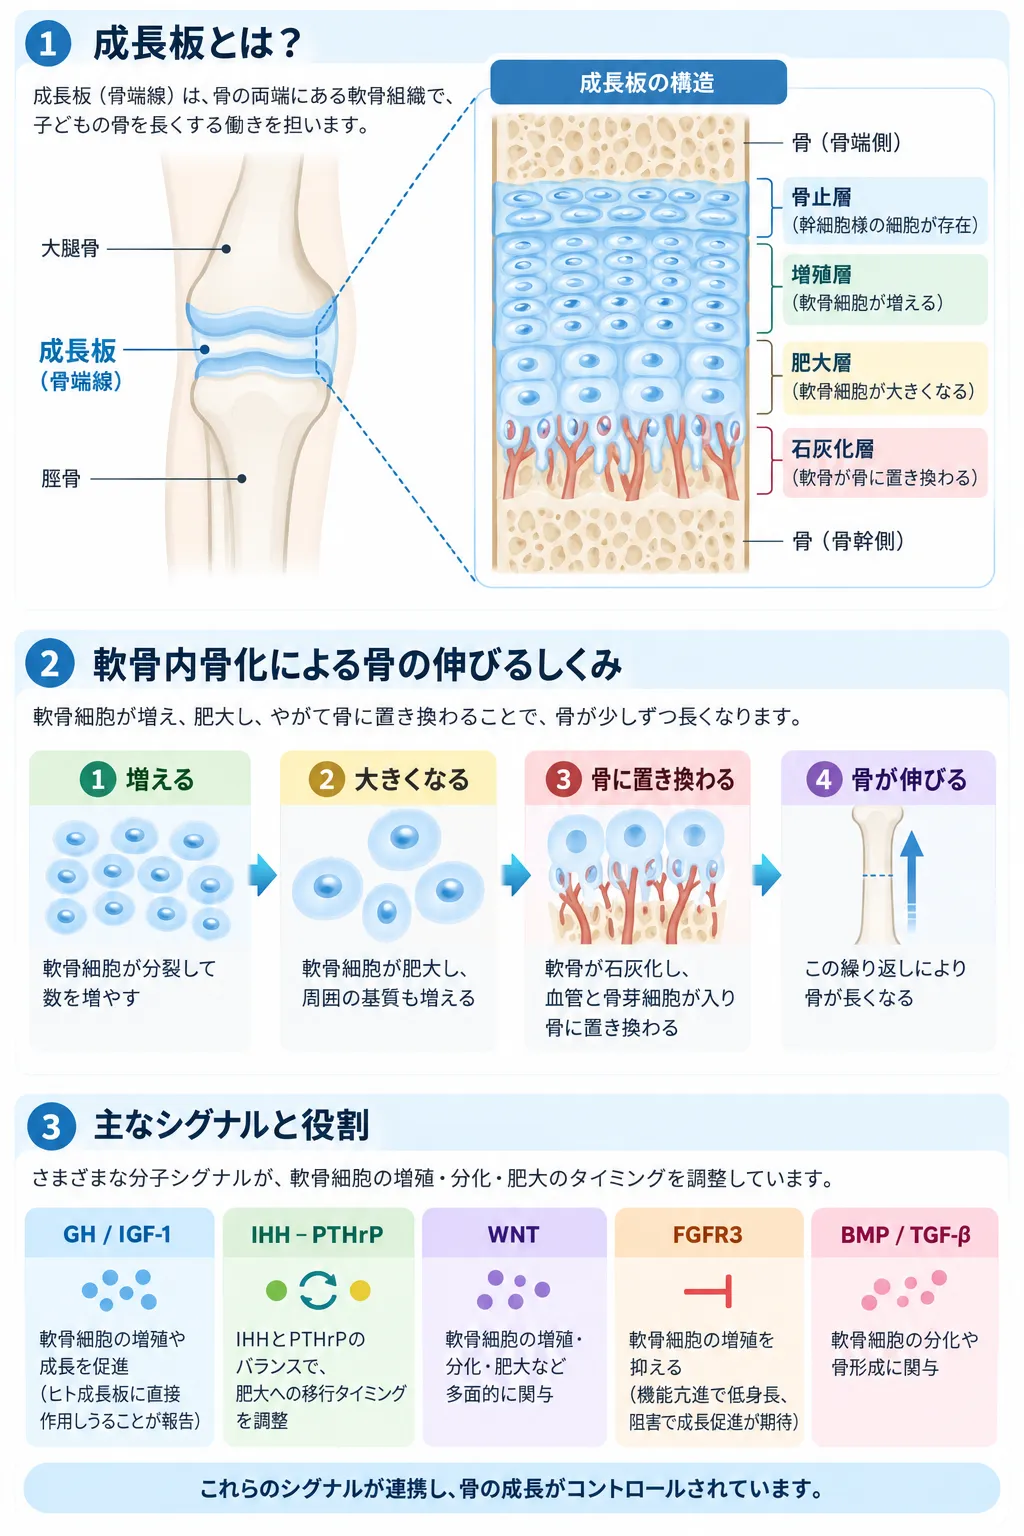
図:成長板の構造と軟骨内骨化による骨の伸長のしくみ。成長板では、軟骨細胞が増殖し、肥大した後、細胞外マトリックスの変化や血管侵入を伴って骨へ置き換えられます。この過程はGH/IGF-1、IHH-PTHrP、WNT、FGFR3、BMP/TGF-βなど複数のシグナルによって調節され、骨の長軸方向への成長につながります。
骨のつくられ方には、大きく2つの道があります。ひとつは、軟骨の「型」を先につくり、それを本物の骨へ置き換えていく軟骨内骨化。もうひとつは、軟骨を経ずに間葉(骨のもとになる細胞のあつまり)から直接骨をつくる膜内骨化です。頭のてっぺんの平たい骨などは膜内骨化でつくられますが、手足の長い骨・背骨・肋骨など、体の骨の大部分は軟骨内骨化でつくられます。成長板は、この軟骨内骨化を出生後も続けて、骨を縦に伸ばし続けるための専用の場所だと考えると分かりやすいです。
💡 用語解説:軟骨内骨化と膜内骨化
軟骨内骨化は「軟骨のひな型を作ってから骨に置き換える」方式、膜内骨化は「軟骨を経ずに直接骨を作る」方式です。骨折治癒でも、軟骨性仮骨を形成する二次治癒では軟骨内骨化が重要な役割を担います。一方、強固な固定下で起こる一次骨癒合では軟骨性仮骨をほとんど介しません。したがって、成長板の仕組みは骨の修復を理解するうえでも重要ですが、すべての骨折治癒が同じ過程をたどるわけではありません。
大切なのは、骨が縦に伸びる量は、細胞が分裂して数を増やすことだけで決まるわけではない、という点です。実際には、成長板の下のほうにある軟骨細胞が著しく大きくふくらむ(肥大する)ことと、そのまわりの土台(マトリックス)をたくさん作ることが、伸びの大きな部分を担っています。細胞が増える、大きくなる、まわりを作り替える──この一連の流れが空間的に並んでいるのが、成長板という組織の特徴です。
🩺 院長コラム【「背が伸びる」を分子で読むということ】
低身長のご相談では、「うちの子は背が伸びますか」という問いをよくいただきます。身長は最終的には遺伝・栄養・ホルモン・骨の状態など多くの要素の総和ですが、その一番奥に、この成長板という小さな軟骨の板があります。臨床遺伝専門医として文献を踏まえると、成長板を「ひとつのエンジン」として眺めると、なぜ特定の遺伝子の変化が身長に影響するのかが見通しやすくなります。
遺伝医学では、「同じ遺伝子でも、変化の性質しだいで結果が変わる」という考え方が重要です。この考え方は、成長板に関わる分子を理解するときにも共通します。背の伸びを単なる数字ではなく仕組みとして捉えることは、原因や検査・治療の選択肢を整理するうえで役立ちます。
2. 成長板の4つの層 ─ 縦断地図で見る軟骨内骨化
成長板を骨端側から骨幹端側へ縦に切って眺めると、役割の違う軟骨細胞が層になって並んでいます。この並びは、単なる見た目の分類ではありません。幹細胞性 → 分裂して増える → 分裂をやめる → 大きくふくらむ → 土台を作り替える → 血管・骨とつながるという「時間の流れ」を、そのまま空間の上に展開したものだと考えられています。まず、その縦断地図を見てみましょう。
古典的な教科書では、この層構造を「静止層・増殖層・肥大層」というシンプルな連続体として説明してきました。実際、増殖している細胞(細胞分裂の目印を持つ細胞)は主に中間の層に集まり、古典的な増殖層とよく一致します[1]。一方で、後で述べるように、いちばん上の静止層が「1種類の細胞のかたまり」ではないことが、近年の研究で分かってきました。ここが、成長板研究のいま最も動いている部分です。
💡 用語解説:肥大(ひだい)軟骨細胞
肥大軟骨細胞とは、成長板の下のほうで大きくふくらんだ軟骨細胞のことです。細胞の体積がぐっと増えること自体が、骨が縦に伸びる大きな原動力になります。また、この細胞はまわりの土台の成分を切り替えたり、血管を呼び込む因子を出したりと、「軟骨から骨への橋渡し役」として重要な働きをします。
縦の並びは「分化の時間軸」そのもの
静止層の細胞が分裂して増殖層の柱をつくり、やがて分裂をやめて肥大し、まわりの土台を作り替えて血管と出会い、骨へと変わる──この順番は、まるでベルトコンベアのように上から下へ進みます。上流の静止層は「未分化さ(幹細胞らしさ)」を保ち、下流にいくほど「骨に近い状態」へと成熟していきます。成長板を理解する第一歩は、この縦の位置=成熟の段階という対応関係をつかむことです。次の章からは、この地図の各段階を、実際に働いている分子とともに見ていきます。
3. 静止層の幹細胞ニッチ ─ 「1種類ではなかった」という最新像
かつて静止層は、「予備の軟骨(reserve cartilage)」として、あまり働いていない受け身の層と見なされがちでした。ところが、細胞に目印をつけて長期間その運命を追いかける実験(系譜追跡/lineage tracing)によって、この層に自分自身を維持しながら下の増殖層へ軟骨細胞を送り出す骨格幹細胞(skeletal stem cell)が存在することが、少なくともマウスで示されました[2]。具体的には、PTHrP(副甲状腺ホルモン関連タンパク質)という因子をつくる静止層の細胞が、この幹細胞としての性質を持つことが報告されました[2]。
さらに、成長板ができあがった後に、細胞の増え方(クローンの広がり方)が大きく切り替わることも示され、静止層が「きちんと組織化された幹細胞のすみか(ニッチ)」として位置づけられるようになりました[3]。ニッチというのは、幹細胞が幹細胞のまま保たれるための特別な環境のことです。造血幹細胞が骨髄という環境の中で守られているのと同じように、成長板の静止層も、軟骨細胞の供給源を守る「畑」のような役割を持っている、というイメージです。
💡 用語解説:系譜追跡(lineage tracing)とニッチ
系譜追跡とは、ある細胞に消えない目印をつけ、その細胞が将来どんな細胞に育っていくかを追う実験手法です。これにより「この細胞は幹細胞だ」「この子孫は骨になった」といったことが分かります。ニッチとは、幹細胞がその性質を保てるように支える周囲の微小環境のことです。成長板では、二次骨化中心という血管に富む構造ができることが、静止層のニッチ形成に関わると考えられています。
ヒトの成長板を細胞レベルで読んだ2026年の研究
このモデルは、ヒトの成長板を一つひとつの細胞レベルで解析する研究によって、さらに細かく描き直されつつあります。2026年に報告されたヒト思春期成長板の網羅的な地図(single-cell/spatialトランスクリプトーム)では、静止層が単一の細胞集団ではなく、性質の異なる二つの幹細胞様の集団を含むことが示されました[1]。ひとつは分裂の少ない静かな状態の集団、もうひとつはPTHrP(PTHLH)と関連づけられる集団で、遺伝子発現の流れ(RNA velocity)から見ると、前者がより「根(root)」に近い上流の状態に位置すると推定されました[1]。
この研究では、これまでマウスで積み上げられてきた「静止層=PTHrP陽性の幹細胞」という単純なモデルが、そのままヒトに当てはまるわけではないことも見えてきました。むしろ「PTHrP陽性の幹細胞のさらに上流に、別の状態の細胞がいる」という階層モデルが示唆されています[1]。加えてこの研究は、成長ホルモン(GH)がこうしたヒトの成長板の幹細胞に直接はたらきうることも報告しており、低身長診療におけるGH治療の作用点を考えるうえでも注目されています[1]。
⚠️ 読み解きのポイント:新しい知見は「古い知見の否定」ではない
「静止層には二つの集団がある」という2026年の報告は、「PTHrP陽性細胞が幹細胞だ」という2018年の発見を否定するものではありません。むしろ、その上流にもう一段階の状態が見つかった、という階層の追加です。研究が進むほど解像度が上がり、単純だった地図に細かい区画が書き足されていく──成長板研究は、いままさにこの段階にあります。
4. IHH–PTHrP ─ 成熟スピードを決める「距離センサー」
成長板には、単独で全体を仕切る「絶対的な主役」はいません。複数のシグナルが役割を分担し、互いに情報をやり取りしながら全体のスピードを決めています。その中でも、成長板の「成熟スピードの調整役」として中心にあるのが、IHH(インディアン・ヘッジホッグ)とPTHrPのペアです。この仕組みの基礎は、1996年の古典的な研究で確立されました[4]。
流れはこうです。前肥大層あたりの軟骨細胞がIHHという信号を出します。このIHHは、離れた場所(関節に近い側)でPTHrPをつくらせます。PTHrPは、静止層〜増殖層の軟骨細胞にはたらいて、細胞を「まだ増える状態」に保ち、肥大への移行を遅らせます[4]。この相互作用により、IHHを産生する前肥大軟骨細胞とPTHrPが作用する未成熟な軟骨細胞との位置関係に応じて、肥大へ移行するタイミングが調節されるフィードバックが働きます。いわば、成長板が成熟の進み具合を空間的に調整する仕組みを備えているようなものです。
💡 用語解説:フィードバックループ
フィードバックループとは、「結果が原因に跳ね返って、全体を一定に保つ」仕組みのことです。エアコンが室温を測って強さを自動調整するのに似ています。IHH–PTHrPは、軟骨細胞が成熟するスピードを測って、速すぎず遅すぎずに保つ調整装置として働きます。ただしIHHには、PTHrPを介さずに直接、細胞の増殖や骨形成にはたらく作用もあるため、「一方向の単純なブレーキ」というより「直接作用+PTHrP経由の間接作用」の合わせ技と理解するのが正確です。
このIHH–PTHrPの回路は、成長板の中でどこまで増殖を続け、どこで肥大へ舵を切るかという「切り替えのタイミング」を司っています。臨床的にも、この経路に関わるPTH1R(PTHrPの受容体)の異常は、ヤンセン型骨幹端軟骨異形成症といった骨の病気につながることが知られています。前肥大層は「ただの中継地点」ではなく、成長板全体の成熟スピードを決める司令塔(シグナルセンター)でもある、という点が重要です。
5. FGFR3 ─ 成長の「分子ブレーキ」
成長板には「アクセル」だけでなく「ブレーキ」もあります。その代表がFGFR3という受容体です。FGFR3を働かなくしたマウスでは、骨が伸びすぎる(過成長する)ことが1996年に示され、FGFR3が軟骨内骨化を負に調節する(抑える)因子であることが明確になりました[5]。つまりFGFR3は、成長板が伸びすぎないよう手綱を引く役割を担っています。
逆に、ヒトでFGFR3が「効きすぎる」タイプの変化(機能獲得型の変異)が起こると、ブレーキが強くかかりすぎて低身長になります。これが、軟骨無形成症(なんこつむけいせいしょう)や、より軽い軟骨低形成症(ハイポコンドロプラジア)、より重い致死性骨異形成症などの原因になります。FGFR3の下流では、MAPK/ERKと呼ばれる信号を中心に、軟骨細胞の増殖や成熟が抑えられます[5]。
💡 「ブレーキを戻す」という発想の治療薬
FGFR3がブレーキで、それが効きすぎて低身長になるなら、ブレーキを少しゆるめれば伸びを取り戻せるのでは、という発想が生まれます。これを実現したのが、ボソリチド(vosoritide)という薬です。ボソリチドはCNP(C型ナトリウム利尿ペプチド)に似せた薬で、FGFR3の下流のMAPK/ERK信号を打ち消す方向にはたらき、軟骨無形成症の子どもの成長速度を上げることが臨床試験で示され、承認されています[11]。成長板の分子回路そのものが、治療の標的になった実例です。効果や適応は年齢や時期によって異なり、治療の判断は必ず主治医とご相談ください。
なお、CNPを受け取る側の受容体をつくるNPR2遺伝子の異常も、骨の伸びに影響して低身長や高身長に関わることが知られています。FGFR3のブレーキと、CNP–NPR2のアクセルは、成長板の中で綱引きをしている関係だとイメージすると分かりやすいです。
6. SOX9とRUNX2 ─ 「軟骨から骨へ」を切り替える二人の指揮者
成長板の中で「いま軟骨として働くのか、それとも骨の側へ進むのか」という細胞の運命を決めているのが、SOX9とRUNX2という二つの転写因子です。転写因子とは、たくさんの遺伝子のスイッチをまとめてオン・オフする「指揮者」のようなタンパク質のことです。
SOX9は、軟骨としてのアイデンティティの中心にある指揮者です。SOX9が働くことで、軟骨の主成分であるII型コラーゲン(COL2A1)などがつくられます。SOX9を失うと、正常な軟骨がそもそも形成されないことが示されており、軟骨づくりに欠かせない因子です[6]。SOX9は、増殖している軟骨細胞が早まって肥大へ進んでしまうのを防ぐ役割も持っています。ヒトでSOX9の働きが半分に減ると、カンポメリック異形成症という骨の病気の原因になります。
対照的にRUNX2は、前肥大から肥大への移行と、骨をつくる細胞(骨芽細胞)の分化に欠かせない指揮者です。RUNX2(旧名Cbfa1)を失ったマウスでは、骨形成が著しく障害されることが1997年に示されました[7]。ヒトでRUNX2の働きが半分に減ると、鎖骨頭蓋異形成症(さこつとうがいいけいせいしょう)という、鎖骨や頭蓋骨の形成に影響が出る病気の原因になります。RUNX2の隣では、MEF2Cという転写因子も肥大への移行を後押しします。
💡 用語解説:転写因子とハプロ不全
転写因子は、多くの遺伝子のスイッチをまとめて操作するタンパク質です。SOX9は「軟骨をつくれ」、RUNX2は「骨をつくれ」という号令を出す指揮者にあたります。ハプロ不全(haploinsufficiency)とは、2本ある遺伝子のうち1本が働かなくなり、残り1本だけでは量が足りず病気になる状態のことです。SOX9やRUNX2のように、量そのものが大事な指揮者では、片方が欠けるだけで骨の発生に影響が出ます。
切り替えは「オン・オフ」ではなく「濃淡の重なり」
大切なのは、SOX9からRUNX2への切り替えが、パチンと切り替わるスイッチではないという点です。実際には、両者の働きが時間的・量的に重なりながら、BMP・IHH・WNTといった周囲のシグナルの入力に応じて、少しずつバトンが渡されていきます。BMPシグナルは、軟骨づくりから肥大・骨形成まで幅広い段階を後押しする「文脈しだいの調整役」で、SOX9とRUNX2の両方に、時期によって異なる影響を与えます[9]。
同じように、WNT/β-カテニンも一筋縄ではいきません。発生の初期には軟骨づくりを抑えて骨側の運命を促す一方、成長板ができあがった後の軟骨細胞の成熟には、適切な強さのWNT活性が必要になります。つまりBMPもWNTも、「軟骨形成を促進する/抑制する」と一語で片づけられず、時期・場所・強さによって異なる結果になりうる、という点が重要です[12]。
7. 血管侵入とECMの切替え ─ 軟骨が骨へ変わる現場
成長板のいちばん下では、軟骨がいよいよ骨へと置き換わります。この「軟骨→骨」の変換は、単に色が変わるようにスッと起こるわけではありません。実際には、土台(マトリックス)の成分を切り替える → 溶かして道をあける → 血管を呼び込む → 細胞を集める → 骨の土台を敷くという、いくつもの段階を踏んでいます。まず、その流れを図で見てみましょう。
土台の切り替えは、コラーゲンの種類の変化として現れます。増殖層のあたりではII型コラーゲン(COL2A1)が豊富な「軟骨らしい土台」ですが、肥大層になるとX型コラーゲン(COL10A1)が目印として現れます。そして、この土台をMMP(マトリックスメタロプロテアーゼ)という「はさみ」の役割の酵素が切り開いていきます。とくにMMP13は肥大層の土台の作り替えに重要で、この関係はDDR2–MMP13のカスケードとしても研究されています。
ここで主役級の働きをするのがVEGFという血管を呼び込む因子です。1999年の研究では、VEGFの働きを止めると血管の侵入が強く抑えられ、肥大した軟骨の層が広がったまま、骨(骨梁)がうまく作られなくなることが示されました[8]。つまりVEGFは、単に「血管を増やす」だけでなく、軟骨から骨への変換を時間的にそろえる(同期させる)因子だということです[8]。血管とともに、軟骨を溶かす細胞や骨をつくる細胞(骨芽細胞)が入り込み、軟骨は本物の骨へと置き換わっていきます。
💡 用語解説:X型コラーゲンは「目印」であって「原因」とは限らない
X型コラーゲン(COL10A1)は、肥大軟骨細胞を見分けるための非常に便利な目印(マーカー)です。ただし、「肥大の目印である」ことと、「肥大や骨化に絶対に必要な部品である」ことは、同じ意味ではありません。ヒトiPS細胞を使った2023年の研究では、X型コラーゲンを失っても、肥大への分化や軟骨内骨化そのものは進みうる(=必須ではない可能性がある)ことが示されました[10]。「COL10A1が出る=肥大」と「COL10A1が肥大を引き起こす」を混同しないことが、この分野を正しく読むコツです。
8. 肥大軟骨細胞の最終運命 ─ 旧モデルと新モデル
成長板の下で大きくふくらんだ肥大軟骨細胞は、最後にどうなるのでしょうか。これは、いまも研究が続いている興味深い問いです。
古典的なモデルでは、こう考えられていました。肥大軟骨細胞はアポトーシス(計画された細胞死)で姿を消し、そこへ血管とともに別系統の骨芽細胞のもとになる細胞が入り込んで、骨をつくる──という「バトンタッチ」型の説明です。
ところが、系譜追跡の研究が進むと、少なくとも一部の肥大軟骨細胞、あるいはその子孫が、そのまま骨芽細胞や骨細胞の系列に寄与することを支持するデータが積み上がってきました。つまり、「消えて入れ替わる」だけでなく、「一部は自分が骨の細胞に変わっていく」という道もある、ということです。ただし、これが直接の変身なのか、いちど未分化に近い状態を経てから変わるのか、どの程度の割合の細胞がこの道を通るのかは、モデルや条件によって差が残っており、完全には決着していません。
⚠️ 読み解きのポイント:「全部が骨芽細胞になる」ではない
この話題は、「肥大軟骨細胞はすべて骨芽細胞に変身する」と単純化して受け取られがちですが、正確ではありません。現時点で言えるのは、一部の肥大軟骨細胞の子孫が骨をつくる系列に寄与しうること、そしてその移行の詳しい経路はまだ研究中であるということです。断定を避けて幅を持って理解しておくのが、現在の文献に沿った読み方です。
9. 遺伝子と病気のつながり ─ どの層が壊れると何が起こるか
成長板を「層ごとの役割」として理解すると、遺伝性の低身長や骨系統疾患が、どの段階の破綻から生じているのかが見通しやすくなります。同じ「低身長」でも、ブレーキが強すぎるタイプ、軟骨の土台そのものが弱いタイプ、指揮者が足りないタイプ、と原因の階層はさまざまです。主な対応関係を表にまとめます。
🦴 成長板の各段階と、関連する遺伝子・疾患
| 関わる段階 | 遺伝子・分子 | 関連する主な疾患 |
|---|---|---|
| 増殖のブレーキ | FGFR3 | 軟骨無形成症・軟骨低形成症・致死性骨異形成症 |
| 成熟スピード調整 | PTH1R(PTHrP受容体) | ヤンセン型骨幹端軟骨異形成症 |
| 軟骨の指揮者 | SOX9 | カンポメリック異形成症 |
| 軟骨の土台(II型) | COL2A1 | 先天性脊椎骨端異形成症・スティックラー症候群1型 ほか |
| 肥大層の土台(X型) | COL10A1 | シュミット型骨幹端軟骨異形成症 |
| 骨の指揮者 | RUNX2 | 鎖骨頭蓋異形成症 |
※上記は代表例です。実際には各遺伝子が複数の疾患に関わり、1つの疾患に複数の遺伝子が関わることもあります。
こうして並べると、成長板に関わる遺伝性の低身長は、土台(コラーゲン)・シグナル(IHH/PTHrP・FGFR3)・指揮者(SOX9・RUNX2)という複数の階層のどこかがつまずくことで起こる、という全体像が見えてきます。たとえば、先天性脊椎骨端異形成症のようにコラーゲンの土台の問題で起こるものもあれば、軟骨無形成症のようにシグナルのブレーキが効きすぎて起こるものもあります。
用語と臨床のつながり ─ 遺伝診療の視点から
成長板は基礎生物学のテーマですが、遺伝診療とも地続きです。お子さんの身長の伸びが気になるとき、原因が成長板のどの段階にあるのかを整理することは、次にどんな検査や相談が役立つのかを考える手がかりになります。原因遺伝子を幅広く調べる骨系統疾患のNGS遺伝子パネル検査や、低身長の遺伝子パネル検査は、こうした「どの階層の問題か」を調べる選択肢のひとつです。骨端(成長板)の異形成に的をしぼった多発性骨端異形成症のパネルもあります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合うのは、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。診断がつかない期間は、ご本人にもご家族にも負担の大きいものです。当院では中立の立場で判断材料を整理し、正確な診断に基づいて選択肢を検討できるよう情報提供を行います。なお仲田院長は成人を診療する臨床遺伝専門医であり、小児期発症の疾患については、直接の主治医としてではなく、遺伝学的なメカニズムを整理する専門的な立場から情報提供を行います。
10. よくある誤解
誤解①「身長は細胞が増える数だけで決まる」
細胞分裂だけでなく、肥大軟骨細胞が大きくふくらむことと、まわりの土台をたくさん作ることが、骨が縦に伸びる大きな原動力です。数だけでなく「体積」と「土台」も伸びを支えています。
誤解②「成長板を仕切る主役の遺伝子が1つある」
単独の「主役経路」はありません。IHH–PTHrP、FGFR3、BMP、WNT、SOX9、RUNX2などが連携して綱引きしながらスピードと運命を決めています。
誤解③「COL10A1が出れば骨化に必須」
X型コラーゲンは肥大層の便利な目印ですが、それが無くても肥大分化や骨化が進みうることが示されています。「目印」と「必須の部品」は別物です[10]。
誤解④「静止層はただの予備で働いていない」
静止層は受け身の予備ではなく、軟骨細胞を供給する幹細胞のすみか(ニッチ)です。近年は、複数の幹細胞様の集団が層をなすことも分かってきました[1]。
まとめ ─ 成長板は「静的な軟骨板」ではなく「動く器官」
成長板は、「4つの層に分かれた軟骨のすき間」とだけ説明すると、その本質を見落としてしまいます。実際には、静止層の幹細胞の階層、IHH/PTHrP・FGFR3・BMP/WNTというシグナルの回路、SOX9からRUNX2への指揮者の切り替え、II型からX型・MMP13へと進む土台の作り替え、VEGFに導かれる血管侵入、そして一部の肥大軟骨細胞が骨の細胞へ寄与しうる可能性──これらが一つのシステムとしてつながった、自己更新する幹細胞ニッチと、軟骨‐血管‐骨の変換装置が融合した動的な器官です。
2026年時点の研究は、成長板を「静的な軟骨板」ではなく、こうした動く器官として理解する方向へ収束しつつあります[1]。マウスで積み上げられた基本モデルがヒトでどこまで当てはまるのか、静止層の幹細胞の階層はどうなっているのか、肥大軟骨細胞の最終運命はどこまで骨に寄与するのか──残された問いはまだ多く、ヒトの成長板を時系列で読み解く研究がこれからの鍵になります。身長の伸びという身近な現象の奥には、これだけ精緻な分子の連携が隠れているのです。
🏥 成長や骨の遺伝性疾患に関わる検査のご相談
お子さまの成長や骨系統疾患、遺伝子検査の結果の意味について
お考えの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
よくある質問(FAQ)
Q1. 成長板(骨端線)とは何ですか?
成長板(せいちょうばん/骨端線)は、手足の長い骨などの端の近くにある、うすい軟骨の板です。ここで軟骨がつくられ、それが骨に置き換わることで、骨が縦に長く伸びていきます。いわば骨の「成長エンジン」で、子どもの身長が伸びる主な現場です。ヒトでは思春期の終わりごろに成長板が閉じ、身長の伸びが止まります。
Q2. 軟骨内骨化と膜内骨化はどう違うのですか?
軟骨内骨化は、まず軟骨で骨の「型(鋳型)」をつくり、それを少しずつ本物の骨に置き換えていく作り方です。手足の長い骨・背骨・肋骨など、体の骨の大部分がこの方式でつくられます。一方、膜内骨化は軟骨を経ずに、骨のもとになる細胞から直接骨をつくる方式で、頭のてっぺんの平たい骨などがこれにあたります。
Q3. 成長板が壊れると、どんな病気になりますか?
成長板の各段階を支える遺伝子やシグナルが乱れると、低身長や骨系統疾患が起こります。たとえばFGFR3が効きすぎると軟骨無形成症、SOX9の働きが半分になるとカンポメリック異形成症、RUNX2の働きが半分になると鎖骨頭蓋異形成症などが知られています。同じ「低身長」でも、原因の階層はさまざまです。
Q4. 成長板の研究で最近わかってきたことは何ですか?
成長板のいちばん上にある静止層が、これまで考えられていたような「1種類の細胞のかたまり」ではなく、性質の異なる複数の幹細胞様の集団を含むことが、ヒトの成長板を細胞レベルで解析する研究で示されつつあります。また、成長ホルモンがこうしたヒトの成長板の細胞に直接はたらきうることも報告されています。これらは、これまでの知見を否定するのではなく、より細かい階層を書き足すものです。
Q5. 成長板の仕組みは、身長の治療とどう関係しますか?
成長板の分子回路は、治療の作用点でもあります。たとえば軟骨無形成症に対しては、FGFR3の下流の信号を打ち消す方向にはたらくボソリチドという薬が、成長速度を上げることが臨床試験で示され、承認されています。効果や適応は年齢や時期によって異なり、治療の判断は必ず主治医とご相談ください。ここでは「成長板の仕組みが治療の標的になる」という一例として紹介しています。
参考文献
- [1] Chu NTL, Dregval O, Zaman F, et al. A transcriptional atlas of the pubertal human growth plate reveals two populations of stem cells and direct effect of growth hormone. Sci Transl Med. 2026;18(845):eadw3590. doi:10.1126/scitranslmed.adw3590. [PubMed 41984930]
- [2] Mizuhashi K, Ono W, Matsushita Y, et al. Resting zone of the growth plate houses a unique class of skeletal stem cells. Nature. 2018;563(7730):254-258. doi:10.1038/s41586-018-0662-5. [PubMed 30401834]
- [3] Newton PT, Li L, Zhou B, et al. A radical switch in clonality reveals a stem cell niche in the epiphyseal growth plate. Nature. 2019;567(7747):234-238. doi:10.1038/s41586-019-0989-6. [PubMed 30814736]
- [4] Vortkamp A, Lee K, Lanske B, Segre GV, Kronenberg HM, Tabin CJ. Regulation of rate of cartilage differentiation by Indian hedgehog and PTH-related protein. Science. 1996;273(5275):613-622. doi:10.1126/science.273.5275.613. [PubMed 8662546]
- [5] Deng C, Wynshaw-Boris A, Zhou F, Kuo A, Leder P. Fibroblast growth factor receptor 3 is a negative regulator of bone growth. Cell. 1996;84(6):911-921. doi:10.1016/S0092-8674(00)81069-7. [PubMed 8601314]
- [6] Bi W, Deng JM, Zhang Z, Behringer RR, de Crombrugghe B. Sox9 is required for cartilage formation. Nat Genet. 1999;22(1):85-89. doi:10.1038/8792. [PubMed 10319868]
- [7] Komori T, Yagi H, Nomura S, et al. Targeted disruption of Cbfa1 results in a complete lack of bone formation owing to maturational arrest of osteoblasts. Cell. 1997;89(5):755-764. doi:10.1016/S0092-8674(00)80258-5. [PubMed 9182763]
- [8] Gerber HP, Vu TH, Ryan AM, Kowalski J, Werb Z, Ferrara N. VEGF couples hypertrophic cartilage remodeling, ossification and angiogenesis during endochondral bone formation. Nat Med. 1999;5(6):623-628. doi:10.1038/9467. [PubMed 10371499]
- [9] Wu M, Wu S, Chen W, Li YP. The roles and regulatory mechanisms of TGF-β and BMP signaling in bone and cartilage development, homeostasis and disease. Cell Res. 2024;34(2):101-123. doi:10.1038/s41422-023-00918-9. [PubMed 38267638]
- [10] Kamakura T, Jin Y, Nishio M, et al. Collagen X Is Dispensable for Hypertrophic Differentiation and Endochondral Ossification of Human iPSC-Derived Chondrocytes. JBMR Plus. 2023;7(5):e10737. doi:10.1002/jbm4.10737. [PMC10184020]
- [11] Savarirayan R, Irving M, Bacino CA, et al. C-Type Natriuretic Peptide Analogue Therapy in Children with Achondroplasia. N Engl J Med. 2019;381(1):25-35. doi:10.1056/NEJMoa1813446. [PubMed 31269546]
- [12] Tiffany AS, Harley BAC. Growing Pains: The Need for Engineered Platforms to Study Growth Plate Biology. Adv Healthc Mater. 2022;11(22):e2200471. doi:10.1002/adhm.202200471. [PMC]






