

目次
📍 クイックナビゲーション
細胞の中には、「微小管(びしょうかん)」という細い管が張りめぐらされ、細胞が分裂したり、形を変えたり、中身を運んだりするときの「足場」や「レール」として働いています。この足場を必要な場所で正確に切りそろえるハサミの役目を果たすのが、微小管切断酵素「カタニン(katanin)」です。KATNB1遺伝子は、そのカタニンの働きを時間的・空間的にコントロールする調節役(p80サブユニット)の設計図です。この記事では、KATNB1が脳をつくる過程や精子形成でどんな役割を担い、その働きが失われるとなぜ重い脳の病気(滑脳症LIS6)が起こるのか、さらに大人のがんとの意外なつながりまでを、遺伝専門医の視点でやさしく解説します。
Q. KATNB1遺伝子とは何をする遺伝子ですか?まず結論だけ知りたいです
A. KATNB1は、細胞骨格の「微小管」を切る酵素カタニンの調節サブユニット(p80)をつくる遺伝子です。カタニンは、切る力を持つ触媒サブユニット(p60)と、その働きを必要な場所へ導く調節サブユニット(p80)が組んだ複合体で、KATNB1はこの「いつ・どこで切るか」を決める司令塔の役割を果たします。両方の遺伝子コピーの働きが失われると、脳が小さく表面が平らになる重い病気「滑脳症6(LIS6)」が起こります。一方、大人の組織でKATNB1が過剰に働くと、がん細胞が動きやすくなり、進行や転移に関わることが報告されています。
- ➤正体 → 微小管切断酵素カタニンの調節サブユニット「p80」をつくる遺伝子。第16染色体長腕(16q21)に位置する
- ➤おもな働き → 切る酵素p60(KATNA1)と組んで複合体をつくり、中心体や紡錘体など「切るべき場所」に酵素を運ぶ
- ➤脳づくり → 神経幹細胞の分裂の向きを調整し、ヒトの大きな大脳皮質を築く土台になる
- ➤病気 → 両アレルの機能喪失で小頭症を伴う滑脳症(LIS6・常染色体潜性遺伝)。精子形成にも重要で、動物モデルではKATNB1欠損による男性不妊が示されている
- ➤がん → 過剰発現は肺がん・乳がんなどで進行や転移と関連すると報告されている
🧬 KATNB1の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. KATNB1とは ─ 微小管を切る酵素の「司令塔」
細胞の中の微小管は、α(アルファ)チューブリンとβ(ベータ)チューブリンという部品がつながってできた中空の管です。この管は、細胞が分裂するときの紡錘体(ぼうすいたい)をつくり、細胞の移動や物質輸送、細胞の形の維持まで、あらゆる基本的な営みを支えています。ところが、必要な場面で微小管を「増やす」「短くする」「別の場所へ移す」といった大掛かりな組み替えをするには、いったん切る作業が欠かせません。その切断を担うのが、微小管切断酵素カタニンです。
カタニンは、ひとつのタンパク質ではなく、2種類のサブユニットが組んだ複合体です。ひとつは実際に切る力を持つ60 kDa(キロダルトン)の触媒サブユニット(p60)で、KATNA1遺伝子がつくります。もうひとつが、複合体の居場所や活性をコントロールする80 kDaの調節サブユニット(p80)で、これをつくるのがこの記事の主役、KATNB1遺伝子です。KATNB1がつくるp80は、単独では微小管を切る力を持ちません。しかし、切る酵素p60を「いつ・どこで働かせるか」という空間的・時間的な制御を担う、いわばマスターレギュレーター(司令塔)として機能します[1]。
💡 用語解説:微小管とチューブリン
微小管は、細胞の中に張りめぐらされた「レール兼足場」です。チューブリンというブロックが積み重なって管になり、必要に応じて伸びたり縮んだりします。細胞分裂のときは染色体を引っ張る紡錘体になり、神経細胞では突起(軸索)を支えます。カタニンは、この管をハサミのように切って、部品を作り直したり配置を変えたりする役目を担っています。
KATNB1という名前には、「KAT」「LIS6」「p80 katanin」といった別名があります。このうち「LIS6」は、後で詳しく述べる病気(滑脳症6)の原因遺伝子であることに由来します。遺伝子は第16番染色体の長腕(16q21)に位置しています[3]。近年の研究で、KATNB1が単なる酵素の脇役ではなく、脳の形成・精子づくり・一次線毛を介した信号伝達、さらにはがんの進行まで、それぞれ独立した不可欠な役割を持つことが明らかになってきました[1][2]。
2. 分子のかたちと、p60との複合体づくり
KATNB1がつくるp80タンパク質は、大きく3つの領域に分かれた、進化的によく保存されたかたちをしています。N末端(分子の先頭側)には「WD40リピート」と呼ばれる、6〜7枚の羽根が輪になったような構造があり、これが複合体を中心体や紡錘体極といった「切るべき現場」へ運ぶ道案内の役目を果たします。中央には柔らかいリンカー(つなぎ)領域があり、C末端(末尾側)には、切る酵素p60としっかり結合するための保存されたヘリックス(らせん)の束があります[1]。
p60とp80がどのように手をつなぐのかは、X線結晶構造解析という手法で分子レベルまで解き明かされています。切る酵素p60の先頭にある「MITドメイン」と、p80の末尾にある「C末端ドメイン(CTD)」が、1対1でぴったりと噛み合って強固な複合体をつくります。この結合には、両者の間で保存された特定のアミノ酸どうしの電気的な引き合いが関わっていることが分かっています[4]。研究では、この複合体がさらに2組つながった「ヘテロ四量体」の立体構造も報告されています[5]。
重要なのは、切る酵素p60は単独でも微小管切断活性を持つ一方、KATNB1がつくるp80との複合体形成によって、細胞内での局在や微小管への結合、切断活性が大きく調節されるという点です。p80は、p60を必要な場所へ導くと同時に、微小管への結合力を大きく高める働きを持ちます[1]。つまりKATNB1は、切る力そのものは持たないものの、「切る酵素をどこに配置し、どれだけ強く微小管に取りつかせるか」を決める、複合体の要(かなめ)なのです。
🧩 カタニン複合体の組み立て
KATNA1(p60)
切る酵素(触媒)
MIT|AAA+ ATPase
KATNB1(p80)
司令塔(調節)
WD40|C末端ドメイン
カタニン複合体
現場に運ばれ
微小管を切る
p60は切る力を、p80は「どこで切るか」の道案内を担当します。
3. 微小管を切るしくみと、切る場所の選び方
カタニンは、AAA+(トリプルエー・プラス)ATPアーゼと呼ばれるタンパク質の仲間です。これは、ATP(細胞のエネルギー通貨)を分解して得た力を、物を動かす機械的な仕事に変える分子機械です。微小管を切るときには、複数のカタニンが微小管の上に集まってリング状に組み上がり、その中心の穴にチューブリンの「しっぽ」(C末端の酸性テール)を引き込みます。そしてATPを分解する力で機械的に引っ張り、微小管の壁からチューブリンを引き抜いて管を壊します[6]。
構造生物学の研究では、カタニンが切断の実行時に、右巻きのゆるいらせん(オープンスパイラル)から閉じた輪(クローズドリング)へと、ダイナミックに立体構造を変えていく様子がとらえられています[6]。この形の切り替えが、微小管を引きちぎる「力の一撃」を生み出すと考えられています。KATNB1がつくるp80は、切る酵素p60が不用意に集まって暴走するのを抑えつつ、必要な現場では微小管への結合力を一気に高めるという、絶妙な調整役を担っています。
紡錘体極での働き ─ ASPMとの連携
細胞分裂のとき、染色体を両側へ引き分ける紡錘体の「極(きょく)」では、微小管の後ろ端(マイナス端)の動きを精密に管理する必要があります。ここでカタニンは、小頭症に関わるタンパク質として知られるASPMと複合体をつくって働きます。X線結晶構造解析により、KATNA1とKATNB1がつくるヘテロ二量体が、ASPMの中の保存された配列と直接結合することが示されています[7]。このASPM–カタニン複合体は、微小管のマイナス端の成長を抑えたり、微小管を切ったりして、紡錘体極から微小管を切り離す「ポールワードフラックス」と呼ばれる流れを生み出し、染色体の正しい分配を支えます[7]。この連携は、紡錘体極への局在を制御するWDR62など、他の小頭症関連タンパク質とも重なり合っています。
4. 脳をつくる働き ─ 神経幹細胞の分裂の向きを決める
ヒトの大きな大脳皮質は、胎児期に神経のもとになる細胞(神経前駆細胞)が、増えるタイミングと分化するタイミングを精密に調整することで築かれます。この過程を大脳皮質形成(corticogenesis)といい、KATNB1はここで中心的な役割を担う遺伝子のひとつです。
脳室に面した場所にある頂端放射状グリア細胞(aRG)は、脳づくりの初期には左右対称に分裂して自分自身のコピーを増やし、幹細胞のプールを大きくします。その後、一方は幹細胞のまま残り、もう一方は神経細胞などへ分化する「非対称分裂」へと切り替わります。この対称分裂と非対称分裂のどちらになるかを物理的に左右するのが、分裂紡錘体の向き(スピンドルの配向)です。KATNB1は、前述のASPMやWDR62、NuMA、細胞質ダイニンなどと協力して紡錘体極に集まり、細胞表面へ伸びる微小管を適切に係留することで、この向きを整えます[7]。
KATNB1の働きが失われると、紡錘体の向きが乱れ、分裂の面が傾きます。その結果、対称分裂が維持できなくなって非対称分裂へ偏り、幹細胞のプールが早く枯れてしまいます。患者さんに由来する細胞や、ゼブラフィッシュ・ショウジョウバエのモデルでは、KATNB1に相当する遺伝子を失うと、紡錘体の異常、中心体の数の異常、細胞周期の遅れが起こり、最終的につくられる神経細胞の数が大きく減ることが確認されています[1]。これが、後で述べる小頭症の直接の原因になります。
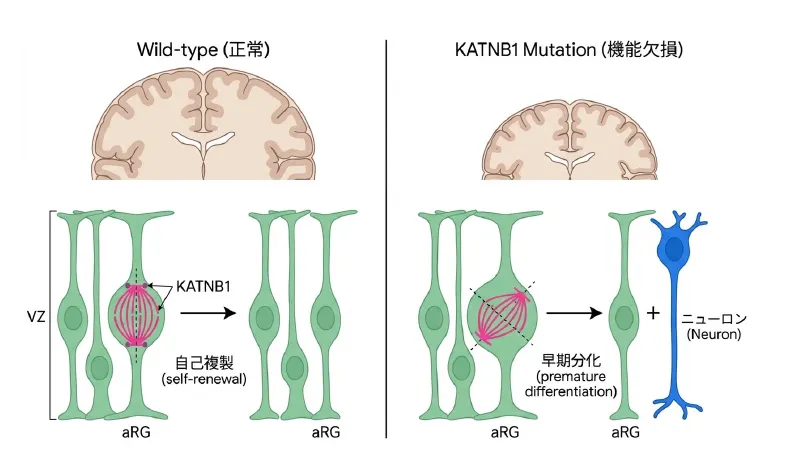
上の図は、KATNB1が神経幹細胞の自己複製を支える仕組みと、機能欠損によって小頭症につながる過程を模式的に示しています。左の正常な状態では、脳室帯(VZ)にある頂端放射状グリア細胞(aRG)の分裂紡錘体が適切な向きに保たれ、自己複製によって神経幹細胞の集団を維持できます。一方、右のKATNB1機能欠損では紡錘体の配向が乱れ、aRGが幹細胞として残る自己複製よりも早期の分化へ傾きます。その結果、発生の早い段階で神経幹細胞のプールが減少し、その後に生み出せるニューロンの総数が少なくなることが、著明な小頭症につながると考えられています[1]。図はこの複雑な発生過程を、正常時とKATNB1機能欠損時の違いとして簡略化して表したものです。

院長コラム:なぜ「切るハサミ」が脳の大きさを決めるのか
脳の大きさは、生まれる前に幹細胞が「あと何回、自分をコピーできるか」でおおよそ決まります。分裂の向きがわずかに傾くだけで、幹細胞を残せず早く分化に回ってしまい、最終的な神経細胞の総数が大きく変わります。微小管を切るハサミの調節役であるKATNB1が、分裂の向きという一見地味な工程を通じて脳の規模を左右している——ここに、細胞骨格の分子と脳の形とがまっすぐつながる面白さがあります。
5. 一次線毛とSonic Hedgehog信号の調整
KATNB1の働きが失われると、細胞分裂の異常だけでなく、中心小体(中心体を構成する小さな筒)のつくられ方にも異常が出ます。KATNB1を失ったマウスの細胞では、中心小体が過剰に複製され、本来は細胞に1つのはずの「母中心小体」が複数できてしまいます。これに伴い、細胞の表面に一次線毛(いちじせんもう)が過剰に形成されます[2]。
一次線毛は、細胞の「アンテナ」として、外から届く成長のシグナルを受け取るハブです。特に胎児期の神経系の形づくりでは、Sonic Hedgehog(ソニック・ヘッジホッグ、Shh)という信号伝達経路がきわめて重要です。KATNB1の欠損によって生じた、数が多く形も異常な一次線毛は、かえってShh信号をうまく受け取れず、下流の働きを弱めてしまいます。KATNB1を完全に失ったマウス胚では、Shh信号の乱れを反映して、脳が左右に分かれない全前脳胞症(ぜんぜんのうほうしょう)などの重い脳の異常がみられます[2]。線毛を介したShh信号の不全は、細胞増殖をさらに停滞させ、重篤な脳の奇形の分子的な土台になっていると考えられています。
💡 用語解説:一次線毛と「多ければよい」わけではない理由
一次線毛は、細胞の表面から1本だけ突き出た小さなアンテナで、外の信号を受け取る場所です。数が多ければ信号をよく受け取れそうに思えますが、実際は逆です。1細胞に1本という「正しい配置」があってはじめて信号が整い、数や形が乱れると、かえって受け取りが悪くなります。KATNB1の欠損では、この配置の秩序が崩れる点が問題になります。
6. 精子形成での役割 ─ 男性の生殖機能を支える
KATNB1は脳神経系だけでなく、精子形成(spermatogenesis)にも欠かせません。精子づくりは、減数分裂、核の凝縮、先体(せんたい)の形成、尾部(鞭毛)の伸長など、微小管ネットワークの大がかりな組み替えを伴う複雑な過程です。マウスを使った研究では、KATNB1が精巣で3種類すべてのカタニン触媒サブユニット(KATNA1・KATNAL1・KATNAL2)の働きをまとめる「マスターレギュレーター」として機能することが示されています[9]。
この研究では、精子のもとになる細胞からKATNB1を完全に失わせると、正常な精子がほとんどつくれなくなることが報告されています。KATNB1は、減数分裂での紡錘体の組み立てや染色体の整列、精子の頭部を形づくる「マンシェット」と呼ばれる一時的な微小管の構造の組織化、先体の形成、鞭毛の組み立てなど、精子づくりの多くの段階で必要とされます[9]。少なくとも動物モデルでは、その働きが損なわれると精子の形や運動性が大きく障害され、男性不妊につながることが示されています。ヒトにおけるKATNB1病的バリアントと男性不妊の関係については、今後さらに臨床的な検証が必要です。
7. 小頭症を伴う滑脳症(LIS6)
KATNB1遺伝子の両方のコピー(両アレル)に機能を失う変化がそろうと、小頭症を伴う滑脳症6(LIS6、OMIM 616212)という、非常に重い大脳皮質の形成異常が起こります。この病気は、2,000人を超える大脳皮質形成異常の子どもたちを対象としたエクソーム解析によって、KATNB1の変異が原因として同定されました[1]。遺伝形式は常染色体潜性(劣性)遺伝で、報告された多くは血縁結婚のある家系でした[3]。
💡 用語解説:滑脳症と両アレルの機能喪失
滑脳症(かつのうしょう)とは、本来はしわ(脳回)に富むはずの脳の表面が、平らに近くなってしまう先天性の病気です。遺伝子は父由来・母由来の2つのコピーを持っており、常染色体潜性(劣性)遺伝では、両方のコピーがそろって働かなくなって初めて症状が出ます。片方だけの人(保因者)は、ふつう症状が出ません。同じ変化が両方にそろう場合だけでなく、異なる2種類の変化を1つずつ持つ複合ヘテロ接合でも発症します。
LIS6の特徴 ─ ふつうの滑脳症との違い
滑脳症にはいくつもの原因遺伝子があります。よく知られるLIS1(PAFAH1B1)による古典的な滑脳症では、脳の体積そのものは比較的保たれることが多いのが特徴です。これに対しKATNB1によるLIS6は、滑脳症(脳のしわが乏しい状態)と極度の小頭症を同時に合併する点が大きな特徴です[2]。これは、KATNB1が「神経細胞を正しい場所へ移動させる」働きだけでなく、「そもそも神経細胞を十分な数だけつくる」働きの両方に関わっているためと考えられます。
報告されているLIS6の主な症状や画像所見には、次のようなものがあります。重度の小頭症と脳のしわの単純化(無脳回症・厚脳回症)、脳梁(左右の脳をつなぐ神経の束)の低形成や欠損、重度から極度の知的障害と運動発達の遅れ、乳児期からの難治性のてんかん、乳児期の筋緊張低下から成長に伴う痙縮(けいしゅく)への移行などです[3]。また一部の患者さんでは、KATNB1の変異に伴って、多指症・合指症や歯の異常など、一次線毛の異常に関わる病気に似た特徴を示すことも報告されています[2]。
なお、KATNB1関連LIS6は、著明な小頭症と滑脳症を併せ持つため、極小脳症(マイクロリスエンセファリー)の表現型を示します。近年は、患者さんの細胞からつくったiPS細胞を用いた脳オルガノイド(試験管内で育てる小さな脳の組織)による研究も進み、生体外で病態を調べる試みが行われています。DCXやTUBA1Aなどのチューブリン異常症関連遺伝子とあわせて、大脳皮質形成異常という大きな枠組みの中で理解されています。
8. がんとの関わり ─ 「過剰に働く」ことの問題
KATNB1の医学的な意味は、脳の病気にみられるような「働きが失われる」文脈にとどまりません。大人の組織では、KATNB1の高発現が悪性腫瘍の進行や転移と関連することが報告されています。KATNB1の高発現は、微小管動態や細胞運動に影響し、がんの進展・転移に関与する可能性が研究されています。
カタニンをつくる遺伝子群を横断的にまとめた総説では、非小細胞肺がん(NSCLC)において、KATNA1やKATNB1の発現が高いことが、リンパ節転移や進行した病態と関連することが指摘されています[13]。同じ総説では、乳がんでもKATNB1の高い発現が、進行した病期やリンパ節転移、生存期間の短縮と関連する傾向が報告されています[13]。乳がんを対象とした研究では、KATNB1(katanin p80)の発現がリンパ節転移や全生存期間と関連することが示されています[11]。また、乳頭状甲状腺がん(PTC)でも、良性の結節性甲状腺腫と比べてカタニンのp60・p80が高く発現しており、両者を見分けるバイオマーカーとしての可能性が報告されています[12]。
MALAT1/miR-328/KATNB1という調節の連鎖
がん細胞がどのようにしてKATNB1を過剰に働かせるのか、その道すじのひとつとして、長鎖ノンコーディングRNA(lncRNA)であるMALAT1と、マイクロRNA(miR-328)を介した調節ネットワークが報告されています[10]。
通常、miR-328はKATNB1のmRNAに結合してその翻訳を抑え、過剰な微小管切断を防ぐブレーキとして働きます。ところが、肺がんなどで高く発現するMALAT1は、miR-328を吸着する「スポンジ」のように振る舞い、miR-328を隔離してしまいます。その結果、ブレーキがはずれてKATNB1が過剰に働き、がん細胞の性質が高まると考えられています。135人の肺がん患者を対象とした研究では、MALAT1の発現が低い特定の遺伝子型(GGGTハプロタイプ)を持つ人では、これに連動してKATNB1の発現も低く、リンパ節や脳転移巣が小さいことが観察されています[10]。この結果は、MALAT1/miR-328/KATNB1という調節の連鎖が、がんの転移に関わる可能性を示しています。
院長コラム:同じ遺伝子が「足りない病気」と「多すぎる問題」を起こす
KATNB1は、生まれつき働きが足りないと脳の重い病気(LIS6)を、大人になって過剰に働くとがんの進行を——と、一見正反対の場面に顔を出します。これは矛盾ではなく、「微小管を切る」という力が、量とタイミングを厳密に管理されて初めて役に立つことの表れです。ここで紹介したがんの知見は、あくまで研究や統計で見えてきた関連であり、KATNB1を調べれば個人のがんリスクが分かる、という段階の話ではありません。
働きを微調整するしくみ ─ 転写と翻訳後修飾
KATNB1の働きは、つくる量(転写)のレベルでも調整されます。研究では、Elk1という転写因子がKATNB1のプロモーター領域に結合し、その発現を制御することが示されています[8]。さらに、つくられた後のタンパク質にも、リン酸化やSUMO化といった翻訳後修飾による微調整が加わります。たとえば、切る酵素であるKATNA1は、SUMO化という修飾を受けると微小管を切る活性と神経突起の伸長が促されることが報告されており[14]、カタニンの働きが幾重もの調整の上に成り立っていることがうかがえます。
9. 検査と遺伝カウンセリングの考え方
KATNB1に関わる病気(LIS6)は、脳の画像所見や発達の様子から疑われ、遺伝学的検査によって確定します。単一の遺伝子だけを調べる方法のほか、大脳皮質形成異常や滑脳症、小頭症に関わる多くの遺伝子をまとめて調べるNGSパネル検査や、より広く原因を探すクリニカルエクソーム検査が用いられます。滑脳症は原因遺伝子が多いため、滑脳症のパネル検査や小頭症のパネル検査で複数の候補を一度に調べることが、診断への近道になる場合があります。
LIS6は常染色体潜性(劣性)遺伝であるため、ご両親はそれぞれ変化を1つ持つ保因者であることが多く、次のお子さんに同じ病気が起こる確率(再発率)は原則として4分の1です。こうした数字の意味や、きょうだいが保因者かどうか、今後の妊娠でどのような選択肢があるかといった点は、保因者スクリーニング検査の考え方とあわせて、遺伝カウンセリングで整理していきます。
当院では、こうした検査の前後で臨床遺伝専門医が遺伝カウンセリングを行います。話し合う内容は、検査で何が分かり何が分からないのか、結果がご本人やご家族にとってどのような意味を持つのか、そしてどのような選択肢があるのか、といった点です。検査を受けるかどうかを含め、決めるのはご本人・ご家族であり、私たちは中立の立場で判断材料を整理する役割を担います。
🏥 大脳皮質形成異常・遺伝性疾患のご相談
滑脳症・小頭症などの大脳皮質形成異常や、その遺伝的な背景についての
遺伝子検査と遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
10. よくある誤解
誤解①「KATNB1は切る酵素の脇役にすぎない」
KATNB1がつくるp80は、それ自体では微小管を切りません。しかし「どこで・どれだけ切るか」を決める司令塔であり、これが失われると脳の形成が根本から崩れます。脇役どころか、切断の場所と量を決める要です。
誤解②「変化があれば必ず発症する」
LIS6は両方のコピーがそろって働かなくなって初めて起こる、常染色体潜性(劣性)遺伝の病気です。片方だけの人(保因者)は、ふつう症状が出ません。
誤解③「KATNB1を調べればがんリスクが分かる」
がんとの関連は、腫瘍組織での発現の高さと進行・転移の関係として報告されているもので、生まれ持った体質を調べる検査とは別の話です。個人のがんリスク予測に使える段階ではありません。
誤解④「滑脳症はどれも同じ」
滑脳症には多くの原因遺伝子があり、経過も特徴も異なります。KATNB1によるLIS6は、極度の小頭症を合併する点が、脳の体積が保たれやすいLIS1型などと異なります。
よくある質問(FAQ)
参考文献
- [1] Mutations in KATNB1 cause complex cerebral malformations by disrupting asymmetrically dividing neural progenitors. Neuron. 2014. [PubMed 25521378]
- [2] Katanin p80 regulates human cortical development by limiting centriole and cilia number. Neuron. 2014. [PMC4485387]
- [3] Lissencephaly 6 with microcephaly; LIS6. Online Mendelian Inheritance in Man (OMIM). [OMIM 616212]
- [4] Structural basis of katanin p60:p80 complex formation. Sci Rep. 2017. [PMC5668312]
- [5] Crystal Structure of a Heterotetrameric Katanin p60:p80 Complex. Structure. 2019. [PubMed 31353241]
- [6] Katanin spiral and ring structures shed light on power stroke for microtubule severing. Nat Struct Mol Biol. 2017. [Nature Structural & Molecular Biology]
- [7] Microtubule minus-end regulation at spindle poles by an ASPM-katanin complex. Nat Cell Biol. 2017. [PMC5458804]
- [8] Katanin-p80 Gene Promoter Characterization and Regulation via Elk1. PLoS One. 2013. [PMC3722181]
- [9] KATNB1 is a master regulator of multiple katanin enzymes in male meiosis and haploid germ cell development. Development. 2021. [PubMed 34822718]
- [10] Haplotype-GGGT in long non-coding RNA MALAT1 inhibits brain metastatic lung cancer and lymph nodes of lung cancer via the MALAT1/miR-328/KATNB1. Aging (Albany NY). 2023. [PubMed 36934373]
- [11] Katanin P80 expression correlates with lymph node metastasis and worse overall survival in patients with breast cancer. Cancer Biomark. 2018. [PubMed 30223388]
- [12] Katanin subunits p60 and p80, potential biomarkers for papillary thyroid carcinoma to distinguish nodular goiter. Medicine (Baltimore). 2022. [PMC9276123]
- [13] The Mammalian Family of Katanin Microtubule-Severing Enzymes. Front Cell Dev Biol. 2021. [Frontiers in Cell and Developmental Biology]
- [14] SUMOylation of microtubule-cleaving enzyme KATNA1 promotes microtubule severing and neurite outgrowth. J Biol Chem. 2022. [PubMed 35868557]






