

目次
- 1 1. カタニンとは ─ 微小管を「刀」で切る酵素
- 2 2. 切断のしくみ ─ チューブリンの「しっぽ」を引き抜く
- 3 3. 壊すのに増やす、という謎 ─ 切断と修復のふしぎな関係
- 4 4. チューブリンコード ─ 「どの管を切るか」を決める目印
- 5 5. カタニンファミリー ─ 5種類の関連サブユニットと役割分担
- 6 6. 小頭症と脳の形成 ─ KATNB1が壊れると何が起こるか
- 7 7. 男性不妊とカタニン ─ 精子の「頭と尾」をつくる
- 8 8. 繊毛とがん ─ カタニンのもうひとつの顔
- 9 9. 検査と遺伝カウンセリング ─ カタニン関連の変化が見つかったら
- 10 10. カタニンをめぐる「よくある誤解」
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

細胞のなかには微小管(びしょうかん)という細い管が張りめぐらされ、細胞の形を保ち、分裂のときには染色体を分け、神経では軸索を伸ばす「レール」として働いています。この丈夫な管を、必要な場所でまるで刀で断ち切るように切断する酵素がカタニン(Katanin)です。カタニン関連遺伝子の異常は、脳の形成や精子形成に影響することがあります。とくにKATNB1の両アレル病的バリアントは小頭症を含む大脳皮質形成異常の原因となり、カタニン関連タンパク質は動物モデルで精子形成にも重要であることが示されています。一方でカタニンは多くのがんで過剰に働き、がん細胞の移動に関わるという別の顔も持っています。この記事では、「微小管を切る」というひとつの働きが、脳・精子・がんという一見かけ離れた場所でどう意味を持つのかを、遺伝専門医がやさしく解説します。
Q. カタニンとは何をする酵素ですか?まず結論だけ知りたいです
A. カタニンは、細胞の骨組みである微小管を途中から切断する酵素(微小管切断酵素)です。ATPというエネルギーを使い、6個が輪のように集まってチューブリンという部品を管から引き抜き、管に切れ目を入れます。脳をつくる神経細胞の移動、精子の形づくり、細胞分裂の紡錘体などに不可欠で、KATNB1の両アレルに機能を損なう変化があると小頭症などの脳形成異常が起こり、カタニン関連タンパク質は動物モデルで精子形成にも重要であることが報告されています。壊す酵素なのに、状況によっては微小管をかえって増やすという意外な性質も持っています。
- ➤基本の働き → 微小管を途中で切る。1993年にウニの卵から発見され、日本語の「刀(かたな)」から名づけられた
- ➤構造 → 触媒サブユニットp60(KATNA1)と調節サブユニットp80(KATNB1)からなり、AAA+ ATPaseという酵素ファミリーに属する
- ➤脳との関係 → KATNB1の両アレル変異は複雑な大脳皮質形成異常(小頭症・滑脳症など)を起こす
- ➤精子との関係 → カタニン様タンパク質KATNAL1・KATNAL2は精子形成に必須で、機能喪失は雄性不妊につながる(主に動物モデル)
- ➤がんとの関係 → 乳がん・前立腺がん・肺がんなどで発現が上昇し、細胞の移動・浸潤との関連が報告されている
🧬 カタニンの基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. カタニンとは ─ 微小管を「刀」で切る酵素
🔍 関連記事:微小管とは/チューブリン/AAA ATPaseファミリー
カタニンは、微小管を途中から切断する酵素です。微小管は、チューブリンという部品がらせん状に積み上がってできた中空の管で、細胞の形を支え、物を運ぶレールになり、細胞分裂では染色体を引っぱる装置になる、いわば細胞の「骨組みと交通網」を兼ねた構造です。ふつう、この管は端から少しずつ伸び縮みしますが、カタニンは管の途中(側面)に切れ目を入れて断ち切るという、まったく別のやり方で微小管を作り替えます。
カタニンは1993年、ウニの卵の抽出液のなかから、安定な微小管を切断し分解する活性をもつ酵素として同定されました[1]。名前の由来はユニークで、微小管をすっぱりと断ち切るその働きが日本刀を思わせることから、日本語の「刀(かたな)」にちなんでkataninと名づけられました。カタニンは、触媒活性をもつp60サブユニット(遺伝子名KATNA1)と、その働きを調節するp80サブユニット(遺伝子名KATNB1)が組み合わさってできています[1]。
💡 用語解説:AAA+ ATPaseとは
AAA+ ATPaseは、ATP(細胞のエネルギー通貨)を分解して得た力で、他の分子を引っぱったり、ほどいたり、組み替えたりする「分子モーター」の大きな一族です。カタニンはこのなかでも、減数分裂に関わる一群(減数分裂クレード)に属し、同じく微小管を切るスパスチンやフィジェティン、膜を切り離すVPS4と近い親戚です[2]。これらは「エネルギーを使って構造を力ずくで変える」という共通の仕組みを持っています。カタニンが微小管を切るのも、まさにこの力を使った物理的な作業なのです。
p60は単独でも微小管を切る力を持っていますが、p80が結びつくと、酵素が細胞のなかのどこに行くか(局在)や、その活性が精密に調節されます[2]。とくにp80のWD40という部分は、カタニンを細胞分裂の要である紡錘体の極(スピンドル極)へ運ぶ道案内の役割を担います。触媒担当のp60と、司令塔役のp80。この二人三脚こそがカタニンの本体です。のちほど見るように、司令塔であるp80(KATNB1)が壊れると脳の形成に大きな影響が出るのは、この調節の重要性を物語っています。
なぜ「切る」ことが細胞に必要なのか
微小管を切る、と聞くと破壊的な働きに思えるかもしれません。しかし細胞にとって、微小管を適切な長さ・本数・向きに整えることは、伸ばすのと同じくらい大切です。カタニンによる切断は、たとえば神経細胞が長い軸索を伸ばすときに材料となる短い微小管を切り出したり、細胞分裂のときに紡錘体の形や長さを整えたり、繊毛や鞭毛を作ったり壊したりする場面で使われます[2]。植物では、光の向きに応じて細胞のなかの微小管の並びを一斉に組み替えるのにもカタニンが関わっています。「切る」は、作り替えるための積極的な手段なのです。
カタニンの働きは、進化の過程で驚くほどよく保たれてきました。酵母のような単細胞生物から、線虫、ショウジョウバエ、植物、そしてヒトにいたるまで、微小管を切る酵素は幅広い生物に共通して備わっています[2]。これは、微小管を「必要な場所で切り、組み替える」という作業が、生き物が細胞の形をつくり、分裂し、動くうえで欠かせない基本の仕組みであることを意味しています。逆にいえば、この基本の仕組みに不具合が生じると、細胞のさまざまな働きが同時に乱れる可能性があるということです。カタニンの遺伝子の変化が、脳・精子・繊毛といった複数の場所に影響しうるのは、それだけこの酵素が細胞の土台に近いところで働いているからだと理解できます。
とくに神経細胞では、カタニンの切断が重要な意味を持ちます。神経細胞は、細胞体からきわめて長い軸索を伸ばし、他の神経細胞とつながって回路をつくります。この軸索を伸ばし、枝分かれさせ、正しい方向へ導くには、材料となる微小管を適切な長さに切り出し、必要な場所へ運ぶ必要があります。カタニンはこの過程で、長い微小管を短い断片に切り分ける役割を担い、断片が軸索の先端へと運ばれて再び伸びる材料になります。切断が多すぎても少なすぎても軸索はうまく伸びず、ちょうどよいバランスが求められます。カタニンの働きが精密に調節されなければならない理由が、ここにもあります。
2. 切断のしくみ ─ チューブリンの「しっぽ」を引き抜く
カタニンがどうやって丈夫な微小管を切るのか。その分子レベルの仕組みは、近年のクライオ電子顕微鏡(cryo-EM)による構造解析で大きく明らかになりました。鍵を握るのは、微小管の表面から突き出たチューブリンのC末端テール(しっぽ)です。このしっぽは負の電気を帯びた、決まった形を持たないひも状の部分で、カタニンはここを「取っ手」としてつかみます。
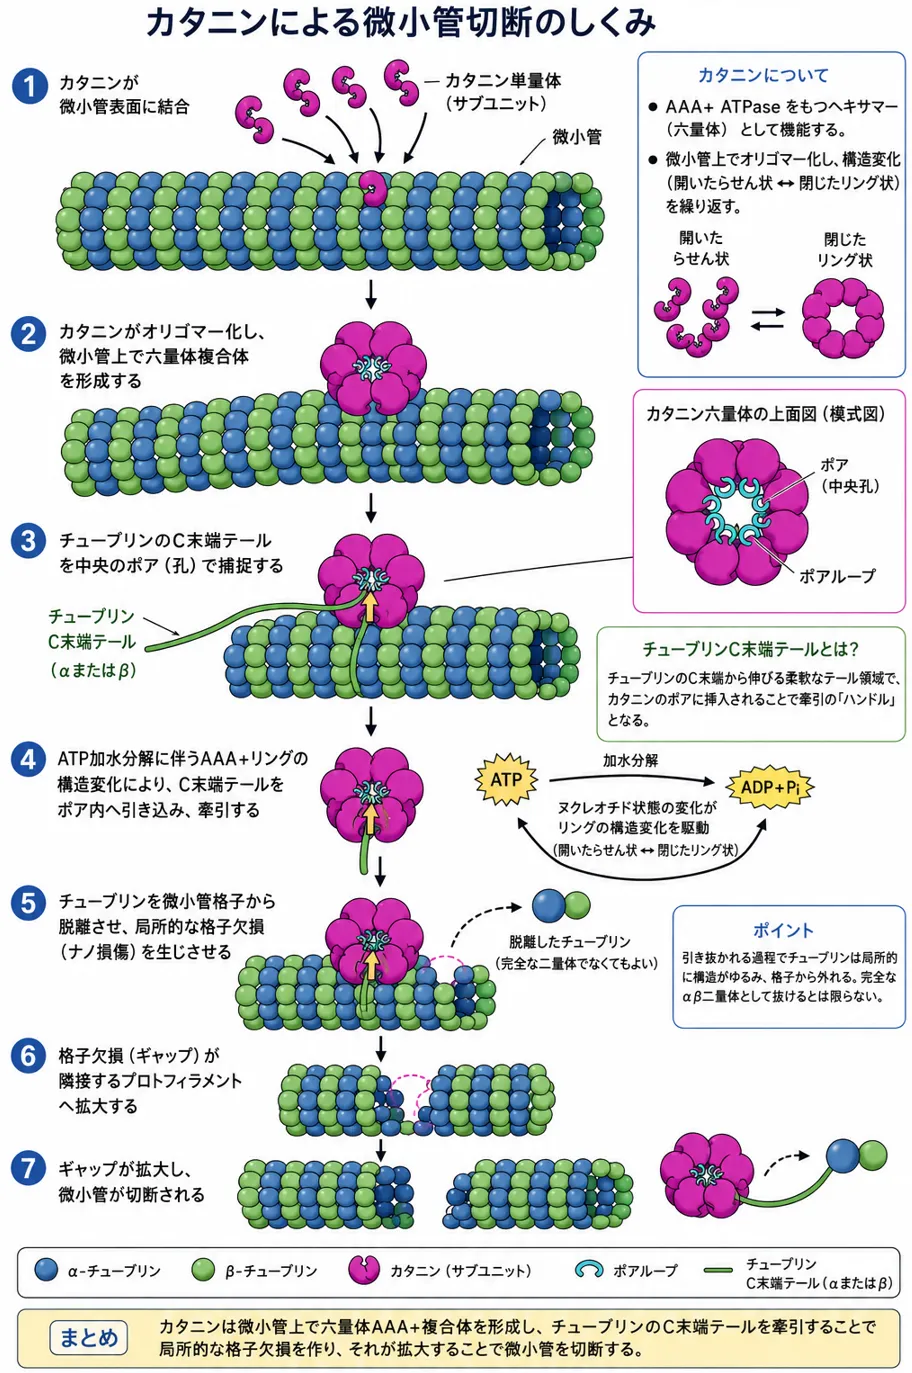
カタニンが六量体を組み、チューブリンのC末端テールを中央の孔(ポア)で捕らえ、ATPの力で引き抜いて微小管に切れ目をつくる過程の模式図。
切断はおおよそ次の順序で進みます。まず、ふだんはバラバラ(単量体)で存在するカタニンのp60が、微小管とATPの存在下で6個集まってドーナツ状の六量体を組みます[5]。このとき、チューブリンのしっぽが六量体の中央にあるトンネル(中央ポア)に引き込まれます。ヒトのβチューブリンのしっぽは、カタニンを活性化するのに必要かつ十分であることが示されています[5]。
構造解析からは、この中央ポアの内側に2本のらせん(二重らせん)状に並んだアミノ酸のループ(ポアループ1と2)があり、しっぽを両側から挟み込むようにつかむ様子が見えてきました[5]。そしてATPを分解するたびに、この構造が「らせん」から「閉じた輪」へと形を変え、しっぽを一段ずつ手繰り寄せます。ちょうどラチェット(一方向にしか回らない歯車)のように、しっぽを少しずつポアの中へ引き込んでいくのです[5]。引っぱられたチューブリンは周囲との結合が緩み、やがて管から引き抜かれます。これがあちこちで起きると管に穴があき、穴が広がって、ついに微小管は切断されます。
カタニンが微小管を切るまで
6個が輪を組む
しっぽを孔で挟む
ATPで引き抜く
穴が広がり切れる
カタニンは端からではなく、管の「途中」に穴をあけて切ります。この点が、端で伸び縮みする通常の微小管の動きとの大きな違いです。
なお、この切断のためには、AAA+の中心部分だけでなく、その外側にある正の電気を帯びた「ひも状の連結部(リンカー)」が微小管本体につかまって、酵素を固定する役目を果たすことも分かっています[5]。碇(いかり)で船を固定してから力を出すように、カタニンは複数の接点で微小管をつかんでから、しっぽを引き抜く力を発揮するのです。興味深いことに、近縁のスパスチンも同じように正電荷のリンカーで微小管をつかんでおり、これは微小管切断酵素に共通した戦略だと考えられています[5]。
3. 壊すのに増やす、という謎 ─ 切断と修復のふしぎな関係
カタニンには長らく大きな謎がありました。細胞のなかでカタニンが働くと、微小管を切って壊すはずなのに、かえって微小管の量が増えるという現象が、神経の発生や紡錘体の形成などで観察されていたのです。壊す酵素がなぜ量を増やすのか。この一見矛盾した振る舞いの謎は、2018年に報告された研究で解かれました。
この研究では、カタニンやスパスチンが微小管の途中からチューブリンを引き抜くと、そこに「ナノダメージ(微小な傷)」ができることが示されました[6]。ところがこの傷は、周囲に新しいチューブリン(GTP型チューブリン)があると、そこに新しい部品が埋め込まれて修復されます。修復された箇所は「GTPアイランド(島)」と呼ばれ、微小管が縮むのを食い止める「安全地帯」になります。傷の修復が切断より速ければ、微小管はむしろ丈夫になり、切断が上回れば管は切れますが、その切り口も新しいチューブリンで覆われて安定した「種」になり、そこから新しい微小管が伸びていきます[6]。
「壊す」が「増やす」に変わるしくみ
チューブリンを抜く
(ナノダメージ)
(GTPアイランド)
種になり増える
つまりカタニンは、単に微小管を壊す酵素ではなく、古い部品を新しい部品に入れ替えながら、微小管を作り替える「リフォーム業者」のような存在だったのです[6]。この理解は、神経が発達するときやがん細胞が増えるときになぜカタニンが必要とされるのかを説明する、大切な鍵になっています。壊すことと増やすことは、細胞のなかでは矛盾しないのです。

4. チューブリンコード ─ 「どの管を切るか」を決める目印
細胞のなかには何万本もの微小管があります。カタニンは、そのすべてを無差別に切るわけではありません。「どの管を、どのくらい切るか」を決める目印が、チューブリンのしっぽに施される化学的な飾りつけ、すなわち翻訳後修飾です。この修飾のパターンが、まるで文字を読むように微小管の性質を指定することから、「チューブリンコード(微小管の暗号)」と呼ばれています。
代表的な修飾のひとつがポリグルタミン酸化(グルタミル化)です。これはチューブリンのしっぽに、グルタミン酸というアミノ酸を数珠つなぎに付け足す飾りつけで、しっぽの負の電気を強めます。カタニンはこの負電荷の強いしっぽを好んでつかむため、グルタミル化は切断を促す「切ってよい」という目印として働きます。
💡 ここは誤解されやすい:グルタミル化は「多ければよい」ではない
グルタミン酸をたくさん付ければ付けるほど切れやすくなる、と思われがちですが、そう単純ではありません。近縁のスパスチンでは、しっぽに付くグルタミン酸が1〜8個あたりまでは切断が増えますが、それを超えると逆に切断が抑えられる「二相性」の反応を示すことが報告されています[7]。ちょうどよい量のときに最もよく切れ、多すぎるとかえってブレーキがかかるのです。
カタニンについても、グルタミル化が切断を調節すること、そして別の修飾である「グリシル化」がグルタミル化と拮抗して切断を抑えることが報告されています[8]。つまり微小管は、複数の飾りつけの組み合わせによって、切られやすさが細かく調節されているのです。飾りの種類と量が織りなす「暗号」を、カタニンは読み取っています。
もうひとつ重要な修飾がアセチル化です。神経細胞や線維芽細胞を使った研究では、微小管のアセチル化を人工的に増やすとカタニンによる切断を受けやすくなり、減らすと受けにくくなることが示されました[9]。さらに、微小管を安定化させるタンパク質であるタウがしっぽを覆っている微小管は、カタニンから保護されて切られにくくなります[9]。逆にいえば、タウが失われるとカタニンによる切断が進みやすくなり、これがアルツハイマー病などタウが関わる病態での微小管の減少に関係している可能性が指摘されています。
近年では、こうした修飾の使い分けが、神経回路づくりの現場で実際に意味を持つことも分かってきました。ゼブラフィッシュやマウスを用いた研究では、グルタミル化を担う酵素の種類によって、カタニンとスパスチンのどちらが軸索ガイダンス(神経の道案内)に使われるかが選び分けられることが報告されています[10]。同じ「微小管を切る」酵素でも、チューブリンコードによって役割が振り分けられているのです。
5. カタニンファミリー ─ 5種類の関連サブユニットと役割分担
ヒトのカタニンファミリーには、5種類の関連サブユニットタンパク質があります[2]。触媒側にKATNA1・KATNAL1・KATNAL2の3つ(A型・A様型)、調節側にKATNB1・KATNBL1の2つ(B型・B様型)があります。進化の過程で、生物が複雑になるにつれてこの一族のメンバーが増えてきたことが分かっており、それぞれが場所や状況に応じて役割を分担していると考えられています[2]。
この一族が面白いのは、メンバーどうしがある場所では役割を肩代わりし合い、別の場所では専門化するという、柔軟な使い分けをしている点です[2]。たとえばKATNAL1は神経細胞でより多く、より安定して働き、KATNAL2は繊毛のある細胞で重要な役割を果たします。だからこそ、どのサブユニットの遺伝子が変化するかによって、現れる病気も脳・精子・繊毛と異なってくるのです。次のセクションからは、それぞれの現場を順に見ていきます。
6. 小頭症と脳の形成 ─ KATNB1が壊れると何が起こるか
脳が作られる過程では、神経のもとになる細胞(神経前駆細胞)がさかんに分裂し、生まれた神経細胞が正しい場所へ移動していきます。この一連の作業には、微小管を正確に組み替える力が欠かせません。カタニンはまさにその中心にいる酵素であり、なかでも司令塔役のKATNB1が脳の発生に決定的な役割を果たします。
2014年に報告された2本の研究は、この点を明確にしました。ひとつは、KATNB1がヒトの大脳皮質の発生を制御しており、中心小体(セントリオール)と繊毛の数を適切に保つのに必要であることを示しました[3]。もうひとつは、KATNB1の変異が神経前駆細胞の非対称分裂を乱すことで、複雑な大脳皮質形成異常を引き起こすことを報告しました[11]。ヒトでKATNB1の両アレル(父由来・母由来の両方)に機能を損なう変異があると、小頭症に加えて、脳の表面のしわが乏しくなる滑脳症などを伴う、重い脳形成異常が生じます。
💡 用語解説:小頭症・滑脳症とは
小頭症は、頭囲が同じ月齢・性別の標準より著しく小さい状態を指します。脳そのものが十分に大きく育たないことが背景にあり、原因は遺伝性のものから感染症までさまざまです。原因遺伝子としては、紡錘体の働きに関わるASPMなどがよく知られています。
滑脳症は、本来あるはずの脳のしわ(脳回)が乏しく、脳の表面が滑らかになってしまう状態です。神経細胞が正しい場所まで移動できなかったことが原因で起こります。小頭症と滑脳症が合わさった、より重い型は極小脳症(マイクロリスセンセファリー)と呼ばれます。いずれも脳の「大きさ」と「構造」の両方に関わる問題です。
興味深いことに、カタニンは小頭症のもうひとつの主要な原因遺伝子であるASPMとも直接手を組みます。2017年の研究では、ASPMがKATNA1・KATNB1と複合体を作り、お互いの活性を高め合いながら、紡錘体極での微小管の切断を制御していることが示されました[12]。ASPMもKATNB1も、どちらも変異すると小頭症を起こす遺伝子です。両者が同じ複合体で協力していたという発見は、なぜ別々の遺伝子の変化が似た病気(小頭症)につながるのかを、分子のレベルで説明してくれます。
なお、マウスやゼブラフィッシュではKATNB1を完全に失うと胎生致死(生まれる前に亡くなる)になりますが、ヒトでKATNB1の両アレル変異をもつ場合は胎生致死には至りません[3]。これは、ヒトでは変異があっても部分的に機能が残っているか、B様サブユニットのKATNBL1が一部を肩代わりしている可能性を示唆しています。動物モデルの結果がそのままヒトに当てはまるとは限らないという、遺伝医療で常に意識すべき点が、ここにもよく表れています。
遺伝形式の観点からは、KATNB1関連の脳形成異常は常染色体潜性(劣性)遺伝のパターンをとることが中心です。ご両親がそれぞれ変化を1つずつ持つ保因者で、お子さんが両方を受け継いだときに症状が現れます。この形では、次のお子さんにも同じ組み合わせが起こる確率は1回の妊娠あたり25%と計算されます。遺伝形式を正しく把握することが、ご家族の今後を考える出発点になります。
7. 男性不妊とカタニン ─ 精子の「頭と尾」をつくる
精子形成は、細胞が劇的に形を変える過程です。丸い細胞が、頭(DNAを収めた核とその先の先体)と長い尾(鞭毛)をもつ流線型へと作り変えられていきます。この大改造には、微小管を精密に組み替える力が不可欠で、ここでもカタニン一族が活躍します。とくに精子の頭を成形するときには、核を鉢巻きのように取り囲む微小管の構造マンシェットが重要な役割を果たします。
動物モデルの研究から、複数のカタニンサブユニットが精子形成に必須であることが分かっています。KATNAL1は、精子を育てる「乳母」役のセルトリ細胞のなかで微小管の動きを調節し、精子細胞の接着と放出に関わります。マウスでKATNAL1の機能が失われると、雄だけが不妊になることが報告されています[2]。同じくKATNAL2も、精子の頭の形や尾の伸長、先体の付着に関わり、その機能低下はマウスで雄性不妊を引き起こします[13]。
司令塔役のKATNB1も、哺乳類の精子形成に欠かせません。マウスでKATNB1の機能を損なう変異(Taily変異)が入ると、雄は不妊になります。これは、精子形成の過程で異常な紡錘体ができたり、精子の頭がゆがんだり、尾の微小管構造(軸糸)に異常が生じたりするためと考えられています[14]。ヒトでもKATNB1はマンシェットや鞭毛の形成に関わることが示されており、カタニン複合体が精子の形づくりに広く必要とされることがうかがえます[14]。
💡 ここは冷静に:多くは「動物モデル」の知見です
ここで述べたカタニンと男性不妊の関係は、その多くがマウスなどの動物モデルで得られた知見です。動物で不妊が起きたからといって、ヒトで同じ遺伝子に変化があれば必ず不妊になる、と単純に結論づけることはできません。ヒトの男性不妊、とくに非閉塞性無精子症や断頭精子症の原因は非常に多様で、カタニン関連遺伝子はその研究対象のひとつという位置づけです。実際の検査では、確立した原因遺伝子から順に調べていくことになります。
ヒトの男性不妊の遺伝学的な検索では、多数の関連遺伝子をまとめて調べる男性不妊症NGSパネルが用いられます。カタニン関連遺伝子が将来こうしたパネルでどう位置づけられるかは、今後の研究の蓄積によって変わっていく可能性があります。現時点では、精子の形態異常や無精子症の背景を調べる際に、臨床遺伝の専門家とともに、確立した知見から順に評価していくことが大切です。
8. 繊毛とがん ─ カタニンのもうひとつの顔
細胞の表面から突き出たアンテナのような構造を繊毛(せんもう)といいます。繊毛は微小管でできており、細胞外の信号を受け取ったり、液体の流れを作ったりします。カタニンは、この繊毛を作ったり、必要なくなったときに切り離したりする過程に関わります[2]。単細胞生物のクラミドモナス(緑藻)では、ストレスを受けると鞭毛を根元から切り離す「脱鞭毛」にカタニンのA型サブユニットが必要であることが古くから知られています[2]。植物でも、カタニン(KTN1など)が細胞の中の微小管の並びを組み替え、細胞の成長方向を決めるのに働いています。
前のセクションで見たKATNB1による脳形成異常も、じつは繊毛の異常と深く関わっています。KATNB1を失った細胞では中心小体が増えすぎ、繊毛が正しく作られず、繊毛を介した重要な信号伝達(ヘッジホッグ経路など)が乱れることが報告されています[3]。繊毛の異常が原因で起こる病気の総称を繊毛病(シリオパチー)といい、カタニン関連の脳形成異常もこの視点から理解できる部分があります。
がんでのカタニン ─ 「移動」を助ける
カタニンのもうひとつの顔が、がんとの関わりです。細胞が分裂したり移動したりするには微小管の組み替えが必要なため、カタニンの働きはがん細胞の増殖や転移とも接点を持ちます。実際、いくつかのがんでカタニンの発現が変化していることが報告されています[2]。
総説によれば、KATNA1(p60)は乳がんや前立腺がんの転移巣で発現が高まり、細胞の移動能力の亢進と関連する一方で、増殖はむしろ抑える方向に働くと報告されています[2]。また、非小細胞肺がんでは、KATNA1とKATNB1の発現上昇がリンパ節転移や進行度と関連することが示されています[2]。乳がんでは、KATNB1(p80)の発現が高いほどリンパ節転移や進行度が高く、全体的な予後との関連も報告されています[2]。
💡 用語解説:発現が「関連する」とはどういう意味か
がんの研究でよく出てくる「発現が高いと予後と関連する」という表現は、その遺伝子ががんの原因である、という意味ではありません。多くの患者さんのデータを集めたときに、統計的にそういう傾向が見られる、ということです。カタニンの発現異常が、がんを引き起こす原因なのか、がんが進行した結果なのか、あるいは治療の標的になりうるのかは、まだ研究が進んでいる段階です。カタニンとがんの関係は「今後の研究で解明が期待される領域」として理解するのが正確です。
なぜカタニンの発現ががんと関わりうるのかを、少し立ち止まって考えてみます。がん細胞が周囲の組織に広がったり、離れた場所へ転移したりするには、細胞が形を変えて動く必要があります。細胞が動くとき、進行方向の先端では微小管がさかんに伸び縮みし、細胞の骨組みが絶えず作り替えられています。カタニンはこの作り替えを助ける酵素なので、その働きが強まれば細胞が動きやすくなる、という関係が想定されます。一方で、微小管を切りすぎれば細胞分裂に必要な紡錘体が乱れ、増殖はむしろ抑えられることもあります。増殖と移動という、がんにとって重要な二つの性質に対して、カタニンが逆向きに働きうるという点は、この酵素の複雑さをよく表しています[2]。
ただし、こうした関係はまだ研究の途上にあり、カタニンを標的とした治療が現時点で確立しているわけではありません。がんは多数の遺伝子や環境要因が複雑に絡み合って生じるものであり、ひとつの酵素の働きだけで説明できるものではありません。カタニンとがんの話題は、微小管の作り替えという細胞の基本的な営みが、健康なときにも病気のときにも重要であることを示す一例として捉えるのが適切です。将来、研究が進むことで、こうした知見が診断や治療にどう結びつくのかが少しずつ明らかになっていくと期待されます。
このように、カタニンは繊毛の維持からがん細胞の移動まで、微小管の組み替えが必要とされるあらゆる場面に顔を出します。「切る」というひとつの働きが、文脈によって発生を支えたり、逆に病気に関わったりする。カタニンは、その両面を持つ酵素なのです。がんの領域については、あくまで文献・研究動向にもとづく専門的な解説であり、個別の診断や治療方針を示すものではありません。
9. 検査と遺伝カウンセリング ─ カタニン関連の変化が見つかったら
🔍 関連記事:遺伝カウンセリング・遺伝診療/臨床遺伝専門医/小頭症NGSパネル
ここまで見てきたように、カタニンの遺伝子(とくにKATNB1)に生まれつきの変化があると、小頭症をはじめとする脳形成異常につながることがあります。では、実際にお子さんに小頭症や発達の遅れが見られたとき、あるいはご家族に同様の方がいるとき、遺伝学的にはどのように調べていくのでしょうか。
小頭症や脳形成異常の原因遺伝子は、KATNB1・ASPMをはじめ非常に多岐にわたります。そのため、原因が疑われる遺伝子を1つずつ調べるのではなく、関連する多数の遺伝子を一度にまとめて調べるNGS(次世代シークエンサー)パネル検査が用いられることが一般的です。当院でも、小頭症NGSパネルや滑脳症NGSパネルなど、症状に応じた検査をご案内しています。
ただし、遺伝子検査は「受ければ答えが出る」という単純なものではありません。検査で見つかった変化が本当に症状の原因なのか(病的意義があるのか)、判断が難しい「意義不明の変異(VUS)」であることも少なくありません。また、KATNB1関連疾患のように常染色体潜性(劣性)遺伝の形をとる場合、次のお子さんへの影響や、ご両親が保因者であることの意味など、ご家族全体で考えるべきことがたくさんあります。
だからこそ、検査の前後には遺伝カウンセリングが欠かせません。どんな検査で何が分かるのか、結果をどう受け止めればよいのか、今後どんな選択肢があるのかを、臨床遺伝専門医とともに一つずつ整理していくことが、納得のいく意思決定につながります。
10. カタニンをめぐる「よくある誤解」
最後に、カタニンについて誤解されやすいポイントを4つ整理しておきます。正しく理解することが、情報に振り回されないための助けになります。
❌ 誤解①:動物で不妊になる=ヒトでも必ず不妊
⭕ 正しくは:カタニンと男性不妊の関係の多くは、マウスなどの動物モデルで得られた知見です。ヒトでの因果関係は今後の研究課題で、動物の結果をそのまま当てはめることはできません。
❌ 誤解②:カタニンは微小管を壊すだけの酵素
⭕ 正しくは:切断は、古い部品を新しい部品に入れ替えて微小管を作り替える手段でもあります。状況によっては、切ることでかえって微小管が増えます。
❌ 誤解③:がんで発現が高い=カタニンががんの原因
⭕ 正しくは:「発現と予後の関連」は統計的な傾向を示すもので、原因を意味しません。カタニンががんの原因か結果かは、まだ研究段階です。
❌ 誤解④:グルタミル化は多いほどよく切れる
⭕ 正しくは:ちょうどよい量のときに最もよく切れ、多すぎるとかえって抑えられる「二相性」が知られています。単純な比例関係ではありません。
よくある質問(FAQ)
遺伝子や遺伝性疾患について、専門医に相談したい方へ
小頭症などの脳形成異常、男性不妊、そのほか遺伝が関わる疾患について、
ミネルバクリニックでは遺伝専門医による遺伝カウンセリング・遺伝子検査をご提供しています。
正確な情報を土台に、ご自身とご家族にとって納得のいく選択を一緒に考えます。
参考文献
- McNally FJ, Vale RD. Identification of katanin, an ATPase that severs and disassembles stable microtubules. Cell. 1993;75(3):419-429. https://pubmed.ncbi.nlm.nih.gov/8221885/
- Lynn NA, Martinez E, Nguyen H, Torres JZ. The mammalian family of katanin microtubule-severing enzymes. Front Cell Dev Biol. 2021;9:692040. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC8369831/
- Hu WF, Pomp O, Ben-Omran T, et al. Katanin p80 regulates human cortical development by limiting centriole and cilia number. Neuron. 2014;84(6):1240-1257. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC4485387/
- Bartholdi D, Stray-Pedersen A, Azzarello-Burri S, et al. A newly recognized 13q12.3 microdeletion syndrome characterized by intellectual disability, microcephaly, and eczema/atopic dermatitis encompassing the HMGB1 and KATNAL1 genes. Am J Med Genet A. 2014;164A(5):1277-1283. https://pubmed.ncbi.nlm.nih.gov/24664804/
- Zehr EA, Szyk A, Szczesna E, Roll-Mecak A. Katanin grips the β-tubulin tail through an electropositive double spiral to sever microtubules. Dev Cell. 2020;52(1):118-131.e6. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC7060837/
- Vemu A, Szczesna E, Zehr EA, et al. Severing enzymes amplify microtubule arrays through lattice GTP-tubulin incorporation. Science. 2018;361(6404):eaau1504. https://pubmed.ncbi.nlm.nih.gov/30139843/
- Valenstein ML, Roll-Mecak A. Graded control of microtubule severing by tubulin glutamylation. Cell. 2016;164(5):911-921. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC6459029/
- Szczesna E, Zehr EA, Cummings SW, et al. Combinatorial and antagonistic effects of tubulin glutamylation and glycylation on katanin microtubule severing. Dev Cell. 2022;57(21):2497-2513.e6. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC9665884/
- Sudo H, Baas PW. Acetylation of microtubules influences their sensitivity to severing by katanin in neurons and fibroblasts. J Neurosci. 2010;30(21):7215-7226. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC2891103/
- Ten Martin D, Jardin N, Vougny J, et al. Tubulin glutamylation regulates axon guidance via the selective control of microtubule-severing enzymes. EMBO J. 2025;44(1):107-140. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC11695996/
- Mishra-Gorur K, Çağlayan AO, Schaffer AE, et al. Mutations in KATNB1 cause complex cerebral malformations by disrupting asymmetrically dividing neural progenitors. Neuron. 2014;84(6):1226-1239. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC5024344/
- Jiang K, Rezabkova L, Hua S, et al. Microtubule minus-end regulation at spindle poles by an ASPM-katanin complex. Nat Cell Biol. 2017;19(5):480-492. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC5458804/
- Dunleavy JEM, Okuda H, O’Connor AE, et al. Katanin-like 2 (KATNAL2) functions in multiple aspects of haploid male germ cell development in the mouse. PLoS Genet. 2017;13(11):e1007078. https://www.ncbi.nlm.nih.gov/pmc/articles/PMC5705150/
- O’Donnell L, Rhodes D, Smith SJ, et al. An essential role for katanin p80 and microtubule severing in male gamete production. PLoS Genet. 2012;8(5):e1002698. https://pubmed.ncbi.nlm.nih.gov/22654669/
※本記事は、微小管切断酵素カタニンに関する学術的な解説を目的としたものであり、特定の疾患の診断・治療方針を示すものではありません。個別の症状や検査結果の解釈については、遺伝専門医による診療をご利用ください。






