

目次
- 1 1. GLI転写因子ファミリーとは ─ 体づくりの「最後のスイッチ」
- 2 2. 3兄弟の役割分担 ─ 「つける」係と「消す」係
- 3 3. GLIの構造とアイソフォーム ─ 同じ設計図から生まれる多彩さ
- 4 4. ヘッジホッグ経路 ─ GLIを活性型にする号令の流れ
- 5 5. GLI3の切断制御 ─ 指の設計図をつくるグラデーション
- 6 6. 発生と体づくり ─ 脳・神経・手足・内臓での役割
- 7 7. GLIと遺伝性疾患 ─ 変異の「場所」が病気を変える
- 8 8. GLIとがん ─ 少なくとも3つの異なる仕組み
- 9 9. 治療標的と創薬 ─ 「GLIを直接狙う薬」はまだない
- 10 10. よくある誤解
- 11 まとめ ─ GLIは「量」ではなく「状態」で読む
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
私たちの体は、たった1個の受精卵から、指の数や脳のかたち、顔の中心線までもが正確に決まっていきます。その設計を陰で支える「最後のスイッチ」が、GLI転写因子ファミリー(GLI1・GLI2・GLI3/ジーエルアイ)です。GLIは、体づくりの号令であるヘッジホッグ(Hedgehog)シグナルを受け取り、遺伝子のオン・オフを最終的に切り替える3兄弟のタンパク質です。ある一族は遺伝子を「つける」係、ある一族は「消す」係と、役割を分担しています。このバランスが崩れると、指が増える多指症(たし症)や、脳・顔・下垂体の形成異常、さらには一部のがんにもつながります。この記事では、GLIとは何か、3兄弟がどう違うのか、そして遺伝性疾患や最新の治療標的とどうつながるのかを、医学的知見に基づいて解説します。
Q. GLI転写因子ファミリーとは何ですか?まず結論だけ知りたいです
A. GLI(GLI1・GLI2・GLI3)とは、体づくりの号令であるヘッジホッグシグナルを受け取り、遺伝子のスイッチを最終的にオン・オフする3種類のタンパク質(転写因子)のことです。GLI1とGLI2は主に遺伝子を「つける」活性化因子、GLI3は主に「消す」抑制因子として働きます。この3兄弟のバランスが、指の数・脳や顔のかたち・下垂体の発達などを細かく決めています。GLI3やGLI2の生まれつきの変化はグレイグ症候群・パリスター・ホール症候群・多指症などの原因になり、GLIのスイッチが過剰に入ることは一部のがんにも関わります。
- ➤正体 → 5個の亜鉛フィンガー(ジンクフィンガー)でDNAに結合し、遺伝子のオン・オフを決める3種類の転写因子
- ➤役割分担 → GLI1・GLI2は主に「つける」係(活性化)、GLI3は主に「消す」係(抑制)。ただし例外もある連続的な関係
- ➤切り替えの要 → 一次繊毛(せんもう)という細胞のアンテナで、GLIが活性型か抑制型かが決まる
- ➤病気とのつながり → GLI3の変化はグレイグ症候群・パリスター・ホール症候群・多指症、GLI2の変化はCuller–Jones症候群などの原因になる
- ➤治療の最前線 → 実用化された薬は経路の上流を止めるSMO阻害薬のみ。GLIそのものを狙う選択的な薬はまだ確立していない
🧬 GLI転写因子ファミリーの基本情報
| 項目 | 内容 |
|---|---|
| 正式名称 | GLI family zinc finger 1/2/3(旧称:glioma-associated oncogene=神経膠腫〔しんけいこうしゅ〕関連がん遺伝子) |
| メンバー | GLI1・GLI2・GLI3の3種類。ヘッジホッグシグナルの最終的な出口となる転写因子 |
| 共通の構造 | 5個つらなったC2H2型の亜鉛フィンガーでDNAに結合。認識する配列は3兄弟でほぼ共通[2] |
| おもな働き | GLI1・GLI2=遺伝子をつける活性化因子/GLI3=遺伝子を消す抑制因子(GLI3R)が特に重要[3] |
| 関連する疾患 | グレイグ症候群、パリスター・ホール症候群、多指症、Culler–Jones症候群(下垂体形成異常等)、一部のがん |
| 医療との関わり | 生まれつきの変化は先天異常の原因に。がんでは治療標的として研究が進むが、GLIを直接狙う承認薬はまだない |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
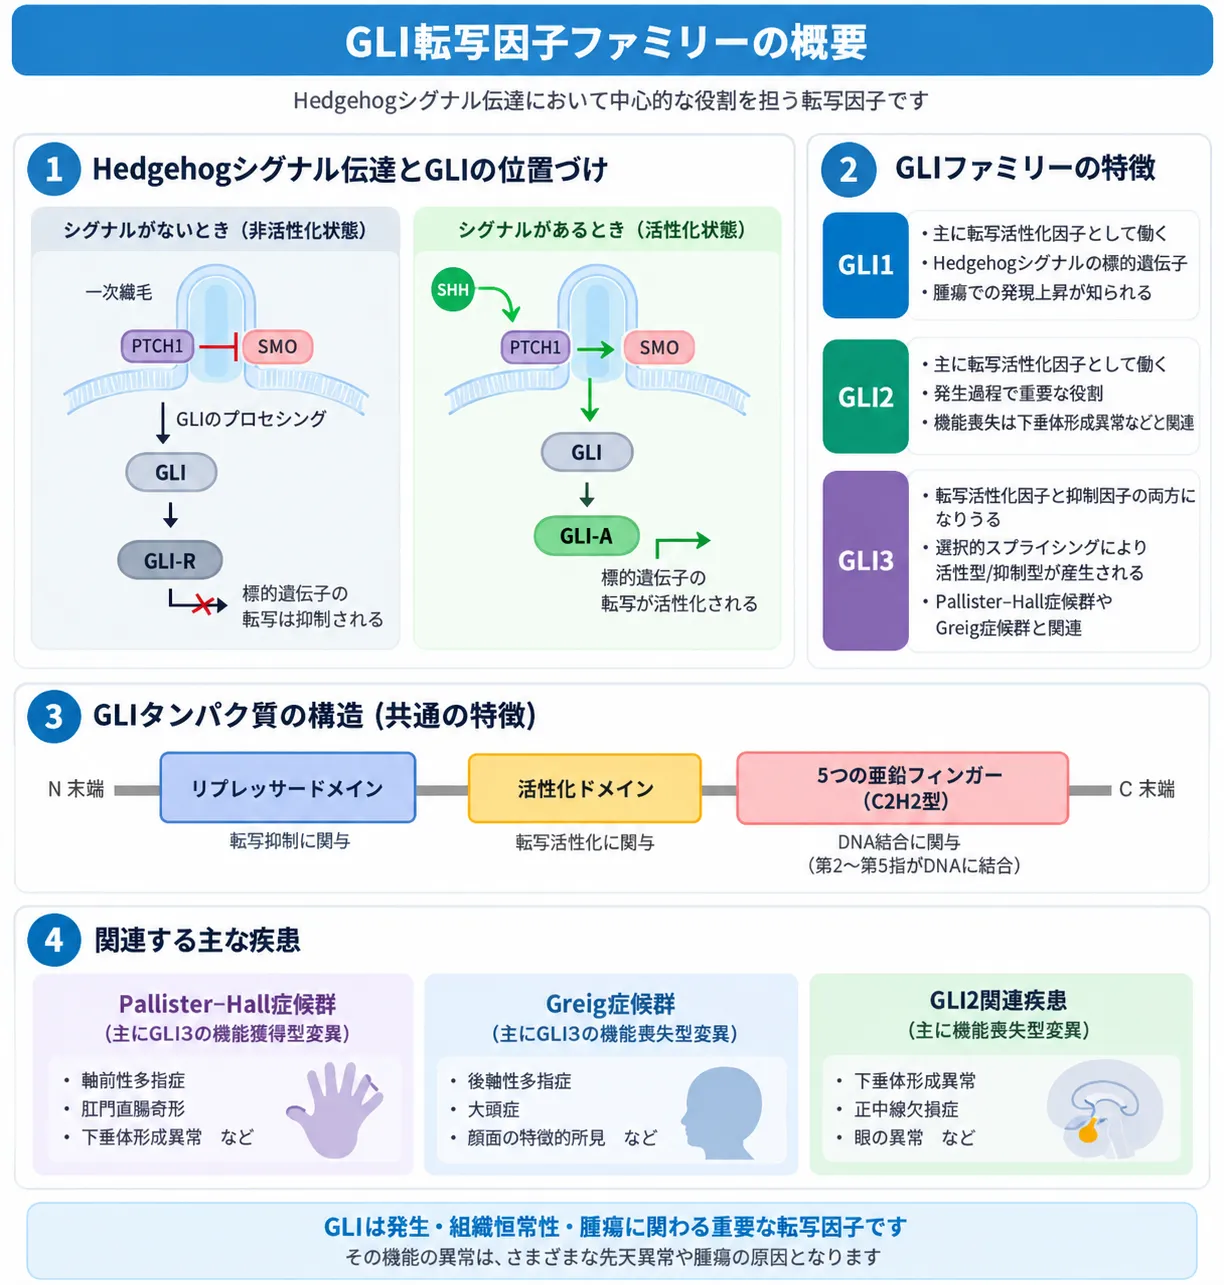
図:GLI転写因子ファミリー(GLI1・GLI2・GLI3)とHedgehogシグナルの概要。Hedgehogシグナルがない状態ではGLIの抑制型が形成されて標的遺伝子の転写が抑えられ、シグナルが入るとPTCH1によるSMOの抑制が解除され、GLIを介した転写活性化へつながります。GLI1・GLI2・GLI3は共通してC2H2型亜鉛フィンガーを持つ転写因子ですが、その機能には違いがあり、GLI3の異常はGreig頭蓋多合指趾症候群やPallister-Hall症候群、GLI2の異常は下垂体形成異常などを含むGLI2関連疾患と関係します。
1. GLI転写因子ファミリーとは ─ 体づくりの「最後のスイッチ」
私たちの体の中では、細胞が「今どこにいて、これから何になるか」を絶えず判断しています。その判断を助ける号令のひとつがヘッジホッグ(Hedgehog)シグナルで、その号令を受けて実際に遺伝子のスイッチを入れたり切ったりする「実行役」が、GLI転写因子ファミリーです。転写因子とは、DNAの特定の場所にくっついて、近くの遺伝子を働かせたり黙らせたりするタンパク質のことをいいます。GLIは、ヘッジホッグという上流の信号を受け取って遺伝子発現へと翻訳する、いわば経路のいちばん下流にある「最後のスイッチ」なのです[3]。
GLIという名前には歴史があります。ヒトのGLI1は、もともと悪性の脳腫瘍である神経膠腫(グリオーマ)で、50倍以上に増えて強く発現している遺伝子として1987年に見つかりました[1]。その後、5個の亜鉛フィンガーを持つクリュッペル型の転写因子であることが分かり[8]、この由来から「glioma-associated oncogene(神経膠腫関連がん遺伝子)」という旧称が広く使われてきました。ただし現在の公式な遺伝子名はGLI family zinc finger 1/2/3です。名前に「がん遺伝子」とありますが、本来のGLIの役割は、がんを起こすことではなく、体づくり(発生)を精密に制御することにあります。
💡 用語解説:転写因子と亜鉛フィンガー
遺伝子は、必要なときだけ働くよう厳密に管理されています。転写因子は、DNAの目印となる配列にくっついて、その遺伝子を「つける・消す」を決めるスイッチのようなタンパク質です。GLIがDNAをつかむ手にあたるのが、C2H2型の亜鉛フィンガーという小さな構造です。亜鉛イオンを芯にして指のような形をつくり、この「指」を5本つらねてDNAの溝をなぞるように結合します。
GLI1・GLI2・GLI3の3つは、この亜鉛フィンガーの部分がとてもよく似ています。似たDNA配列を認識するにもかかわらず、体の中での役割がはっきり違うのが、このファミリーの重要な特徴です。次の章では、その「役割分担」を説明します。
2. 3兄弟の役割分担 ─ 「つける」係と「消す」係
GLIファミリーの基本を一言でいえば、「つける」係と「消す」係の役割分担です。GLI1とGLI2は、遺伝子のスイッチを主に入れる活性化因子(アクチベーター)として働きます。一方、GLI3は、スイッチを主に切る抑制因子(リプレッサー)として働きます[3]。ヘッジホッグの信号を受けた細胞の運命は、この「つける力」と「消す力」の綱引きの結果で決まります。
ただし、この「GLI1=活性化、GLI3=抑制」という分け方は、あくまでも近似です。実際には、GLI2にも抑制型が生じることがあり、切断されていない全長のGLI3にも遺伝子を「つける」力があることが分かっています[3][12]。つまり3兄弟の性質は、白か黒かではなく、連続的なグラデーションのなかにあります。
では、亜鉛フィンガーがそっくりでDNAの認識配列もほぼ同じなのに、なぜこれほど役割が違うのでしょうか。その答えは、DNAをつかむ「手」そのものの違いではなく、タンパク質がどう加工され、どれくらい安定し、どんな相棒と組み、どこに運ばれるかにあります[2]。GLI2とGLI3には、遺伝子を黙らせるためのN末端側の抑制ドメインと、遺伝子をつけるためのC末端側の活性化ドメインの両方がそなわっています。GLI2ではこのうち活性化の働きが、GLI3では切断によって生じる抑制型(後述するGLI3R)の働きが、体づくりのなかで特に重要になります[3]。一方GLI1には、GLI2・GLI3のような強い生理的な抑制プログラムがなく、ふつうは活性化因子として扱われます。
3兄弟には、登場する順番の違いもあります。マウスを使った遺伝学の研究では、GLI2を失うと初期のヘッジホッグ応答が大きく損なわれる一方、GLI1だけを失っても影響は比較的軽いことが示されました[10]。ここから、GLI2が最初に号令を伝える一次的な活性化因子で、GLI1はその応答を受けて誘導され、信号を増幅・維持する二次的な役者だというモデルが導かれています[10]。GLI1自身もヘッジホッグに応じてつくられる遺伝子なので、いったんスイッチが入ると自分で自分を強める前向きのループを形づくります。このため、GLI1のmRNA量は「経路がどれくらい働いているか」を測る便利な目印(バイオマーカー)として使われます。
3. GLIの構造とアイソフォーム ─ 同じ設計図から生まれる多彩さ
GLI1・GLI2・GLI3のタンパク質としての大きさは、それぞれGLI1が1,106個、GLI2が1,586個、GLI3が1,580個のアミノ酸からできています[13]。3つに共通してよく似ているのは、真ん中あたりにある5個つらなった亜鉛フィンガーの部分です。GLIとDNAの結合を調べた構造解析では、この5本の指のうち第1の指はDNAに直接触れず、残りの指がDNAの主溝(メジャーグルーブ)に沿って結合することが分かっています[2]。亜鉛フィンガー以外の両端(N末端・C末端)は、3兄弟のあいだで似ている度合いが低く、ここに活性化・抑制・相棒との結合・分解・細胞内での居場所を決める調節領域が散らばっています。
💡 用語解説:アイソフォームとスプライスバリアント
1つの遺伝子からは、部品の組み合わせを変えることで、少しずつ違う複数のタンパク質がつくられることがあります。これを選択的スプライシングといい、そうしてできた「型違い」をアイソフォーム(スプライスバリアント)と呼びます。同じGLIでも、型違いによって働きが変わることがあるため、研究では「どのアイソフォームか」を区別することが大切になります。
GLI1には、実験的に重要な型違いが少なくとも2つ知られています。ひとつはGLI1ΔN(デルタN)で、N末端の128個のアミノ酸を欠く型です[15]。もうひとつはtGLI1という、41個のアミノ酸が抜けた腫瘍関連の型で、脳腫瘍(膠芽腫〔こうがしゅ〕)の研究では、正常な組織よりがん細胞で強く見られ、細胞の移動や浸潤を促す、通常のGLI1とは違う遺伝子群を働かせることが報告されました[16]。ただし、tGLI1がどれくらいの割合のがんに臨床的に意味のある量で存在するのか、診断や治療の目印として十分に再現できるのかは、まだ確立していません。
GLI2にもスプライシングによる型違いがあり、抑制をになうN末端側の領域を除いたものや、途中から翻訳される短い型が報告されています[17]。GLI3にもデータベース上は複数の転写産物が登録されていますが、発生生物学で圧倒的に重要なのは、全長のGLI3と、そこから生じる抑制型のGLI3Rです。個々のスプライス型がどんな生理的役割を持つかは、GLI1ほど確立していないため、「主要な機能的GLI3アイソフォーム」の定義は、現時点では明確なデータが示されていないと考えるのが妥当です。
🩺 院長コラム【「発現量」だけでは語れない世界】
遺伝子の話をするとき、私たちはつい「その遺伝子がどれくらい多いか(発現量)」に目を向けがちです。けれどGLIファミリーは、量だけを見ても本質をとらえきれない、とても示唆に富む存在です。同じGLI3でも、全長のままか、切断されて抑制型になっているかで、働きは正反対になります。同じGLI1でも、型違いのtGLI1は、通常型とは別の遺伝子群を動かします。
臨床遺伝専門医として文献を踏まえると、これは遺伝子検査の結果を読むときの姿勢にも通じます。ある遺伝子に変化が見つかっても、それがタンパク質のどの部分に、どんな性質の変化をもたらすのかを考えなければ、意味を正しく評価できません。「量」だけでなく「状態」を読むことが、GLIの機能や病的バリアントの影響を評価するうえで重要です。
4. ヘッジホッグ経路 ─ GLIを活性型にする号令の流れ
GLIがどう制御されるかを理解するには、その上流にあるヘッジホッグ経路の流れを知る必要があります。哺乳類では、SHH(ソニック・ヘッジホッグ)などの号令分子(リガンド)が、受容体であるPatched(PTCH1)にくっつくと、それまでPTCH1が抑えつけていたSMO(スムーズンド)という分子の抑制が外れます。すると、SMOが一次繊毛という細胞のアンテナに集まり、そこでGLIを活性型へと切り替える号令が伝わります[7]。
💡 用語解説:一次繊毛(いちじせんもう)は「切り替えの反応場」
一次繊毛は、ほとんどの細胞の表面から1本だけ突き出た、アンテナのような小さな突起です。ヘッジホッグ経路では、単なる目印ではなく、GLIとその相棒SUFUの複合体を「活性型」か「抑制型」に変換する反応の現場として働きます。この繊毛の機能が損なわれると、体づくり全体に影響が及びます。
号令がない状態(ヘッジホッグOFF)では、一次繊毛の根元近くで、PKA・GSK3・CK1という3つの酵素がGLI2とGLI3を順番にリン酸化され、βTrCPという目印付け役を介して分解の準備が進みます[7]。とくにGLI3は効率よく部分的に分解され、抑制型のGLI3Rになります。逆に号令が入る状態(ヘッジホッグON)では、SMOの活性化によってこの分解処理が抑えられ、全長のGLI2・GLI3が活性型となって核へ移り、PTCH1・GLI1・HHIPといった標的遺伝子や、組織ごとに固有の遺伝子のスイッチを入れます。
ここで見落とせないのが、この号令の本質が「活性化因子をつくる」ことと「抑制型のGLI3Rを減らす」ことの二重のスイッチになっている点です[11]。ヘッジホッグ刺激が入ると、GLI3Rの生成が減るだけでなく、すでにDNA上にいた抑制型の複合体も標的から外れます。アクセルを踏むと同時にブレーキも緩む——この二段構えが、細胞の応答をくっきりと切り替える鍵になっています。
GLIの相棒であるSUFUも、単純な「細胞質のつなぎ止め役」ではありません。初期の研究では、SUFUはGLI1が核と細胞質を行き来するのを抑える因子とされていました[14]。しかしその後の研究で、SUFUはGLIを安定させ、一次繊毛への輸送や核への移動、DNAへの結合にも寄り添う介添え役(シャペロン)として働くことが分かってきました[11]。強力なブレーキ役でありながら、条件によっては最大のヘッジホッグ応答を成立させるのにも必要という、一見矛盾した性質を持つのです。「ヘッジホッグが入るとSUFUからGLIが完全に離れて核へ行く」という古典的な図式は分かりやすいものの、すべての状態を説明できるわけではない、という理解の見直しが進んでいます。
5. GLI3の切断制御 ─ 指の設計図をつくるグラデーション
GLIファミリーの働きを象徴するのが、GLI3の切断(プロセシング)という仕組みです。ヘッジホッグの号令がない場所では、GLI3はPKAによって何か所もリン酸化され、続いてGSK3とCK1がさらにリン酸を付け加えます[6]。すると、βTrCPという目印付け役がこれを認識し、分解装置であるプロテアソームへ送られます。ここで重要なのは、プロテアソームがGLI3を完全に壊してしまうのではなく、特定の形でC末端側だけを切り落として、抑制型のGLI3Rを生み出すという点です[6]。
この仕組みが、発生中の手足の芽(肢芽〔しが〕)のなかで見事な意味を持ちます。SHHの号令が弱い前方(親指側)ではGLI3Rが多くつくられ、SHHの号令が強い後方(小指側)ではGLI3の切断が抑えられてGLI3Rが少なくなります[6]。こうして前方に多く後方に少ないGLI3Rの濃度のグラデーション(勾配)ができ、これが指の数・種類・成長を決める設計情報になります。指の設計図は、1つの号令の強さを、切断されたタンパク質の量の差へと翻訳することでつくられているのです。
💡 用語解説:モルフォゲンと濃度勾配
体づくりでは、ある物質の「濃さの違い」が、細胞に「あなたはここ」と位置を教えることがあります。このような物質をモルフォゲンと呼びます。SHHはその代表で、濃いところと薄いところで細胞の運命が変わります。GLI3Rの勾配は、このSHHの号令を「読み取った結果」としてできる、体づくりの実際の設計図にあたります。
GLI2も同じようにPKAやβTrCPの制御を受けて部分的に切断されますが、GLI3よりも抑制型をつくる効率が低く、全長のまま完全に分解される道との競争が大きくなります[18]。この差こそが、「GLI2は主に活性化因子、GLI3は主に抑制因子」という役割分担の一因です。SHHはGLI2の切断と分解の両方を抑え、活性型の全長GLI2を増やします[18]。
PKAは単純なオフスイッチではありません。PKAを失ったマウスでは、GLI3Rがつくれなくなるだけでなく、GLI2が過剰に活性化して神経管(のちの脳や脊髄になる管)が強く腹側化します[7]。つまりPKAには「抑制型をつくる」働きと「活性型の生成を防ぐ」働きの両方があり、これがヘッジホッグの濃度差を、活性型と抑制型の比(GLIA/GLIR比)へと変換する要になっています[7]。
6. 発生と体づくり ─ 脳・神経・手足・内臓での役割
GLIファミリーは、体のさまざまな場所で発生を制御しています。まず神経管では、SHHの濃度勾配が、活性型GLI2と抑制型GLI3の比を変えることで、運動神経のもとになる細胞や、いろいろな種類の介在ニューロンのもとになる細胞の境界をつくります。PKAを失うと活性型GLI2が制御不能になって神経管が強く腹側に寄ることから、細胞の運命を実際に決めているのは、SHHの絶対的な濃さそのものよりも、活性型と抑制型のバランスであることが分かります[7]。
脳、とくに前脳(のちの大脳)の背側の形づくりには、GLI3が重要です。GLI3は腹側の性質を抑えるだけでなく、FGF・BMP・WNTといった他の号令の中心の位置や強さにも影響します。そのためGLI3を失ったときの脳の異常は、単一の標的遺伝子が外れた結果ではなく、複数の号令ネットワークが二次的に組み替わった結果として理解する必要があります。
手足(肢芽)は、GLI3の働きが最もはっきり現れる場所のひとつです。前章で見たGLI3Rの前後の勾配が、指の数と種類を決めています[6]。ただし、全長のGLI3を「ただの不活性な材料」とみなすのも正しくありません。マウスの肢芽の研究では、全長GLI3にSHHとは独立した活性化の働きがあり、この活性化が過剰になると親指側に余分な指ができうることが示されています[12]。全長GLI3は「まだ抑制型になっていない前段階」であると同時に、それ自体にも「つける力」を持つ、二面的な存在です。
前腸(肺・気管・食道)の形づくりでも、GLI2とGLI3は互いに重なり合って働きます。GLI2を失ったうえにGLI3の量も減ると、肺の発生障害、食道閉鎖、気管と食道がつながってしまう気管食道瘻(きかんしょくどうろう)などが強く現れることが報告されており、GLIファミリーの出力が、単一の臓器ではなく内胚葉と間葉の相互作用の全体を調整していることが分かります[19]。
組織ごとの役割の違いも整理できます。原則として、GLI2とGLI3はヘッジホッグを受け取る細胞にあらかじめ存在していて、号令を処理する「材料」として働きます。一方GLI1は、号令に応じて誘導される強い応答遺伝子であり、活性化した組織でつくられます。このためGLI1のmRNAは、経路がどれくらい働いているかを測る便利な目印になります。ただし、後述するように成人のがんや炎症の環境ではSMOに依存しない制御が存在するため、発生学的な目印と腫瘍のバイオマーカーを同じものとして扱うことはできません[10][20]。
7. GLIと遺伝性疾患 ─ 変異の「場所」が病気を変える
GLIに関わる病気を考えるときは、GLI2・GLI3の生まれつきの変異(生殖細胞系列変異)による先天異常と、GLI1・GLI2ががんで異常に活性化する場合とを、分けて考えることが大切です。ここではまず、先天異常のほうを見ていきます。とくにGLI3では、変異がタンパク質のどこに起きるかによって、まったく違う病気になるのが特徴です。
💡 用語解説:機能喪失・ハプロ不全・ミスセンス変異
機能喪失型変異とは、その遺伝子の働きが失われるタイプの変化です。ヒトは遺伝子を父方・母方から1つずつ持ちますが、片方が働かなくなっただけで量が足りず不調が出る状態をハプロ不全といいます。ミスセンス変異は、アミノ酸が1個別のものに置き換わる変化です。GLIの病気では、これらのどれが、どの部分に起きるかが症状を左右します。
グレイグ頭蓋多合指趾症候群(GCPS)
1991年、グレイグ症候群の家系で、染色体の入れ替わり(転座)がGLI3を分断していることが示され、GLI3の量の異常とヒトの頭蓋・手足の発生との直接的な関係が確立しました[5]。グレイグ頭蓋多合指趾症候群(GCPS)は、典型的には多指・合指(指が増える・くっつく)、大頭症、両目の間隔が広い眼間開離(がんかんかいり)などを示します。その多くは、GLI3の機能喪失・ハプロ不全で説明できます[5]。
パリスター・ホール症候群(PHS)
同じGLI3でも、亜鉛フィンガーより後ろ(3′側)の特定の領域に集まる、途中で読み枠がずれる変異や終止変異は、パリスター・ホール症候群(PHS)を引き起こします[4]。これは単なるハプロ不全ではなく、C末端の活性化領域を失いながらN末端の抑制の働きを保った短いタンパク質、すなわち「常に抑制し続ける分子」が生じることが特徴です。視床下部過誤腫(かしょうかぶかごしゅ)、中央〜小指側の多指症、喉頭蓋が割れる二分喉頭蓋などが代表的な症状です[4]。同じ遺伝子の変異が、その「場所」によって別の病気になる——遺伝子とタンパク質の関係を考えるうえで、教科書的な例です。
GLI3に関連する多指症
GLI3は、症候群を伴わない多指症とも関わります。後軸性多指症A1型・B型(小指側に指が増えるタイプ)や、軸前性多指症IV型(PPD4)(親指側に指が増えるタイプ)が、GLI3を原因として知られています。前章で見たGLI3Rの前後の勾配が乱れることが、指の数や位置の異常につながると理解できます。
GLI2とCuller–Jones症候群
GLI2の機能喪失は、下垂体の形成異常、成長ホルモンや複数の下垂体ホルモンの欠乏、小指側の多指症、顔の中心線の形成異常(全前脳胞症〔ぜんぜんのうほうしょう〕に似た所見)などを含む、幅広いスペクトラムを生じます[21]。この一群はCuller–Jones症候群(カラー・ジョーンズしょうこうぐん)と呼ばれます。浸透率(変異を持つ人に症状が出る割合)や表現度(症状の強さ)が大きく異なるのが特徴で、かつての「GLI2関連の全前脳胞症」という記載よりも広い表現型として理解されるようになっています[21]。下垂体ホルモンに関わる場合、複合下垂体ホルモン欠損症(CPHD)の観点からの評価につながることもあります。
💡 遺伝形式と家族への影響
グレイグ症候群・パリスター・ホール症候群・Culler–Jones症候群は、いずれも常染色体顕性(優性)遺伝の形をとります。これは、片方の親から変化した遺伝子を受け継ぐと発症しうるという意味で、子への伝わりやすさは原則として1回の妊娠あたり2分の1(50%)です。ただし、浸透率や表現度が可変なため、同じ変異でも症状の重さは人によって異なります。こうした点をどう受け止め、次にどうするかを整理する場が遺伝カウンセリングです。
これらのGLI2・GLI3の病気は、同じ亜鉛フィンガーファミリーであっても、量の不足・常に抑制し続ける状態・活性化因子の不足・組織ごとのモルフォゲン勾配の破綻が、それぞれ異なる先天異常を生むことを示しています。だからこそ、患者さんの遺伝子の変化を解釈するときには、「病的か・そうでないか」だけでなく、その変化がDNA結合・活性化領域・切断・タンパク質の安定性のどこに影響するのかを考える必要があります。
8. GLIとがん ─ 少なくとも3つの異なる仕組み
GLIはがんとも深く関わりますが、その仕組みは少なくとも3種類に分けて考える必要があります。第一は、PTCH1の消失やSMOの活性化などによる、号令なしでも経路が入りっぱなしになるタイプ。第二は、周囲の細胞が出す号令に依存するタイプ。第三は、KRAS・TGF-β・炎症性の酵素などによって、SMOに依存せずGLIが活性化するタイプです[20]。この区別は治療薬の選択にも直結します。とくに第三のタイプでは、経路の上流にあるSMOを止めるだけでは、GLIの出力を十分に抑えられない可能性が高いからです。
神経膠腫・膠芽腫(グリオーマ・GBM)では、GLI1がもともと増幅された遺伝子として発見されました[1]。さらに前述のtGLI1という型違いが、がん細胞の移動や浸潤を促し、通常のGLI1とは異なる遺伝子群を動かすことが報告されています[16]。ただし、tGLI1が全体のどれくらいの割合の腫瘍に臨床的に重要な量で存在するかは、まだ確立していません。
基底細胞がん(BCC)は、ヘッジホッグ経路への依存が最も臨床的に検証されたがんのひとつで、PTCH1やSMOといった上流の異常が、最終的にGLIによる転写を通じて腫瘍をつくります。このためSMO阻害薬が実用化されましたが、治療の途中でSMOの薬の結合部位などに変異が生じ、GLIの信号が再び活性化する例があります。ある解析では、SMO阻害薬耐性となった基底細胞がん44検体中22検体(50%)でSMO変異が同定されました[23]。
SHH型の髄芽腫(ずいがしゅ)でも、PTCH1・SMO・SUFUなどの異常がGLIの出力を活性化します。ここで重要なのは、一次繊毛の役割が、異常の起きる場所によって逆転しうることです。SMOで駆動される髄芽腫では繊毛を除くと腫瘍形成が抑えられる一方、活性型GLI2で駆動されるモデルでは、繊毛を除くとむしろ腫瘍形成が進みました[22]。これは、繊毛がSMOからGLIへの活性化に必要である一方で、抑制型のGLI3Rをつくることで下流のがん化を抑える働きも持つためです。
膵管腺がん(すいかんせんがん・PDAC)は、重要な反例を示しました。KRASで駆動されるマウスの膵がんで、腫瘍上皮のSMOを遺伝学的に取り除いても腫瘍形成は止まらず、GLI1はKRASやTGF-βによってSMOに依存せず維持されていました[20]。つまり、ヘッジホッグの号令が存在するがんであっても、がん細胞自身が古典的なヘッジホッグ経路を使っているとは限らないのです。GLI1が高いという結果だけから、「SMO阻害薬が効く古典的なヘッジホッグがん」と結論することはできません。
この「SMOに依存しないGLI活性化」には、炎症の号令も交差します。ある血液がん(びまん性大細胞型B細胞リンパ腫)のモデルでは、TNFαとIKKβの活性化がGLI1を複数か所リン酸化し、分解を妨げてGLI1を安定化させることが示されました[24]。GLIは、発生の号令の終着点であるだけでなく、さまざまながん化の号令を統合する核内のハブでもあるのです。なお、こうしたがんの話題は、文献・研究動向に基づく専門的な解説として紹介しています。
9. 治療標的と創薬 ─ 「GLIを直接狙う薬」はまだない
GLIをめぐる治療の現状を正しく理解するうえで、最も大切な事実があります。それは、「ヘッジホッグ阻害薬」は存在しても、GLIそのものを選んで直接止める、臨床的に確立した薬はまだないということです。実用化されているビスモデギブ、ソニデジブ、グラスデギブは、いずれも経路の上流にあるSMOを止める薬であって、GLIタンパク質そのものを阻害するわけではありません。
💡 用語解説:SMO阻害薬と「上流・下流」
ヘッジホッグ経路は、号令が上流から下流へと伝わる一本道にたとえられます。SMOはその途中にあり、GLIはいちばん下流にあります。SMO阻害薬は、この途中でスイッチを切る薬です。ところが、SMOより下流(GLI側)に問題があると、上流を止めても号令が下流で再点火してしまうことがあります。ここに、GLIを直接狙う薬が求められる理由があります。
GLIのレベルを狙おうとする物質としては、GANT61、グラブレシオンB、亜ヒ酸(ATO)などが研究されています。GANT61は、SMOやSUFUより下流でGLIを介した転写を阻害できることが示されました[25]。ただし溶液中で化学的に変化するなど扱いが複雑で、最適化された選択的なGLI阻害薬と同一視すべきではありません。グラブレシオンBは、GLI1の亜鉛フィンガーと相互作用してGLI1とDNAの結合を直接妨げる物質で、転写因子のDNA結合面という「薬にしにくい」とされてきた標的をねらう概念実証として重要ですが、本調査で確認できた範囲では、GLI1を選んで狙う承認治療にまでは進んでいません[26]。亜ヒ酸は、GLI2が一次繊毛へ集まるのを妨げ、その安定性を下げることで、髄芽腫のモデルでヘッジホッグ信号と腫瘍増殖を抑えました[27]。ただし、GLIを狙うがん治療として確立しているわけではありません。
💊 GLI・ヘッジホッグ経路をねらう主な薬剤・戦略
| 薬剤・戦略 | 主な作用点 | 臨床の状況(要点) |
|---|---|---|
| ビスモデギブ | SMO(上流) | 進行基底細胞がんで承認。GLIを直接止める薬ではない |
| ソニデジブ | SMO(上流) | 局所進行基底細胞がんで承認。作用点はビスモデギブと同じ |
| グラスデギブ | SMO(上流) | 一部の急性骨髄性白血病で併用承認。GLI直接阻害薬ではない |
| GANT61 | GLI1/2の転写 | 主に前臨床。選択性や薬としての性質に課題[25] |
| グラブレシオンB | GLI1とDNAの結合 | 前臨床の概念実証。承認治療には至っていない[26] |
| 亜ヒ酸(ATO) | 主にGLI2の安定性・繊毛集積 | 別の病気では臨床薬。GLIねらいのがん治療としては確立していない[27] |
※薬剤の効果・安全性・適応は国や時期によって異なり、今後も更新されます。治療の判断は必ず主治医とご相談ください。
なぜGLIを直接狙う薬が求められるのか。その理由が、SMO阻害薬への耐性です。髄芽腫の患者さんで最初期に報告されたSMO阻害薬耐性では、SMOの変異が薬の結合を妨げていました[28]。その後、進行基底細胞がんでも、SMO阻害薬耐性44検体中22検体(50%)でSMO変異が同定され、薬剤存在下でもヘッジホッグシグナルが維持されることが示されました[23]。GLIはSMOより下流にあるため、理論上、GLIを直接止める薬はこの種類の耐性を回避できると期待されます。実際、亜ヒ酸とイトラコナゾール(抗真菌薬)の組み合わせは、SMO阻害薬に耐性となった変異やGLI2の過剰発現に対しても、前臨床で活性を示しました[27]。上流の耐性を、下流や別方向からの阻害で回避するという治療の考え方を支える結果です。
髄芽腫の臨床試験からも、重要な教訓が得られています。再発髄芽腫を対象としたビスモデギブの第II相研究では、薬の効果が主にSHHサブグループに限られ、分子的な異常がSMOの上流にあるか下流にあるかが、反応性を大きく左右しました[29]。「SHHサブグループ」という分類だけでは不十分で、PTCH1→SMO→SUFU→GLIという経路の、どこに異常があるかまで治療選択に組み込む必要があることを示しています[29]。総じて、GLIの理解は「3つの遺伝子の発現量」ではなく、アイソフォーム、全長か切断型か、翻訳後の修飾、SUFUや繊毛との複合体、核内の相棒、駆動変異までを含む、動的な状態のまとまりとしてとらえる方向へと進んでいます。
10. よくある誤解
誤解①「GLI1=活性化、GLI3=抑制で固定」
大まかには正しいのですが、あくまで近似です。GLI2には抑制型が、全長GLI3には活性化能があり、性質は連続的です。とくに全長GLI3とGLI3Rの比が生物学的に意味を持ちます。
誤解②「GLI1が高い=ヘッジホッグがん」
がんではKRASやTGF-β、炎症の号令によって、SMOに依存せずGLI1が上がることがあります。GLI1が高いという結果だけでSMO阻害薬が効くとは限りません。
誤解③「同じ遺伝子の変異なら同じ病気」
GLI3では、変異の場所で病気が変わります。機能喪失ならグレイグ症候群、後方の切断変異ならパリスター・ホール症候群と、位置がタイプを決めます。
誤解④「ヘッジホッグ阻害薬=GLIを止める薬」
実用化されているのはSMO阻害薬で、GLIそのものを直接止める承認薬はまだありません。だからこそSMO耐性の後を見すえ、GLIを狙う研究が進んでいます。
まとめ ─ GLIは「量」ではなく「状態」で読む
GLI転写因子ファミリー(GLI1・GLI2・GLI3)は、ヘッジホッグという体づくりの号令を、遺伝子のオン・オフへと翻訳する最後のスイッチです。GLI1・GLI2は主に遺伝子をつける活性化因子、GLI3は主に消す抑制因子として働きますが、その違いは、DNAをつかむ手の違いよりも、タンパク質の加工・安定性・相棒・繊毛での制御・DNA周辺の環境によって生まれます[3]。とくにGLI3の切断が生む抑制型GLI3Rの前後の勾配は、指の設計図をつくる見事な仕組みです[6]。
この繊細なバランスが崩れると、グレイグ症候群やパリスター・ホール症候群、多指症、Culler–Jones症候群といった先天異常が生じ、また別の仕組みで一部のがんにも関わります。治療の面では、実用化された薬は上流のSMOを止めるものにとどまり、GLIを直接狙う選択的な薬はまだ確立していません。だからこそ、GLIを「3つの遺伝子の量」ではなく、型・全長か切断型か・修飾・複合体・駆動変異を含む「動的な状態」として読み解く視点が、発生生物学と精密医療の双方で、次世代の治療に向けた中心的な課題になっています。遺伝子の働きは、発現量だけでなく、タンパク質の加工状態・修飾・複合体形成などを含めて評価する必要があります。
よくある質問(FAQ)
Q1. GLI転写因子ファミリー(GLI1・GLI2・GLI3)とは何ですか?
体づくりの号令であるヘッジホッグシグナルを受け取り、遺伝子のスイッチを最終的にオン・オフする3種類のタンパク質(転写因子)のことです。5個つらなった亜鉛フィンガーでDNAに結合します。GLI1とGLI2は主に遺伝子を「つける」活性化因子、GLI3は主に「消す」抑制因子として働き、この3兄弟のバランスが、指の数・脳や顔のかたち・下垂体の発達などを決めています。
Q2. GLI1・GLI2・GLI3はどう違うのですか?
大まかには、GLI1が信号を増幅する二次的な活性化因子、GLI2が最初に号令を伝える一次的な活性化因子、GLI3が主に抑制型(GLI3R)として働く因子です。ただしGLI2には抑制型が、全長のGLI3には活性化能もあり、性質は白か黒かではなく連続的です。違いはDNAの認識配列よりも、タンパク質がどう加工され、どんな相棒と組み、どこに運ばれるかで決まります。
Q3. GLIの変化はどんな病気と関係しますか?
GLI3の機能喪失やハプロ不全はグレイグ頭蓋多合指趾症候群を、亜鉛フィンガーより後ろの切断変異はパリスター・ホール症候群を生じます。GLI3は後軸性・軸前性の多指症とも関わります。GLI2の機能喪失は、下垂体形成異常や多指症などを含むCuller–Jones症候群につながります。これらは常染色体顕性遺伝の形をとります。
Q4. なぜ同じGLI3の変異でも別の病気になるのですか?
変異が起きる「場所」によって、タンパク質に生じる変化の性質が違うからです。機能喪失やハプロ不全ではグレイグ症候群になりますが、C末端の活性化領域を失いN末端の抑制の働きを残す切断変異では、常に抑制し続ける分子が生じ、パリスター・ホール症候群になります。変異がDNA結合・活性化領域・切断・安定性のどこに影響するかを考えることが、遺伝子の変化を解釈するうえで大切です。
Q5. GLIを直接止める薬はありますか?
本調査で確認できた範囲では、GLI1・GLI2・GLI3を選んで直接止める、承認された薬はまだありません。実用化されているビスモデギブ・ソニデジブ・グラスデギブは、いずれも経路の上流にあるSMOを止める薬です。SMOより下流に問題があると上流を止めても信号が再点火するため、GLIを直接狙う薬の研究が進められています。治療の判断は必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Identification of an amplified, highly expressed gene in a human glioma. Science. 1987. [PubMed 3563490]
- [2] Crystal structure of a five-finger GLI-DNA complex: new perspectives on zinc fingers. Science. 1993. [PubMed 8378770]
- [3] Gli2, but not Gli1, is required for initial Shh signaling and ectopic activation of the Shh pathway. Development. 2002. [PubMed 12361967]
- [4] GLI3 frameshift mutations cause autosomal dominant Pallister-Hall syndrome. Nature Genetics. 1997. [PubMed 9054938]
- [5] GLI3 zinc-finger gene interrupted by translocations in Greig syndrome families. Nature. 1991. [PubMed 1650914]
- [6] Hedgehog-regulated processing of Gli3 produces an anterior/posterior repressor gradient in the developing vertebrate limb. Cell. 2000. [PubMed 10693759]
- [7] Protein kinase A acts at the basal body of the primary cilium to prevent Gli2 activation and ventralization of the mouse neural tube. Development. 2011. [PubMed 22007132]
- [8] The GLI gene is a member of the Kruppel family of zinc finger proteins. Nature. 1988. [Nature 332371a0]
- [9] Numb is a suppressor of Hedgehog signalling and targets Gli1 for Itch-dependent ubiquitination. Nature Cell Biology. 2006. [PubMed 17115028]
- [10] Mouse Gli1 mutants are viable but have defects in SHH signaling in combination with a Gli2 mutation. Development. 2000. [PubMed 10725236]
- [11] Suppressor of Fused chaperones Gli proteins to generate transcriptional responses to Sonic Hedgehog signaling. Molecular and Cellular Biology. 2017. [PubMed 27849569]
- [12] The Shh-independent activator function of the full-length Gli3 protein. [PMC1952533]
- [13] Transcription activator GLI1 – Homo sapiens (Human). UniProtKB. [UniProt P08151]
- [14] Mammalian suppressor-of-fused modulates nuclear-cytoplasmic shuttling of Gli-1. Nature Cell Biology. 1999. [PubMed 10559945]
- [15] Novel human glioma-associated oncogene 1 (GLI1) splice variants reveal distinct mechanisms in the terminal transduction of the Hedgehog signal. Journal of Biological Chemistry. 2008. [PubMed 18378682]
- [16] A novel splice variant of GLI1 that promotes glioblastoma cell migration and invasion. Cancer Research. 2009. [PMC2771365]
- [17] A potential role of alternative splicing in the regulation of the transcriptional activity of human GLI2 in gonadal tissues. BMC Molecular Biology. 2006. [PubMed 16553965]
- [18] Sonic hedgehog signaling regulates Gli2 transcriptional activity by suppressing its processing and degradation. Molecular and Cellular Biology. 2006. [PMC1447407]
- [19] Essential function of Gli2 and Gli3 in the formation of lung, trachea and oesophagus. Nature Genetics. 1998. [PubMed 9731531]
- [20] GLI1 is regulated through Smoothened-independent mechanisms in neoplastic pancreatic ducts and mediates PDAC cell survival and transformation. Genes & Development. 2009. [PubMed 19136624]
- [21] Loss-of-function mutations in the human GLI2 gene are associated with pituitary anomalies and holoprosencephaly-like features. PNAS. 2003. [PubMed 14581620]
- [22] Dual and opposing roles of primary cilia in medulloblastoma development. Nature Medicine. 2009. [PubMed 19701203]
- [23] Smoothened variants explain the majority of drug resistance in basal cell carcinoma. Cancer Cell. 2015. [PubMed 25759020]
- [24] Active IKKβ promotes the stability of GLI1 oncogene in diffuse large B-cell lymphoma. 2016. [PubMed 26603838]
- [25] Inhibition of GLI-mediated transcription and tumor cell growth by small-molecule antagonists. PNAS. 2007. [PMC1866313]
- [26] Gli1/DNA interaction is a druggable target for Hedgehog-dependent tumors. EMBO Journal. 2015. [PubMed 25476449]
- [27] Arsenic antagonizes the Hedgehog pathway by preventing ciliary accumulation and reducing stability of the Gli2 transcriptional effector. PNAS. 2010. [PubMed 20624968]
- [28] Smoothened mutation confers resistance to a Hedgehog pathway inhibitor in medulloblastoma. Science. 2009. [PubMed 19726788]
- [29] Vismodegib exerts targeted efficacy against recurrent Sonic Hedgehog-subgroup medulloblastoma: results from phase II Pediatric Brain Tumor Consortium studies. Journal of Clinical Oncology. 2015. [PubMed 26169613]






