

目次
- 1 1. METTL3とは ─ RNAに目印を書き込む「ライター」
- 2 2. m6Aとエピトランスクリプトミクス ─ 遺伝子制御の「第三の層」
- 3 3. タンパク質の構造 ─ 「認識する部分」と「反応する部分」
- 4 4. 酵素複合体のしくみ ─ 一人では働けない酵素
- 5 5. RNAを制御するしくみ ─ 目印に頼る道と、頼らない道
- 6 6. 非コードRNAへの作用 ─ miRNA・XIST・トランスポゾン
- 7 7. 発生・幹細胞・老化における役割
- 8 8. がんとの二面性 ─ 進める側にも、抑える側にも
- 9 9. ウイルス感染と免疫の制御
- 10 10. 分子標的薬の最前線 ─ RNA修飾を狙う新しい薬
- 11 11. よくある誤解
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事
📍 クイックナビゲーション
遺伝情報はDNAに書かれ、それがRNAに写し取られてタンパク質になる——この流れは多くの方がご存じかもしれません。ところが近年、その「RNAのレベル」でも、DNAを書き換えずに遺伝子の働きを細かく調整するしくみがあることが分かってきました。その主役の一つが「METTL3(メチルトランスフェラーゼ様3)」という酵素をつくる遺伝子です。METTL3は、RNAにm6A(エムシックスエー)という小さな化学的な目印を書き込む「ライター」として働き、がん・ウイルス感染・幹細胞・老化など、幅広い生命現象に関わっています。そしていま、この酵素を狙った新しいタイプの抗がん剤が、世界で初めて臨床試験の段階に入りました。この記事では、METTL3の働きから最新の治療研究までを、遺伝専門医の視点でやさしく解説します。
Q. METTL3とはどんな遺伝子ですか?まず結論だけ知りたいです
A. METTL3は、RNAに「m6A」という化学的な目印を付ける酵素をつくる遺伝子です。この目印は、RNAが安定して残るか、すぐ壊されるか、どれだけタンパク質に翻訳されるかを左右し、細胞の分化・発生・代謝・免疫を細かく調整します。METTL3の働きが過剰になると多くのがんで進行を後押しする一方、がんの種類によっては逆にブレーキ役にもなります。近年はこの酵素を狙った分子標的薬の開発が進んでいます。なお、METTL3は主にがんや創薬の文脈で注目される遺伝子で、生まれつきの遺伝性疾患の原因としては現在ほとんど知られていません。
- ➤正体 → METTL3-METTL14を中心とするm6Aライター複合体の触媒サブユニット。全長580アミノ酸・約70 kDaのタンパク質
- ➤働き → RNAの安定性・翻訳・スプライシングなどを調整し、細胞の運命を左右する「第三の遺伝子制御層」を担う
- ➤二つの顔 → m6Aを付ける「酵素」としての働きに加え、酵素活性に頼らない翻訳促進という別の働きも持つ
- ➤がんとの関係 → 多くのがんで過剰に働き進行を後押しするが、一部のがんでは逆に抑制的にはたらく文脈依存性がある
- ➤治療研究 → 阻害薬STC-15がヒトでの臨床試験に到達。RNA修飾を標的とする世界初の抗がん薬として注目
🧬 METTL3の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. METTL3とは ─ RNAに目印を書き込む「ライター」
METTL3は、細胞の中でRNAに小さな化学的な目印を付ける酵素をつくる遺伝子です。付けられる目印の名前をm6A(N6-メチルアデノシン)といい、RNAを構成する4種類の部品のうち「アデノシン」という部品の特定の位置に、メチル基という小さな化学のパーツを1つ加えたものです。DNAの塩基配列そのものは何も変わりませんが、この目印があるかないかで、そのRNAが細胞の中でどう扱われるかが大きく変わります(m6A修飾のくわしい解説はこちら)。
m6Aは、mRNAや長鎖ノンコーディングRNAの内部にもっとも多く見られる修飾です。RNAの安定性、スプライシング、細胞内での運ばれ方、リボソームによる翻訳のされやすさなどを、動的かつ元に戻せる形で調整し、細胞の分化・発生・代謝・免疫応答に深く関わっています[2]。
💡 用語解説:ライター・リーダー・イレイサー
m6Aの世界は、しばしば文章の校正にたとえられます。目印を「書き込む」酵素をライター(writer)、書き込まれた目印を「読み取って」次のはたらきにつなげるタンパク質をリーダー(reader)、目印を「消す」酵素をイレイサー(eraser)と呼びます。METTL3は、このうち目印を書き込むライターの中心となる酵素です。DNAメチル化やヒストン修飾がDNA側の目印であるのに対し、m6AはRNA側の目印であり、遺伝子の働きを調整する「第三の層」として注目されています。
METTL3は1990年代に同定された歴史のある分子で、当初は「MT-A70」と呼ばれていました。メチル基の供与体であるSAM(S-アデノシルメチオニン)という物質からメチル基を受け取り、標的となるRNAのアデノシンに移し替えます。目印が付く場所は無作為ではなく、「DRACH」と呼ばれる特定の並び(コンセンサス配列)のアデノシンが選ばれます。近年の研究では、METTL3が単に目印を書き込むだけでなく、後で述べるように、酵素としての活性に頼らない別の働きも持つことが分かってきました[3]。
2. m6Aとエピトランスクリプトミクス ─ 遺伝子制御の「第三の層」
遺伝子の働きは、DNAの塩基配列だけで決まるわけではありません。DNAに直接メチル基を付けるDNAメチル化や、DNAを巻き取るタンパク質を化学的に飾るヒストン修飾など、配列を変えずに働きを調整するしくみを総称してエピジェネティクスと呼びます。これに対し、RNAの側で行われる同様の調整をエピトランスクリプトミクス(RNAエピジェネティクス)と呼びます。
m6Aは、そのエピトランスクリプトミクスの中心にある修飾です。ヒトやマウスのmRNAでは、m6Aは終止コドン(翻訳の終わりの合図)の近くや3’非翻訳領域に集まりやすいことが知られています。METTL3が付けたm6Aは、細胞質にあるリーダータンパク質によって読み取られ、そのRNAを「安定させる」「壊す」「よく翻訳させる」といった、まったく異なる運命へと振り分けます。DNAの塩基配列という設計図を書き換えずに、その設計図の「使い方」を細かく調整している——それがm6Aとエピトランスクリプトミクスの本質です[2]。
この目印を細胞全体で調べるシーケンシング技術も進化してきました。2012年の初期手法(MeRIP-seq)では位置の特定が100〜200塩基ほどの精度でしたが、その後は1塩基の精度で突き止められる手法が次々に開発され、m6Aが付く場所とその変化がより正確に地図化されるようになっています。こうした技術の進歩が、METTL3の理解を大きく後押ししてきました。
3. タンパク質の構造 ─ 「認識する部分」と「反応する部分」
METTL3のタンパク質は580個のアミノ酸からできており、大きく分けて2つの重要な部分を持っています。1つはRNAの正しい場所を見つける「認識する部分」、もう1つは実際にメチル基を移す化学反応を担う「反応する部分」です。X線を使った結晶構造解析によって、これらの部分の立体的な形が原子レベルで明らかにされてきました。
METTL3タンパク質の2つの主要部分
① 認識する部分(ジンクフィンガー)
N末端側にある亜鉛を含む構造で、「GGACU」などの特定の並びを含むRNAを見つけ出します。この部分がないと、酵素の中心にRNAを正しく導けません。
② 反応する部分(メチル基転移ドメイン)
C末端側にあり、メチル基の供与体であるSAMを収める「ポケット」と、反応の要になる「DPPWモチーフ」を持ちます。ここで実際にメチル基が移されます。
反応の中心にあるのが「DPPWモチーフ」と呼ばれる4つのアミノ酸の並び(アスパラギン酸・プロリン・プロリン・トリプトファン)です。このうちのアスパラギン酸をアラニンという別のアミノ酸に置き換えると、SAMとの結合とメチル化の働きが完全に失われることが実験で示されています。つまりこの1か所が、酵素の心臓部にあたります[4]。
結晶構造解析(PDB 5IL1・7O2Iなど)によって、SAMや反応後の副産物が結合すると酵素の一部が動いてポケットを閉じる「ゲート」のような動きをすることも確かめられています。こうした立体構造の知見は、後で述べる阻害薬の設計に直接役立っています[5]。
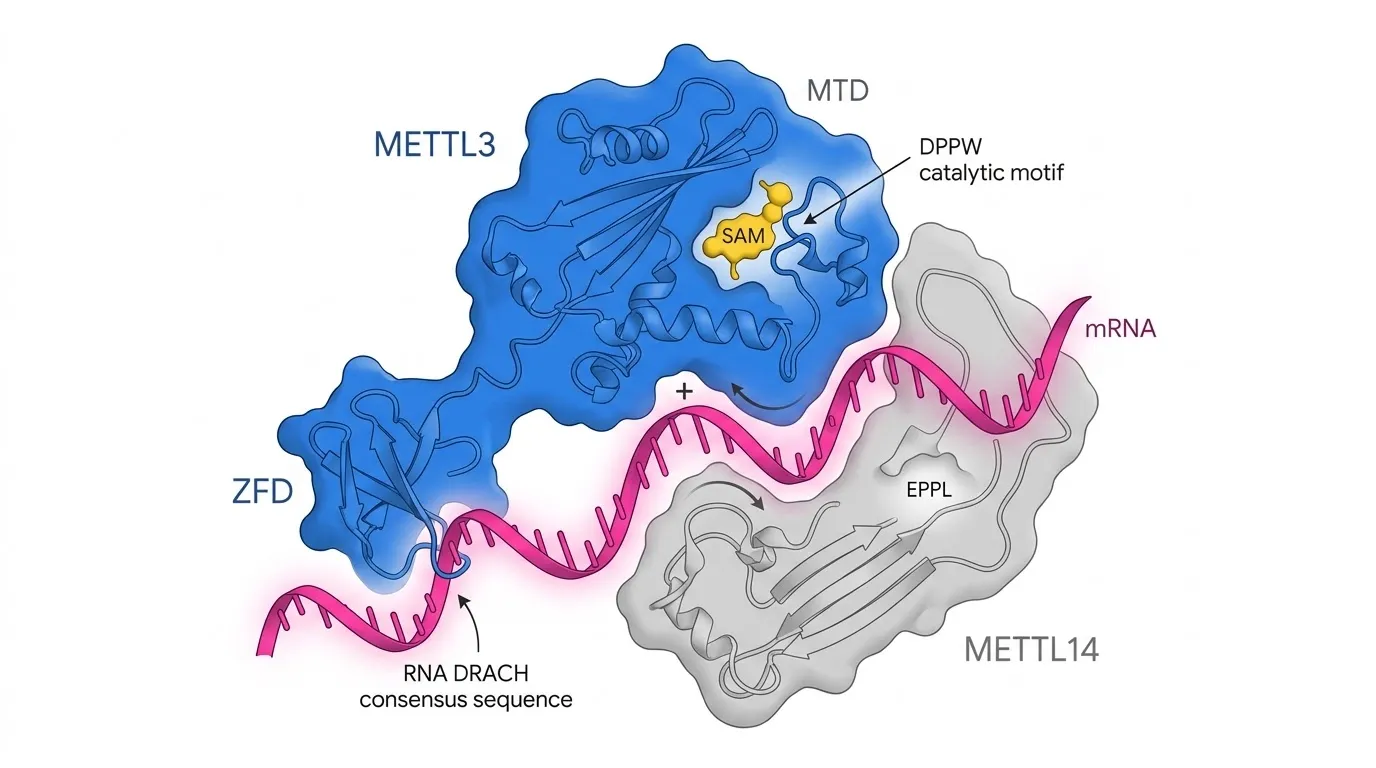
上の図は、METTL3とMETTL14が1対1のヘテロ二量体をつくり、RNAを認識してm6A修飾を行うしくみを立体構造として示したものです。METTL3のジンクフィンガードメイン(ZFD)がRNA上のDRACHコンセンサス配列を認識して触媒部位へ導き、メチル基転移酵素ドメイン(MTD)のSAM結合ポケットとDPPWモチーフが実際のメチル基転移反応を担います。一方、METTL14はMETTL3と似た構造を持ちながら触媒活性を持たず、RNA結合面と複合体の構造を支える足場として働きます。つまり、METTL3が「反応を進める酵素」、METTL14が「反応しやすい形を整える土台」という役割分担になっています。
4. 酵素複合体のしくみ ─ 一人では働けない酵素
METTL3は、細胞の中で単独ではうまく働けません。実際には、いくつかのタンパク質が集まった大きな複合体(m6Aライター複合体)を組むことで、効率よく、しかも正確な場所にm6Aを付けています。その中心となるのが、METTL3とMETTL14という2つのタンパク質がぴったり1対1で組んだペア(ヘテロ二量体)です。
興味深いことに、パートナーであるMETTL14はMETTL3とよく似た形をしていますが、それ自体はメチル基を移す力を持たない「偽酵素(pseudoenzyme)」です。METTL3のDPPWモチーフに相当する位置に「EPPL」という似て非なる並びを持ちますが、これはメチル基の供与体を結合できません。その代わりMETTL14は、複合体の形を安定させ、標的となるRNAを結合させる「土台」を提供し、METTL3の酵素としての働きを高める役割を担っています。結晶構造の研究では、SAMがMETTL3のポケットにだけ収まり、METTL14には収まらないことが確認され、「METTL3が触媒の中心、METTL14はRNA結合の土台」という役割分担が裏づけられました[6]。
💡 用語解説:偽酵素(pseudoenzyme)
偽酵素とは、酵素とよく似た形を持ちながら、化学反応を進める力そのものは失った(あるいはもともと持たない)タンパク質のことです。一見むだに思えますが、実際にはパートナーを安定させたり、標的を結合させる足場になったりと、重要な「裏方」の役割を果たします。METTL14はその典型例で、METTL3という「職人」を支える「作業台」のような存在です。
この中心ペアには、さらに複数の補助役が加わります。複合体を核内の核スペックルに配置する足場となるWTAP、m6Aを付ける場所の特異性を決めるVIRMA、複合体を核内にとどめるZC3H13、特定のRNAへ複合体を導くRBM15/RBM15Bなどです。こうした多くの部品が組み合わさることで、METTL3は「正しいRNAの、正しい場所に」目印を付けられます[2]。

院長コラム:一つの遺伝子を「点」でなく「ネットワーク」で見る
遺伝子検査の外来でも、「この遺伝子は何をするのですか」とよく尋ねられます。METTL3のような分子を理解するうえで大切なのは、一つの遺伝子を孤立した「点」として覚えるのではなく、パートナーや補助役とともに働く「ネットワーク」の一部として捉える視点です。METTL3が単独では働けず、METTL14やWTAPと組んで初めて機能するという事実は、生命の設計図がいかにチームプレーで動いているかをよく表しています。遺伝の話は複雑に見えますが、「誰と、どこで、何をするのか」を一つずつ整理していくと、全体像が見えてきます。
5. RNAを制御するしくみ ─ 目印に頼る道と、頼らない道
METTL3がRNAを制御する方法には、大きく2つの道があります。1つは、付けたm6Aをリーダータンパク質が読み取ることで働く「王道」の経路。もう1つは、METTL3自身が翻訳の機械に直接関わる、少し変わった経路です。
m6Aを「読む」タンパク質が運命を決める
核内で転写とほぼ同時にMETTL3が付けたm6Aは、主にYTHドメインを持つタンパク質(YTHDF1/2/3、YTHDC1/2)やIGF2BP群によって読み取られます。どのリーダーが読むかで、RNAの運命は次のように分かれます。
同じm6Aという目印でも、読み手が違えば「壊す」「守る」「よく訳す」とまったく逆の結果になります。これがm6Aによる制御の奥深さであり、細胞が状況に応じて柔軟に遺伝子の使い方を切り替えられる理由でもあります[2]。
目印に頼らない「もう一つの顔」
METTL3には、m6Aを付けるという酵素の働きに頼らずに、遺伝子の発現を直接後押しする「もう一つの顔」があります。急性骨髄性白血病や胃がんなどのがん細胞では、METTL3が本来いるべき核から細胞質へと異常に移動することがあります。細胞質に出たMETTL3は、mRNAの3’非翻訳領域に結合し、翻訳開始因子の一つであるeIF3hと直接手をつなぎます[7]。
この結びつきによってmRNAの端どうしがループ状に近づき、リボソームが繰り返し使われやすくなり、EGFRやBRD4といった、がんを進めるタンパク質の翻訳が大きく増えます。重要なのは、このしくみがメチル化活性を失わせる変異を入れても保たれる点で、まさに「酵素活性に頼らない」働きです。加えてPABPC1と手を組む経路も報告されています[8]。METTL3が創薬標的として難しいのは、この働きまで含めて止める必要があるためで、後の分子標的薬のセクションで改めて触れます。
6. 非コードRNAへの作用 ─ miRNA・XIST・トランスポゾン
METTL3が制御するのは、タンパク質の設計図であるmRNAだけではありません。タンパク質にならないノンコーディングRNAにも、決定的な影響を及ぼします。
マイクロRNAの成熟を助ける
マイクロRNA(miRNA)は、遺伝子の働きを抑える小さなRNAです。METTL3は、その未成熟な前駆体(pri-miRNA)にm6Aを付けます。この目印が、マイクロプロセッサー複合体の一員であるDGCR8というタンパク質に認識され、pri-miRNAの加工と成熟が進みます[9]。たとえば膀胱がんでは、METTL3がpri-miR-221/222の成熟を促すことで腫瘍抑制遺伝子であるPTENの量が下がり、がん細胞の増殖が進むしくみが報告されています[10]。
X染色体の不活化を支える
女性など2本のX染色体を持つ細胞では、片方のX染色体の働きが止められます。このX染色体不活化の司令塔となるのが、XISTという長鎖ノンコーディングRNAです。ヒトのXISTには少なくとも78か所ものm6Aが付いており、この修飾にはRBM15/RBM15Bを介したMETTL3の働きが関わっています。付いたm6Aを核内のリーダーであるYTHDC1が読み取ることが、XISTによる遺伝子の抑制に必要であることが示されています[11]。なお、この分野は研究が活発で、m6AがXISTの「働き」よりも「分解のタイミング」を主に制御しているとする新しい報告も出ており、細かなメカニズムは今も議論が続いています。
トランスポゾンを抑え込む
私たちのゲノムには、LINE1や内在性レトロウイルスなど、動き回る性質を持つ配列(トランスポゾン)が多数含まれています。マウス胚性幹細胞では、これら由来のRNAがMETTL3にメチル化され、m6AをYTHDC1が読み取ると、ヒストンメチル化酵素SETDB1と補助役TRIM28が呼び込まれて抑制的な目印H3K9me3が置かれます。こうしてトランスポゾンの転写が抑えられ、ゲノムの安定が保たれます。METTL3を失わせると、これらの配列が異常に活性化します[12]。
7. 発生・幹細胞・老化における役割
幹細胞が「次の段階へ進む」ためのスイッチ
受精卵から体をつくる過程で、多能性を持つ幹細胞は、やがて特定の細胞へと分化していきます。この移行にm6Aが深く関わっています。正常な状態では、METTL3がNanog、SOX2、KLF4といった多能性の中心因子のmRNAにm6Aを付けます。分化の合図が入ると、これらのmRNAはYTHDF2などによって速やかに分解され、幹細胞は多能性から抜け出して分化へ進めます[13]。
そのためマウスでMETTL3を働かなくすると、多能性因子のmRNAが異常に長く残り、分化の合図があっても多能性から抜け出せず、着床後の初期胚が育たない原因になります。一方で、細胞の状況によっては逆に分化が進むという文脈依存的な報告もあり、標的RNAの選ばれ方が細胞の状態でダイナミックに変わることが示唆されています[13]。
細胞老化とのつながり
METTL3は、細胞が分裂を止めながらも代謝的に活動を続ける細胞老化にも関わります。近年の研究では、老化の進行にともなって、E3リガーゼであるPRKN(パーキン)を介したユビキチン・プロテアソーム系によってMETTL3タンパク質の分解が進む経路が報告されています。これにより細胞内のm6Aレベルが下がり、テロメアを守る複合体(シェルタリン)の構成要素であるTRF2やPOT1のmRNAが不安定になり、テロメアの機能不全を通じて細胞老化が加速するというしくみです[14]。
8. がんとの二面性 ─ 進める側にも、抑える側にも
🔍 関連記事:癌遺伝子(オンコジーン)/上皮間葉転換(EMT)/がん幹細胞
がんにおけるMETTL3の姿は、非常に複雑です。がんの種類や、腫瘍を取り巻く環境(微小環境)によって、がんを進める「発癌遺伝子」としても、がんを抑える「腫瘍抑制遺伝子」としても働きます。この文脈依存性が、METTL3を理解するうえで最も重要なポイントです。
多くのがんでは「進める側」
多くの血液がんや固形がんでは、METTL3が過剰に働き、予後の悪さと強く関連します。代表例が急性骨髄性白血病(AML)で、METTL3が過剰になるとc-MYCやBCL2などのmRNAが安定化・翻訳促進され、白血病幹細胞の自己複製が保たれ、分化やアポトーシス(細胞の自然死)が抑えられます[15]。
とくに免疫からの逃避については、乳がんのモデルで、METTL3がIGF2BP3を介して免疫チェックポイント分子PD-L1のmRNAを安定化させ、腫瘍局所でT細胞の疲弊を促すことが報告されています[16]。これは、METTL3を止めることが抗腫瘍免疫の回復につながりうることを示す、重要な手がかりです。
一部のがんでは「抑える側」
一方で、特定のがんではMETTL3の欠損がむしろ腫瘍の進行を促す、抑制的な働きも報告されています。たとえば乳頭状甲状腺がんや一部の膀胱がん、特定の非小細胞肺がんのモデルでは、METTL3が腫瘍抑制的に機能します。甲状腺がん細胞でMETTL3を過剰に働かせると、免疫を抑える制御性T細胞の浸潤が減り、攻撃役のT細胞が増えることで、腫瘍の微小環境が免疫応答しやすい状態に改善したという報告もあります[15]。「METTL3を止めればどんながんにも効く」という単純な話ではないことが、ここからも分かります。
9. ウイルス感染と免疫の制御
METTL3が付けるm6Aは、宿主の遺伝子だけでなく、細胞に入り込んだウイルスのRNAにも付けられます。これにより、ウイルスの増え方と、宿主の自然免疫のバランスが調整されます。
新型コロナウイルス(SARS-CoV-2)を例にとると、このウイルスのRNAは、とくに3’末端側で高いレベルのm6A修飾を受けます。METTL3によってメチル化されたウイルスRNAは、細胞質にある強力なセンサーであるRIG-Iに「二本鎖RNA」として見つかりにくくなります。その結果、下流の免疫シグナルの活性化が抑えられ、I型インターフェロンや炎症性サイトカインの産生が抑制されます。逆に、METTL3を薬で抑えたり働かなくしたりすると、ウイルスRNAのm6Aが減ってRIG-Iに見つかりやすくなり、強力なインターフェロン応答が起きてウイルスの増殖が抑えられることが示されています[17]。
💡 用語解説:RIG-Iと自然免疫
RIG-Iは、細胞の中でウイルスのRNAをいち早く見つけ出す「見張り役」のセンサーです。ウイルスに特徴的な二本鎖RNAなどを感知すると、警報を鳴らしてインターフェロンという防御物質の産生を促します。これが、生まれつき備わっている防御システム「自然免疫」の最前線です。ウイルスがm6Aを利用して自分のRNAを「隠す」のは、この見張り役の目をかいくぐるための巧妙な戦略といえます。
さらにMETTL3は、酵素活性に頼らないしくみでDEAD-boxヘリカーゼ3X(DDX3X)というタンパク質を安定させることによっても、免疫の抑制に関わることが報告されています[18]。ウイルス側から見れば、METTL3は自分のRNAを免疫の監視から隠すために乗っ取りたい相手であり、逆に治療する側から見れば、METTL3を止めることで眠っている免疫を呼び覚ませる可能性がある——この二面性が、後述する分子標的薬の考え方にもつながっています。
10. 分子標的薬の最前線 ─ RNA修飾を狙う新しい薬
🔍 関連記事:分子標的治療/PROTAC/免疫チェックポイント阻害薬
METTL3のがんへの関与が明らかになったことで、この酵素は分子標的治療の有望な標的として、世界的な注目を集めています。開発の主流は、METTL3の酵素部分にあるSAM結合ポケットに割り込んで働きを止める「競合的阻害薬」です。
最初のブレイクスルー:STM2457
「STM2457」は、2021年に報告された、世界で初めての高い効き目と選択性を持つMETTL3阻害薬です。構造生物学の知見をもとに設計され、SAM結合ポケットに深く入り込んで、重要な触媒残基と強く結びつきます(複合体の結晶構造はPDB 7O2I)。非常に低い濃度(IC50が16.9 nM)で働き、ほかのメチル基転移酵素にはほとんど作用しない高い選択性を持つため、的外れな副作用を抑えられると期待されています[19]。
前臨床のAMLモデルでは、STM2457を経口投与すると、正常な造血機能に大きな害を与えることなく白血病幹細胞の増殖を止め、分化とアポトーシスを促し、マウスの生存期間を延ばしました[19]。さらに固形腫瘍モデルでは、METTL3を止めることで細胞内に二本鎖RNAがたまり、前のセクションで触れたインターフェロン応答が目覚めて抗腫瘍免疫が活性化することも示されています。
ヒトでの臨床試験へ:STC-15
STM2457のプロファイルをさらに最適化して生まれた「STC-15」は、RNA修飾酵素を標的とする薬として、世界で初めてヒトでの臨床試験(第1相)に進みました。その中間データは2024年の米国臨床腫瘍学会(ASCO)などで発表され、注目を集めています[20]。主な内容は次のとおりです。
STC-15 第1相試験のポイント(進行がん患者対象)
約11%
評価可能な患者での奏効率(腫瘍が縮小した割合)
約63%
病勢コントロール率(進行が止まった割合)
低下を確認
投与後、血中RNAのm6Aが低下し標的への到達を確認
投与後に末梢血mRNAのm6Aレベルが顕著に低下し、薬がねらいどおりMETTL3に届いていることが確かめられました。有害事象は血小板減少や発疹などでおおむね管理可能な範囲にとどまり、週3回の経口投与という推奨用量が確立されています。評価可能な患者では奏効率が約11%、病勢コントロール率が約63%で、単剤でも明確な臨床活性が確認されました[20]。その後、2026年のASCOでは肉腫のサブセット解析も報告されています[21]。
現在、STC-15は単剤での試験に加えて、免疫チェックポイント阻害薬との併用試験も進められています。METTL3を止めることで腫瘍の微小環境の免疫を活性化させ、免疫チェックポイント阻害薬との相乗効果を狙う、という発想です。ただしこれらはまだ研究段階であり、標準治療として確立したものではありません。
次世代の戦略:タンパク質分解薬(PROTAC)
従来の阻害薬は、酵素としてのメチル化の働きは止められますが、前に述べたMETTL3の「酵素活性に頼らない翻訳促進」や、足場としての働きまでは完全には止められません。この課題を乗り越えるために開発が進んでいるのが、PROTAC(標的タンパク質分解誘導キメラ)と呼ばれる新しいタイプの分子です。
PROTACは、METTL3に結合する部分と細胞の分解装置を呼び込む部分を1本のリンカーでつないだ分子で、METTL3タンパク質そのものを分解へ導きます。酵素としての働きと足場としての働きの両方を同時に消せる点が、従来の阻害薬にはない強みです。基礎研究・前臨床の段階ですが、AMLの細胞株で従来の阻害薬を上回る効果が示され始めています[22]。
院長コラム:基礎研究が「臨床の武器」に変わる瞬間
がん薬物療法の資格を持つ立場として研究の動向を追っていると、METTL3の物語は、基礎研究の概念が現実の治療候補へと姿を変えていく過程そのものだと感じます。RNAに付く小さな目印という、10年ほど前まで多くの人が「地味」と思っていた現象が、いまや世界初の抗がん薬の標的になっています。もちろんSTC-15はまだ臨床試験の段階で、標準治療になったわけではありません。それでも、こうした新しい標的が生まれ、患者さんの選択肢が少しずつ広がっていくことに、大きな希望を感じています。新しい治療の情報に触れたときは、「どの段階の研究なのか(前臨床か、臨床試験か、承認済みか)」を一緒に確認することを、いつもお勧めしています。
11. よくある誤解
誤解①「METTL3はいつもがんを進める悪玉」
多くのがんでは進行を後押ししますが、甲状腺がんなど一部のがんでは逆に抑制的に働きます。METTL3の役割は、がんの種類や環境によって変わる文脈依存的なものです。
誤解②「METTL3はm6Aを付けるだけの酵素」
目印を付ける酵素の働きに加えて、酵素活性に頼らず翻訳を直接後押しする「もう一つの顔」を持ちます。この二面性が、創薬を難しくする一因でもあります。
誤解③「METTL3の検査で遺伝性のがんが分かる」
METTL3は主にがん細胞での体細胞の変化や発現の問題として注目される遺伝子で、生まれつき受け継ぐ遺伝性疾患の原因としては現状ほとんど知られていません。遺伝性がんの検査対象とは考え方が異なります。
誤解④「阻害薬STC-15はもう使える薬」
STC-15は第1/2相の臨床開発段階にある研究中の薬です。有望な結果が報告されていますが、標準治療として承認・確立されたわけではありません。
よくある質問(FAQ)
🏥 遺伝子や体質に関わるご相談
遺伝子と病気の関わりや、遺伝的な背景についての
遺伝子検査と遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
参考文献
- [1] METTL3 methyltransferase 3, N6-adenosine-methyltransferase complex catalytic subunit [Homo sapiens] – Gene ID 56339. [NCBI Gene 56339]
- [2] The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021. [Signal Transduct Target Ther]
- [3] The m6A Methyltransferase METTL3 Promotes Translation in Human Cancer Cells. Mol Cell. 2016. [Molecular Cell]
- [4] Structural Basis for Cooperative Function of Mettl3 and Mettl14 Methyltransferases. Mol Cell. 2016. [Molecular Cell]
- [5] Structural insights into the molecular mechanism of the m6A writer complex. eLife. 2016. [PMC5023411]
- [6] Structural basis of N6-adenosine methylation by the METTL3-METTL14 complex. Nature. 2016. [PubMed 27281194]
- [7] mRNA circularization by METTL3-eIF3h enhances translation and promotes oncogenesis. Nature. 2018. [Nature]
- [8] METTL3 preferentially enhances non-m6A translation of epigenetic factors and promotes tumourigenesis. Nat Cell Biol. 2022. [Nature Cell Biology]
- [9] N6-methyladenosine marks primary microRNAs for processing. Nature. 2015. [Nature]
- [10] METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019. [PMC6588935]
- [11] m6A RNA methylation promotes XIST-mediated transcriptional repression. Nature. 2016. [PubMed 27602518]
- [12] The RNA m6A reader YTHDC1 silences retrotransposons and guards ES cell identity. Nature. 2021. [Nature]
- [13] Stem cells. m6A mRNA methylation facilitates resolution of naïve pluripotency toward differentiation. Science. 2015. [PubMed 25569111]
- [14] PRKN-Mediated Ubiquitin-Proteasome Degradation of METTL3 Promotes Cellular Senescence. Aging Cell. 2025. [PMC12745842]
- [15] Roles of METTL3 in cancer: mechanisms and therapeutic targeting. Mol Cancer. 2020. [PMC7457244]
- [16] METTL3/IGF2BP3 axis inhibits tumor immune surveillance by upregulating N6-methyladenosine modification of PD-L1 mRNA in breast cancer. Mol Cancer. 2022. [PMC8864846]
- [17] METTL3 regulates viral m6A RNA modification and host cell innate immune responses during SARS-CoV-2 infection. Cell Rep. 2021. [PubMed 33961823]
- [18] Distinct pathways utilized by METTL3 to regulate antiviral innate immune response. iScience. 2024. [PubMed 39759074]
- [19] Small-molecule inhibition of METTL3 as a strategy against myeloid leukaemia. Nature. 2021. [Nature]
- [20] Phase 1 dose escalation and cohort expansion study evaluating safety, PK, PD and clinical activity of STC-15, a METTL-3 inhibitor, in patients with advanced malignancies. J Clin Oncol. 2024. [Journal of Clinical Oncology]
- [21] A subset analysis of clinical activity and pharmacodynamic biomarkers in patients with sarcomas in the phase 1 dose-escalation study of STC-15, a METTL3 inhibitor. J Clin Oncol. 2026;44(16_suppl):11548. [Journal of Clinical Oncology]
- [22] Proteolysis Targeting Chimera Degraders of the METTL3-14 m6A-RNA Methyltransferase. J Med Chem. 2024. [PMC10900215]






