

目次
- 1 1. METTL14とは ─ RNAに目印をつける「ライター」の中心
- 2 2. 分子のかたち ─ なぜ「偽酵素」なのか
- 3 3. 複合体のチームプレーと、転写と同時に進む修飾
- 4 4. スプライシングの制御 ─ タンパク質の多様性を生む
- 5 5. クロマチンを直接あやつる ─ m6Aを介さない意外な顔
- 6 6. タンパク質の量はどう保たれるか ─ METTL3が守る
- 7 7. 発生・代謝での役割 ─ 脳・血液・食欲
- 8 8. がんとの二面性 ─ アクセルにもブレーキにもなる
- 9 9. 変異と心血管疾患 ─ 遺伝診療の視点から
- 10 10. よくある誤解
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

📍 クイックナビゲーション
DNAの情報がRNAへ、そしてタンパク質へと流れる――この生命の基本原理のなかで、RNAはただの「情報の運び屋」ではありません。RNA分子そのものに化学的な目印が書き込まれ、遺伝子の働きが細かく調節されています。その目印のなかで最も多いのがm6A(エムシックスエー)と呼ばれる修飾です。この記事の主役METTL14遺伝子は、m6Aを「書き込む」酵素複合体の中心メンバーでありながら、自分では化学反応を起こさないという、少し変わった役割を担っています。それでいて、脳の発達・血液のつくられ方・代謝、そしてがんの進み方にまで深く関わる――そんなMETTL14の姿を、一般の方にも遺伝診療に関わる方にも分かるように、遺伝専門医の視点でやさしく解説します。
Q. METTL14とは何をする遺伝子ですか?まず結論だけ知りたいです
A. METTL14は、RNAに「m6A」という目印をつける酵素チームの中心メンバーをつくる遺伝子です。相方のMETTL3とペアを組み、METTL3が実際に化学反応(メチル化)を行うのに対し、METTL14は自分では反応を起こさず、目印をつける相手のRNAを正しくつかまえて反応を助ける「案内役・土台役」を担います。この目印はRNAの寿命や使われ方を左右し、脳の発達・血液・代謝といった正常な体づくりに欠かせません。一方で、そのバランスが崩れると、がんでは「アクセル」にも「ブレーキ」にもなる複雑な二面性を示します。
- ➤正体 → RNAのm6A修飾を書き込む「ライター」複合体の中心。ただし自分では反応を起こさない「偽酵素」
- ➤本当の役割 → 相方METTL3を安定させ、標的RNAをつかまえてメチル化の効率を跳ね上げる「案内役・土台役」
- ➤意外な顔 → m6Aを介さず、直接クロマチン(DNAの収納構造)に働きかける「もう一つの仕事」も持つ
- ➤体づくりでの役割 → 脳の神経が生まれるタイミング、血液幹細胞の維持、食欲・代謝の調整に関わる
- ➤がんとの関係 → 白血病や膵臓がんでは「アクセル」、肝細胞がんでは「ブレーキ」。子宮体がんでは変異が働きを作り替える
🧬 METTL14の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. METTL14とは ─ RNAに目印をつける「ライター」の中心
私たちの体では、DNAの情報がまずRNA(正確にはメッセンジャーRNA=mRNA)に写し取られ、そのmRNAをもとにタンパク質がつくられます。これがセントラルドグマと呼ばれる生命の基本原理です。長いあいだRNAは単なる「情報のコピー」だと考えられてきましたが、実際にはRNA分子にもさまざまな化学的な目印が付けられ、その働きが細かく調整されていることが分かってきました。
DNAのメチル化やヒストン修飾を扱うエピジェネティクスとよく似た考え方で、RNA上の可逆的な修飾が遺伝子の働きを動的に制御する分野をエピトランスクリプトミクスと呼びます。この分野の主役が、mRNAの内部で最も多く見られる修飾m6A(N6-メチルアデノシン)です[3]。アデニンという塩基の特定の位置にメチル基という小さな目印がつくもので、mRNAの安定性・スプライシング・核からの運び出し・翻訳効率など、mRNAの一生のほぼすべての段階を左右します[3]。
💡 用語解説:ライター・イレイサー・リーダー
m6Aのしくみは、3種類のタンパク質チームで成り立っています。目印をつける「ライター(Writer)」、目印を消す「イレイサー(Eraser)」、そして目印を読み取って下流の反応を引き起こす「リーダー(Reader)」です。文章にたとえるなら、ライターがマーカーで線を引き、リーダーがその線を頼りに要点を読み、イレイサーが線を消す、という役割分担です。METTL14は、このうち「ライター」チームの中心にいます。
m6Aを書き込むライター複合体の中核をつくるのが、METTL3とMETTL14という2つのタンパク質です[2]。ここで大切なのは、実際にメチル基を移す化学反応を行うのはMETTL3だけで、METTL14は自分では反応を起こさない、という点です[2]。METTL14との複合体形成によってMETTL3のRNAメチル化活性は大きく高まります。METTL14は、複合体の形を支える土台であり、目印をつける相手のRNAを正しくつかまえる案内役として、なくてはならない存在なのです[4]。
2. 分子のかたち ─ なぜ「偽酵素」なのか
METTL3とMETTL14は、細胞のなかで1対1のペア(ヘテロ二量体)を組み、水素結合や疎水性のかみ合わせによってしっかりと結びついています[1]。結晶構造の解析から、両者の姿がくわしく分かってきました。
メチル基を移す反応には、メチル基の供与体であるSAM(S-アデノシルメチオニン)という分子が必要です。METTL3にはこのSAMがぴったり収まる「活性ポケット」があり、そこで反応が起こります[5]。ところが、METTL14も似たような構造領域を持っているにもかかわらず、その触媒ポケットは閉じた形をとっていて、SAMが入り込めません[2]。この構造的な理由から、METTL14自身は反応を起こす力を失っています。こうした「酵素の形はしているのに反応はしない」タンパク質を偽酵素(pseudoenzyme)と呼びます。
💡 用語解説:偽酵素は「働かない」わけではない
「偽酵素」と聞くと役立たずのように思えますが、そうではありません。反応そのものは相方に任せつつ、複合体の形を整え、標的をつかまえ、反応の質を管理する――いわば現場監督のような役割です。実際、METTL14との複合体形成によってMETTL3のRNAメチル化活性は大きく高まります[6]。「触媒しない」ことと「重要でない」ことは、まったく別なのです。
METTL14のもう一つの重要な仕事が、RNAをつかまえることです。METTL14の末端側には、アルギニンとグリシンが並ぶRGG/RGモチーフという領域が集まっています。プラスの電気を帯びたアルギニンが、マイナスに帯びたRNAの骨格に引き寄せられ、しっかりと結合します。実験でこの領域を取り除くとRNA結合親和性が大きく低下し、特にRNA G-quadruplex構造への結合が著しく損なわれることが示されています[7]。METTL14は、この「つかむ手」を通じて、ライター複合体を正しい相手へと導いているのです。
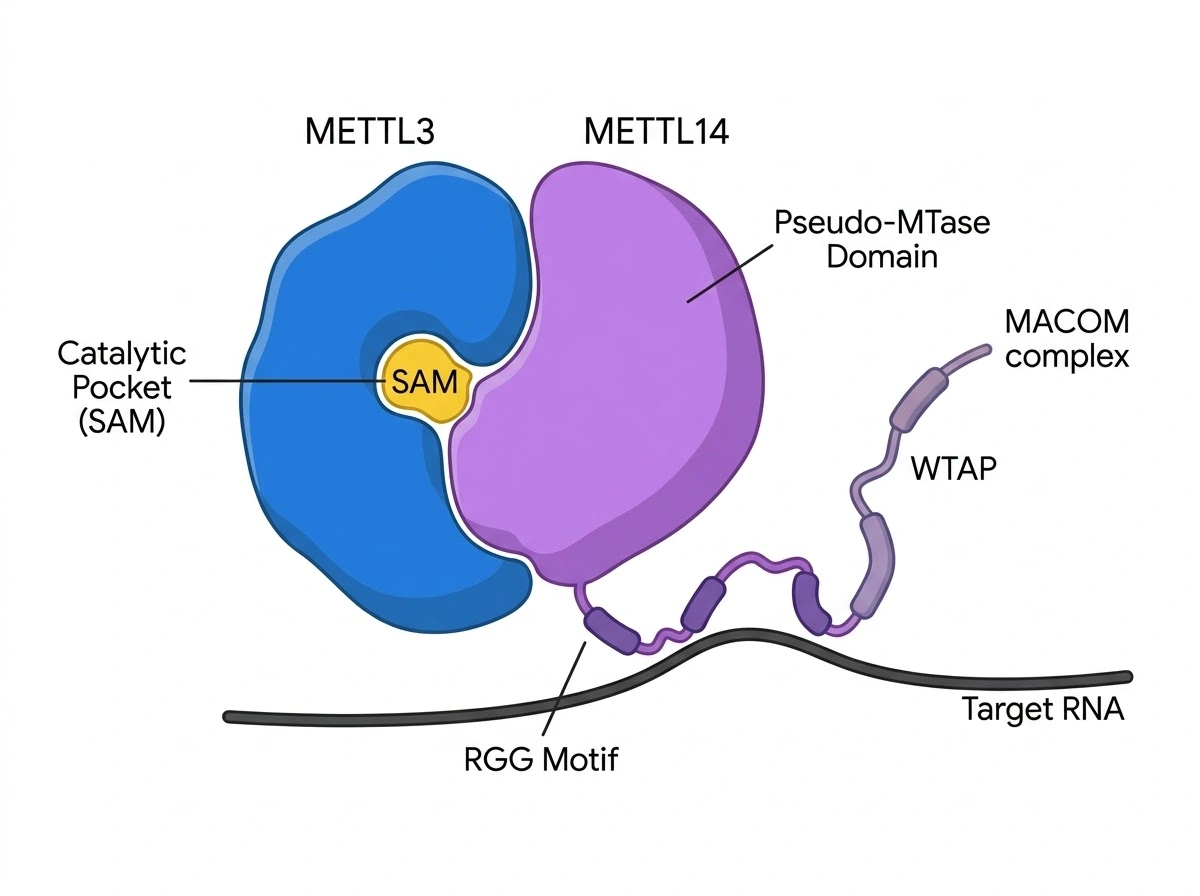
図に示すように、METTL3とMETTL14は1対1のヘテロ二量体を形成してm6Aライター複合体の中核を構成します。メチル基供与体SAMを利用してRNAのアデノシンをメチル化する触媒中心はMETTL3側にあり、METTL14はメチルトランスフェラーゼに似た構造を持ちながら触媒活性を持たない偽酵素として、複合体の構造安定化とRNA基質の認識を支えます。さらに、METTL14のRGGモチーフはRNAとの相互作用に関与し、METTL3-METTL14を中心とするMACと、WTAPなどを含む調節複合体MACOMが協調することで、細胞内の適切なRNAにm6A修飾が導入されます。
さらに近年の構造解析では、METTL14の界面にあるR298というアルギニンが、反応の「品質管理」にきわめて重要な役割を果たすことが分かりました。メチル化された直後、目印のついた塩基は約16オングストローム(1オングストロームは1千万分の1ミリ)だけ回転し、進化的によく保たれた「隠されたポケット」に収まります。このときR298がメチル化された塩基と直接結びつき、「きちんと目印がついたかどうか」を感知するセンサーとして働きます[5]。METTL14は単なる結合部位ではなく、複合体が「書き込む役」から「確認する役」へと切り替わる制御中枢でもあるのです。このR298は、後で述べるがんの変異とも深く関わってきます。
3. 複合体のチームプレーと、転写と同時に進む修飾
細胞のなかでm6Aをつける作業は、METTL3とMETTL14のペア(中核複合体=MAC)だけで行われるわけではありません。この中核を正しい標的へと導く制御チーム(MACOM)と協力して、巨大な酵素複合体を形づくります[8]。主なメンバーを整理すると、次のようになります。
METTL14を介したm6A修飾は、多くの場合、DNAからRNAが写し取られる転写と同時進行的に起こります。この過程で、METTL14は活発に転写されている領域の目印であるヒストン修飾(H3K36me3)と連携し、m6Aを付ける複合体を、新しく合成されつつあるRNAのそばへと呼び寄せます[10]。「どのRNAに、どこで目印をつけるか」は、こうしてクロマチン側の情報とも結びつきながら決められているのです。
4. スプライシングの制御 ─ タンパク質の多様性を生む
METTL14がつけるm6Aは、mRNAの前段階(pre-mRNA)の選択的スプライシングにも強く影響します。スプライシングとは、RNAから不要な部分を取り除き、必要な部分をつなぎ合わせる編集作業のことで、同じ遺伝子から少しずつ違うタンパク質をつくり分ける鍵になります。
この制御の中心にいるのが、核内でm6Aを読み取るリーダータンパク質のYTHDC1です。YTHDC1はMETTL14がつけたm6Aの目印を認識して結合し、どの部分を残すかを決めるスプライシング因子を呼び寄せたり、逆に別の因子を立体的に邪魔したりすることで、スプライシングのパターンを左右します。こうしてMETTL14のm6Aは、数百から数千もの遺伝子の編集パターンを決め、タンパク質の多様性を生み出しているのです。
興味深いことに、METTL14自身のpre-mRNAもスプライシングによる調節を受けます。たとえば一部のがん細胞では、スプライシングの制御が変化してMETTL14の特定のバリアントが増え、結果として細胞全体のm6Aレベルが上がり、がんの進行を後押しすることが報告されています[11]。RNA修飾のしくみそのものが、RNA編集によってさらに制御される――この入れ子構造は、m6A制御の奥深さを物語っています。
5. クロマチンを直接あやつる ─ m6Aを介さない意外な顔
近年のエピジェネティクス研究で最も驚かれた発見の一つが、METTL14はRNAのm6Aを介さずに、直接クロマチン(DNAの収納構造)の状態を制御するという事実です[12]。これは「METTL14はm6Aライターの補助役」という従来の見方を大きく広げる知見でした。
マウスの胚性幹細胞を使った研究で、METTL3とMETTL14をそれぞれ取り除くと、どちらも同じくらい全体のm6Aは減るのに、細胞の運命への影響がまったく違うことが分かりました。METTL3を減らすと転写が上がるのに対し、METTL14を減らすと新しく合成されるRNAが全体的に減ったのです[12]。この違いを調べると、METTL14(METTL3ではなく)が、遺伝子を抑える側のヒストン修飾H3K27me3と共に分布することが判明しました。
💡 用語解説:ヒストン修飾とクロマチン
DNAは、ヒストンというタンパク質に巻き付いて「クロマチン」という形で細胞の核に収められています。ヒストンに付く化学的な目印(ヒストン修飾)によって、その領域の遺伝子が読まれやすくなったり、逆に抑え込まれたりします。H3K27me3は「その領域の遺伝子を静かにさせる」抑制の目印です。この目印を外す消しゴム役が、ヒストン脱メチル化酵素のKDM6ファミリー(KDM6B)です。
しくみとしては、METTL14がクロマチン上のH3K27me3の場所に直接結合し、そこにヒストン脱メチル化酵素KDM6Bを呼び寄せます。KDM6Bが抑制の目印H3K27me3を外すことで、クロマチンがゆるみ、遺伝子が読まれやすい状態へと切り替わります[12]。逆にMETTL14がなくなると、KDM6Bが呼び寄せられず、H3K27me3が全体的に増えて広い範囲の遺伝子が抑え込まれてしまいます。この働きは、幹細胞が自己複製から分化へと移るときに欠かせません。METTL14は、RNA修飾の層とヒストン修飾の層の両方をつなぐ、統合的な調整役だと言えるのです。
6. タンパク質の量はどう保たれるか ─ METTL3が守る
細胞内のm6Aのバランスを一定に保つため、METTL14のタンパク質としての量は厳密に管理されています。その鍵をにぎるのが、ユビキチンという「分解の目印」です。
E3ユビキチンリガーゼのSTUB1というタンパク質は、METTL14の特定の場所(K148・K156・K162というリジン)にユビキチンを付け、分解へと導きます。これによりMETTL14は速やかに壊され、細胞全体のm6Aが下がります[13]。ここで注目したいのが、相方METTL3の役割です。METTL3はMETTL14とペアを組むことで、STUB1が結合するのを立体的に邪魔し、METTL14を分解から守っています[13]。つまりMETTL3が減ると、守り手を失ったMETTL14も急速に壊れてしまう。両者が常に適切な比率で働くよう、細胞は安全装置を備えているのです。
7. 発生・代謝での役割 ─ 脳・血液・食欲
🔍 関連記事:造血幹細胞/肥満関連遺伝子FTO/細胞周期
脳の神経が生まれるタイミングを決める
脳をつくるには、神経のもとになる幹細胞(放射状グリア細胞)が、決められたスケジュールで増えて神経細胞へと変わっていく必要があります。胎児のマウスの脳でMettl14を取り除いてm6Aを枯渇させると、この神経幹細胞の細胞周期が異常に長引き、通常なら出生前に終わるはずの神経発生が生後まで続いてしまいました[14]。METTL14は、神経発生や細胞周期に関わる遺伝子のmRNAに目印をつけ、それらを速やかに分解させることで、幹細胞から神経細胞へのすばやい切り替えを可能にしているのです[14]。
血液のもと(造血幹細胞)を維持する
血液系では、METTL14は正常な造血幹・前駆細胞に多く存在し、骨髄系の分化が進むと減っていきます[15]。METTL14を抑えると分化が促され、逆にMYBやMYCといった重要な転写因子のmRNAに目印をつけることで、幹細胞の未分化な状態(自己複製能)を保っています。この調節には、転写因子SPI1(PU.1)がMETTL14の量を抑える「SPI1‑METTL14‑MYB/MYC軸」が関わっており、正常な造血の階層を保つのに欠かせません[15]。この同じしくみが、後で述べる白血病とも表裏一体でつながっています。
食欲・代謝のバランスを整える
代謝の面でもMETTL14は重要です。脳の視床下部にあるPOMCニューロンは、エネルギーバランスと体重調節の中枢です。このニューロンだけでMettl14を取り除いたマウスは、過食・肥満・インスリン抵抗性・脂肪肝を示しました[16]。METTL14が、食欲や代謝に関わるmRNAの安定性と翻訳を、核内リーダーのYTHDC1などと連携して調整しているためと考えられています。エネルギーの恒常性は、METTL14が書き込んだm6Aを、複数のリーダーがどう読み取るかの絶妙なバランスに支えられているのです[16]。肥満関連遺伝子FTOがm6Aの「消しゴム役」であることを思い出すと、m6Aと代謝の深いつながりがよく分かります。
8. がんとの二面性 ─ アクセルにもブレーキにもなる
METTL14は、がんにおいて「発がん促進(アクセル)」と「腫瘍抑制(ブレーキ)」という正反対の顔を持ちます。この文脈依存的な性質は、その組織でどのリーダータンパク質が多く働いているか、そして目印をつける相手のRNAが「がんを進める遺伝子」なのか「がんを抑える遺伝子」なのかによって決まります[17]。
アクセルとして働くとき
急性骨髄性白血病(AML)では、特定の染色体転座をもつ患者の細胞でMETTL14が高く発現し、MYBやMYCといった発がん性の転写因子のmRNAを安定化させて、白血病幹細胞の自己複製と生存を支えます[15]。膵臓がんでは、リーダーのIGF2BP2を引き寄せて長鎖ノンコーディングRNA(lncRNA)LINC00941を安定化し、上皮間葉転換(EMT)と転移を強く後押しします[18]。膠芽腫では、免疫チェックポイント分子PD‑L1のmRNAを安定化させることで、腫瘍が免疫の攻撃から逃れる「免疫逃避」を助けます[19]。
ブレーキとして働くとき
一方、肝細胞がんではMETTL14は腫瘍抑制的にふるまいます。マイクロRNAの前駆体(pri‑miRNA)にm6Aをつけ、プロセシング複合体DGCR8の結合を助けることで、腫瘍を抑えるmiR‑126の成熟を促します。METTL14が減ると、この抑制的なマイクロRNAが十分につくられず、がんの転移が進んでしまうのです[20]。同じ遺伝子が、組織によってこれほど正反対に働く――これがMETTL14を理解するうえで最も大切なポイントです。
9. 変異と心血管疾患 ─ 遺伝診療の視点から
🔍 関連記事:体細胞変異とモザイク/機能獲得型変異/ドライバー遺伝子
子宮体がんのR298変異 ─ 目印の「宛先」を書き換える
がんゲノム解析で注目されたのが、子宮体がんで見つかるMETTL14のR298という場所の体細胞変異です。R298は、がん患者の検体でMETTL14の最も高頻度に変異する残基として知られています[21]。前述のとおり、R298はメチル化された塩基を感知する「隠されたポケット」の要となるアミノ酸です[5]。
当初、R298がプロリンに変わる「R298P」変異は、標的への親和性が下がって全体のm6Aが減る単純な機能喪失変異と考えられていました。ところが詳しい解析の結果、これは新しい標的特異性を獲得した機能獲得型変異であることが判明しました[21]。R298P変異型METTL14は、本来の「GGAC」ではなく、非典型的な「GGAU」という配列を好んでメチル化するようになります。つまり、全体のm6A量は大きく変えないまま、目印をつける「宛先」を書き換えてしまうのです[21]。この宛先の変化がWNTシグナルなどを異常に制御し、悪性度の高い腫瘍の増殖を駆動します。
加えて、子宮体がんではこのR298P変異やMETTL3の発現低下によって、多くの腫瘍でm6Aが減っていることが報告されています。m6Aの低下自体がAKT経路を活性化し(負の制御因子PHLPP2が減り、正の制御因子mTORC2が増える)、がん細胞の増殖を促すことも示されています[9]。単一のアミノ酸の置き換えが、まったく新しい発がんのネットワークをつくり出す――R298変異は、RNA修飾因子ががんゲノム医療でいかに重要かを浮き彫りにする例です。
血管の再狭窄との関わり
がん以外でも、METTL14は細胞の性質を決める重要な役割を担います。動脈が傷ついたときや動脈硬化では、血管平滑筋細胞が「収縮型」から「合成型」へと性質を変え(脱分化)、過度に増えて内膜が厚くなる内膜増殖が起こります。ふだん動脈の中膜ではほとんど検出されないMETTL14は、血管損傷やPDGF‑BBという成長因子の刺激を受けると急激に増え、Klf4やSerpine1といった遺伝子の制御を通じて、この脱分化を後押しします[22]。実験的にMETTL14を減らすと内膜増殖が大きく抑えられることから、ステント後の再狭窄を防ぐ標的として注目されています[22]。
遺伝診療での位置づけ
METTL14について押さえておきたいのは、現在知られている変異の多くが、生まれつき受け継ぐ生殖細胞系列の変異ではなく、がん細胞で後天的に生じる体細胞変異だという点です。R298変異も、遺伝する病気の原因としてではなく、がんのなかで見つかるドライバー変異として研究されています。したがって、METTL14は現時点では「特定の遺伝性疾患の原因遺伝子」というより、がんの分子病態や治療標的として重要な遺伝子と位置づけるのが正確です。
治療の観点では、METTL14の機能的な二面性を考えると、体全体で一律に抑える薬は、組織によっては予期せぬ副作用(かえってがんを促すなど)を招くおそれがあります。そのため、METTL14と特定のリーダー(例:IGF2BP2)との相互作用を選択的に妨げる化合物や、R298Pなど特定の変異型だけに結合して働きを抑える分子など、高度に標的をしぼった創薬が求められています。当院では、こうした先端的な分子の話題を含め、遺伝子や体質に関わるご相談に臨床遺伝専門医が対応しています。
10. よくある誤解
誤解①「METTL14は反応しないから重要でない」
METTL14は自分ではメチル化反応を起こさない偽酵素ですが、METTL14との複合体形成によって相方METTL3のRNAメチル化活性は大きく高まります。標的をつかまえ、複合体を支える現場監督のような存在で、「触媒しない=重要でない」ではありません。
誤解②「METTL14はがんを進める悪玉」
白血病や膵臓がんではアクセルとして働きますが、肝細胞がんなどでは逆にブレーキになります。どちらに働くかは組織やリーダータンパク質しだいで、一律に「悪玉」とは言えません。
誤解③「変異があると必ず遺伝性の病気になる」
今知られているMETTL14の変異の多くは、生まれつき受け継ぐものではなく、がん細胞で後天的に起こる体細胞変異です。R298変異も、遺伝性疾患の原因ではなく、がんのなかで見つかるものとして研究されています。
誤解④「RNA修飾はDNAの変異と同じ」
m6AはDNAの塩基配列そのものを変えるのではなく、RNAに付く可逆的な目印です。付けたり消したりできる点がDNA変異と大きく異なり、遺伝子の働きを動的に調整するしくみです。
よくある質問(FAQ)
🏥 遺伝子・体質に関わるご相談
がんの分子病態や、体質・遺伝的な背景に関わる
遺伝子検査と遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
参考文献
- [1] Structural basis of N6-adenosine methylation by the METTL3-METTL14 complex. Nature. 2016. [Nature]
- [2] Structural insights into the molecular mechanism of the m6A writer complex. eLife. 2016. [PubMed 27627798]
- [3] The dual regulatory role of METTL14-mediated m6A modification in tumorigenesis and its underlying mechanisms. Front Oncol. 2026. [Frontiers in Oncology]
- [4] Insights into roles of METTL14 in tumors. Cell Prolif. 2022. [PubMed 34904301]
- [5] Structure of METTL3-METTL14 with an m6A nucleotide reveals insights into m6A conversion and sensing. [PMC10441475]
- [6] Structural basis for cooperative function of Mettl3 and Mettl14 methyltransferases. [PMC4958592]
- [7] Recognition of G-quadruplex RNA by a crucial RNA methyltransferase component, METTL14. Nucleic Acids Res. 2022. [PMC8755082]
- [8] Cryo-EM structures of human m6A writer complexes. Cell Res. 2022. [Cell Research]
- [9] m6A mRNA methylation regulates AKT activity to promote the proliferation and tumorigenicity of endometrial cancer. Nat Cell Biol. 2018. [Nature Cell Biology]
- [10] Histone H3 trimethylation at lysine 36 guides m6A RNA modification co-transcriptionally. Nature. 2019. [Nature]
- [11] Functions, mechanisms, and therapeutic implications of METTL14 in human cancer. [PMC8812173]
- [12] METTL14 is a chromatin regulator independent of its RNA N6-methyladenosine methyltransferase activity. [PMC10501186]
- [13] METTL3 protects METTL14 from STUB1-mediated degradation to maintain m6A homeostasis. EMBO Rep. 2023. [EMBO Reports]
- [14] Temporal Control of Mammalian Cortical Neurogenesis by m6A Methylation. Cell. 2017. [PubMed 28965759]
- [15] METTL14 Inhibits Hematopoietic Stem/Progenitor Differentiation and Promotes Leukemogenesis via mRNA m6A Modification. Cell Stem Cell. 2018. [PubMed 29290617]
- [16] POMC neuron METTL14/m6A/YTHDC1/YTHDF2 pathways safeguard energy balance, body weight, and metabolism. [PubMed 41986358]
- [17] Functions, mechanisms, and therapeutic implications of METTL14 in human cancer. [PMC8812173]
- [18] METTL14 Facilitates the Metastasis of Pancreatic Carcinoma by Stabilizing LINC00941 in an m6A-IGF2BP2-Dependent Manner. J Cancer. 2023. [PMC10197944]
- [19] METTL14/IGF2BP2-mediated m6A modification of PD-L1 promotes proliferation, metastasis, and immune escape in high-grade gliomas. J Neuropathol Exp Neurol. 2026. [J Neuropathol Exp Neurol]
- [20] METTL14 suppresses the metastatic potential of hepatocellular carcinoma by modulating N6-methyladenosine-dependent primary MicroRNA processing. Hepatology. 2017. [PubMed 27774652]
- [21] Cancer mutations rewire the RNA methylation specificity of METTL3-METTL14. Sci Adv. 2024. [Science Advances]
- [22] METTL14 promotes intimal hyperplasia through m6A-mediated control of vascular smooth muscle dedifferentiation genes. JCI Insight. 2025. [PubMed 40266881]






