

目次

📍 クイックナビゲーション
遺伝子の情報は、DNAからRNAへ、そしてタンパク質へと受け渡されます。ところが、その途中のRNAに小さな「化学的な目印」が付き、遺伝子の働きが後から調整されていることが分かってきました。この目印のひとつがm6A(エムシックスエー)で、それを読み取る「読み手」の代表がYTHDF1(ワイティーエイチディーエフワン)というタンパク質です。YTHDF1は、記憶や学習といった脳の働きから、がんの増殖、そしてがんが免疫の攻撃から逃れるしくみにまで関わることが次々と明らかになり、いま世界中で新しい薬の標的として注目されています。この記事では、YTHDF1がどんな分子で、体の中で何をしていて、なぜがん治療の鍵になりうるのかを、遺伝専門医の視点でやさしく解説します。
Q. YTHDF1とは何をするタンパク質ですか?まず結論だけ知りたいです
A. YTHDF1は、RNAに付いたm6Aという化学的な目印を読み取り、そのRNAからのタンパク質づくり(翻訳)を後押しする「読み手(リーダー)」です。脳では記憶や学習を支える一方、多くのがんでは過剰に働き、増殖を促すだけでなく、免疫細胞ががんを攻撃しにくい状態をつくり出します。こうした働きから、YTHDF1を狙う薬の開発が世界で進んでいます。ただし、これは主にがん組織などでの後天的な働きの話で、生まれ持った体質を調べる一般的な遺伝子検査の対象とは性質が異なります。
- ➤正体 → RNAの目印m6Aを読み取る「リーダー」タンパク質。細胞質で働き、標的RNAの翻訳を後押しする
- ➤脳での役割 → 神経が刺激を受けたときに翻訳を一気に進め、記憶や学習を支える
- ➤がんでの役割 → c-Mycなど増殖を促す遺伝子の翻訳を高め、多くのがんで「アクセル役」になる
- ➤免疫逃避 → 樹状細胞のなかで働き、がんの目印(抗原)を壊してしまい、免疫の攻撃を弱める
- ➤治療への応用 → YTHDF1を止める薬が、免疫チェックポイント阻害薬や放射線治療との併用で期待されている
🧬 YTHDF1の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. YTHDF1とは ─ RNAの「目印」を読み取るタンパク質
遺伝子の情報は、DNAからRNAへ写し取られ(転写)、さらにタンパク質へと翻訳されるという流れで使われます。この流れは長いあいだ「一方通行の設計図の読み出し」と考えられてきましたが、近年、その途中にあるRNAそのものに化学的な目印が付き、遺伝子の使われ方が細かく調整されていることが分かってきました。この目印による調整のしくみをまとめて「エピトランスクリプトミクス」と呼びます。
なかでも、私たちのmRNA(タンパク質の設計図となるRNA)に最も多く付いている内部の目印が、アデノシンという部品にメチル基が付いたN6-メチルアデノシン(m6A)という修飾です。この目印には、それを「書き込む酵素(ライター)」、「消す酵素(イレイサー)」、そして「読み取るタンパク質(リーダー)」がそれぞれ存在します。YTHDF1は、このうちの読み手(リーダー)の代表格です。細胞質でm6Aの付いたmRNAを見つけて結合し、そのmRNAからのタンパク質づくりを後押しする因子として最初に報告されました[2]。
💡 用語解説:ライター・イレイサー・リーダー
m6Aという目印を扱う役者は3種類います。ライターは目印を書き込む酵素で、METTL3やMETTL14などが担います。イレイサーは目印を消す酵素で、FTOやALKBH5が知られます。そしてリーダーが、書き込まれた目印を読み取って、そのRNAの運命(翻訳を進めるか、分解するかなど)を決める役です。YTHDF1はこのリーダーの一員です。
ヒトには、YTHという共通の読み取り部品を持つタンパク質が5つあります。主に核内で働くYTHDC1、主に細胞質で働き減数分裂や生殖細胞で重要なYTHDC2、そして主に細胞質で働くYTHDF1・YTHDF2・YTHDF3です。このうちYTHDF1・2・3は互いによく似た三姉妹のような関係で、後で述べるように「それぞれ役割が違うのか、それとも協力して同じ仕事をしているのか」が長く議論されてきました。YTHDF1は、当初は「翻訳を進める担当」として位置づけられた分子です。
2. 分子のかたちと、m6Aをつかまえるしくみ
YTHDF1は、大きく2つの部分からできています。C末端側(分子の一方の端)にある、m6Aを読み取るための硬くまとまった「YTHドメイン」と、N末端側(もう一方の端)にある、決まった形を持たずゆらゆらとした「低複雑性領域」です。この2つの性質を併せ持つことが、YTHDF1の多彩な働きの土台になっています。
YTHドメインの構造は、X線を使った結晶構造解析ですでに詳しく解かれています[1]。その中心には、m6Aを狙い撃ちでつかまえるための「芳香族ケージ(かご)」と呼ばれる構造があります。YTHDF1では、トリプトファンという同じ種類のアミノ酸が3つ(411番・465番・470番)集まって、このかごを作っています[1]。
💡 用語解説:芳香族ケージとは
m6Aは「アデノシンにメチル基(小さな出っぱり)が付いたもの」です。芳香族ケージは、平たい板のような形をした3つのトリプトファンが、このm6Aをちょうどサンドイッチのように挟み込む構造です。メチル基が付いていない普通のアデノシンだとうまく挟めず、メチル基が付いたときだけぴたりとはまります。この「はまり方の違い」こそが、YTHDF1が目印の有無を見分けられる理由です。
かごの中では、m6Aのメチル基が3つ目のトリプトファンのほうを向いて安定に収まり、さらにチロシン(397番)やシステイン(412番)といったアミノ酸が水素結合という弱い力でm6Aを固定します[1]。あとで出てくるTyr397(チロシン397番)やTrp470(トリプトファン470番)は、YTHDF1だけを狙う薬を設計するうえで重要な足がかりになります。
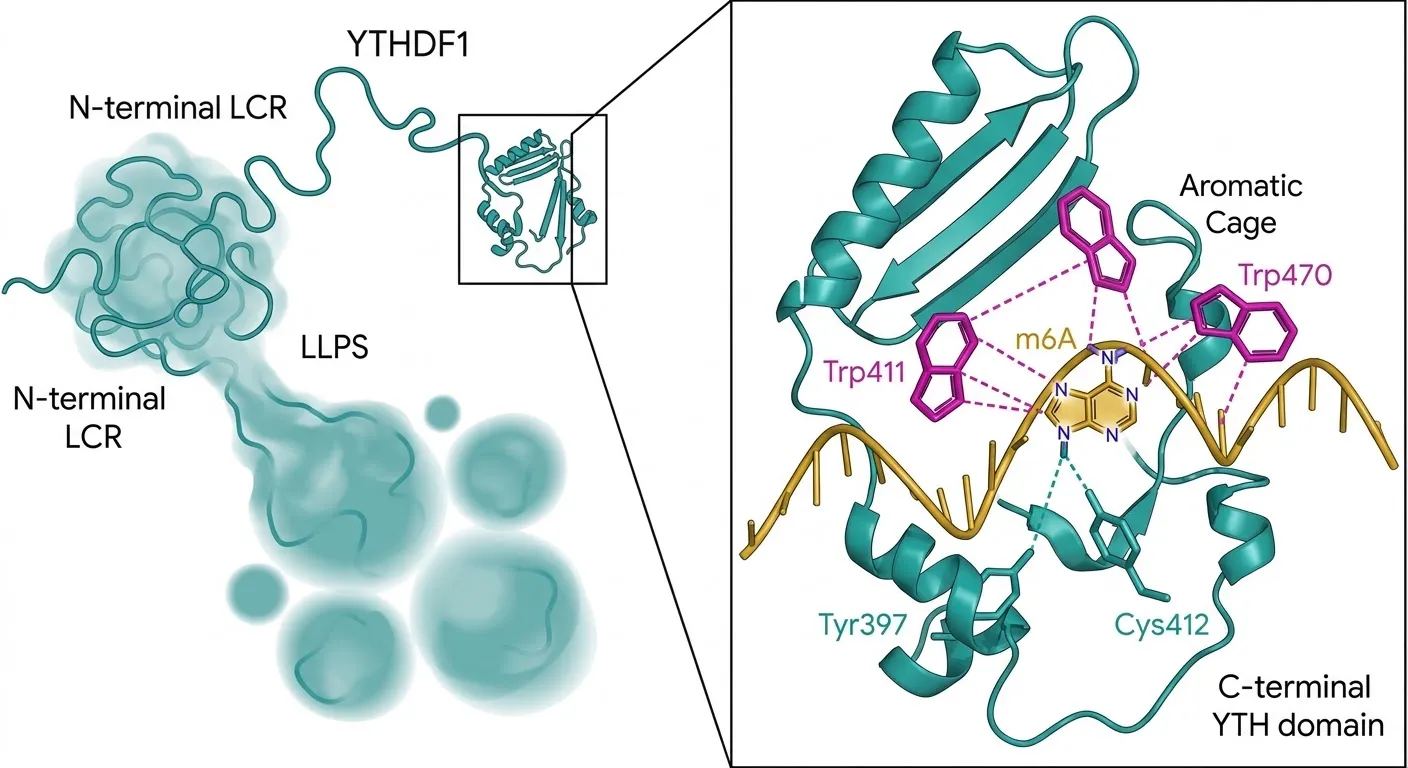
この図は、YTHDF1の「RNAを見分ける部分」と「分子を集める部分」を一枚にまとめたものです。右側のC末端YTHドメインでは、Trp411・Trp465・Trp470からなる芳香族ケージがm6A修飾塩基を包み込むように認識します。一方、左側のN末端低複雑性領域(LCR)は多数のYTHDF1分子が集まる性質に関わり、条件によって液-液相分離(LLPS)を起こします。つまりYTHDF1は、m6Aを読み取る精密な結合部位と、RNA・タンパク質を局所的に集める柔軟な領域を併せ持つことで、多様なRNA制御を可能にしています。
同じYTHの仲間でも、細かな好みには違いがあります。核で働くYTHDC1は、m6Aのすぐ手前の並びにグアノシン(G)が来る配列を強く好みますが、YTHDF1を含む細胞質のYTHDFファミリーは手前の配列にあまりこだわらず、幅広いm6A付きのmRNAを見分けて結合できます[1]。この「えり好みの少なさ」のおかげで、YTHDF1は細胞質に運ばれてきた多種多様なmRNAを広く相手にできるのです。
ゆらゆらした領域が「膜のない部屋」をつくる
もう一方のN末端側は、決まった形を持たない領域です。複数のm6Aが付いたmRNAが細胞質にあると、そこに多数のYTHDF1分子が同時に集まり、この領域どうしが引き合って、油と水が分かれるように液-液相分離という現象を起こします。その結果、細胞質のなかに「膜で仕切られていないのに中身がまとまった小さな部屋」ができます。ストレス顆粒やP-body(プロセシング小体)と呼ばれるこうした構造は、必要なmRNAを一時的にしまっておく倉庫のような役割を果たすと考えられています。YTHDF1は、1本のRNAに結合するだけでなく、こうした細胞内の「区画づくり」にも関わる多機能な分子なのです。
3. 「翻訳を進める」か「RNAを壊す」か ─ 続いてきた議論
YTHDF1が細胞のなかで結局「何をしているのか」については、この分野で大きな議論が続いてきました。話を整理すると、初期に広く受け入れられた考え方と、その後に提唱された新しい考え方の2つがあります。
古典的な考え方:役割分担モデル
最初に提唱されたのは、三姉妹のYTHDF1・2・3がそれぞれ別の役割を持つという「役割分担」の考え方です。この考え方では、YTHDF2はmRNAの分解を担い、YTHDF1は翻訳を進める担当、YTHDF3は両者を補助する、とされました。実際、YTHDF1はm6Aの付いたmRNAに結合したあと、翻訳を始める装置(翻訳開始因子)を呼び寄せ、タンパク質づくりを効率よく進めることが報告されています[2]。このとき、mRNAの量そのものは変わらず、できあがるタンパク質の量だけが増える点が特徴で、m6Aの目印を人工的に消すとこの効果も消えることから、「m6Aに依存した翻訳の後押し」と考えられてきました[2]。
新しい考え方:統合モデル
ところが2020年、大規模な網羅的解析にもとづいて、この古典的な考え方を根本から問い直す「統合モデル」が発表されました[3]。この研究は、YTHDF1・2・3は別々のmRNAを選ぶのではなく、同じm6A付きmRNAに同じように結合し、協力してその分解を進めていると主張しました。少なくとも培養細胞のある条件では、YTHDF1が単独で翻訳を強く進める証拠は見いだされなかった、というのです[3]。
💡 用語解説:遺伝子量(gene dosage)という考え方
統合モデルの鍵が「遺伝子量(gene dosage)」という考え方です。三姉妹は互いに肩代わりできるため、1つだけ働きを止めても他の2つが穴を埋めてしまい、はっきりした変化が出にくいのです。3つすべてを同時に止めて初めて、m6A付きmRNAが劇的に安定化する(分解が止まる)といった大きな変化が現れます。つまり、mRNAは「三姉妹の合計の量」に応じて結合と分解の圧力を受ける、という見方です。
この統合モデルに対しては、後に別の研究グループから「三姉妹を同時に止めたときのRNAの安定化は、m6Aとは別のしくみ(膜のない部屋の変化)による見かけ上の効果ではないか」という反論も出され、議論はさらに活発になっています[4]。
今の理解:状況しだいで顔を変える
現在では、この2つの考え方は「細胞の種類や状況しだい」という視点で折り合いがつきつつあります。ごく普通の培養細胞などでは三姉妹が肩代わりしながら分解を担う一方、神経細胞やがん細胞といった特別な状況では、YTHDF1が翻訳を進める因子としてはっきり働く、というわけです。YTHDF1は、置かれた環境や結合相手に応じて働きの「スイッチ」を切り替える、きわめて多機能な分子だと理解されています。
🔬 YTHDF1が持つ2つの顔
翻訳を進める顔
神経細胞やがん細胞で、m6A付きmRNAに翻訳装置を呼び寄せ、タンパク質づくりを一気に進める
RNAを壊す顔
多くの一般的な細胞では、三姉妹で協力してm6A付きmRNAの分解を促し、量を調整する
4. 「あとから付く目印」でYTHDF1自身も調整される
YTHDF1はRNAの目印を読み取る役ですが、YTHDF1というタンパク質自身にも、あとから別の目印が付いて働きが微調整されています。こうした「タンパク質にあとから付く目印」を翻訳後修飾と呼びます。なかでもよく研究されているのが、栄養状態を感じ取る酵素OGTによって付けられるO-GlcNAc(オーグルクナック)修飾です。
大腸がんの研究では、YTHDF1の3か所(196番・197番・198番のセリン)にO-GlcNAcが付くと、YTHDF1が核から細胞質へ運び出されやすくなり、細胞質にたまることが示されています[9]。細胞質にとどまったYTHDF1は、がんの増殖を促すc-Mycというタンパク質の翻訳を高め、腫瘍の成長を後押しします。実際、この目印が付かないように改変したYTHDF1では、マウスの実験で大腸がんの増殖が抑えられました[9]。栄養や代謝の状態が、目印を通じてYTHDF1の居場所と働きを変える、という興味深いしくみです。
🩺 院長コラム:目印の上に、さらに目印
RNAにm6Aという目印が付き、その読み手であるYTHDF1にもO-GlcNAcという別の目印が付く——遺伝子の使われ方は、こうした何層もの調整によって決まっています。「DNAの配列さえ読めばすべて分かる」という時代から、「配列の上でどんな調整が起きているか」を見る時代へと、遺伝医学は少しずつ視野を広げています。配列は同じでも、調整のされ方が違えば細胞のふるまいは変わりうる、という点は、遺伝子を考えるうえで大切な視点です。
5. 脳での働き ─ 記憶と学習を支える
YTHDF1は、病気のときだけでなく、正常な脳の働きにも重要な役割を果たします。マウスの海馬(記憶に関わる脳の部位)では、YTHDF1が神経細胞のmRNAに付いたm6Aを読み取り、学習や経験といった刺激に応じて、それらのmRNAからのタンパク質づくりを即座に進めることが示されています[5]。
YTHDF1を持たないマウスでは、基本的な発育には大きな問題がないものの、シナプスでの信号の伝わりや、記憶に関わる神経の変化(長期増強)が弱まり、空間の学習や記憶に障害が見られました[5]。さらに重要なことに、こうした障害は、海馬にYTHDF1を戻してやると回復しました[5]。これは、m6Aの「読み取り」が、記憶や学習という生きた脳の働きに実際に必要であることを、体のレベルで示した画期的な発見とされています。
より最近の研究では、YTHDF1が脳内の報酬や運動の学習に関わる神経回路でも働いており、良い方向の学習だけでなく、依存のような望ましくない学習にも関与しうることが報告されています[7]。YTHDF1は、脳が経験に応じて柔軟に変わる力(神経可塑性)を陰で支える、重要な調整役だといえます。
6. がんでの働き ─ 増殖の「アクセル役」
YTHDF1は、胃がん・大腸がん・肺がん・乳がん・卵巣がん・肝細胞がん・胆管がんなど、多くの主要な固形がんで過剰に働いていることが報告されています。がん細胞のなかでYTHDF1は、増殖を促すさまざまなタンパク質の翻訳を高め、がんの発生・進行・転移を後押しする「アクセル役」として振る舞います。
大腸がんでは、増殖の司令塔であるc-Mycとの間に悪循環が生まれます。c-MycはYTHDF1の量を増やす働きがあり、増えたYTHDF1はさらにc-Mycの翻訳を高める、という関係が報告されています[8]。卵巣がんでは、YTHDF1がタンパク質づくりの装置そのものの部品であるEIF3Cの翻訳を高め、がん細胞全体のタンパク質生産量を底上げして、腫瘍の形成と転移を強く推し進めることが示されています[7b]。
🧬 YTHDF1ががんで高める主な標的(例)
このように、YTHDF1はがん細胞そのものの増殖や代謝を内側から支えます。ただし、YTHDF1のがんにおける役割で最も注目を集めたのは、実はがん細胞の外側——免疫システムとの関係でした。次の章で詳しく見ていきます。
7. がん免疫からの逃避を指揮する
2019年に発表された研究は、YTHDF1ががんを免疫の攻撃から逃がすしくみの中心にいることを明らかにし、大きな注目を集めました[6]。舞台となるのは、免疫の「司令塔」である樹状細胞です。
💡 用語解説:交差提示と「コールド腫瘍」
キラーT細胞(がんを攻撃する免疫細胞)ががんを狙えるようになるには、樹状細胞が死んだがん細胞を取り込み、その中にあるがんの目印(ネオアンチゲン)を「これが敵だ」とT細胞に見せる必要があります。この受け渡しを交差提示と呼びます。交差提示がうまくいかず免疫が入り込めないがんを「コールド腫瘍(冷たい腫瘍)」といいます。
問題は、樹状細胞のなかにあるカテプシンという分解酵素です。この酵素が強く働きすぎると、せっかく取り込んだがんの目印がバラバラに壊されてしまい、T細胞に見せられなくなります。研究チームは、このカテプシンの設計図(mRNA)にm6Aが付いており、YTHDF1がそれを読み取ってカテプシンをどんどん作らせていることを突き止めました[6]。つまりYTHDF1が働くと、がんの目印が壊されすぎて、免疫が動き出せない「コールド腫瘍」ができてしまうのです。
逆に、樹状細胞のYTHDF1を欠損させたマウスでは、がんの目印が壊されずに保たれ、キラーT細胞がしっかり動き出しました。その結果、マウスのがんの成長が抑えられ、生存期間が延びたのです[6]。さらに重要なことに、YTHDF1を抑えると、免疫チェックポイント阻害薬(PD-L1などを標的とする薬)の効果が大きく高まることも示されました[6]。これは、YTHDF1ががん免疫療法の新しい標的になりうることを示した重要な成果です。
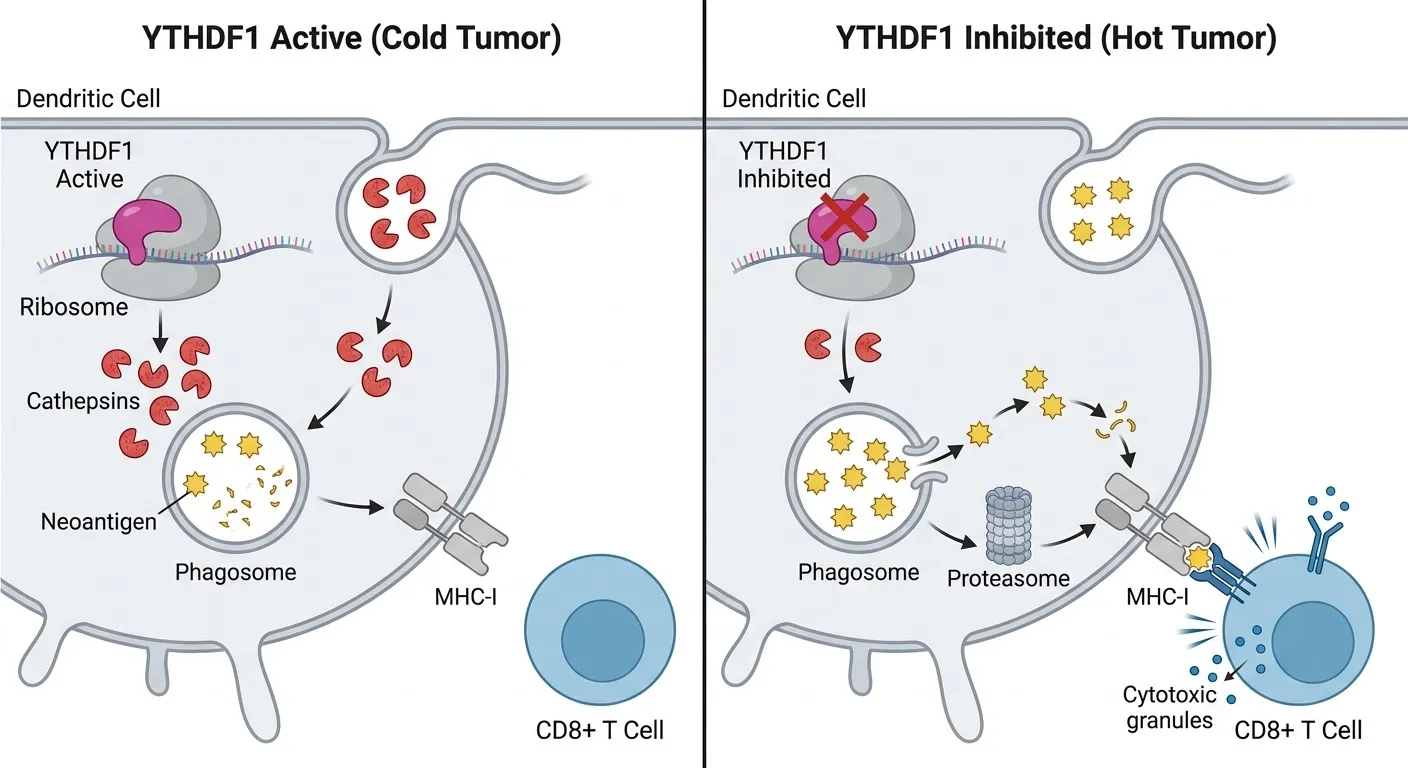
図の左側では、YTHDF1が活性化している樹状細胞でカテプシンの翻訳が高まり、ファゴソームに取り込まれた腫瘍ネオアンチゲンが過剰に分解されるため、MHCクラスIへの交差提示が弱くなります。その結果、CD8陽性T細胞を十分に活性化できず、腫瘍は免疫に認識されにくい「コールド腫瘍」の状態に傾きます。右側のようにYTHDF1を抑えると、カテプシンによる抗原分解が減ってネオアンチゲンが保たれ、プロテアソーム処理を経てMHCクラスIに提示されやすくなります。これによりCD8陽性T細胞の細胞傷害性応答が回復する、というのがYTHDF1阻害による抗腫瘍免疫増強の基本的な考え方です。
🔬 YTHDF1が「ある」ときと「ない」とき
YTHDF1が働く(コールド腫瘍)
カテプシンが増えすぎ → がんの目印が壊される → T細胞に見せられない → 免疫が動かない
YTHDF1を抑える(ホット腫瘍)
カテプシンが減る → がんの目印が保たれる → T細胞に見せられる → 免疫が攻撃できる
放射線治療への抵抗にも関わる
より最近の研究では、YTHDF1が放射線治療への抵抗にも関わることが示されました[10]。放射線は本来、細胞のなかのSTING(スティング)という経路を活性化して免疫を呼び起こしますが、放射線を受けた樹状細胞ではYTHDF1が増え、増えたカテプシンがこのSTINGタンパク質まで壊してしまい、免疫を呼び起こす働きが打ち消されてしまうのです[10]。この知見をもとに、YTHDF1を欠損・阻害した樹状細胞ワクチンを作ったところ、マウスで放射線治療の効果が大きく高まることが確認され、YTHDF1阻害と放射線治療の相乗効果が示唆されています[10]。
胆管がんでの免疫抑制
難治性のがんである肝内胆管がんでも、YTHDF1が免疫を抑える働きが報告されています[11]。ここではYTHDF1が、がん細胞のなかでFOSL2という因子の翻訳を高め、それがCXCL6という物質を分泌させて、免疫を抑える細胞(骨髄由来抑制細胞)を腫瘍へ呼び寄せます[11]。このYTHDF1を軸とした経路を二重に断つアプローチは、胆管がんのモデルで抗PD-L1抗体治療の効果を高めることが示されており、免疫療法が効きにくいがんを打開する戦略として期待されています[11]。
8. 創薬の最前線 ─ YTHDF1を狙う薬
YTHDF1が、がんの増殖・代謝・免疫逃避のいずれにも関わることから、これを標的とした薬の開発が世界で進んでいます。ただし大きな壁がありました。三姉妹のYTHDF1・2・3は、m6Aを読み取る部分の構造がよく似ているため、YTHDF1だけを狙い撃ちする薬を作るのが難しかったのです。
初期の薬 ─ エブセレン
初期に見つかった代表がエブセレンという化合物です。エブセレンはm6Aを読み取るかごの近くにあるシステイン残基に結びつき、m6A付きのmRNAがかごに入るのを物理的に妨げます[12b]。ただし、狙ったシステインは三姉妹すべてに共通して存在するため、エブセレンは3つを区別できず、選択性に欠けるという課題がありました[12b]。
選択的な薬 ─ SKLB-Y13
この壁を破ったのが、2025年に報告されたSKLB-Y13です[12]。これは、YTHDF1のm6A結合ポケットだけを狙う世界初の選択的な低分子化合物として報告されました。SKLB-Y13は、YTHDF1に特有のアミノ酸であるTyr397(水素結合)とTrp470(積み重なる相互作用)とうまく結びつくことで、構造がよく似たYTHDF2やYTHDF3を避け、YTHDF1のポケットだけを強く塞ぐことが示されています[12]。乳がんの細胞では、SKLB-Y13がYTHDF1と標的mRNAの結びつきをm6A依存的に妨げ、がん細胞の増殖を抑えてアポトーシス(細胞死)を促すことが確認されました[12]。
💊 YTHDF1を狙う代表的な化合物
次の一手 ─ タンパク質を丸ごと分解する技術
さらに次の技術として注目されているのが、標的タンパク質を細胞の中から丸ごと分解してしまうPROTAC(プロタック)という手法です。YTHDF1は、単にm6Aを読むだけでなく、膜のない部屋づくりや他のタンパク質との足場としても働くため、ポケットを塞ぐだけの薬ではすべての働きを止めきれない可能性があります。そこで、YTHDF1そのものを分解してしまおう、という発想です。
2026年8月時点で、YTHDF1を直接標的とするPROTACの臨床応用は確立していません。一方、同じm6Aリーダーである核内のYTHDC1を標的とした初のPROTAC「XY-2」が2026年に報告され、白血病の細胞でYTHDC1を非常に低い濃度で分解し、元の阻害薬を上回る効果を示しました[13]。この成功は、YTHDF1を丸ごと分解する薬の登場も現実味を帯びてきたことを示しており、免疫チェックポイント阻害薬が効きにくいがんに対する次世代の治療として期待されています。
9. 遺伝子検査との関係 ─ どう位置づけるか
ここまで読んで、「では自分のYTHDF1遺伝子を調べれば、がんのなりやすさが分かるのか」と思われるかもしれません。ここは誤解が生じやすいところなので、遺伝専門医として整理しておきます。
YTHDF1が問題になるのは、多くの場合、がん組織などでの「発現の増減(後天的な働きの変化)」です。これは、生まれ持ったDNA配列の変化を調べる、いわゆる遺伝性疾患の遺伝子検査とは性質が異なります。現時点で、YTHDF1は「生まれつきの配列の変化が特定の遺伝性疾患を引き起こす原因遺伝子」として確立されているわけではありません。
🩺 院長コラム:「体質の遺伝子」と「がんの中で働く遺伝子」は別の話
遺伝子の話をするとき、「生まれ持った体質を決める配列」と「がん組織のなかで後から働きを変える遺伝子」は、しばしば混同されます。YTHDF1は主に後者、つまりがんの進行や治療のなかで注目される遺伝子です。将来、YTHDF1を狙う薬が実用化されれば、腫瘍でのYTHDF1の働き具合を調べることが治療選択の手がかりになる可能性はありますが、それは「体質を調べる検査」とは目的も方法も違います。この違いを踏まえて情報を受け取ることが、遺伝医療では大切です。
当院では、遺伝子や遺伝性のがんに関するご相談に、臨床遺伝専門医が遺伝カウンセリングを通じて対応しています。話し合う内容は、検査で何が分かり何が分からないのか、その結果がご本人やご家族にとってどんな意味を持つのか、といった点です。検査を受けるかどうかを含め、決めるのはご本人であり、私たちは中立の立場で判断材料を整理する役割を担います。
10. よくある誤解
誤解①「YTHDF1は遺伝性がんの原因遺伝子」
YTHDF1で問題になるのは、主にがん組織などでの後天的な発現の増減です。生まれ持った配列の変化が特定の遺伝性疾患を起こす原因遺伝子としては確立されておらず、体質を調べる遺伝子検査とは性質が異なります。
誤解②「YTHDF1は翻訳を進めるだけ」
翻訳の後押しは有名な働きですが、それだけではありません。状況によっては三姉妹で協力してRNAの分解にも関わります。置かれた環境しだいで顔を変える、多機能な分子です。
誤解③「読み手を1つ止めれば効く」
三姉妹は互いに肩代わりできるため、1つ止めても変化が出にくいことがあります。だからこそ、YTHDF1だけを選んで狙う薬の設計に工夫が必要でした。
誤解④「YTHDF1の薬はもう使える」
選択的な化合物や分解技術は主に細胞や動物での研究段階です。有望ですが、ヒトでの治療として確立したわけではなく、これからの検証が必要な段階にあります。
よくある質問(FAQ)
🏥 遺伝子・遺伝性腫瘍に関するご相談
遺伝子や遺伝性のがんに関する
遺伝子検査と遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
参考文献
- [1] Structural Basis for the Discriminative Recognition of N6-Methyladenosine RNA by the Human YT521-B Homology Domain Family of Proteins. J Biol Chem. 2015. [PMC4598999]
- [2] N(6)-methyladenosine modulates messenger RNA translation efficiency. Cell. 2015. [PubMed 26046440]
- [3] A Unified Model for the Function of YTHDF Proteins in Regulating m6A-Modified mRNA. Cell. 2020. [PMC7508256]
- [4] The mechanism underlying redundant functions of the YTHDF proteins. Genome Biol. 2023. [Genome Biology]
- [5] m6A facilitates hippocampus-dependent learning and memory through YTHDF1. Nature. 2018. [PubMed 30401835]
- [6] Anti-tumour immunity controlled through mRNA m6A methylation and YTHDF1 in dendritic cells. Nature. 2019. [Nature]
- [7] mRNA m6A modifications and the RNA-binding protein YTHDF1 affect translational control in both normal and pathological learning. Proc Natl Acad Sci U S A. 2026. [PNAS]
- [7b] The m6A reader YTHDF1 promotes ovarian cancer progression via augmenting EIF3C translation. Nucleic Acids Res. 2020. [Nucleic Acids Research]
- [8] Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2017. [PubMed 29484125]
- [9] O-GlcNAcylation promotes the cytosolic localization of the m6A reader YTHDF1 and colorectal cancer tumorigenesis. J Biol Chem. 2023. [PMC10208891]
- [10] YTHDF1 loss in dendritic cells potentiates radiation-induced antitumor immunity via STING-dependent type I IFN production. J Clin Invest. 2024. [J Clin Invest]
- [11] Targeting m6A Reader YTHDF1 Enhances Antitumor Immunity and Potentiates Anti-PD-L1 Efficacy in Intrahepatic Cholangiocarcinoma. Adv Sci (Weinh). 2026. [Advanced Science]
- [12] Identification of a Selective YTHDF1 Inhibitor Targeting the m6A Recognition Domain for Breast Cancer. Angew Chem Int Ed Engl. 2025. [Angewandte Chemie]
- [12b] Small-Molecule Ebselen Binds to YTHDF Proteins Interfering with the Recognition of N6-Methyladenosine-Modified RNAs. ACS Pharmacol Transl Sci. 2022. [ACS Pharmacology & Translational Science]
- [13] Development of the First YTHDC1 Degrader with Improved Antileukemia Activity. JACS Au. 2026. [JACS Au]






