

目次

📍 クイックナビゲーション
わたしたちの体の設計図はDNAですが、その情報が実際にはたらくときには、いったんメッセンジャーRNA(mRNA)という写しに書き写されます。このmRNAには、DNAとは別に「あとから付けたり外したりできる化学的な目印」があり、なかでも最も多いのがm6A(エムシックスエー)という修飾です。YTHDF2は、このm6Aという目印を読み取り、目印の付いたmRNAを「もう役目を終えた写し」として分解へ導く「読み手(リーダー)」のタンパク質です。一見じみな役割に見えますが、YTHDF2は脳の発生や幹細胞、代謝から、白血病・乳がんといったがんの進行、さらにウイルス感染まで、驚くほど幅広い場面に関わっています。この記事では、YTHDF2という遺伝子とそのタンパク質が何をしているのか、なぜ今がん治療の標的として世界中で注目されているのかを、遺伝専門医の視点でやさしく解説します。
Q. YTHDF2とは何をする遺伝子ですか?まず結論だけ知りたいです
A. YTHDF2は、mRNAに付いた「m6A」という目印を読み取り、その写しを分解へ導く「読み手(リーダー)」タンパク質の遺伝子です。いらなくなった大量のmRNAを片づける「掃除係」として、細胞が状態を切り替えるのを助けます。脳の発生や幹細胞の維持など正常なはたらきに欠かせない一方、白血病や乳がんなど一部のがんでは、がん細胞の生き残りを支える「悪役」としてはたらくことがあります。そのため、YTHDF2を狙う新しい抗がん剤の研究が進んでいます。ただし、生まれつきの単一遺伝子病の原因遺伝子として確立しているわけではなく、多くは体の細胞で起こる発現量や働きの変化が問題になります。
- ➤正体 → mRNAの目印「m6A」を読む細胞質のリーダー。哺乳類で最初に見つかったm6Aリーダーで、写しの分解を促す
- ➤仕組み → 分解装置を標的mRNAへ呼び寄せる「足場」。ポリA鎖を縮める経路など複数の壊し方を使い分ける
- ➤全身での役割 → 脳の発生、幹細胞の維持、代謝、細胞の状態切り替えに関わる縁の下の力持ち
- ➤がんとの関係 → 白血病の幹細胞を守り、乳がんやリンパ腫の生き残りを支えることがある。二面性を持つ
- ➤治療への期待 → 正常な血液幹細胞への影響を抑えながらがんを狙える可能性があり、阻害薬やタンパク質分解薬が開発中
🧬 YTHDF2の基本情報
各項目の根拠と詳しい解説は、本文の該当セクションをご覧ください。
1. YTHDF2とは ─ mRNAの「目印」を読む掃除係
わたしたちの遺伝情報はDNAに書かれていますが、そのままではタンパク質になりません。まずDNAの一部がmRNAという写しに転写され、その写しをもとにタンパク質がつくられます。この一連の流れはセントラルドグマと呼ばれます。そして近年わかってきたのは、この写しであるmRNA自体にも、あとから付けたり外したりできる化学的な目印があり、それが遺伝子のはたらき方を細かく調整しているということです。
数ある目印のなかで、mRNAの内部に最も多く付くのがm6A(N6-メチルアデノシン)という修飾です。この分野はRNAのエピジェネティクス(正確にはエピトランスクリプトミクス)と呼ばれ、遺伝子発現を制御する新しい仕組みとして急速に注目されています。m6Aという目印は、mRNAが核から運び出される効率、タンパク質へ翻訳される効率、そして写しがどれくらい長持ちするか(安定性)を左右します。
💡 用語解説:ライター・イレイサー・リーダー
m6Aの仕組みは、よく「文字の読み書き」にたとえられます。目印を書き込む酵素を「ライター(METTL3・METTL14など)」、消す酵素を「イレイサー(FTO・ALKBH5)」、そして読み取って意味を与えるタンパク質を「リーダー」と呼びます。YTHDF2はこのリーダーの代表格です。
YTHDF2は、哺乳類の細胞質で最初に同定されたm6Aリーダーです。その主な仕事は、m6Aの付いたmRNAを見つけて結合し、その写しを分解へ導くことです[1]。細胞のなかでは毎瞬、膨大な数のmRNAがつくられては使われ、役目を終えていきます。この「もう不要になった写し」をすみやかに片づけることは、細胞が状態を切り替えるうえでとても大切です。YTHDF2は、いわば細胞のなかの掃除係として、m6Aという目印を手がかりに片づけの対象を選び出しているのです。
この一見じみな役割は、実は生命の根幹に関わっています。YTHDF2は胚の発生、幹細胞の自己複製、免疫のはたらき、脂質代謝といった正常な生理プロセスから、ウイルス感染や多様ながんの進行まで、極めて広い範囲を制御していることが次々と明らかになってきました。近年ではさらに、単なる分解因子にとどまらず、状況によっては写しを安定化させる正反対の顔を持つことや、細胞のなかに小さな「液滴」をつくって働く物理化学的な性質まで報告されています。
2. m6Aという目印を読み取る仕組み
YTHDF2のタンパク質は、大きく2つの部分からできています。ひとつは目印を読むためのYTHドメイン(C末端側にある、よく保たれた読み取り部分)、もうひとつは分解装置を呼び込むための天然変性領域(IDR)(N末端側にある、決まった形を持たない柔らかい部分)です。前者が「どのmRNAを片づけるか」を選び、後者が「どうやって片づけるか」を担う、という役割分担になっています。
では、YTHドメインはどうやってm6Aだけを見分けているのでしょうか。X線を使った結晶構造解析によって、YTHドメインの中には「芳香族ケージ」と呼ばれる小さなポケットがあることがわかっています[8]。このポケットは、トリプトファンなどの芳香族アミノ酸残基によってつくられる「かご」のような構造で、m6Aのメチル基をちょうどよく抱え込むようにできています。周囲の残基との相互作用も加わることで、YTHDF2はm6A修飾されたRNAを選択的に認識します。
💡 用語解説:芳香族ケージと天然変性領域
芳香族ケージとは、トリプトファンなど環状構造を持つ芳香族アミノ酸残基がつくる「かご」のような結合ポケットで、m6Aのメチル化されたアデノシンを認識します。研究では、この認識に重要な芳香族残基を置換すると、m6Aへの結合が大きく低下することが確かめられています[8]。一方の天然変性領域(IDR)は、決まった立体構造を持たずゆらゆらと動く柔らかい部分で、後で述べる「液滴」づくりの鍵になります。
興味深いことに、YTHドメインがm6Aに結合する力(結合の強さ)は、それほど強くありません。ゆるやかに付いたり離れたりできる程度の強さで、これは細胞のなかで柔軟に相手を選び直すために都合がよいと考えられています。実際の細胞のなかでは、他の補助的なタンパク質が結合を安定させたり、標的を絞り込んだりして、YTHDF2のはたらきを微調整しています。
なお、長らくYTHDF2はm6A専用のリーダーだと考えられてきましたが、近年、RNAの別の目印であるm5C(5-メチルシトシン)も読み取れる「二刀流」であるという報告が出てきました。しかもm5Cを読んだ場合には、写しを分解するのではなく、逆に安定化させて長持ちさせることが報告されています[5]。m5C修飾RNAではPABPC1を動員してmRNAを安定化し、翻訳を促進する一方、m6A修飾RNAでは分解を促すという、修飾の種類によって逆方向の作用を示す点が特徴です。ただし、このm5Cリーダーとしての機能は比較的新しい知見であり、今後さらに検証が必要です。
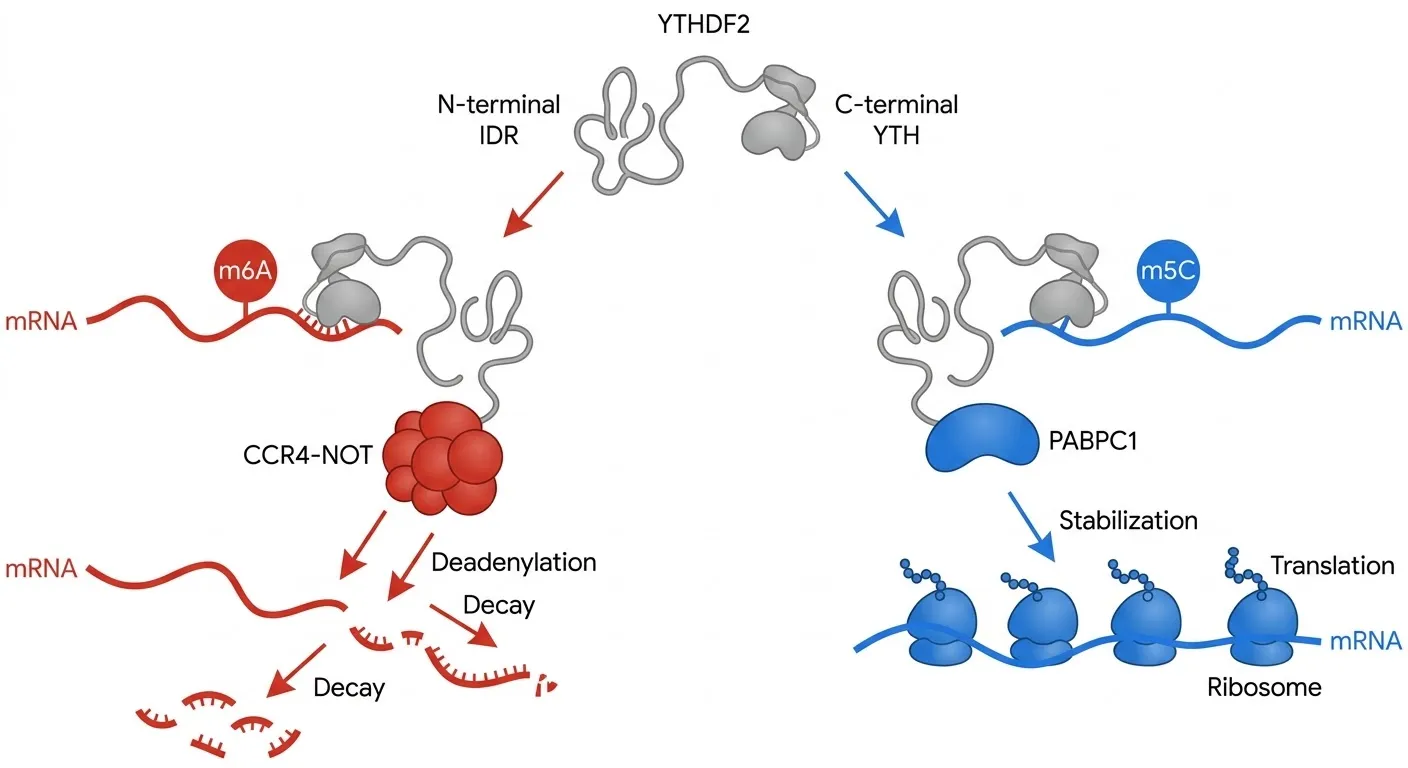
この図は、YTHDF2がRNAに付いた修飾の種類によって標的mRNAの運命を逆方向に変えうることを示しています。左側ではYTHDF2がm6A修飾を認識するとCCR4-NOT複合体が動員され、ポリA鎖の短縮(脱アデニル化)からmRNA分解へ進みます。一方、右側のm5C修飾RNAではPABPC1が動員され、mRNAの安定性が高まり、リボソームによる翻訳が促進されます。つまりYTHDF2は単純な「RNA分解因子」ではなく、RNA修飾の文脈に応じて遺伝子発現を調節する多面的なリーダータンパク質として理解されつつあります。
3. mRNAをどうやって壊すのか
YTHDF2がmRNAを分解へ導く方法は、ひとつではありません。目印を読み取ったあと、細胞のなかにある複数の分解装置を標的mRNAへ物理的に引き寄せる「アダプター(足場)」として働きます。もっとも代表的な経路は、ポリA鎖を縮めるやり方です。
mRNAの末端(3′末端)には、ポリA鎖と呼ばれるアデニンの連なった「しっぽ」が付いていて、これが写しの安定性を守っています。YTHDF2のN末端領域は、CCR4-NOT複合体という脱アデニル化装置の足場サブユニット(CNOT1)に直接、強く結合します[1]。この結合をきっかけに、しっぽを削る酵素が標的mRNAへ動員され、ポリA鎖がすばやく短くなります。しっぽを失ったmRNAは守りを失い、続いて分解酵素の標的となって完全に片づけられます。
このように、YTHDF2は状況に応じて複数の壊し方を使い分けます。しっぽを縮める経路のほか、写しを途中で直接切ってしまう経路や、翻訳がうまく進まなくなったmRNAの先頭のキャップ構造を外して分解へ導く経路も知られています。共通しているのは、YTHDF2自身が酵素としてハサミを持つのではなく、あくまで分解装置を呼び寄せる「まとめ役」として働いている点です。この性質は、後で述べる薬の開発を難しくする一因にもなっています。
🩺 院長コラム:なぜ「壊す」ことが大切なのか
遺伝子と聞くと「つくる」ことばかりに目が向きがちですが、細胞にとっては「いらないものを的確に捨てる」ことも同じくらい大切です。散らかった机では仕事がはかどらないのと同じで、古い写しが残り続けると、細胞は新しい状態へうまく切り替われません。YTHDF2はその片づけを担う遺伝子のひとつです。片づけが行きすぎても、足りなくても不都合が生じる。この絶妙なバランスこそ、YTHDF2を理解する鍵だと考えています。
4. 細胞のなかに「液滴」をつくる ─ P-bodyとストレス顆粒
この分野で近年もっとも画期的だった発見のひとつが、YTHDF2をはじめとするリーダータンパク質が、液–液相分離(LLPS)という物理現象を使って細胞内の場所づくりをしている、という事実です[6]。
💡 用語解説:液–液相分離(LLPS)
液–液相分離とは、水と油が分かれるように、ひとつの液体のなかに濃い部分と薄い部分が自然に分かれる現象です。細胞のなかでは、これによって膜を持たない「液滴」のような小部屋(コンパートメント)ができます。特定のタンパク質やRNAをこの小部屋に集めることで、細胞は反応を効率よく進めたり、危機のときに大切な分子を守ったりできます。
YTHDF2のN末端にある天然変性領域は、このLLPSを起こす鍵になります。写しに目印がひとつだけなら液滴はできにくいのですが、同じmRNAの上にm6Aの目印が複数あると、そのmRNAが「多価の足場」として働きます[6]。すると複数のYTHDF2分子が近くに集まり、それぞれの柔らかい領域どうしが手をつなぐように寄り集まって、タンパク質とRNAが高い密度で濃縮された液滴が自然にできあがります。この現象が、P-body(プロセシングボディ)やストレス顆粒という、膜を持たない小部屋の土台になっています。
ふだんの環境では、YTHDF2とmRNAの複合体はP-bodyへ運ばれ、そこでmRNA分解の効率が局所的に高められます。一方、熱や酸化などのストレスに細胞がさらされると、YTHDF2は翻訳が止まった写しを伴ってストレス顆粒へ移り、危機のあいだ特定の写しを一時的に守り、隔離する役割も担います[7]。つまりYTHDF2は、目印の数という情報を「液滴をつくるかどうか」という物理的な判断に変換し、状況に応じてmRNAの運命を切り替えているのです。
5. 3きょうだいの「統合モデル」 ─ 役割分担の常識がくつがえった
ヒトの細胞には、YTHDF2とよく似たYTHDF1・YTHDF3という「きょうだい遺伝子(パラログ)」があります。かつては、この3つが役割分担していると考えられていました。YTHDF1は翻訳を促し、YTHDF2は分解を担い、YTHDF3が両者を補助する、というモデルです。
ところが2020年、ZaccaraとJaffreyらが提唱した「統合モデル」が、この常識を大きくくつがえしました[2]。彼らは厳密な条件で実験を再検討し、YTHDF1・YTHDF2・YTHDF3はそれぞれ別の写しに結合するのではなく、同じm6A修飾mRNAに結合すること、そして少なくともHeLa細胞では翻訳を直接促す証拠はなく、3つが重なり合って(冗長的に)mRNAの分解と細胞の分化を担っていることを示しました[2]。実際、3つのアミノ酸配列や目印を読むポケットの立体構造は、非常によく似ています。
この「冗長性(バックアップし合う関係)」は生き物の体でも確かめられています。3つのうち1つだけを欠損させても大きな影響は出にくいのに、3つすべてを欠損させたときに、m6A修飾mRNAの分解異常と細胞分化への大きな影響が現れることが報告されています[2]。この知見は、YTHDF2を狙う抗がん剤を考えるうえで重要です。YTHDF2だけを抑えた場合に、他のパラログがどの程度代償するのかも、治療戦略では考慮する必要があります。
6. 体のなかでの役割 ─ 脳・幹細胞・代謝
YTHDF2による「不要な写しの片づけ」は、組織を正常に保ち、細胞の運命を決めるうえで決定的な役割を果たしています。ここでは、がん以外の正常なはたらきを見てみます。
脳の発生と神経幹細胞
脳の発生において、YTHDF2は神経幹細胞が自分を複製する能力と、神経細胞へと分化するタイミングを細かく調整しています。マウスで胎児期にYTHDF2を欠損させると、神経幹細胞の増える力が落ち、神経細胞の産生が遅れて、大脳皮質が薄くなってしまいます[9]。YTHDF2を完全に欠損したマウスは、発生の後期に致死となることも報告されています[9]。これは、m6Aに依存した写しの適時な片づけが、正常な脳の形づくりに欠かせないことを示しています。
幹細胞のリプログラミングと代謝
体細胞からiPS細胞をつくるリプログラミングの過程でも、YTHDF2は活躍します。この過程では、もとの体細胞の性質を消し去る必要があり、YTHDF2はそのための「消しゴム」として、体細胞らしさを保つ写しをすばやく分解します。これによって細胞は多能性(さまざまな細胞になれる能力)へと切り替わりやすくなります。また、脂肪組織や肝臓での脂質代謝にもYTHDF2は関わっており、代謝ストレス下でのエネルギーの扱い方に影響することが報告されています。
このように、YTHDF2は「正常な発生・分化・代謝を支える縁の下の力持ち」です。この事実は、後で述べる「がん治療でYTHDF2を狙うとき、正常な組織への影響をどう避けるか」という問いに直結してきます。
7. 白血病との深い関わり ─ 理想的な治療標的?
急性骨髄性白血病(AML)は、血液をつくるおおもとの細胞に異常が起き、正常な血液細胞へ育つことができなくなる病気です。このAMLで、YTHDF2はさまざまなタイプを越えて一貫して高く発現しており、白血病幹細胞の維持に必要だと報告されています[3]。
💡 用語解説:がん幹細胞と治療ウィンドウ
がん幹細胞(白血病幹細胞)とは、がんのなかでも自分を複製し、治療後に再発の種になりうる特にしぶといグループの細胞です。治療ウィンドウとは、治療効果が得られる量と、正常組織への有害作用が問題になる量とのあいだにある「治療可能な幅」を指します。この幅が広いほど、安全性を確保しながら治療効果を得やすくなります。
YTHDF2は、白血病幹細胞の生存に関わる複数のm6A修飾mRNAの寿命を調節しています。なかでもTNFR2をコードするmRNAは重要な標的のひとつで、YTHDF2を欠損させるとTNFR2の発現が上昇し、白血病幹細胞がアポトーシスを起こしやすくなることが報告されています[3]。TNFR2は、遺伝子TNFRSF1Bからつくられるタンパク質です。このようにYTHDF2は、標的mRNAの安定性を調節することで白血病幹細胞の生存を支えています。
とりわけ注目されたのが、正常な組織とがん組織での「依存度の違い」です。マウスの実験で、YTHDF2をなくすと白血病幹細胞のコロニーをつくる力は失われ、病気の進行が抑えられました。ところが同じ操作をしても、正常な造血幹細胞の機能は損なわれず、むしろ造血幹細胞の活性や増殖が高まることが示されました[3]。この正常造血と白血病幹細胞での依存性の違いは、YTHDF2を治療標的として検討する大きな理由のひとつです。
8. 乳がん・リンパ腫での二面性
YTHDF2は白血病だけでなく、他のがんでも重要な役割を持ちます。ただし、そのはたらきは一様ではなく、がんの種類や状況によって「がんを助ける顔」と「がんを抑える顔」の両方を見せる二面性があります。
トリプルネガティブ乳がんと「合成致死」
がん遺伝子MYCが過剰にはたらいて進むトリプルネガティブ乳がん(TNBC)では、YTHDF2がユニークな「合成致死」の標的になります[4]。MYCが暴走すると、細胞のなかで写しが大量につくられ、処理しきれない負荷(ストレス)がかかります。YTHDF2は、この過剰な写しを片づける「排水口」として働き、ぎりぎりのバランスを保っています。
💡 用語解説:合成致死(synthetic lethality)
合成致死とは、2つの条件が「片方だけなら平気だが、両方そろうと細胞が死ぬ」という関係のことです。がん治療では、がん細胞だけが持つ弱点(たとえばMYCの暴走)と、薬でつくり出す弱点(YTHDF2の阻害)を重ね合わせることで、正常細胞への影響を抑えながらがん細胞を選択的に攻撃する戦略として注目されています。
そのため、YTHDF2を抑えると、片づけられなかった大量の写しがあふれ、深刻なタンパク質の毒性(プロテオトキシシティ)が生じて、MYC依存性の高いがん細胞が選択的に死にやすくなることが報告されています[4]。MYCの暴走という「がんならではの弱点」を逆手に取る戦略です。なお、YTHDF2は生まれつきの遺伝性乳がんの原因遺伝子ではなく、ここで問題になるのはがん細胞のなかでの働きです。
B細胞リンパ腫での代謝と免疫回避
B細胞の悪性腫瘍(B細胞性白血病やリンパ腫)では、YTHDF2が前述の「二刀流」を利用して腫瘍細胞の生存を支えることが報告されています[5]。一方では、m5Cリーダーとしてエネルギー(ATP)の合成に関わる写しを安定化し、がん細胞の増殖に必要なエネルギー供給を支えます。他方では、m6Aリーダーとして、免疫の目印となるMHCクラスII分子や、CAR-T細胞療法の標的であるCD19の写しを分解し、その発現を下げて免疫からの逃避(免疫回避)を助けます[5]。
💡 用語解説:免疫回避とCAR-T細胞療法
免疫回避とは、がん細胞が免疫システムに見つからないよう「目印」を減らして逃げることです。CAR-T細胞療法は、患者さん自身の免疫細胞(T細胞)を改変し、がん細胞の目印(CD19など)を認識して攻撃できるようにする治療です。がん細胞がCD19などの標的抗原を減らして逃げる「抗原逃避」は、この治療に対する抵抗性の一因になります。
これらの知見は、YTHDF2を抑えることが、CAR-T細胞療法などの免疫療法に対する腫瘍の感受性を高める組み合わせ戦略になりうることを示しています[5]。がん細胞のエネルギー供給と免疫からの逃避という、異なる二つの側面にYTHDF2が関わっている点が注目されています。
9. YTHDF2を狙う治療薬の開発
がんにおけるYTHDF2の重要性が明らかになるにつれ、これを標的とする分子標的薬の開発が進んでいます。大きく分けて、YTHDF2とRNAの結合そのものを妨げる方法と、YTHDF2タンパク質を細胞内から除去する方法があります。
ひとつは、YTHドメインのm6A読み取りポケット(芳香族ケージ)を物理的にふさぐ低分子阻害剤です。たとえばCK-75というフェニルピラゾール系の化合物は、化合物ライブラリーのスクリーニングから見出され、YTHドメインの結合ポケットに結合してYTHDF2とRNAの相互作用を阻害します[10]。同じ研究では、CK-75がK562白血病細胞などで細胞周期停止とアポトーシスを誘導することも示されています[10]。このほかにもYTHDF2-RNA相互作用を標的とした低分子化合物の研究が進められています。
もうひとつが、PROTAC(プロタック)に代表される標的タンパク質分解の考え方です。YTHDF2は触媒反応そのものを担う酵素ではなく、RNAと分解装置をつなぐ足場・アダプターとして働くため、従来の酵素阻害薬とは異なる創薬戦略が必要になります。PROTACでは、標的タンパク質を単に阻害するのではなく、細胞自身の分解機構を利用して標的タンパク質そのものを減らします。
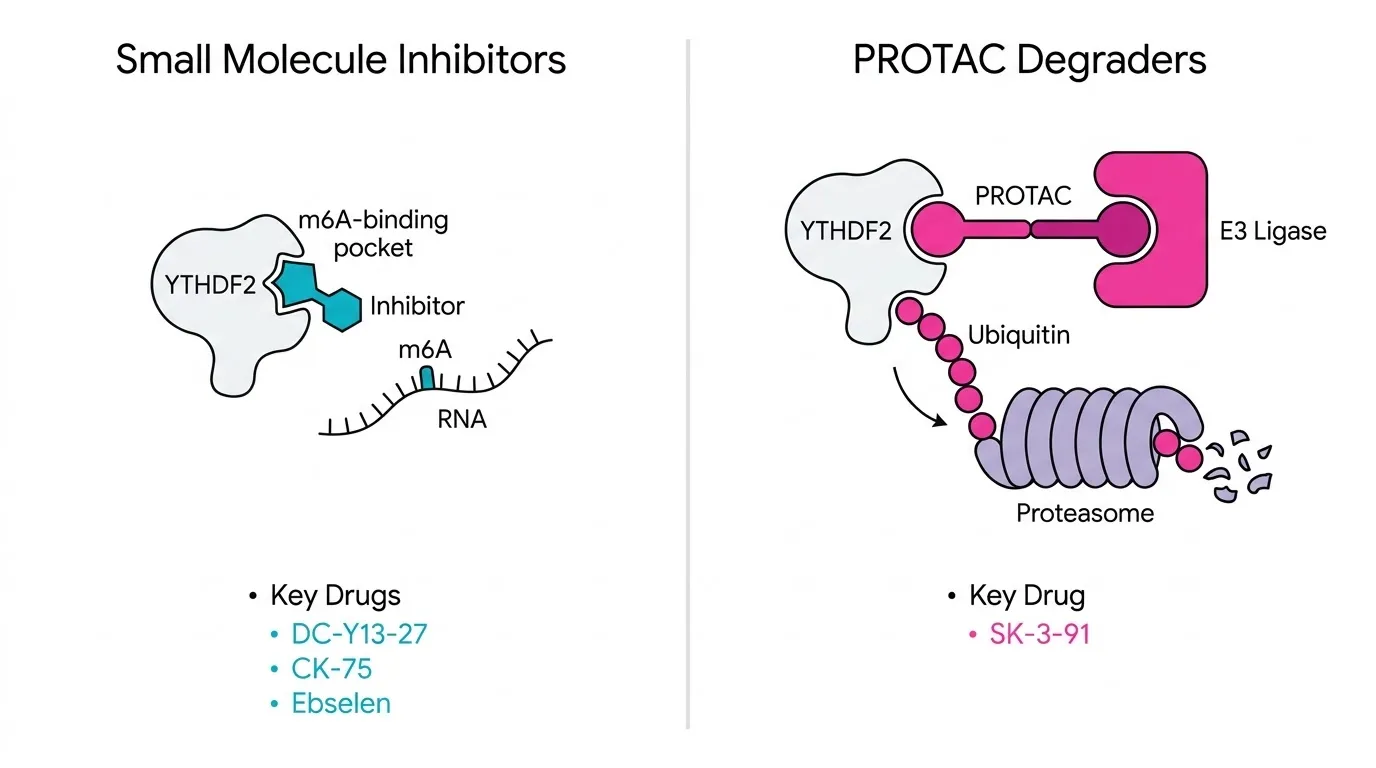
図の左側は低分子阻害剤による方法です。YTHDF2のYTHドメインにあるm6A結合ポケットを化合物でふさぐことで、YTHDF2がm6A修飾RNAを認識する過程を妨げます。右側はPROTACを用いた標的タンパク質分解の概念で、YTHDF2とE3ユビキチンリガーゼを近接させてYTHDF2にユビキチンを付加し、プロテアソームによる分解へ導きます。つまり、低分子阻害剤が「YTHDF2の機能を止める」のに対し、PROTACは「YTHDF2そのものを細胞から減らす」という発想です。
💡 用語解説:PROTAC(標的タンパク質分解誘導キメラ)
PROTACは、狙ったタンパク質(YTHDF2)に結合する部分と、細胞の分解システムであるユビキチン-プロテアソーム系を呼び込む部分を、1本のリンカーでつないだ二機能性分子です。標的とE3ユビキチンリガーゼを近づけ、ユビキチン化を介して標的タンパク質をプロテアソーム分解へ導きます。標的への持続的な占有を必ずしも必要としない「事象駆動型」の薬理作用が特徴です。
低分子阻害剤と標的タンパク質分解、この2つのアプローチは、RNAエピトランスクリプトミクスを標的とする新しい創薬戦略として研究されています。ただし現時点では、YTHDF2を標的とした薬剤が患者さんの日常診療で使用できる段階にはありません。細胞レベルの研究や前臨床研究、創薬初期の成果を中心とする段階であり、有効性だけでなく選択性、安全性、YTHDF1・YTHDF3による代償機構なども今後検討する必要があります。
🩺 院長コラム:RNAを標的にする時代へ
これまでの分子標的薬の多くは、酵素や受容体のはたらきを止めるものでした。YTHDF2のように「酵素ではないけれど、悪さの中心にいるタンパク質」を、分解という形で狙えるようになってきたことは、がん治療の考え方を大きく広げる可能性があります。もっとも、基礎研究の有望さが、そのまま患者さんの利益になるまでには、まだ多くの検証が必要です。新しい情報は、一次情報を確認しながら慎重に見ていくことが大切だと考えています。
10. よくある誤解
誤解①「YTHDF2はmRNAを壊すだけ」
長らくm6A修飾RNAを分解するリーダーとして研究されてきましたが、近年はm5C修飾RNAを安定化させる別の機能も報告されています。RNA修飾の種類や細胞の状況によって、標的RNAに異なる運命をもたらしうると考えられています。
誤解②「YTHDF2は必ずがんを悪くする」
YTHDF2の作用は細胞やがん種の文脈に依存します。がん細胞の生存や免疫回避を助けることもあれば、標的となるmRNAや細胞環境によって異なる作用を示すことがあります。「どのがんの、どの状況か」を区別して考える必要があります。
誤解③「YTHDF2の変異で遺伝する病気になる」
YTHDF2は、生まれつきの単一遺伝子病の原因遺伝子として確立しているわけではありません。現在よく研究されているのは、がんなどにおける発現量や機能の変化です。
誤解④「YTHDF2の薬はもう使える」
阻害薬や標的タンパク質分解は有望な研究対象ですが、得られているのは主に細胞実験・前臨床研究・創薬初期の成果です。患者さんに使用できる標準治療として確立した段階ではありません。
よくある質問(FAQ)
🏥 遺伝子や遺伝性疾患のご相談
遺伝子検査や、体質・病気に関わる遺伝的な背景についての
遺伝カウンセリングは
臨床遺伝専門医が在籍するミネルバクリニックにご相談ください。
参考文献
- [1] YTHDF2 destabilizes m6A-containing RNA through direct recruitment of the CCR4-NOT deadenylase complex. Nat Commun. 2016. [PMC5007331]
- [2] A Unified Model for the Function of YTHDF Proteins in Regulating m6A-Modified mRNA. Cell. 2020. [PMC7508256]
- [3] Targeting the RNA m6A Reader YTHDF2 Selectively Compromises Cancer Stem Cells in Acute Myeloid Leukemia. Cell Stem Cell. 2019. [PMC6617387]
- [4] Inhibition of YTHDF2 triggers proteotoxic cell death in MYC-driven breast cancer. Mol Cell. 2021. [PubMed 34216543]
- [5] YTHDF2 promotes ATP synthesis and immune evasion in B cell malignancies. Cell. 2025. [PubMed 39694037]
- [6] m6A enhances the phase separation potential of mRNA. Nature. 2019. [PMC6662915]
- [7] Binding to m6A RNA promotes YTHDF2-mediated phase separation. Protein Cell. 2020. [PMC7093369]
- [8] Structure of the YTH domain of human YTHDF2 in complex with an m6A mononucleotide reveals an aromatic cage for m6A recognition. Cell Res. 2014. [PubMed 25412658]
- [9] Ythdf2-mediated m6A mRNA clearance modulates neural development in mice. Genome Biol. 2018. [PMC5984442]
- [10] Phenylpyrazoles as Inhibitors of the m6A RNA-Binding Protein YTHDF2. JACS Au. 2025. [PMC11862924]






