

目次

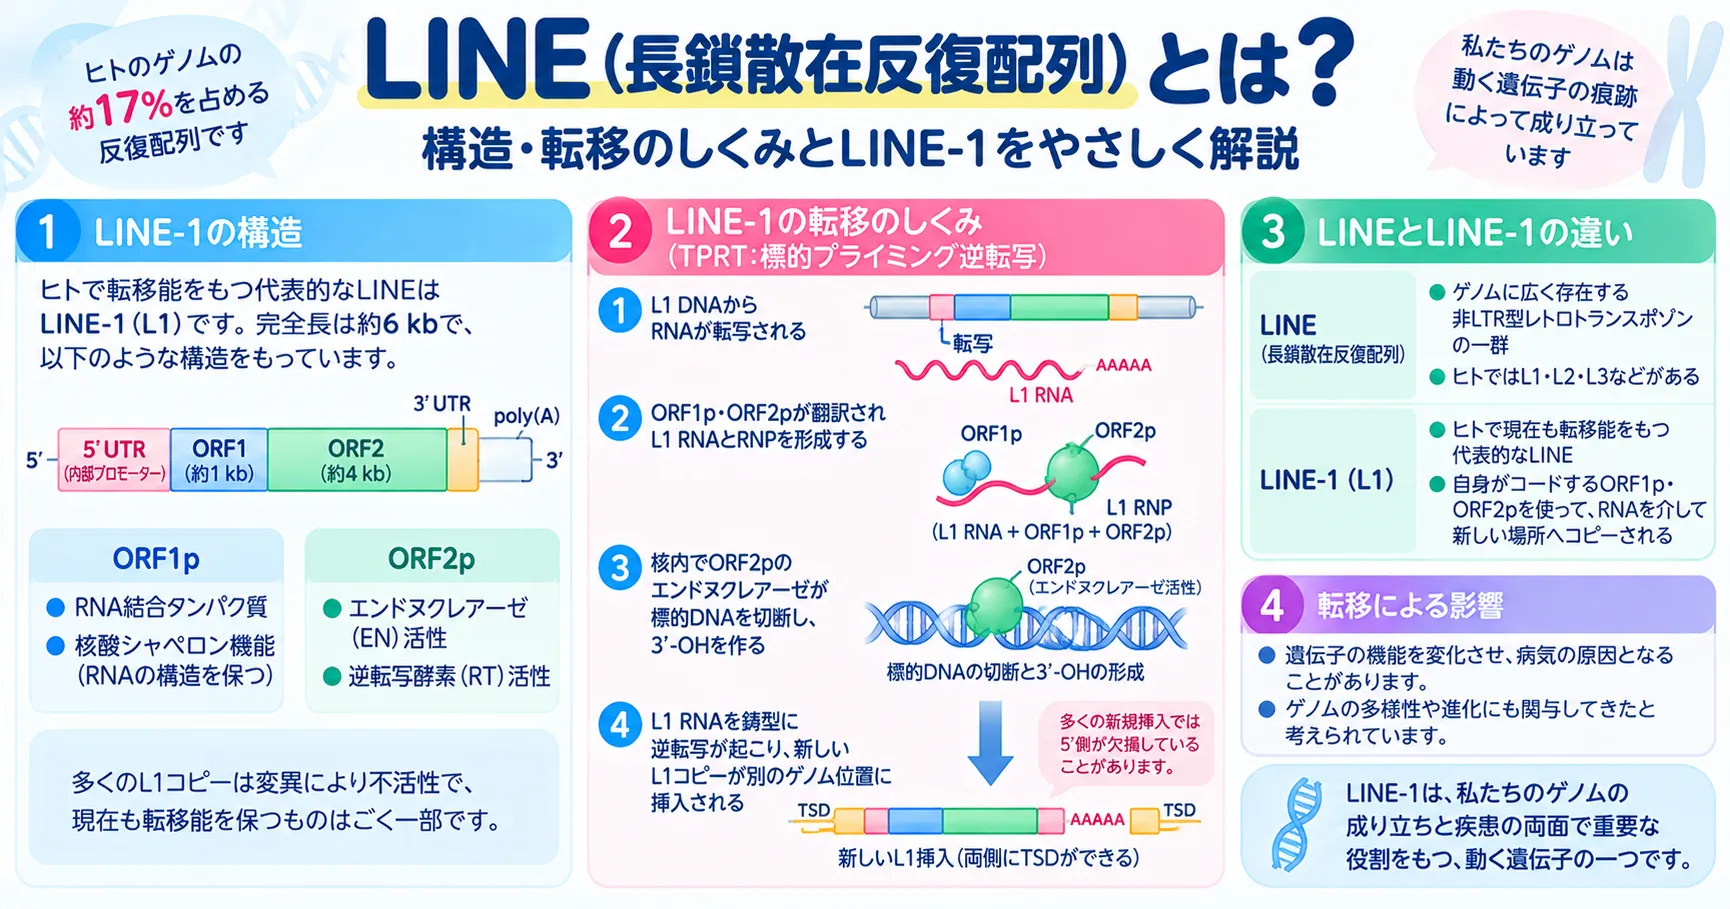
LINE(ライン/長鎖散在反復配列、Long Interspersed Nuclear Element)は、自分自身をコピーしてゲノムのあちこちに移動する「動く遺伝子」の一種です。ウイルスのようにRNAを介して自分の配列をDNAへ書き戻すことで増えるため、レトロトランスポゾン(転移因子)に分類されます。ヒトのゲノムでいまも自力で動けるのは、ほぼLINE-1(L1)という一種類だけ。多くの人が検索する「line 1」も、このLINE-1のことです。LINEはヒトゲノムの約2割を占めるほど大量に存在し、進化と多様性の源になってきた一方で、まれに遺伝子を壊して病気の原因にもなります。この記事では、LINEとは何か、その構造・動き方・ゲノムでの量、そして疾患や進化との関わりまでを、臨床遺伝専門医の視点でやさしく解説します。
Q. LINEとは何ですか?まず結論だけ知りたいです
A. LINE(長鎖散在反復配列)とは、自分のRNAを逆転写してゲノム内の新しい場所に挿入する、非LTR型レトロトランスポゾン(動く遺伝子の一種)です。ヒトのゲノムでいまも自力で動けるのは、事実上LINE-1(L1)という一種類だけです。LINE-1はゲノムの約17%を占め、大多数はすでに動けない断片ですが、ごく一部(80〜100個程度)は現在も転移する能力を保っています。まれに遺伝子に入り込んで機能を壊し、病気の原因になることがあります。
- ➤正体 → RNAを介して「コピー&ペースト」でゲノム内を移動する非LTR型レトロトランスポゾン
- ➤LINEとLINE-1 → LINEは大きなグループ名。ヒトでいまも動けるのは事実上LINE-1(L1)だけ
- ➤ゲノムでの量 → L1でヒトゲノムの約17%。大多数は動けない断片で、活性型は80〜100個ほど
- ➤病気とのつながり → まれに遺伝子を壊して単一遺伝子病を起こす。がんでは抑制の破綻で再活性化する
- ➤もう一つの顔 → 挿入は進化や遺伝的多様性の源にもなってきた「もろ刃の剣」
🧬 LINE(長鎖散在反復配列)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・正式名称 | ライン/長鎖散在反復配列(Long Interspersed Nuclear Element、LINE) |
| 分類 | 非LTR型レトロトランスポゾン(転移因子=動く遺伝子の一種)[2] |
| 代表的な仲間 | LINE-1(L1)・LINE-2・LINE-3。このうちいまも自力で動けるのはLINE-1だけ。L2/L3は動けない「分子化石」 |
| 全長 | 完全長のLINE-1で約6 kb(6.0〜7.0キロ塩基)[1] |
| ゲノムに占める割合 | LINE-1だけでヒトゲノムの約17%(LINE全体では約2割)[1] |
| コピー数 | 約50万コピー。うち転移能を保つのは80〜100個程度 |
| 構造 | 5′UTR(内部プロモーター)+ORF1+ORF2(エンドヌクレアーゼ+逆転写酵素)+3′UTR・poly(A) |
| 医療との関わり | まれに遺伝子を壊して遺伝性疾患の原因に。がんでは抑制の破綻で再活性化する |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
💡 まずここから:トランスポゾン、レトロ、非LTRって何?
トランスポゾン(transposon)は、ゲノムのある場所から別の場所へ移動したり、自分のコピーを別の場所へ挿入したりできるDNA配列の総称です。名前は「位置を移す」という意味の英語 transpose に由来します。「poson」という部分だけに独立した意味がある、と考える必要はありません。
レトロ(retro)は「後ろへ・逆向きに」という意味です。通常、遺伝情報は DNA → RNA の方向に読み出されますが、レトロトランスポゾンは、いったん作ったRNAから再びDNAを作る RNA → DNA という逆向きの反応を利用します。これが逆転写です。
LTRは Long Terminal Repeat(長い末端反復配列) の略で、配列の両端にみられる特徴的な反復配列です。LTRを持つレトロトランスポゾンをLTR型、LTRを持たないものを非LTR型と呼びます。LINEはこの非LTR型に分類されます。
💡 そもそも、なぜLINEは転移するの? 何のためにあるの?
LINEが人間のために何かをする目的で転移しているわけではありません。 LINEのような転移因子は、自分自身のコピーを増やせる性質をもったDNA配列です。進化の過程で、コピーを増やすことのできた配列がゲノム内に蓄積し、世代を超えて残ってきました。
LINE-1の場合は、もとのDNA配列からRNAを作り、そのRNAを再びDNAへ逆転写して、別の場所へ新しいコピーを挿入します。つまり、LINE 1個 → RNAを作る → DNAに戻す → 別の場所にコピーを挿入 → LINEが増える、という流れです。もとのLINEはその場所に残るため、単純な「引っ越し」よりもコピー&ペーストによる増殖と考える方が実態に近いです。
したがって、「DNAは何のために転移するのか」というより、自分をコピーして増えることのできるDNA配列が存在し、そのコピーが長い進化の過程でゲノムに蓄積してきたと理解するのが適切です。その後、転移因子由来の配列の一部が、遺伝子発現を調節する配列などとして宿主側に利用されるようになった例もあります。
1. LINE(長鎖散在反復配列)とは
LINEは、ヒトのDNAの中に多数存在する反復配列の一種で、もともとは自分自身のコピーを作って、ゲノム内の別の場所へ増えることができる配列です。まずはLINEを理解するために必要な「トランスポゾン」「レトロトランスポゾン」「非LTR型」という3つの用語を順番に整理します。
💡 用語解説:トランスポゾンとは?
トランスポゾン(転移因子)とは、ゲノムの中で場所を移したり、自分のコピーを別の場所へ挿入したりできるDNA配列の総称です。「動く遺伝子」と呼ばれることもありますが、通常の遺伝子そのものというより、ゲノム内を移動できるDNA配列と考えると理解しやすくなります。LINEは、このトランスポゾンの仲間です。詳しくはトランスポゾン(動く遺伝子)で解説しています。
💡 用語解説:レトロトランスポゾンとは?
トランスポゾンには複数の動き方があります。レトロトランスポゾンは、DNAからいったんRNAを作り、そのRNAをもとに再びDNAを作って、新しい場所へコピーを挿入するタイプです。つまり、元の配列を残したまま「コピー&ペースト」方式で増える転移因子です。RNAからDNAを作る反応を逆転写と呼びます。
💡 用語解説:非LTR型とは? LTRって何?
LTRは Long Terminal Repeat(長い末端反復配列)の略で、一部のレトロトランスポゾンの両端にある特徴的な反復配列です。LTRを持つものを「LTR型」、LTRを持たないものを「非LTR型」と呼びます。LINEはLTRを持たないため、非LTR型レトロトランスポゾンに分類されます。つまり「非LTR型」という言葉は、LINEの動き方ではなく、両端にLTRという構造を持たないことを表しています。
以上をまとめると、LINEは「ゲノム内をコピー&ペースト方式で増えるトランスポゾンのうち、LTRを持たないタイプ」です。専門用語では、これを非LTR型レトロトランスポゾンと呼びます。ヒトのゲノムにはLINEの痕跡が大量に存在しますが、現在も自力で転移する能力を保つものは、事実上LINE-1(L1)です[1]。
LINEとLINE-1(L1)の関係
検索でよく見かける「LINE-1」や「L1」は、LINEという大きなグループの中の一つの種類(ファミリー)です。LINEにはLINE-1・LINE-2・LINE-3があり、L2とL3はゲノム全体の5〜6%を占めますが、その大半はすでに変異がたまって動けなくなった「分子化石」です[1]。つまり、「ヒトのゲノムでいまも動いているLINE」=ほぼLINE-1と考えて差し支えありません。そのため、LINEについて語るときは、実質的にLINE-1の話をしていることがほとんどです。専門的には、ヒト固有のL1亜科(L1Hs/L1PA1などと呼ばれます)が、現在も転移する能力を保った活性型として知られています[2]。
「散在性」とは? ─ SINEやタンデムリピートとの違い
ゲノムの反復配列には、大きく分けて「同じ配列があちこちに散らばっている散在性反復配列」と、「同じ配列が数珠つなぎに並んだ縦列反復配列(タンデムリピート)」があります。LINEは前者の代表で、「長い(Long)」散在性反復配列という意味で名づけられました。これに対して、同じ散在性でも配列が短いものをSINE(短鎖散在反復配列)と呼び、その代表が霊長類のゲノムに100万コピー以上あるAlu配列です。ここで大切な違いは、SINE(Alu)は自分だけでは動けないという点です。Aluは逆転写酵素などの「動くための道具」を自分では持たず、後述するようにLINE-1の道具を借りて移動します。
2. LINEの構造 ─ 動くための道具一式
完全な形(完全長)のLINE-1は約6 kb(6.0〜7.0キロ塩基)で、自分で動くための道具をひととおり備えています。具体的には、5′側から順に、5′非翻訳領域(5′UTR)・ORF1・ORF2・3′非翻訳領域(3′UTR)とpoly(A)尾部という構成です[3]。この一本鎖の中に、転写のスイッチと、動くための2つのタンパク質の設計図が収められています。まず全体像を図で見てみましょう。
図:完全長LINE-1のおおまかな構造。5′UTRの内部プロモーターで自分自身の転写を始め、ORF2が「切る酵素」と「逆転写する酵素」を担う。
それぞれの役割を見ていきましょう。5′UTRには内部プロモーターがあり、L1は外部の助けに頼らず自分自身の転写を始めることができます。ORF1がつくるタンパク質(ORF1p)は、RNAに結合してこれを保護・運搬する役割を担います。そして最も重要なのがORF2で、ここがつくるタンパク質(ORF2p)は、DNAを切るエンドヌクレアーゼ(EN)と、RNAを鋳型にDNAを合成する逆転写酵素(RT)という2つの活性を併せ持ちます。このENとRTの両方がそろって初めて、L1は自力で動くことができます[3]。逆に言えば、この道具一式を備えているからこそ、L1は「自律的な」転移因子と呼ばれるのです。
ORF1pとORF2pは、自分をつくり出したRNA(つまり自分自身の配列)に優先的に結合する性質を持っています。この「身内びいき(シス選択性)」があるおかげで、L1は他の配列よりも自分自身を効率よくコピーでき、長い進化の中でゲノム内に数を増やしてくることができました。
⚠️ 注意:ほとんどのLINEは「動けない断片」
ゲノムにある約50万個のLINE-1コピーの大多数は、5′側が途中で欠けた不完全な断片で、上記の道具一式がそろっていません。そのため、実際に動けるのはごく一部にすぎません。「ゲノムの17%がLINE-1」と聞くと、たくさんの配列が動き回っているように感じますが、そのほとんどは過去に動いた痕跡が化石のように残っているだけ、というのが実態です。
3. LINEはどのように転移するのか
LINE-1は、いったんRNAに写された自分の配列を、ORF2の酵素を使ってその場でDNAに逆転写しながらゲノムへ挿入します。この仕組みを「標的部位プライム逆転写(TPRT:Target-Primed Reverse Transcription)」と呼びます。[2]大まかな流れは次の4段階です。
まず、L1は5′UTRの内部プロモーターで自分のRNAを転写します。次に、そのRNAはORF1pとORF2pと結合してリボヌクレオプロテイン(RNP)という複合体をつくり、核の中へ入ります。核内では、ORF2pのエンドヌクレアーゼ(EN)がゲノムDNAの狙った場所に切れ込みを入れ、その切断でできたDNAの端(3′-OH)を「取っかかり(プライマー)」にして、同じORF2pの逆転写酵素(RT)がL1 RNAをその場でDNAに写し取ります。こうして新しいL1のコピーがゲノムに書き込まれます。切った場所で直接逆転写を始めるところが、この機構が「標的部位プライム(=切断部位を出発点にする)」と呼ばれる理由です。
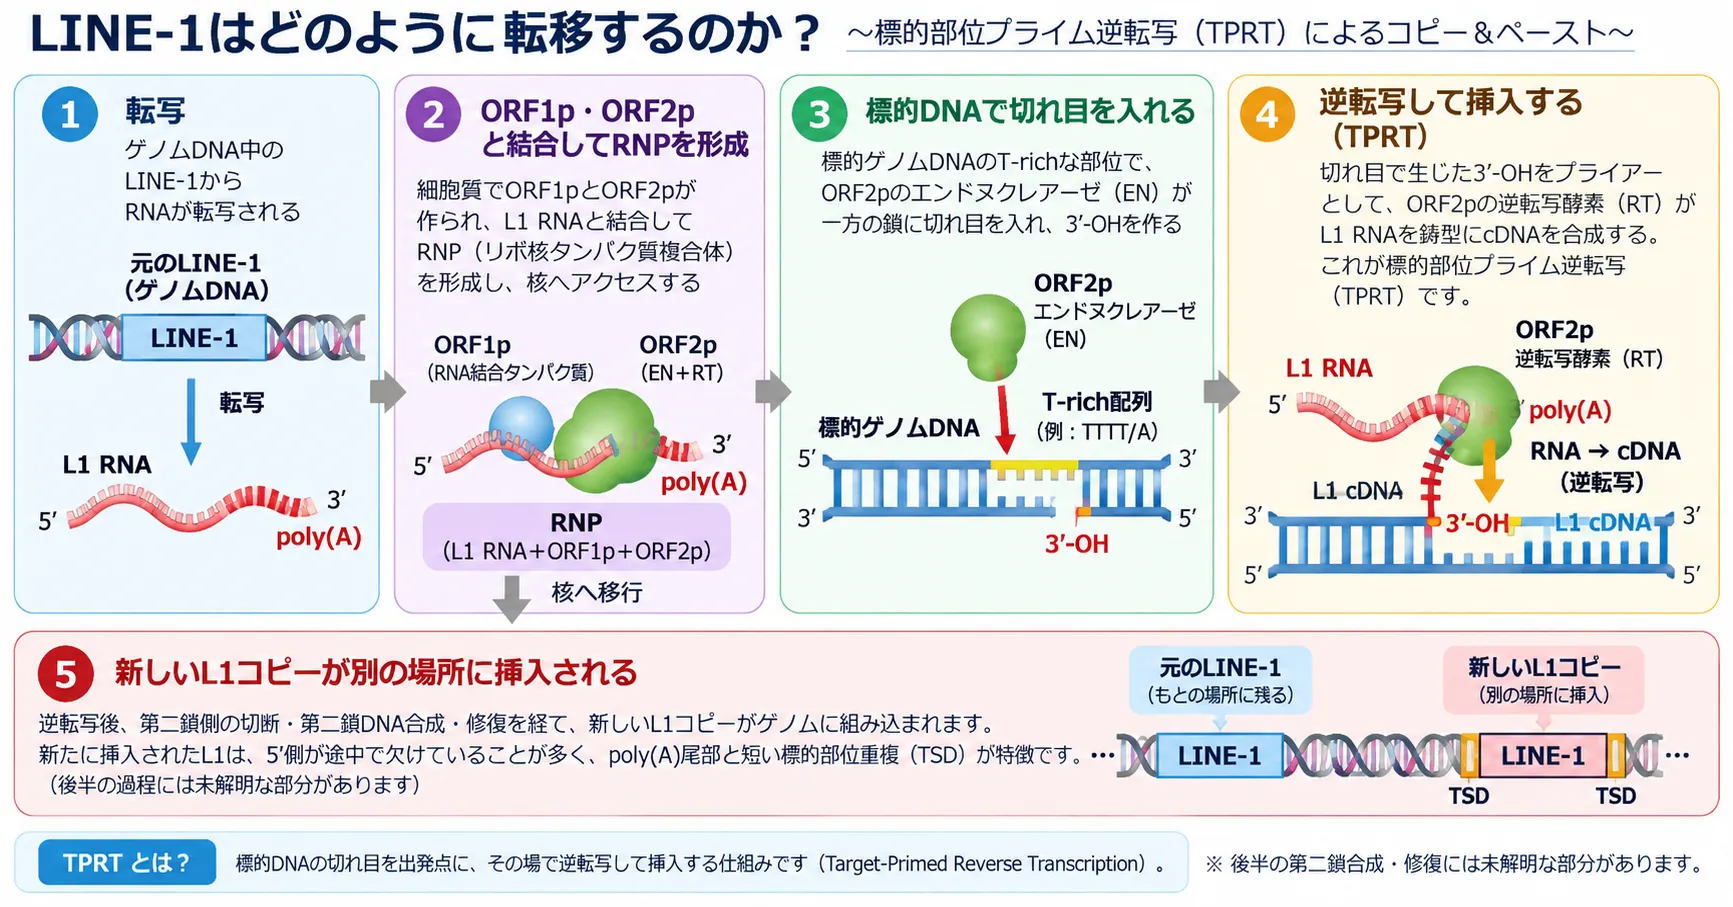
LINE-1は、ゲノムDNAからRNAへ転写された後、ORF1p・ORF2pと複合体を形成します。ORF2pのエンドヌクレアーゼが標的DNAに切れ目を入れ、その3′-OHを起点として逆転写酵素がL1 RNAからcDNAを合成します。この標的部位プライム逆転写(TPRT)を経て、新しいLINE-1コピーがゲノムの別の場所に挿入されます。逆転写が途中で終了すると5′側が欠けたコピーとなるため、ゲノム中のL1の多くは不完全な断片として残っています。
LINE-1の道具(とくにORF2pのEN+RT)は、じつは自分以外の配列も動かせます。自力では動けないAlu配列(SINE)やSVAという転移因子は、L1の酵素を「拝借」してゲノム内を移動します[2]。さらに、細胞がふだん使っているメッセンジャーRNAが、たまたまL1の機構で逆転写されてゲノムに挿し込まれると、イントロンを失ったコピー遺伝子=処理済み偽遺伝子ができます。つまりL1は、自分を増やすだけでなく、ゲノム全体の配列の「作り替え」に幅広く関わる存在なのです。この「他人まで動かす」性質は、進化的な多様性の源になる一方で、思わぬ場所に配列が入り込むリスクの源にもなります。
4. ヒトゲノムに占めるLINE ─ 量と活性
LINE-1はヒトゲノムの約17%を占めますが、その大多数はすでに動けない断片で、いまも転移できるのはごく一部です。数で見ると、L1のコピーはゲノム全体で約50万個にのぼります[4]。ただし、そのほとんどは5′側が欠けた不完全な断片で、道具一式がそろっていません。実際に転移する能力を保っているのは、平均的なヒトで80〜100個程度と見積もられています[5]。さらにその中でも、とくに活発に動く「ホットな」L1はごく少数だと考えられています。
つまり、「ゲノムの17%がLINE-1」という数字は、いま動いている量ではなく、過去から現在までに蓄積した痕跡の総量を表しています。数の多さと活性の高さは別物であり、この2つを分けて考えることが、LINEを正しく理解するコツです。
LINE全体(L1+L2+L3)で見るとゲノムのおよそ2割を占めますが、L2とL3はすでに活性を失った化石なので、「動いている量」という観点ではL1がほぼすべてです[1]。視野をさらに広げて、LINE・Alu(SINE)・SVAといった非LTR型の転移因子をすべて合わせると、ヒトゲノムのおよそ3分の1に達します[2]。私たちのゲノムは、「必要な遺伝子」だけでできているわけではなく、その大部分がこうした「動く配列とその痕跡」で占められている——この事実は、ゲノムを理解するうえでの重要な出発点です。
5. LINEと疾患 ─ 遺伝子を壊す「もろ刃の剣」
LINE-1の挿入は、まれに遺伝子の中に入り込んでその働きを壊し、単一遺伝子病の原因になります。2016年のレビューでは、124件のLINE-1媒介挿入が、遺伝性疾患を引き起こした例として集計されています[1]。多くは、遺伝子のコード領域に挿入されたり、異常なスプライシング(RNAのつなぎ合わせの乱れ)を引き起こしたりして、遺伝子の機能を失わせます。歴史的には、1988年に血液を固める第VIII因子遺伝子へのL1挿入が2例の血友病Aで発見されたのが、ヒトでL1が実際に動く可動因子だと示した最初の証拠でした[1]。
遺伝子の壊れ方はさまざまです。挿入によって読み枠がずれてタンパク質が作れなくなることもあれば、挿入がスプライシング(RNAのつなぎ合わせ)を乱して、必要なエキソンが飛ばされることもあります。さらに、挿入が起こる際に周囲のゲノムが一部失われたり(欠失)、向きが入れ替わったり(逆位)して、二重に遺伝子の働きを乱す場合もあります。同じ「L1挿入」でも、入った場所と入り方によって、体への影響は大きく変わります。
⚠️ 誤解しやすい点:124件は「個人の発症確率」ではない
「124件」という数字は、2016年のレビュー時点で集計された既知の件数であって、特定の個人がLINE挿入で病気になる確率を表すものではありません。新たなL1挿入による単一遺伝子病はまれな現象です。数字の意味を取り違えないことが大切です。
がんとの関わりも注目されています。正常な細胞ではL1はしっかり抑え込まれていますが、多くのがんではゲノム全体のDNAメチル化が低下(低メチル化)し、それに伴ってL1の抑制がゆるみ、L1タンパク質(ORF1p)の発現や体細胞での新たな挿入が起こることが知られています[7]。ただし、「L1の再活性化」=「がんの原因」と単純に結びつけることはできません。低メチル化に伴う再活性化はがんでよくみられる現象ですが、L1がどこまで発がんを積極的に「駆動」しているのかは、がんの種類や状況によって異なり、なお研究が続いています。
LINEはどこで動くのか ─ 生殖細胞・初期胚・脳
L1が新たに動く場面は、大きく2つに分けられます。1つは生殖細胞系列(精子・卵子につながる細胞)や受精後の初期胚で、ここで起きた挿入は次の世代に受け継がれる可能性があります。上に挙げた遺伝性疾患の挿入は、主にこの経路によるものです。もう1つは体細胞で、とくに脳(神経細胞)では、病気の有無にかかわらずL1がある程度動いていることが報告されています[6]。その結果、隣り合う神経細胞どうしでもゲノムがわずかに異なる「モザイク」の状態が生じます。ただし、この脳での転移が正常な脳機能にとってどんな意味を持つのか、また統合失調症や双極性障害などの精神疾患とどう関係するのかは、現時点では相関の指摘にとどまり、L1が原因だと確立したわけではありません。相関と因果を区別して受け止める必要があります。挿入がゲノムの安定性に影響しうる点も、研究が進む領域です。
🩺 院長コラム【「動くゲノム」をどう受け止めるか】
LINEはヒトゲノムに多数存在しますが、その大多数は転移能を失った断片です。転移能を保つL1も、DNAメチル化や宿主防御機構などによって通常は抑制されています。そのため、LINEがゲノム内に存在すること自体を、直ちに疾患やゲノム不安定性と同一視することはできません。
一方で、L1の新規挿入が遺伝性疾患の原因となる例や、がんでL1の抑制が低下する例も報告されています。LINEを理解する際には、通常のゲノム構成要素としての側面、病的な挿入や再活性化、進化・遺伝的多様性への寄与を区別し、確立した知見と研究段階の知見を分けて捉えることが重要です。
6. LINEはどう抑え込まれているか
正常な細胞では、LINE-1は幾重もの仕組みで沈黙化(抑制)されており、その破綻が疾患やがんの背景になります。抑制の中心は、L1の5′UTRにあるCpGアイランドのDNAメチル化と、それに伴う抑制的なヒストン修飾です[8]。プロモーターにメチル化の「鍵」がかかることで、L1は転写されず、動けなくなります。
ただし、この守りは常に完璧というわけではありません。受精後の初期胚には、ゲノム全体のメチル化がいったん大きく書き換えられる時期があり、その間はL1への抑制が一時的にゆるみます。こうした「すき間」の時期には、次に述べる別の仕組みが働いて、L1の暴走を食い止めていると考えられています。
加えて、細胞は場面ごとに異なる守り手を用意しています。生殖細胞では、piRNA(PIWI相互作用RNA)と呼ばれる小さなRNAがL1を狙い撃ちして抑えます。発生初期や多くの体細胞では、KRAB型ジンクフィンガータンパク質(KRAB-ZFP)とその相棒KAP1(別名TRIM28)が、L1を含む転移因子をヘテロクロマチン化して黙らせます。さらに、HUSH複合体やAPOBEC3、MOV10といった宿主のタンパク質も、それぞれ別の段階でL1にブレーキをかけています[9]。こうした多層的な防御があるからこそ、大量のL1を抱えながらも私たちのゲノムは安定を保てているのです。逆に、がんで起こる全般的な低メチル化のように、この防御のどこかがゆるむと、L1が再び頭をもたげることになります[8]。
7. LINEと進化・多様性 ─ もう一つの顔
LINEの挿入は病気の原因になる一方で、遺伝的な多様性や新しい遺伝子部品の源にもなってきました。L1やAluの挿入は、人によって入っている場所が少しずつ異なり、これが個人差=遺伝的多様性を生む一因になっています[2]。また、挿入された配列がのちに遺伝子の新しい部品(エキソン)として取り込まれたり、遺伝子発現を調節するスイッチの材料になったりすることもあります。たとえば、もともと転移因子だった配列が、遺伝子の発現を細かく調整するスイッチ(制御配列)として再利用されている例は、数多く見つかっています。厄介者に見える動く配列が、じつはゲノムの「調整パネル」を豊かにしてきた——これも進化の一側面です。進化の長い時間の中で、転移因子は「ゲノムを作り替える素材」として働いてきたと考えられています。
このように、LINEは「病気を起こす厄介者」と「進化を推し進める立役者」という二つの顔を併せ持つ、もろ刃の剣のような存在です。ただし、こうした進化的な貢献の多くは長い時間スケールでの話であり、一人ひとりの健康に日々直接影響するものではありません。周辺のテーマに深入りせず、まずは「LINEとは何をする配列なのか」という核を押さえることが、この用語を理解する近道です。
まとめ
LINE(長鎖散在反復配列)は、RNAを介して自分をコピーし、ゲノム内を移動する非LTR型レトロトランスポゾンです。ヒトでいまも自力で動けるのは事実上LINE-1(L1)だけで、ゲノムの約17%を占めますが、その大多数は動けない断片であり、活性型は80〜100個程度にすぎません。L1はORF2に「切る酵素(EN)」と「逆転写する酵素(RT)」を備え、標的部位プライム逆転写(TPRT)という仕組みで動き、Alu・SVA・処理済み偽遺伝子まで動かします。
その挿入は、まれに遺伝子を壊して遺伝性疾患を起こし、がんでは抑制の破綻で再活性化する一方、遺伝的多様性や進化の源にもなってきました。正常な細胞では、DNAメチル化・piRNA・KRAB-ZFP/TRIM28などの多層的な仕組みでしっかり抑え込まれています。「動く配列がある」という事実だけで不安になる必要はありませんが、何が分かっていて何がまだ分かっていないのかを区別して理解することが、遺伝情報と正しく向き合う第一歩になります。
よくある質問(FAQ)
Q1. LINEとLINE-1はどう違うのですか?
LINE(長鎖散在反復配列)は、動く遺伝子であるレトロトランスポゾンの大きなグループ名です。その中にLINE-1・LINE-2・LINE-3という種類があり、ヒトのゲノムでいまも自力で動けるのは事実上LINE-1(L1)だけです。L2・L3はすでに変異がたまって動けなくなった「分子化石」なので、「ヒトで動いているLINE」といえばほぼLINE-1を指します。検索でよく見る「line 1」「L1」も、このLINE-1のことです。
Q2. LINEはどうやってゲノム内を移動するのですか?
まず自分のRNAに写され、そのRNAがORF1p・ORF2pというタンパク質と結合して核に入ります。核内では、ORF2pのエンドヌクレアーゼがゲノムDNAに切れ込みを入れ、その切断部位を出発点にして、同じORF2pの逆転写酵素がRNAをその場でDNAに写し取り、新しいコピーとして挿入します。この仕組みを「標的部位プライム逆転写(TPRT)」と呼びます。いったんRNAを経由してDNAに戻る点で、ウイルスの逆転写に似た「コピー&ペースト」です。
Q3. LINEはヒトゲノムのどのくらいを占めますか?
LINE-1だけでヒトゲノムの約17%を占めます。LINE全体(L1+L2+L3)では約2割、さらにAlu(SINE)やSVAを含めた非LTR型の転移因子をすべて合わせると、ゲノムのおよそ3分の1に達します。ただし、これらの大多数はすでに動けなくなった断片で、実際に転移できるL1は平均的なヒトで80〜100個程度と見積もられています。
Q4. LINEは病気の原因になりますか?
まれになります。2016年のレビューでは、ヒトで124件のLINE-1媒介挿入が遺伝性疾患を起こした例として集計されています。最初の発見は1988年で、血液を固める第VIII因子遺伝子へのL1挿入による血友病Aでした。また、多くのがんではDNAの低メチル化に伴ってL1の抑制がゆるみ、再活性化することが知られています。ただし、124件は2016年のレビュー時点で集計された既知の件数であって、個人が発症する確率を示すものではなく、新たな挿入による病気はまれな現象です。
Q5. LINE(LINE-1)とAlu(SINE)はどう違いますか?
どちらもゲノム内を移動する散在性の転移因子ですが、配列の長さと「自力で動けるか」が異なります。LINE-1は約6 kbと長く、動くための道具(逆転写酵素など)を自分で持つ「自律型」です。一方Aluは約300塩基と短いSINE(短鎖散在反復配列)で、動くための道具を持たず、LINE-1の酵素を借りて移動する「非自律型」です。つまりAluは、LINE-1があって初めて動けます。
Q6. LINEの挿入は子孫に伝わりますか?
伝わる可能性があるのは、精子や卵子につながる生殖細胞系列や、受精後の初期胚で起きた挿入です。これらは次の世代に受け継がれることがあり、遺伝性疾患の原因となる挿入は主にこの経路によります。一方、脳の神経細胞など体細胞で起きた挿入は、その個人の一部の細胞にとどまり、子孫には伝わりません。
参考文献
- [1] Hancks DC, Kazazian HH Jr. Roles for retrotransposon insertions in human disease. Mobile DNA. 2016;7:9. [Mobile DNA]
- [2] Cordaux R, Batzer MA. The impact of retrotransposons on human genome evolution. Nature Reviews Genetics. 2009;10:691-703. [LSU Digital Commons]
- [3] Zhang X, Zhang R, Yu J. New Understanding of the Relevant Role of LINE-1 Retrotransposition in Human Disease and Immune Modulation. Front Cell Dev Biol. 2020;8:657. doi:10.3389/fcell.2020.00657. PMID:32850797. [Frontiers]
- [4] Belgnaoui SM, et al. Human LINE-1 retrotransposon induces DNA damage and apoptosis in cancer cells. Cancer Cell International. 2006;6:13. [PMC1464142]
- [5] Terasaki N, Goodier JL, Cheung LE, et al. In Vitro Screening for Compounds That Enhance Human L1 Mobilization. PLoS One. 2013;8(9):e74629. doi:10.1371/journal.pone.0074629. PMID:24040300. [PMC3770661]
- [6] Son JH, Do H, Han J. Intragenic L1 Insertion: One Possibility of Brain Disorder. Life. 2022;12:1425. [PMC9505610]
- [7] Lu XJ, Xue HY, Qi X, Jiang X, Ma SJ. LINE-1 in cancer: multifaceted functions and potential clinical implications. Genet Med. 2016;18(5):431-439. doi:10.1038/gim.2015.119. PMID:26334179. [Genetics in Medicine]
- [8] LINE-1 retrotransposition and its deregulation in cancers: implications for therapeutic opportunities. Genes & Development. 2023;37:948. [Genes & Development]
- [9] Guardian of the Human Genome: Host Defense Mechanisms against LINE-1 Retrotransposition. Frontiers in Chemistry. 2016;4:28. [Frontiers]






