

目次

📍 クイックナビゲーション
ポリペプチド(polypeptide)とは、多数のアミノ酸がペプチド結合で一列につながった鎖状の分子です。私たちの体で働く酵素・抗体や一部のホルモンなど、多くのタンパク質は、1本以上のポリペプチド鎖が特定の立体構造をとることで機能します。この記事では、ポリペプチドの定義から、ペプチドやアミノ酸・タンパク質との違い、ポリペプチド鎖がつくる一次〜四次構造、リボソームでの合成(翻訳)、そして折りたたみの異常が関わる病気まで、遺伝医学の視点で体系的に解説します。専門用語はそのまま残し、意味をその場で補いながら進めます。
Q. ポリペプチドとは何ですか?まず結論だけ知りたいです
A. ポリペプチドとは、多数のアミノ酸がペプチド結合(−CO−NH−)で直鎖状に連なった分子のことです。アミノ酸が2〜数個つながったものを「ペプチド」、多数つながって長くなったものを「ポリペプチド」と呼びます。ポリペプチド鎖が特定の立体構造に折りたたまれ、固有のはたらきを持つようになったものがタンパク質です。ただし、どこからがポリペプチドで、どこからがタンパク質かという境界に厳密な定義はなく、残基数はあくまで目安です。
- ➤正体 → アミノ酸がペプチド結合で一列につながった鎖状分子。各アミノ酸を「残基」と呼ぶ
- ➤命名 → 2個=ジ、3個=トリ、少数=オリゴ、多数=ポリ。目安として約50残基超で「タンパク質」と呼ばれることが多い
- ➤立体構造 → ポリペプチド鎖は一次(配列)→二次(αヘリックス・βシート)→三次構造をとり、複数鎖が会合するタンパク質では四次構造を形成する
- ➤どこで作られるか → リボソームでmRNAを鋳型に翻訳される(DNA→転写→翻訳)
- ➤病気とのつながり → 折りたたみの異常・凝集は、アルツハイマー病などの神経変性疾患に関与する
🧬 ポリペプチドの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | ポリペプチド(polypeptide)。「ポリ(poly-)」は「多数の」という意味の接頭辞 |
| 定義 | 多数のアミノ酸がペプチド結合(−CO−NH−)で連なった鎖状分子。構成する各アミノ酸を「残基(residue)」と呼ぶ |
| 仲間・命名 | ジペプチド(2)・トリペプチド(3)・オリゴペプチド(少数)・ポリペプチド(多数)。折りたたまれて機能を持つとタンパク質 |
| 構造の階層 | 一次構造(配列)→二次構造(αヘリックス・βシート)→三次構造。複数のポリペプチド鎖が会合する場合は四次構造 |
| 作られる場所 | 細胞内のリボソーム。mRNAのコドンに従って翻訳される |
| 医学との関わり | ホルモン・酵素・抗体として働く一方、折りたたみ異常・凝集は神経変性疾患などに関与する |
※本記事は一般の方と遺伝医療に関わる方の双方に向けた用語解説です。特定の検査を勧めるものではありません。
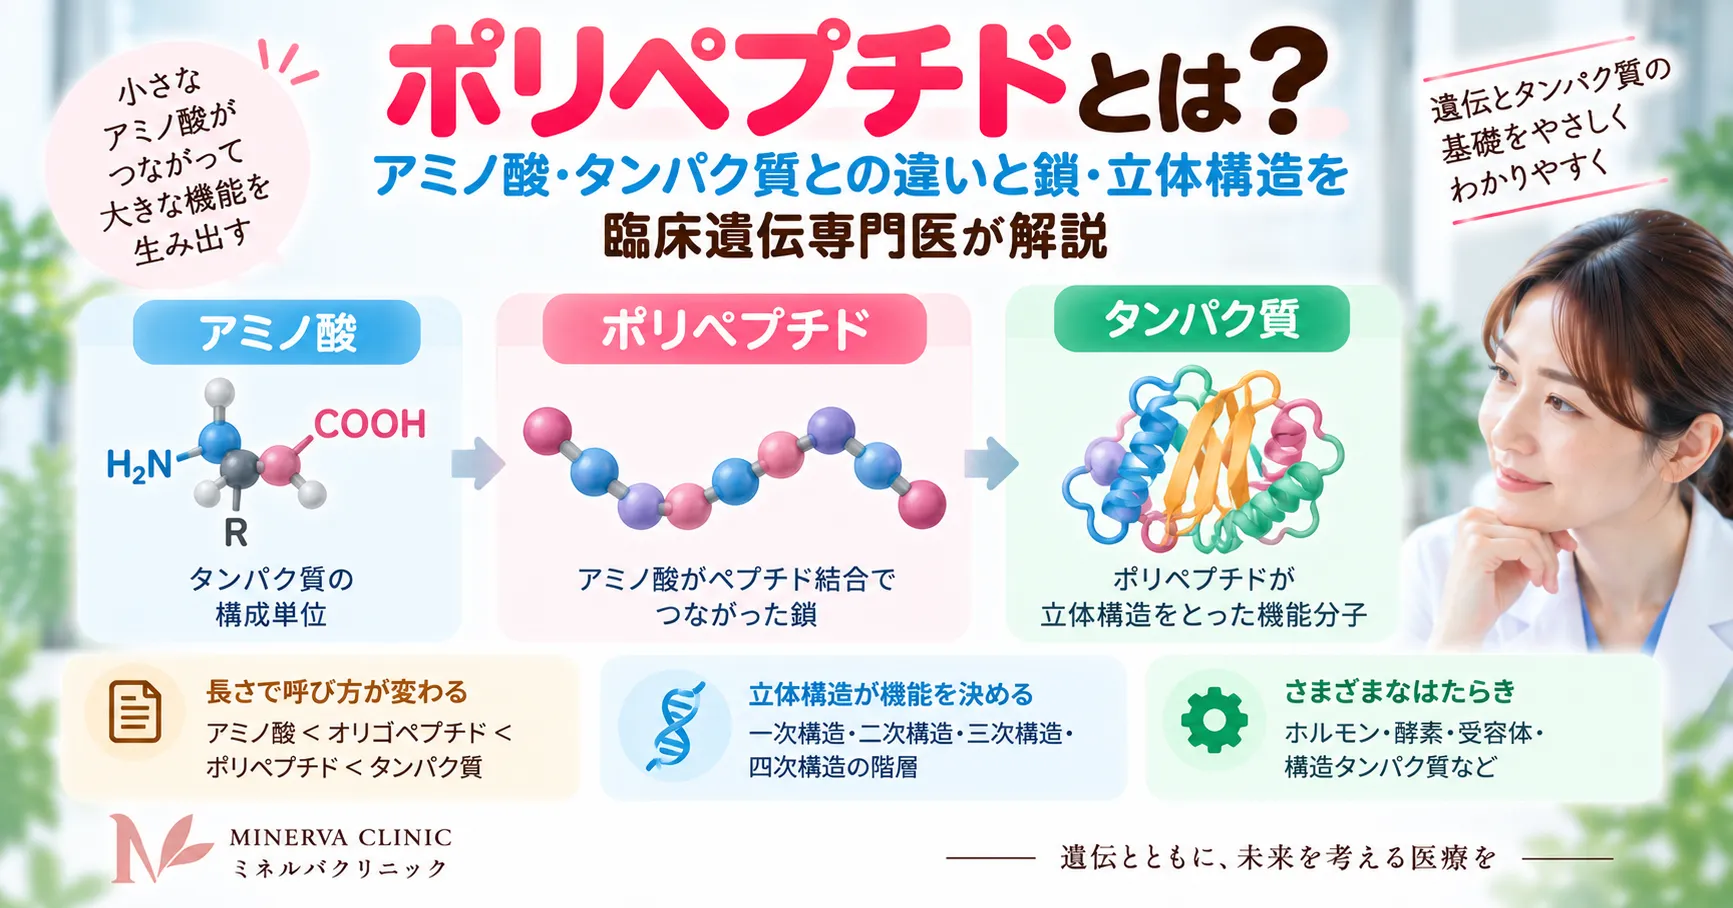
ポリペプチドは、多数のアミノ酸がペプチド結合で連なった鎖状分子です。ペプチドやタンパク質との関係、立体構造、リボソームでの翻訳など、記事で解説する全体像を示します。
1. ポリペプチドとは ― アミノ酸が連なった鎖
ポリペプチドとは、多数のアミノ酸がペプチド結合で一列につながった鎖状の分子です。まず結論を押さえると、ポリペプチドは「タンパク質の骨組みそのもの」であり、これが立体的に折りたたまれることで、酵素やホルモンといった働くタンパク質になります。以下では、その材料と結合のしくみを順に見ていきます。
ポリペプチドの定義 ― 何からできているか
ポリペプチドの材料はアミノ酸です。アミノ酸は、中心の炭素にアミノ基(−NH₂)とカルボキシル基(−COOH)、そして種類ごとに異なる側鎖(R基)を持つ小さな分子です。ヒトのタンパク質は、基本的に20種類のアミノ酸の組み合わせでできています。側鎖の性質はアミノ酸ごとに異なり、水になじみやすい親水性のものと、水をはじく疎水性のものがあります。どのアミノ酸がどの順番で並ぶかによって、ポリペプチド全体の性質と、後で折りたたまれる立体的な形が決まります。
2つのアミノ酸が近づくと、一方のカルボキシル基と他方のアミノ基のあいだで脱水縮合が起こり、水(H₂O)が1分子外れてペプチド結合(−CO−NH−)が生まれます[1]。この結合が繰り返されて鎖が伸びたものがポリペプチドです。結合をつくる際に水が外れるため、鎖に組み込まれた各アミノ酸は「残った部分」という意味で残基(residue)と呼ばれます。ペプチド結合は「アミド結合」という結合の一種で、その化学的な性質のさらに詳しい話は、姉妹記事のペプチドのページにゆずります。
💡 用語解説:残基(レジデュー)
アミノ酸がペプチド結合で鎖に組み込まれるとき、結合のたびに水分子が外れます。そのため、鎖の中の1つ1つのアミノ酸は、外れた分を差し引いた「残り」という意味で残基と呼ばれます。「50残基のポリペプチド」とは、アミノ酸が50個つながった鎖を指す、と考えて差し支えありません。
鎖には向きがあります。アミノ基が結合に使われずに残っている端をN末端(アミノ末端)、カルボキシル基が残っている端をC末端(カルボキシ末端)と呼び、アミノ酸の並び順(配列)は通常N末端からC末端へ向かって書きます。この並び順こそが、後で述べる立体構造とはたらきを決める設計図になります。
「ポリ」の意味とペプチドの命名
「ポリ(poly-)」は「多数の」を意味する接頭辞です。アミノ酸がつながった鎖は、その長さ(残基数)によって呼び名が変わります。2個ならジペプチド、3個ならトリペプチド、少数がつながったものをオリゴペプチド、そして多数がつながって長くなったものをポリペプチドと呼びます。さらに、ポリペプチド鎖が固有の立体構造に折りたたまれ、生物学的なはたらきを持つようになったものがタンパク質です。
この呼び分けは便利ですが、境界の数字は情報源によってばらつきます。次の章で、アミノ酸・ペプチド・ポリペプチド・タンパク質の関係を、1枚の表で整理します。
2. アミノ酸・ペプチド・ポリペプチド・タンパク質の違い
結論から言うと、これらはすべて「アミノ酸がいくつつながっているか」と「折りたたまれて機能を持つか」で段階的に区別される、地続きの概念です。単量体のアミノ酸から、短い鎖のペプチド、長い鎖のポリペプチド、そして折りたたまれて働くタンパク質へと連続しています。まず全体像を表で確認しましょう。
📊 アミノ酸からタンパク質までの関係
| 呼び名 | 構成 | 目安の残基数 | 特徴・例 |
|---|---|---|---|
| アミノ酸 | 単量体(部品そのもの) | 1 | タンパク質の構成単位。ヒトでは基本20種類 |
| ジ/トリペプチド | ごく短い鎖 | 2〜3 | グルタチオン(3残基)など |
| オリゴペプチド | 短い鎖 | およそ2〜20(定義により10〜20) | オキシトシン・バソプレシン(各9残基)など |
| ポリペプチド | 長い鎖 | およそ20〜50以上(明確な定義なし) | タンパク質へ折りたたまれる前段階の鎖 |
| タンパク質 | 1本以上のポリペプチド鎖が折りたたまれたもの | 目安として約50超 | 固有の立体構造と機能を持つ。酵素・抗体・ヘモグロビンなど |
※残基数の区切りは「目安」であり、情報源によって異なります。数だけでなく「折りたたまれて機能を持つか」も重要な基準です[1]。
「何個から」タンパク質になるのか
「アミノ酸が何個からタンパク質ですか?」は非常によくある疑問ですが、これに一つの正解はありません。国際的な命名の枠組みでは、10〜20残基程度をオリゴペプチド、20〜50残基程度をポリペプチド、およそ50残基を超えるものを一般にタンパク質と扱うことが多いとされています[1]。一方で、オリゴペプチドを15残基未満、ポリペプチドを15〜50残基とする定義もあり、境界の数字は文献ごとに揺れています。
⚠️ 誤解しやすい点:数字は「目安」にすぎない
「50個以上=タンパク質」と断定するのは正確ではありません。たとえばインスリンは51残基ですが「長いペプチド/小さなタンパク質」の境目に位置し、アルツハイマー病に関わるアミロイドβは36〜43残基です。逆に、10残基ほどでも固有の立体構造をとる分子が見つかっています。残基数はあくまで便宜的な線引きであり、「安定した立体構造に折りたたまれ、固有の機能を持つか」という点がタンパク質を特徴づけます。
なお、ポリペプチドとペプチドの違いも、本質的には同じ「長さの違い」です。ペプチドは比較的短く、それ自体が特定の生理活性(ホルモン作用など)を持つことが多いのに対し、ポリペプチドはより長く、折りたたまれてタンパク質になる前段階の分子として語られることが多い、という使い分けです。
3. ポリペプチド鎖と立体構造 ― 一次から四次構造まで
結論として、ポリペプチド鎖には一次・二次・三次構造があり、複数のポリペプチド鎖が会合するタンパク質では四次構造が形成されます。その立体的な形がタンパク質のはたらきを決めます。ここは、当ページが検索で長く評価されてきた中心的な内容です。順に見ていきましょう。
ポリペプチド鎖とは(一次構造)
ポリペプチド鎖とは、アミノ酸がペプチド結合で一列につながった鎖そのものを指す言葉で、「ペプチド鎖」とほぼ同義に使われます。この鎖のアミノ酸配列(N末端からC末端への並び順)を一次構造と呼びます。一次構造は遺伝情報によって決まり、その後の折りたたみ方、ひいてはタンパク質の機能を左右する最も基本的な設計図です。ただし、一列に並んだだけの状態はまだ立体構造ではない点に注意が必要です。
二次・三次構造(αヘリックスとβシート)
ポリペプチド鎖は、まず部分的に規則正しい形をとります。これが二次構造で、代表が右巻きらせんのαヘリックスと、鎖が横並びにそろったβシートです。いずれも、主鎖どうしの水素結合によって安定化されます。これらの構造は、1951年にポーリングとコリーらが、原子レベルの精度で理論的に予言したもので、いまも数万種のタンパク質の骨格として確認されています[2][3]。αヘリックスは毛髪や爪をつくるケラチン、βシートは絹の主成分であるフィブロインに豊富に含まれるなど、これらの構造は身近なタンパク質の性質にも直結しています。
続いて、こうした二次構造の要素が組み合わさり、鎖全体が1本の塊として空間的に折りたたまれた形が三次構造です。三次構造は、水素結合に加え、疎水相互作用・イオン結合・ジスルフィド結合といった複数の力で安定化されます。この立体的なかたちが、酵素の活性部位や、分子どうしが結合する部位をつくり出します。
ここで押さえておきたいのが、主鎖(バックボーン)と側鎖の区別です。ペプチド結合でつながった「−N−C−C−」の繰り返しが鎖の背骨にあたる主鎖で、二次構造の水素結合はおもにこの主鎖どうしで結ばれます。一方、各アミノ酸から突き出した側鎖は、三次構造の折りたたみや、分子どうしの結合の個性を生みます。なお、こうして完成した立体構造は永久に固定されているわけではありません。熱や強い酸・アルカリ、変性剤などを加えると、立体構造をまとめている弱い結合がほどけ、タンパク質は変性(denaturation)して機能を失います。このとき、ペプチド結合でつながった一次構造(配列)そのものは保たれる点が重要で、立体構造と一次構造は別の階層の話であることがわかります。
四次構造とサブユニット(鎖は何本か)
タンパク質のなかには、折りたたまれた複数のポリペプチド鎖が集まって、一つの機能単位を形づくるものがあります。この段階が四次構造で、集まっている個々の鎖をサブユニットと呼びます。「1つのタンパク質にポリペプチド鎖は何本あるのか」は、タンパク質ごとに異なります。
🔬 サブユニット数の例(三次構造 vs 四次構造)
筋肉で酸素を蓄えるミオグロビンは1本鎖、血液で酸素を運ぶヘモグロビンは4本鎖が組み合わさった四次構造をとります。
ヘモグロビンが4本のサブユニットで協調して酸素をやりとりできるのは、まさに四次構造のおかげです。複数の鎖が集まることで、1本鎖では実現できない、より複雑で精密な機能が可能になります。なお、複数のポリペプチド鎖が結びついた状態はダイマー(二量体)など、鎖の数に応じた呼び名でも整理されます。
4. ポリペプチドはどこで、どう作られるのか
結論として、ポリペプチドは細胞内のリボソームで、遺伝情報をもとに合成されます。DNAの情報がmRNAに写し取られ(転写)、その情報に従ってアミノ酸が順につながれていく(翻訳)――この一連の流れは、分子生物学の基本原理であるセントラルドグマとして知られています。
リボソームでの翻訳
タンパク質をつくる情報は、まずDNAからmRNA(メッセンジャーRNA)へ写し取られます(転写)。次に、このmRNAが細胞内のリボソームに運ばれ、mRNA上の3塩基の単位であるコドンが、対応するアミノ酸に読み替えられていきます(翻訳)。アミノ酸はtRNA(転移RNA)によって運ばれ、リボソーム上で次々とペプチド結合が形成されて鎖が伸び、終止コドンが現れると合成が終わります[1]。リボソームは大小2つのサブユニットからなり、ポリペプチド鎖はN末端側から順に伸長していきます。こうしてできたばかりのポリペプチド鎖が、その後に折りたたまれてタンパク質になります。
一遺伝子一ポリペプチド説 ― 遺伝子とポリペプチドの関係
「1つの遺伝子が、1つのポリペプチドの設計図になっている」という考え方を、一遺伝子一ポリペプチド説といいます。そのルーツは、1941年にビードルとテータムがアカパンカビを用いて示した一遺伝子一酵素説です[6]。彼らは、遺伝子の変化が特定の酵素のはたらきを損なうことを実験で示し、遺伝子が生化学反応を支配していることを明らかにしました。この功績により、両者は1958年にノーベル生理学・医学賞を受賞しています。
その後、酵素以外のタンパク質や、複数のサブユニットからなるタンパク質も説明できるように、この考え方は「一遺伝子一ポリペプチド説」へと精緻化されました。遺伝子の変化が、ポリペプチドのアミノ酸配列の変化として現れる――この対応関係は、遺伝学と分子生物学を結ぶ土台であり、遺伝性疾患を理解するうえでも重要です。
⚠️ 現在の理解:単純な「1対1」ではない
一遺伝子一ポリペプチド説は歴史的に重要な原理ですが、現在では「1つの遺伝子=常に1種類のポリペプチド」という単純な対応ではないことがわかっています。たとえば選択的スプライシングにより、1つの遺伝子から複数の異なるポリペプチドが作られることがあります。ほかにも翻訳後修飾やタンパク質をコードしないRNA遺伝子の存在など、実際の生命はより複雑です。この説は「遺伝子とタンパク質の基本的な対応関係」を示す出発点として理解するのが適切です。
合成のあと ― 折りたたみと分解
できたばかりのポリペプチド鎖は、正しい立体構造へと折りたたまれる必要があります。この過程は自発的に進むこともありますが、多くの場合分子シャペロンと呼ばれるタンパク質が、正しい折りたたみを助け、誤った凝集を防いでいます[9]。また、合成されたポリペプチドは、リン酸基や糖鎖が付け加えられるといった翻訳後修飾を受け、はたらきが細かく調整されることもあります。一方で、役目を終えたり、うまく折りたためなかったりしたポリペプチドは、プロテアーゼ(分解酵素)やユビキチン・プロテアソーム系によって分解され、細胞内の品質が保たれています。この「作る・折りたたむ・分解する」のバランスが崩れると、次章で述べる病気につながることがあります。
5. ポリペプチドの生物学的機能と疾患
結論として、ポリペプチド鎖から構成されるタンパク質は生命活動の幅広い機能を担う一方、その折りたたみの異常は病気に関与することがあります。ここでは、正常なはたらきと、異常が関わる病態の両面を見ていきます。
酵素・ホルモン・抗体・構造タンパク質として
ポリペプチドが折りたたまれてできたタンパク質は、実に多彩なはたらきを担います。化学反応を触媒する酵素、体の調子を整えるホルモン、異物を見分ける抗体、そして皮膚や骨を支えるコラーゲンのような構造タンパク質――いずれもポリペプチドが土台です。ホルモンのなかにも、インスリンやオキシトシン(9残基)のように、ペプチド/ポリペプチドがそのまま働くものが数多くあります。たとえば血糖を下げるインスリンは、A鎖(21残基)とB鎖(30残基)という2本のポリペプチド鎖がジスルフィド結合でつながったホルモンで、ちょうどポリペプチドとタンパク質の境目あたりに位置する分子です。
なお、細菌の細胞膜などに作用する「ポリペプチド系抗菌薬」(バシトラシン、コリスチンなど)という薬の分類も存在します。ただしこれは薬理学の別テーマにあたるため、本記事では名称の紹介にとどめます。
折りたたみの異常と疾患
ポリペプチドが正しく折りたためず、異常な形のまま集まって凝集(アミロイド線維など)を起こすと、細胞に悪影響を及ぼすことがあります。こうしたタンパク質の折りたたみ異常(ミスフォールディング)と凝集は、アルツハイマー病(アミロイドβ)、パーキンソン病、2型糖尿病(膵島アミロイドポリペプチド)、各種の全身性アミロイドーシスなど、幅広い病気に関与することが知られています[7][8]。
💡 「関与する」と「原因である」は分けて考える
凝集と神経変性疾患の関係は、「関連が深い」ことは確立していますが、どの段階の凝集体(線維か、その手前の小さな集合体か)が本当に細胞を傷つけるのかなど、詳しいしくみは現在も研究が続いています。相関と因果は分けて理解することが大切です[8]。
配列のたった1文字の違いが機能を大きく変える、教科書的な例が鎌状赤血球症(鎌状赤血球貧血)です。ヘモグロビンのβ鎖(146残基のポリペプチド)で、6番目のアミノ酸が親水性のグルタミン酸から疎水性のバリンに1つだけ置き換わると、酸素を手放したときにヘモグロビンどうしが連なって固まり、赤血球が鎌のような形にゆがみます[10]。DNAレベルではわずか1塩基の変化(GAG→GTG)に対応します。ポリペプチドの一次構造(配列)が、いかにタンパク質のはたらきと病気を左右するかを示す代表例といえます。
遺伝医学の視点から見ると、遺伝子の変化がポリペプチドのアミノ酸配列を変え、折りたたみや機能に影響するという一連のつながりが重要です。ある遺伝子に変化(バリアント)があると、そこから作られるポリペプチドの形が変わり、結果として病気につながることがあります。個々の遺伝性疾患と原因遺伝子の関係は、疾患ごとのページで詳しく解説しています。
🧬 遺伝子や検査結果の意味についてのご相談
遺伝子の働きや、遺伝子検査で見つかった変化がどういう意味を持つのか
お知りになりたい方は、臨床遺伝専門医による遺伝カウンセリングをご利用いただけます。
🩺 院長コラム【配列という「設計図」を読むということ】
ポリペプチドの一次構造、つまりアミノ酸の並び順は、遺伝子にそのまま書き込まれた設計図です。遺伝医学では、遺伝子の1文字の変化が、この並びをどう変え、折りたたまれた形やはたらきをどう左右するのかを読み解いていきます。
ここで大切なのは、変化があること自体が、ただちに病気を意味するわけではないという点です。配列の変化には、機能を大きく損なうものもあれば、体質の個性にとどまるものもあります。医学的には、その変化がポリペプチドの構造や機能に与える影響を、根拠に基づいて一つずつ評価していくことが求められます。ポリペプチドの基本を知ることは、そうした遺伝情報を落ち着いて読み解くための、確かな土台になります。
まとめ
ポリペプチドとは、多数のアミノ酸がペプチド結合で連なった鎖状の分子であり、私たちの体で働くタンパク質の骨組みそのものです。アミノ酸→ペプチド→ポリペプチド→タンパク質は地続きの概念で、その境界の残基数はあくまで目安にすぎません。ポリペプチド鎖は一次・二次・三次構造をとり、複数鎖が会合するタンパク質では四次構造が形成されます。その立体的な形がはたらきを決めます。合成はリボソームでの翻訳によって行われ、遺伝子とポリペプチドの対応関係(一遺伝子一ポリペプチド説とその現代的な理解)は、遺伝性疾患を考えるうえでの基礎になります。そして、折りたたみの異常や凝集は、神経変性疾患をはじめとする病気に関与します。ポリペプチドという言葉の意味を正確に押さえておくことは、遺伝や検査結果に関する情報を読み解く力につながります。
よくある質問(FAQ)
Q1. ポリペプチドとは何ですか?
ポリペプチドとは、多数のアミノ酸がペプチド結合(−CO−NH−)で一列に連なった鎖状の分子のことです。アミノ酸が2〜数個つながったものをペプチド、多数つながって長くなったものをポリペプチドと呼びます。このポリペプチド鎖が固有の立体構造に折りたたまれ、はたらきを持つようになったものがタンパク質です。
Q2. ポリペプチドとタンパク質の違いは何ですか?
大きな違いは「長さ」と「折りたたまれて機能を持つか」です。ポリペプチドはアミノ酸が長くつながった鎖そのものを指し、それが特定の立体構造に折りたたまれて固有のはたらきを持つとタンパク質と呼ばれます。目安としてはおよそ50残基を超えるとタンパク質とされることが多いですが、明確な定義はなく、インスリン(51残基)のように境目に位置する分子もあります。
Q3. ポリペプチドとペプチドの違いは何ですか?
本質的には鎖の長さの違いです。ペプチドは比較的短い鎖(2〜数十残基)を指し、ホルモンなどの生理活性を持つものが多くあります。ポリペプチドはより長い鎖で、折りたたまれてタンパク質になる前段階の分子として語られることが多い言葉です。残基数による区切りは目安であり、両者の境界に厳密な定義はありません。
Q4. 1つのタンパク質にポリペプチド鎖は何本ありますか?
タンパク質によって異なります。筋肉で酸素を蓄えるミオグロビンは1本のポリペプチド鎖(三次構造)でできていますが、血液で酸素を運ぶヘモグロビンは4本の鎖(α鎖2本+β鎖2本)が組み合わさった四次構造をとります。複数の鎖が集まることで、1本では難しい複雑なはたらきが可能になります。
Q5. ポリペプチドはどこで作られますか?
細胞内のリボソームで作られます。まずDNAの情報がmRNAに写し取られ(転写)、そのmRNA上のコドン(3塩基の単位)が、リボソーム上で対応するアミノ酸に読み替えられながらつながっていきます(翻訳)。こうして合成されたポリペプチド鎖が折りたたまれてタンパク質になります。
参考文献
- [1] Protein Structure and Function. StatPearls (NCBI Bookshelf). [NBK562260]
- [2] Pauling L, Corey RB, Branson HR. The structure of proteins: two hydrogen-bonded helical configurations of the polypeptide chain. Proc Natl Acad Sci USA. 1951;37(4):205-211. [DOI]
- [3] Pauling L, Corey RB. The pleated sheet, a new layer configuration of polypeptide chains. Proc Natl Acad Sci USA. 1951;37(5):251-256. [DOI]
- [4] Kendrew JC, Bodo G, Dintzis HM, Parrish RG, Wyckoff H, Phillips DC. A three-dimensional model of the myoglobin molecule obtained by x-ray analysis. Nature. 1958;181(4610):662-666. [DOI]
- [5] Perutz MF, Rossmann MG, Cullis AF, Muirhead H, Will G, North ACT. Structure of haemoglobin: a three-dimensional Fourier synthesis at 5.5-Å resolution. Nature. 1960;185(4711):416-422. [DOI]
- [6] Beadle GW, Tatum EL. Genetic control of biochemical reactions in Neurospora. Proc Natl Acad Sci USA. 1941;27(11):499-506. [DOI]
- [7] Chiti F, Dobson CM. Protein misfolding, functional amyloid, and human disease. Annu Rev Biochem. 2006;75:333-366. [PubMed 16756495]
- [8] Chiti F, Dobson CM. Protein misfolding, amyloid formation, and human disease: a summary of progress over the last decade. Annu Rev Biochem. 2017;86:27-68. [DOI]
- [9] Hartl FU, Bracher A, Hayer-Hartl M. Molecular chaperones in protein folding and proteostasis. Nature. 2011;475(7356):324-332. [DOI]
- [10] Ingram VM. Gene mutations in human haemoglobin: the chemical difference between normal and sickle cell haemoglobin. Nature. 1957;180(4581):326-328. [DOI]






