

目次
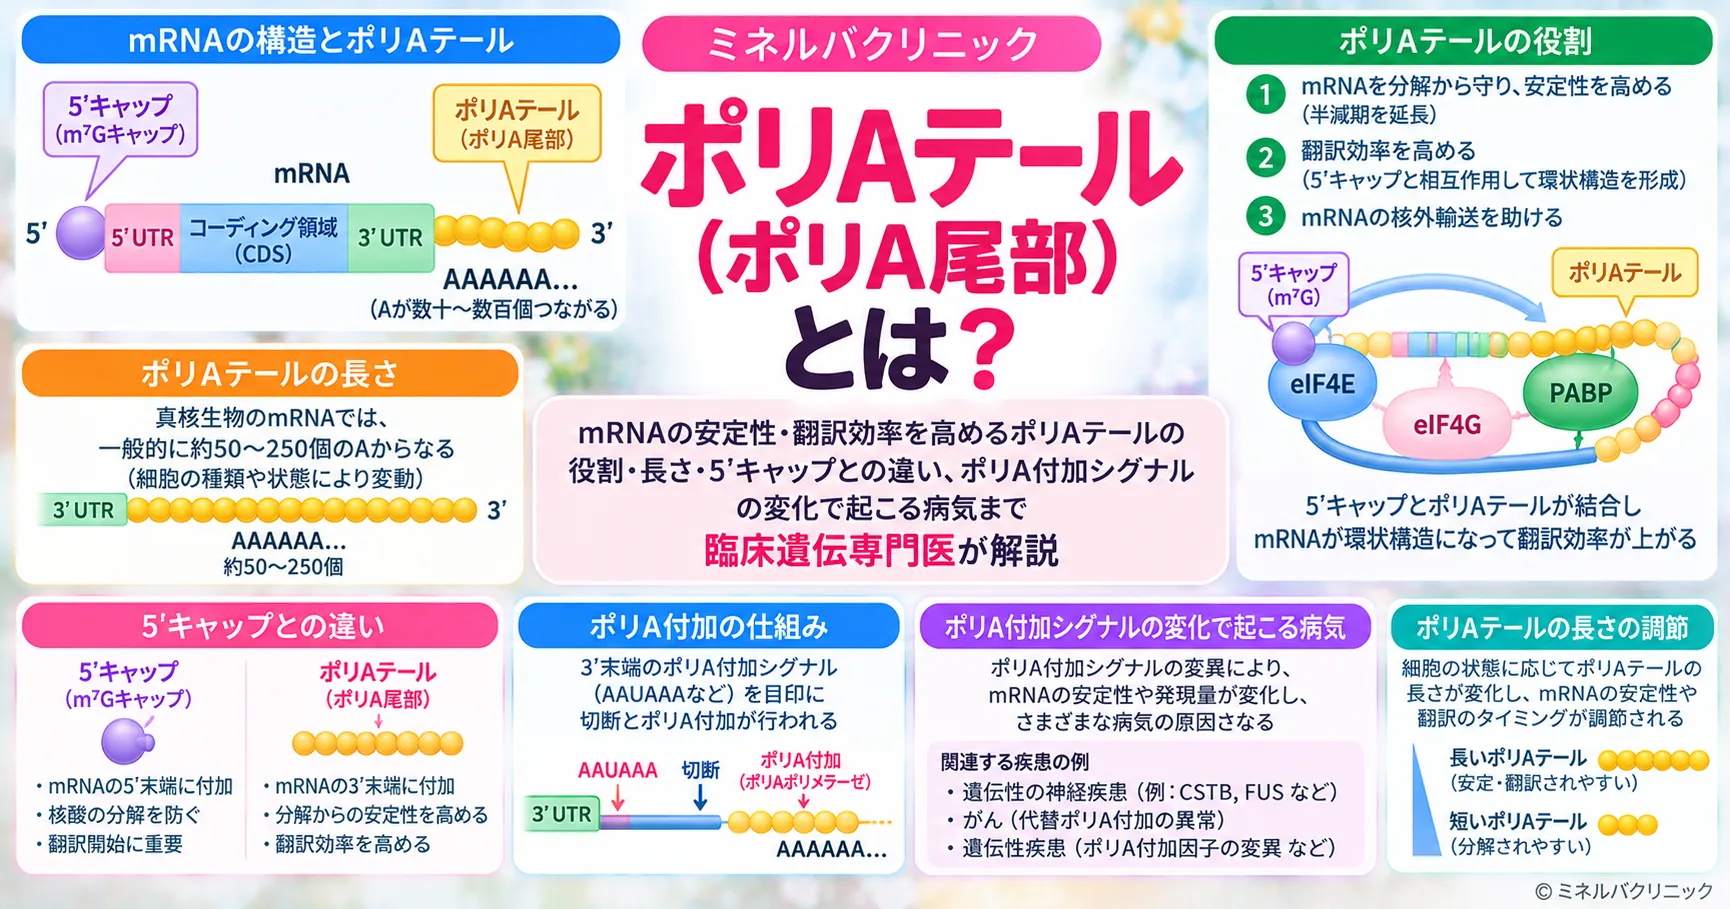
ポリAテール(ポリA尾部、poly(A) tail)とは、mRNA(メッセンジャーRNA)の3’末端に付いている、アデニン(A)を含むヌクレオチドが長く連なった「尾」のことです。ポリA鎖とも呼ばれ、英語では polyA や poly(A) と書きます。ポリAテールは、mRNAを分解から守る、核の外へ運ぶ、タンパク質への翻訳を助けるという3つの役割を担っています。尾を付ける合図(ポリA付加シグナル)の1文字が変わるだけで、αサラセミアやβサラセミアのような遺伝性の病気が起こることもあります。この記事では、ポリAテールの役割と長さ、5’キャップとの違い、付加シグナルの変化で起こる病気、mRNAワクチンとの関係までを解説します。
⏱️ 30秒でわかる要約
🧬 Q. ポリAテール(ポリA尾部)とは何ですか?
mRNAの3’末端に付く、アデニン(A)が長く連なった尾です。真核生物のほぼすべてのmRNAに付いていて、ポリA尾部・ポリA鎖・poly(A) tail はどれも同じものを指します。
🧬 Q. ポリAテールの役割は?
①mRNAを分解から守る、②核の外へ運ぶ、③翻訳を助けるの3つです。尾が短く削られることが、多くのmRNAが分解される最初の段階になります。
🧬 Q. 5’キャップとの違いは?
5’キャップはmRNAの反対側(5’末端)に付く、メチル化されたグアノシン(m7G)の帽子です。両端の目印は翻訳の開始因子を通じてつながり、協力してmRNAの働きを支えます。
🧬 Q. ポリA付加シグナルが変わるとどうなりますか?
尾が正しい位置に付かず、mRNAが減ることがあります。αグロビン遺伝子(HBA2)ではαサラセミア、βグロビン遺伝子(HBB)ではβサラセミアの原因になった例が報告されています。
- ➤ポリAテールとは → mRNAの3’末端に付くアデニンの連なり(ポリA尾部・ポリA鎖)
- ➤役割 → 分解から守る・核の外へ運ぶ・翻訳を助ける
- ➤長さ → 付いた直後は約200塩基、細胞の中では中央値50〜100塩基ほど
- ➤5’キャップとの違い → 付く場所・形・できる仕組みが違い、両端で協力する
- ➤病気とのつながり → ポリA付加シグナル(AAUAAA)の変化でサラセミアなどが起こる
1. ポリAテール(ポリA尾部)とは?
ポリAテールとは、mRNAの3’末端に付け足される、アデニン(A)をもつヌクレオチドが数十〜数百個連なった構造です。「ポリ」は「たくさんの」、「A」はアデニン、「テール」は尾を意味します。遺伝子の情報はまずDNAからRNAへ写し取られ(転写)、その後、いくつかの加工を受けて成熟したmRNAになります。ポリAテールは、この加工の仕上げとしてmRNAの後ろ側の端に付けられます。
真核生物(核をもつ細胞からなる生物で、ヒトもここに入ります)では、ポリAテールはほぼすべてのmRNAに付いています[1]。尾は核の中で、転写が進むのと並行して付けられることがわかっています[1]。遺伝子のDNAの鋳型を写し取ってできるのではなく、mRNAの前駆体(プレmRNA)が決まった場所で切断されたあと、ポリ(A)ポリメラーゼという酵素がその切り口にアデニンを次々に付け足していく点が特徴です[6]。
mRNAの「5’」「3’」は、RNAの鎖の向きを表す言葉です。mRNAは5’末端から3’末端の向きに読まれ、5’側には別の目印である5’キャップが付きます。向きの見分け方は5’末端・3’末端とはで詳しく解説しています。
ポリAテール・ポリA尾部・ポリA鎖・polyAの違いは?
ポリAテール、ポリA尾部、ポリA鎖、ポリAテイル、polyA、poly(A) tail は、どれも同じ構造を指す呼び方です。教科書や論文によって表記が違うだけで、意味の違いはありません。高校生物の教科書では「ポリA尾部」、分子生物学の論文の日本語訳では「ポリAテール」「ポリA鎖」がよく使われます。
📘 ポリAテールの呼び方の一覧
| 呼び方 | 読み方・使われる場面 |
|---|---|
| ポリAテール(ポリAテイル) | ぽりえーてーる。英語 poly(A) tail のカタカナ表記 |
| ポリA尾部 | ぽりえーびぶ。高校生物などで使われる日本語訳 |
| ポリA鎖 | ぽりえーさ。「アデニンの鎖」という見方からの呼び方 |
| polyA/poly(A) | 論文・試薬・データベースでの英語表記 |
| ポリアデニル化 | 尾を付ける「反応・仕組み」の名前(尾そのものではない) |
※「ポリアデニル化」は尾を付ける過程の名前です。仕組みの詳しい説明はポリアデニル化のページにあります。
ポリAテールが付かないmRNAはある?
あります。代表例は、DNAの複製と連動してつくられるヒストンのmRNAです。ヒストンは、DNAを巻き付けて染色体の土台をつくるタンパク質です。細胞が分裂の準備としてDNAを複製するときにまとめて必要になるため、そのmRNAはポリAテールの代わりに、3’末端に独自のタンパク質とRNAの複合体をもつことが知られています[1]。ヒストンについてはヒストンとはで解説しています。つまり、「mRNAには必ずポリAテールがある」というのは大まかな言い方で、例外も存在します。
2. ポリAテールの役割は?3つの働き
ポリAテールの主な役割は、①mRNAを分解から守ること、②成熟したmRNAを核の外(細胞質)へ運ぶこと、③タンパク質への翻訳を助けることの3つです。どれも、mRNAが「どのくらいの時間、どのくらいの量のタンパク質をつくるか」を左右します。
🧬 ポリAテールの3つの役割
| 役割 | 何が起きているか | 関わる主な分子 |
|---|---|---|
| ①分解から守る | 尾が削られて短くなることが、多くのmRNAが分解される最初の段階になる | 脱アデニル化酵素(PAN2-PAN3、CCR4-NOT) |
| ②核の外へ運ぶ | 成熟したmRNAが細胞質へ送り出されるのに必要 | mRNAを運ぶ核外輸送の仕組み |
| ③翻訳を助ける | 尾と5’キャップが翻訳開始因子を介してつながり、翻訳が進みやすくなる | PABP、eIF4G、eIF4E |
①mRNAを分解から守る
ポリAテールは、mRNAの3’末端を保護する役割をもち、尾が削られて短くなることが、多くのmRNAが壊されるきっかけになります。細胞の中で主に働くmRNAの分解経路は、まずポリAテールを短くする「脱アデニル化」から始まります[5]。ヒトなどの細胞では、まずPAN2-PAN3という酵素の複合体が尾の先のほうを削り始め、続いてCCR4-NOTという複合体が残りを削り取ります[1]。尾が十分に短くなると、mRNAは5’キャップを外されるなどして分解されていきます。
脱アデニル化は、mRNA分解の速さを決める段階だと考えられています[1]。言い換えると、ポリAテールは「このmRNAをあとどのくらい使うか」を決めるタイマーのような働きもしています。分解の速さの違いは細胞にとって大きな意味をもち、ある種の反応では、mRNA量の変化のうち最大で半分ほどが分解の速さの変化によるものだと説明されています[5]。
②成熟したmRNAを核の外へ運ぶ
ポリAテールは、核の中でできあがったmRNAを細胞質へ送り出すために必要です。タンパク質をつくる工場であるリボソームは細胞質にあるため、mRNAは核の外へ出なければ働けません。ポリAテールは成熟したmRNAの核外輸送に必要だとされています[1]。5’キャップと3’末端という両端の特別な目印は、mRNAの両端がそろっているか(途中で切れていないか)を細胞が確かめる手がかりにもなっています[8]。
核の中では、スプライシング(不要な部分を切り取り、必要な部分をつなぐ加工)、5’キャップの付加、ポリAテールの付加という加工が行われます。スプライシングについてはスプライシングとエクソンとイントロンの違いで解説しています。
③タンパク質への翻訳を助ける(閉じたループ)
ポリAテールは、5’キャップと協力してタンパク質への翻訳を進めやすくします。ポリAテールにはポリA結合タンパク質(PABP)が結合し、5’キャップにはキャップ結合タンパク質(eIF4E)が結合します。この2つが翻訳開始因子eIF4Gの別々の部分に結合することで、mRNAの両端がつながった輪(閉じたループ)ができます。酵母のタンパク質を使った実験では、この複合体がキャップとポリAテールをもつRNAを輪の形にできることが、原子間力顕微鏡で示されました[4]。
PABPについてはPABP(ポリA結合タンパク質)、リボソームについてはリボソームで解説しています。
3. ポリAテールの長さは?
哺乳類のmRNAには、付けられた直後に平均して約200塩基(ヌクレオチド)のポリAテールが付きます。これは総説でまとめられている値で、酵母では約70塩基とされています[1]。ただし、ポリAテールは付いたあとに少しずつ削られていくため、細胞の中に実際にあるmRNAの尾は、これよりずっと短いことがわかってきました。
細胞の中のポリAテールは思ったより短い
細胞の中で実際に測ると、ポリAテールの長さの中央値は50〜100塩基ほどです。2014年に、多数のmRNAの尾の長さを一度に測る方法が相次いで発表されました。そのひとつ(TAIL-seq)では、ヒトの培養細胞(HeLa細胞)とマウスの培養細胞(NIH 3T3細胞)で、ポリAテールの長さの中央値が50〜100塩基であり、これまで考えられていた150〜200塩基よりかなり短いと報告されました[2]。同じ年の別の方法(PAL-seq)でも、哺乳類の細胞での中央値は67〜96塩基でした[3]。
総説でも、安定して多く翻訳されているmRNAの尾は、定常状態では予想よりずっと短いことが指摘されています[1]。「尾が長いほど元気なmRNA」という単純な見方は、今では修正されつつあります。
📏 ポリAテールの長さの目安
※測定法・細胞の種類によって値は異なります。個々のmRNAの尾の長さは遺伝子ごとに違います。
尾の長さと翻訳の関係は「時期」で変わる
ふつうの細胞では、ポリAテールの長さはmRNAの寿命と関係しますが、翻訳の効率とは関係しないと報告されています。TAIL-seqの研究では、HeLa細胞とNIH 3T3細胞で、尾の長さはmRNAの半減期と相関した一方、翻訳効率とは相関しませんでした[2]。
一方で、卵子では事情が違います。卵子が成熟する過程では、蓄えられていたmRNA(母性mRNA)の尾を細胞質で削ったり伸ばしたりすることで、翻訳の調節が行われています[17]。PAL-seqの研究の題名も「ポリAテールの解析から明らかになった、胚での翻訳制御の切り替え」で、胚の時期のポリAテールと翻訳の関係を調べたものです[3]。細胞質での尾の伸び縮みの仕組みは、ポリアデニル化のページで詳しく扱っています。
4. 5’キャップとポリAテールの違いは?
5’キャップはmRNAの5’末端、ポリAテールは3’末端に付く目印で、付く場所も形もでき方も違いますが、どちらもmRNAを守り、核の外へ運び、翻訳を助けるという点で協力しています。真核生物のmRNAの両端の加工は、5’末端へのキャップの付加と、3’末端のポリアデニル化です[8]。
5’キャップは、7位がメチル化されたグアノシン(m7G)が、RNAの最初の塩基と5’どうしの三リン酸結合(5′-5’三リン酸結合)でつながった構造です[7]。ふつうのRNAの鎖は5’→3’の向きにつながっていくので、5’どうしで逆向きにつながるという点が、この帽子の大きな特徴です。5’キャップはプレmRNAの加工、核外輸送、キャップに依存したタンパク質合成に関わります[7]。
🔬 5’キャップとポリAテールの比較
| 項目 | 5’キャップ | ポリAテール |
|---|---|---|
| 付く場所 | 5’末端(読み始め側) | 3’末端(読み終わり側) |
| つくり | メチル化グアノシン(m7G)1個が5′-5’三リン酸結合でつながる | アデニンをもつヌクレオチドが多数連なる |
| 付け方 | RNAの先頭にキャップ構造を付ける | 決まった場所で切断してからアデニンを付け足す |
| 結合するタンパク質 | eIF4E(キャップ結合タンパク質) | PABP(ポリA結合タンパク質) |
| 主な役割 | プレmRNAの加工、核外輸送、翻訳の開始 | 分解からの保護、核外輸送、翻訳の促進 |
| 分解のとき | 尾が短くなったあとに外される | 脱アデニル化で先に削られる |
※5’キャップはRamanathanら[7]、両端の協力はWellsら[4]、分解の順序はPassmoreら[1]による。
キャップ構造とポリAテールの関係は?
キャップ構造とポリAテールは、翻訳開始因子を介してつながり、mRNAの両端で協力して働きます。第2章で説明した「閉じたループ」がその代表で、キャップとポリAテールの両方がそろったときに翻訳が相乗的に進むことが知られています[4]。分解のときも両端は連動していて、多くのmRNAではポリAテールが短くなってから5’キャップが外され、本体の分解に進みます[1]。両端の目印は、mRNAの「品質の証明書」と「寿命の目盛り」を兼ねていると言えます。
5’キャップと開始コドンの間、終止コドンとポリAテールの間には、タンパク質の情報をもたない部分があり、それぞれ5’非翻訳領域(5’UTR)、3’非翻訳領域(3’UTR)と呼ばれます。ポリA付加シグナルは3’UTRの中にあります。
5. ポリAテールはどうやって付く?ポリA付加シグナル(AAUAAA)
ポリAテールは、3’UTRにある「AAUAAA」という6文字の合図(ポリA付加シグナル)を目印に、その少し下流でRNAが切断され、切り口にアデニンが付け足されることでできます。ポリA付加シグナルは、タンパク質をつくる遺伝子に共通する特徴で、中心となるAAUAAAの配列は1970年代半ばに見つかりました[6]。AAUAAAは、ポリAテールが付く位置から20〜30塩基ほど上流にあります[6]。
切断の場所は、AAUAAAと、その下流にあるGU(またはU)に富む配列(下流配列エレメント)によって決まります。この2つの配列を、CPSF(切断・ポリアデニル化特異性因子)とCstF(切断促進因子)という複合体が協力して認識し、そこにポリ(A)ポリメラーゼが呼び込まれます[6]。実際に尾が付く位置は、数塩基から数十塩基の範囲でずれることがあります[6]。
1つの遺伝子にポリA付加シグナルが複数あり、どれを使うかで3’UTRの長さが変わる「選択的ポリアデニル化」という仕組みもあり、すべての真核生物に広く見られる遺伝子の調節の仕組みとされています[18]。切断にかかわる因子の詳しい働きや選択的ポリアデニル化は、このページでは扱わず、ポリアデニル化のページにまとめています。転写全体の流れは転写概論で解説しています。
6. 遺伝・医療とのつながり:ポリA付加シグナルの変化で起こる病気
ポリA付加シグナルのたった1文字の変化で、mRNAに尾が正しく付かなくなり、病気が起こることがあります。遺伝子の変化というと、タンパク質の情報をもつ部分(翻訳される領域)の変化を思い浮かべがちですが、タンパク質の情報をもたない3’UTRの中の変化でも、mRNAの量が減れば、つくられるタンパク質も減ります。下の表は、原著論文で報告された代表的な例です。
🩸 ポリA付加シグナルの変化で起こる病気の例
※DNAの配列(AATAAA)とRNAの配列(AAUAAA)は同じ合図を表します(RNAではTの代わりにUを使います)。
αサラセミアとポリA付加シグナル
ポリA付加シグナルの変化が病気の原因になることを初めて示したのは、αサラセミアの研究でした。1983年、α2グロビン遺伝子(HBA2)のAATAAAがAATAAGに変わった1文字の変化が見つかり、この変化をもつ遺伝子からは赤血球系の細胞でのα2のmRNAが減ること、本来の付加位置を越えて読み進んだ転写産物ができることが報告されました[9]。この報告の家系では、同じ染色体上のα1遺伝子も別の変化(フレームシフト)で働かなくなっていました[9]。
αサラセミアは、ヘモグロビンをつくるαグロビン鎖が足りなくなる病気で、通常は常染色体潜性(劣性)遺伝の形をとります[12]。原因の多くはα遺伝子が丸ごと欠ける「欠失」ですが、欠失ではない1文字の変化によるものもあり、HBA2の片方が働かなくなる型(αTα)などが知られています[12]。ポリA付加シグナルの変化は、この「欠失ではない変化」のひとつです。病気の全体像はサラセミア 総論、遺伝子についてはHBA2遺伝子のページをご覧ください。当院のαサラセミア遺伝子検査は、HBA1とHBA2の2つの遺伝子を調べる検査で、調べる変化の種類は検査ページに書いています。
βサラセミアとポリA付加シグナル
βグロビン遺伝子(HBB)でも、ポリA付加シグナルの変化によるβサラセミアが報告されています。1985年の報告では、HBBのAATAAAの中のTがCに置き換わった変化が見つかり、赤血球系の細胞から、本来より約900塩基下流でポリAが付いた長さ約1,500塩基の異常なβグロビンRNAが検出されました[10]。合図が読めなくなると、細胞はさらに先にある別の「AAUAAAに似た場所」まで読み進んでしまい、長すぎて働きの悪いmRNAができるのです。病気についてはβサラセミア、遺伝子はHBB遺伝子で解説しています。
IPEX症候群(免疫調節異常・多腺性内分泌障害・腸症を名前の由来にもつ、X連鎖性の病気)でも、FOXP3遺伝子の終止コドンのあとにある最初のポリA付加シグナルがAAUAAAからAAUGAAに変わった家系が報告されています[11]。この家系では次のシグナルが5.1kb先までなく、mRNAが壊されてしまうことが原因ではないかと考えられました[11]。
💡 用語解説:非翻訳領域のバリアント
遺伝子の中で、タンパク質のアミノ酸の情報をもたない部分(5’UTR・3’UTR・イントロンなど)にある配列の違いを、非翻訳領域やノンコーディング領域のバリアントと呼びます。アミノ酸は変わらなくても、ポリA付加シグナルやスプライシングの合図にかかわる場所であれば、mRNAの量や形が変わって病気につながることがあります。遺伝子検査の結果を読むときには、変化が遺伝子のどの部分にあるかも大切な手がかりになります。
生まれる前に分かる:両親の保因者検査
αサラセミアのような常染色体潜性(劣性)の病気は、両親がともに保因者の場合に、家族に患者さんがいなくても子に起こることがあります。保因者とは、病気の原因となる変化を片方の遺伝子にだけもち、自分は発症しない人のことです。たとえば両親がともに、片側の染色体で2つのα遺伝子が欠けた状態(–/αα)であれば、子が重い型であるHb Bart症候群になる確率は妊娠ごとに25%(4分の1)です[12]。X連鎖の病気では、保因者の女性から生まれる子に変化が伝わる確率は妊娠ごとに50%で、変化を受け継いだ男の子は発症します。IPEX症候群(FOXP3)はこの形で受け継がれます[19]。
当院の拡大版保因者検査には、女性787遺伝子・男性714遺伝子、女性1009遺伝子・男性911遺伝子の4つがあります。この章で取り上げたHBA1・HBA2・HBBは4つすべての遺伝子一覧に入っています。FOXP3はX染色体上の遺伝子なので、女性版(787遺伝子・1009遺伝子)にだけ入っています。4つとも、オンライン診療で受けることができ、唾液や頬の粘膜の検体でも検査できます。保因者検査の考え方は保因者スクリーニング検査とはで解説しています。
妊娠中で、NIPT(新型出生前診断)と同時に保因者検査も受けたい方には、ファミリーセーフティ プラスがあります。NIPTと同じ日に採血して受ける保因者検査で、単独では受けられません。NIPTは赤ちゃんの染色体の数の変化などを調べる検査で、保因者検査は両親の遺伝子を調べる検査です。調べる相手が違う検査を、同じ日の採血で受けられる形になっています。
ポリAテールに結合するタンパク質の病気:眼咽頭筋ジストロフィー
ポリAテールそのものではなく、ポリAテールに結合する核のタンパク質(PABPN1)の遺伝子の変化で起こる病気もあります。眼咽頭筋ジストロフィー(OPMD)は、名前のとおり眼(まぶた)や咽頭(のど)の筋肉にかかわる筋ジストロフィーです。PABPN1遺伝子の第1エクソンにあるGCNという3塩基のくり返しが、通常の10回から11〜18回に伸びることが原因で、常染色体顕性(優性)遺伝の形をとります[13]。まれに、伸びたくり返しを両方の遺伝子にもつことで発症する場合もあります[13]。詳しくは眼咽頭筋ジストロフィー(OPMD)とPABPN1遺伝子のページをご覧ください。
mRNAワクチン・mRNA医薬とポリAテール
mRNAワクチンやmRNA医薬では、ポリAテールの長さや形が、mRNAの安定性とタンパク質のつくられやすさを高めるために設計されています。試験管の中でつくるmRNAの研究では、120塩基のポリAテールをもつmRNAのほうが短い尾のものより、また尾の3’末端が余分な塩基で覆われずに露出しているほうが、RNAの安定性と翻訳の効率が高まることが報告されました[15]。
新型コロナウイルス感染症のmRNAワクチンBNT162b2の設計を記した論文では、鋳型となるDNAに100塩基のポリAテールの配列が組み込まれ、その途中を10塩基のつなぎの配列で区切った形(A30LA70)にしていると書かれています。目的はRNAの安定性と翻訳効率の向上とされています[14]。ポリAの配列を途中で区切る「分割型ポリAテール」には、mRNAの鋳型をつくる大腸菌の中でプラスミドDNAの組換えによってポリAが短くなるのを減らしつつ、mRNAの半減期やタンパク質の発現を損なわないという利点があると報告されています[16]。
体の中のmRNAで尾が担っている役割を、人工のmRNAでも利用しているわけです。体の中のmRNAそのものの働きはmRNAとはで解説しています。

🩺 院長コラム【「尾」の1文字が病気を決めることがある】
遺伝子の変化というと、アミノ酸が変わる変化に目が向きがちです。けれども、ポリA付加シグナルのAAUAAAのように、タンパク質の情報をもたない場所の1文字が、mRNAの量を大きく左右することがあります。αサラセミアでこの仕組みが見つかったことは、遺伝子の「読み取り部分」の外側にも病気の原因がありうることを示した点で、大きな意味がありました。
遺伝子検査の報告書で、変化が3’UTRなどにあると書かれていた場合も、「タンパク質に関係ないから心配ない」とも「必ず病気になる」とも決めつけられません。どの遺伝子の、どの位置の変化で、どのような根拠があるのかを一つずつ確かめることが、結果を正しく読むうえで欠かせないと考えています。
よくある質問(FAQ)
Q1. ポリAテールとポリA尾部・ポリA鎖は同じものですか?
はい、同じものです。どれもmRNAの3’末端に付く、アデニンが長く連なった構造を指し、英語では poly(A) tail、polyA と書きます。尾を付ける反応のほうは「ポリアデニル化」と呼びます。
Q2. ポリAテールの役割は何ですか?
主な役割は、mRNAを分解から守ること、成熟したmRNAを核の外へ運ぶこと、5’キャップと協力してタンパク質への翻訳を助けることの3つです。尾が削られて短くなることが、多くのmRNAが分解される最初の段階になります。
Q3. ポリAテールの長さはどのくらいですか?
哺乳類では、付けられた直後に平均約200塩基とされています。その後少しずつ削られるため、ヒトやマウスの培養細胞で実際に測った長さの中央値は50〜100塩基ほどと報告されています。
Q4. すべてのmRNAにポリAテールがありますか?
真核生物のほぼすべてのmRNAにありますが、例外もあります。DNAの複製と連動してつくられるヒストンのmRNAは、ポリAテールの代わりに3’末端に独自の複合体をもちます。
Q5. 5’キャップとポリAテールの関係は?
5’キャップはmRNAの5’末端、ポリAテールは3’末端に付く目印です。キャップに結合するeIF4EとポリAテールに結合するPABPが翻訳開始因子eIF4Gを介してつながり、mRNAの両端が輪のようになって翻訳が進みやすくなります。
Q6. ポリA付加シグナルとは何ですか?
ポリAテールを付ける位置を決める合図で、3’非翻訳領域にあるAAUAAAという6文字の配列が中心です。この合図と下流のGUに富む配列が認識され、少し下流で切断されたあとにアデニンが付け足されます。合図が変わると、αサラセミアやβサラセミアの原因になることがあります。
Q7. mRNAワクチンにもポリAテールはありますか?
あります。mRNAワクチンやmRNA医薬では、mRNAの安定性と翻訳の効率を高めるため、ポリAテールの長さや形が設計されています。新型コロナウイルス感染症のmRNAワクチンBNT162b2では、100塩基のポリAテールを途中で10塩基のつなぎの配列で区切った形が使われています。
まとめ
ポリAテール(ポリA尾部、poly(A) tail)は、mRNAの3’末端に付くアデニンの連なりで、mRNAを分解から守る、核の外へ運ぶ、翻訳を助けるという3つの役割を担っています[1]。哺乳類では付けられた直後に平均約200塩基ありますが、細胞の中では中央値50〜100塩基ほどに短くなっています[1][2]。反対側の端にある5’キャップとは、翻訳開始因子を介してつながり、協力して働きます[4]。
尾を付ける合図であるポリA付加シグナル(AAUAAA)の1文字の変化は、αサラセミア、βサラセミア、IPEX症候群の原因として報告されています[9][10][11]。タンパク質の情報をもたない場所の変化でも病気につながりうることは、遺伝子検査の結果を読むうえでも大切な視点です。尾を付ける仕組みの詳細はポリアデニル化のページで解説しています。
📘 この記事について
この記事は、mRNAのポリAテールを解説する用語ページです。個別の検査結果の解釈を行うものではありません。ご家族にサラセミアなどの遺伝性の病気がある方や、遺伝子検査の結果がご本人や血縁者にとってどういう意味を持つかを専門医と整理したい方のために、遺伝カウンセリングがあります。
参考文献
- [1] Passmore LA, Coller J. Roles of mRNA poly(A) tails in regulation of eukaryotic gene expression. Nat Rev Mol Cell Biol. 2022;23(2):93-106. [PMC7614307]
- [2] Chang H, Lim J, Ha M, Kim VN. TAIL-seq: genome-wide determination of poly(A) tail length and 3′ end modifications. Mol Cell. 2014;53(6):1044-1052. [PubMed 24582499]
- [3] Subtelny AO, Eichhorn SW, Chen GR, Sive H, Bartel DP. Poly(A)-tail profiling reveals an embryonic switch in translational control. Nature. 2014;508(7494):66-71. [PMC4086860]
- [4] Wells SE, Hillner PE, Vale RD, Sachs AB. Circularization of mRNA by eukaryotic translation initiation factors. Mol Cell. 1998;2(1):135-140. [PubMed 9702200]
- [5] Garneau NL, Wilusz J, Wilusz CJ. The highways and byways of mRNA decay. Nat Rev Mol Cell Biol. 2007;8(2):113-126. [PubMed 17245413]
- [6] Proudfoot NJ. Ending the message: poly(A) signals then and now. Genes Dev. 2011;25(17):1770-1782. [PMC3175714]
- [7] Ramanathan A, Robb GB, Chan SH. mRNA capping: biological functions and applications. Nucleic Acids Res. 2016;44(16):7511-7526. [PMC5027499]
- [8] Alberts B, Johnson A, Lewis J, et al. From DNA to RNA. In: Molecular Biology of the Cell. 4th ed. New York: Garland Science; 2002. [NCBI Bookshelf NBK26887]
- [9] Higgs DR, Goodbourn SE, Lamb J, Clegg JB, Weatherall DJ, Proudfoot NJ. Alpha-thalassaemia caused by a polyadenylation signal mutation. Nature. 1983;306(5941):398-400. [PubMed 6646217]
- [10] Orkin SH, Cheng TC, Antonarakis SE, Kazazian HH Jr. Thalassemia due to a mutation in the cleavage-polyadenylation signal of the human beta-globin gene. EMBO J. 1985;4(2):453-456. [PMC554207]
- [11] Bennett CL, Brunkow ME, Ramsdell F, et al. A rare polyadenylation signal mutation of the FOXP3 gene (AAUAAA→AAUGAA) leads to the IPEX syndrome. Immunogenetics. 2001;53(6):435-439. [PubMed 11685453]
- [12] Tamary H, Greenberg-Kushnir N, Dgany O. Alpha-Thalassemia. In: Adam MP, et al., eds. GeneReviews®. Seattle (WA): University of Washington, Seattle. [NBK1435]
- [13] Trollet C, Boulinguiez A, Roth F, et al. Oculopharyngeal Muscular Dystrophy. In: Adam MP, et al., eds. GeneReviews®. Seattle (WA): University of Washington, Seattle. [NBK1126]
- [14] Vogel AB, Kanevsky I, Che Y, et al. BNT162b vaccines protect rhesus macaques from SARS-CoV-2. Nature. 2021;592(7853):283-289. [PubMed 33524990]
- [15] Holtkamp S, Kreiter S, Selmi A, et al. Modification of antigen-encoding RNA increases stability, translational efficacy, and T-cell stimulatory capacity of dendritic cells. Blood. 2006;108(13):4009-4017. [PubMed 16940422]
- [16] Trepotec Z, Geiger J, Plank C, Aneja MK, Rudolph C. Segmented poly(A) tails significantly reduce recombination of plasmid DNA without affecting mRNA translation efficiency or half-life. RNA. 2019;25(4):507-518. [DOI 10.1261/rna.069286.118]
- [17] Weill L, Belloc E, Bava FA, Méndez R. Translational control by changes in poly(A) tail length: recycling mRNAs. Nat Struct Mol Biol. 2012;19(6):577-585. [PubMed 22664985]
- [18] Tian B, Manley JL. Alternative polyadenylation of mRNA precursors. Nat Rev Mol Cell Biol. 2017;18(1):18-30. [PubMed 27677860]
- [19] Tan QK-G, Louie RJ, Sleasman JW. IPEX Syndrome. In: Adam MP, et al., eds. GeneReviews®. Seattle (WA): University of Washington, Seattle. [NBK1118]






