

目次

細胞の核は、核膜という二重の膜に包まれています。その内側の膜(内膜)には、ゲノムを核の縁に固定したり、細胞分裂のあとで核膜を作り直したりするタンパク質が埋め込まれています。そのうち、「LEMドメイン」という共通の小さな構造をもつタンパク質群がLEMドメイン含有タンパク質(LEM domain-containing proteins)です。ヒトではこのグループに7つの遺伝子が属し、そのいくつかはエメリー・ドレイフス型筋ジストロフィー、骨斑紋症、早老症候群、小頭症といった遺伝性疾患の原因になります。この記事では、LEMドメインの構造とBAFとの結合、LEMタンパク質の働き、そして7遺伝子とそれぞれの関連疾患を、臨床遺伝専門医の視点で整理します。
Q. LEMドメインとは何ですか?まず結論だけ知りたいです
A. LEMドメインは、核膜タンパク質LAP2・エメリン・MAN1に共通して見つかった約40〜50アミノ酸の小さな構造で、DNA結合タンパク質BAF(BANF1)と結合します。BAFはDNAを束ねるため、LEMドメインをもつタンパク質はBAFを介してクロマチンを核膜側につなぎとめることができます。ヒトでは7つの遺伝子がこのグループに属し、EMD(エメリン)やLEMD3(MAN1)などの変化は筋ジストロフィーや骨の病気の原因になります。
- ➤名前の由来 → LAP2・Emerin・MAN1の頭文字
- ➤構造 → 短いヘリックスターン+2本のαヘリックスからなる小さな球状ドメイン
- ➤結合相手 → LEMドメイン自体はDNAではなくBAFと結合する
- ➤働き → クロマチンの核周縁への係留、分裂後の核膜再形成、TGF-β/BMPシグナルの調節など
- ➤病気 → EMD・LEMD3・LEMD2・ANKLE2の変化で、筋・骨・早老・脳の発達に関わる病気が起こる
🧬 LEMドメイン含有タンパク質の基本情報
| 項目 | 内容 |
|---|---|
| 英語名 | LEM domain-containing proteins(HGNC遺伝子グループ名:LEM domain containing) |
| 名前の由来 | LAP2(lamina-associated polypeptide 2)・Emerin(エメリン)・MAN1の頭文字 |
| ドメインの大きさ | 約40〜50アミノ酸(文献により約40残基、約45残基と記載)[1][2] |
| 主な結合相手 | BAF(barrier-to-autointegration factor、遺伝子名BANF1) |
| 存在する場所 | 主に核膜の内膜と核ラミナ(一部は核質や小胞体膜) |
| ヒトの遺伝子 | EMD、TMPO、LEMD1、LEMD2、LEMD3、ANKLE1、ANKLE2の7遺伝子[3] |
| 関連する主な疾患 | エメリー・ドレイフス型筋ジストロフィー、骨斑紋症/ブシュケ・オレンドルフ症候群、LEMD2関連早老症候群、原発性小頭症16型 |
※本記事は用語解説です。個別の遺伝子検査を勧めるものではありません。
1. LEMドメイン含有タンパク質とは
LEMドメイン含有タンパク質とは、「LEMドメイン」という共通の構造をもち、主に核膜の内側で核ラミナの一員として働くタンパク質の総称です。共通する性質は、核の骨組みであるラミンと結合し、遺伝子の働きが抑えられたクロマチンを核の周縁につなぎとめることです[4]。
ドメインとは、タンパク質の中で独立して折りたたまれ、それぞれ決まった機能をもつ「部品」のような領域のことです。1つのタンパク質がいくつものドメインを組み合わせてできていることも珍しくありません。LEMドメイン含有タンパク質は、膜に埋まる部分やDNAと結合する部分など、ほかのドメインも併せもっています。そのうえで「LEMドメインを必ずもつ」という一点で1つのグループにまとめられています。
これらのタンパク質が働く場所は、核膜の内膜と、その内側に張りついた網目状の構造である核ラミナです。核ラミナは、ラミンという中間径フィラメントと、そこに結合する多数の内膜タンパク質からできています。LEMドメイン含有タンパク質は、このネットワークの中でも代表的なファミリーの1つです[4]。
名前の由来:LAP2・エメリン・MAN1
「LEM」は、このドメインが最初に見つかった3つの核膜タンパク質、LAP2・Emerin(エメリン)・MAN1の頭文字です。NMRによる構造解析の論文でも、LAP2・エメリン・MAN1の3つが約40残基の保存された「LEM」モチーフを共有すると記載されています[1]。
💡 用語解説:「LEM」と「LIM」は別物
「LIMドメイン」は、亜鉛と結合するシステインに富んだ別のタンパク質ドメインで、LEMドメインとは構造も働きも異なります。表記が1文字違いなので混同されやすいですが、LEMドメインは核膜タンパク質の名前に、LIMドメインは発生を調節する転写因子(Lin-11、Isl-1、Mec-3)の名前に由来します。
HGNC遺伝子グループ「LEM domain containing」
遺伝子の正式名称を定める国際機関HGNC(HUGO遺伝子命名委員会)は、LEMドメインをもつ遺伝子を「LEM domain containing」という遺伝子グループにまとめています。ヒトでこのグループに属するのは、ANKLE1、ANKLE2、LEMD1、LEMD2、TMPO(LAP2)、EMD(エメリン)、LEMD3(MAN1)の7遺伝子です。このうち5つは核膜内膜タンパク質をコードします[3]。
7つの遺伝子は、膜への埋まり方(膜トポロジー)などから3つの群に分けて説明されることがあります。I群はEMD・TMPO・LEMD1、II群はLEMD2・LEMD3、III群はANKLE1・ANKLE2です[7]。I群は核質側のドメインと1回の膜貫通ドメインをもちます(LAP2αを除く)。II群は2回膜貫通型で、LEMドメインとは別に、DNAと結合するwinged-helix型のMSCドメインをもちます。III群のうちANKLE2は小胞体膜に局在し、ANKLE1は核と細胞質を行き来します[8]。
ただしHGNCは、遺伝子の系統関係(パラロジー)にもとづく別の分け方もありうると述べています[7]。したがって「I〜III群」は公式に固定された分類ではなく、膜トポロジーによる整理の一例として理解するのが適切です。なお、ANKLE1とANKLE2は「ankyrin repeat and LEM domain containing」の略で、アンキリンリピートをもつ遺伝子グループにも属しています。
2. LEMドメインの構造とBAFとの結合
LEMドメインは2本のαヘリックスからなる小さな球状構造で、DNAではなく、DNA結合タンパク質BAFと結合します。この「BAFを介してクロマチンとつながる」という仕組みが、LEMタンパク質を理解するうえで最も大切なポイントです。
約40〜45アミノ酸・2本のαヘリックス
ヒトLAP2の立体構造をNMRで解いた研究では、LEMドメインが短いヘリックスターンに続く2本のαヘリックスと、それをつなぐ11〜12残基のループからできていることが示されました[1]。タンパク質ドメインのデータベースPROSITEも、LEMドメインを「N末端の3残基のヘリックスターンと、保存された疎水性アミノ酸でかみ合う2本の大きな平行αヘリックス」からなる約40アミノ酸の球状モジュールとしています[9]。
ドメインの長さは文献によって「約40残基」[1]、「約45残基」[2]と少し異なります。これは、ドメインの境界をどこで区切るかの違いによるものです。いずれにしても、タンパク質全体から見ればごく小さな部品です。
LEMドメインはBAFを介してクロマチンと結合する
LEMドメインが直接結合する相手はBAF(barrier-to-autointegration factor)です。BAFは遺伝子BANF1がコードする小さなタンパク質で、二量体をつくってDNAに配列を選ばず結合し、DNA同士を橋渡しして大きな核タンパク質複合体をつくります[9]。LEMドメインはこのBAFや、BAFとDNAの複合体に結合します。こうして、核膜に埋まったLEMタンパク質から、BAFを介してDNA(クロマチン)までが一続きにつながります。
ここで注意したいのは、「LEMタンパク質はDNAに結合しない」と言い切るのは誤りだという点です。LAP2のN末端には、LEMドメインとそっくりの形をした「LEM様ドメイン(LAP2-N)」があり、こちらはDNAに直接結合します。同じ骨格でも、結合面のアミノ酸が正電荷に富むとDNAに、疎水性に富むとBAFに結合するように作り分けられています[1]。さらにMAN1やLEMD2は、前述のMSCドメインでもDNAと結合します[8]。つまり「LEMドメインそのもの」はBAFを介してクロマチンとつながり、タンパク質全体としては別の領域でDNAとも結合しうる、と整理するのが正確です。
💡 用語解説:BAFとBAF複合体は別物
BAF(barrier-to-autointegration factor)は、レトロウイルスのDNAが自分自身に組み込まれてしまうのを防ぐ因子として見つかったため、この名前がつきました。クロマチンリモデリングを担う「BAF複合体(SWI/SNF複合体)」とは略称が同じだけで、まったく別の分子です。遺伝子名で区別すると、前者はBANF1、後者はSMARCA4などの複数の遺伝子からできています。
3. LEMドメインタンパク質の働き
LEMドメインタンパク質の働きは、大きく4つに整理できます。クロマチンを核の縁につなぐこと、細胞分裂のあとに核膜を作り直すこと、核内へのシグナルを調節すること、そして多数の相手と結合するハブになることです。いずれも、核膜という「境界」でゲノムの配置や信号の出入りを管理する役割です。
核膜とクロマチンの連結(ヘテロクロマチンの核周縁配置)
核の中では、遺伝子の働きが抑えられた凝縮クロマチン(ヘテロクロマチン)が、核膜の近くに集まる傾向があります。LEMドメインタンパク質はラミンと結合し、抑制的なクロマチンを核の周縁に係留するという共通の性質をもちます[4]。
この配置は、核の形を保つだけでなく、どの遺伝子を「しまっておく」かという空間的な整理にも関わると考えられています。ただし、個々のLEMタンパク質がどの遺伝子の発現をどれだけ変えるかは細胞の種類によって異なり、特定の遺伝子のオン・オフを決める単純なスイッチとして説明できる段階にはありません。
細胞分裂後の核膜再形成(ANKLE2・LEMD2)
ヒトの細胞は、分裂のたびに核膜をいったん壊し、分裂の終わりに作り直します。分裂期にはキナーゼVRK1がBAFをリン酸化し、BAFはクロマチンやLEMタンパク質から離れます。分裂が終わるときには、BAFのリン酸が外れて再びクロマチンとLEMタンパク質に結合することが、核膜の再形成に必要です[10]。
この脱リン酸化を調整するのがANKLE2(別名LEM4)です。ANKLE2は、VRK1の働きを抑えると同時に、脱リン酸化酵素PP2Aと結合してBAFのリン酸を外させます。つまり、「キナーゼを止めて、ホスファターゼを呼ぶ」二重の調整を行います。この仕組みは線虫からヒトまで保存されています[10]。
一方、LEMD2(別名LEM2)は、核膜に残った隙間をふさぐ段階を担います。LEMD2は、膜を閉じる装置ESCRT-IIIの構成因子CHMP7とC末端領域で直接結合し、CHMP7やその下流のESCRT因子を核膜の再形成部位に呼び寄せます[11]。
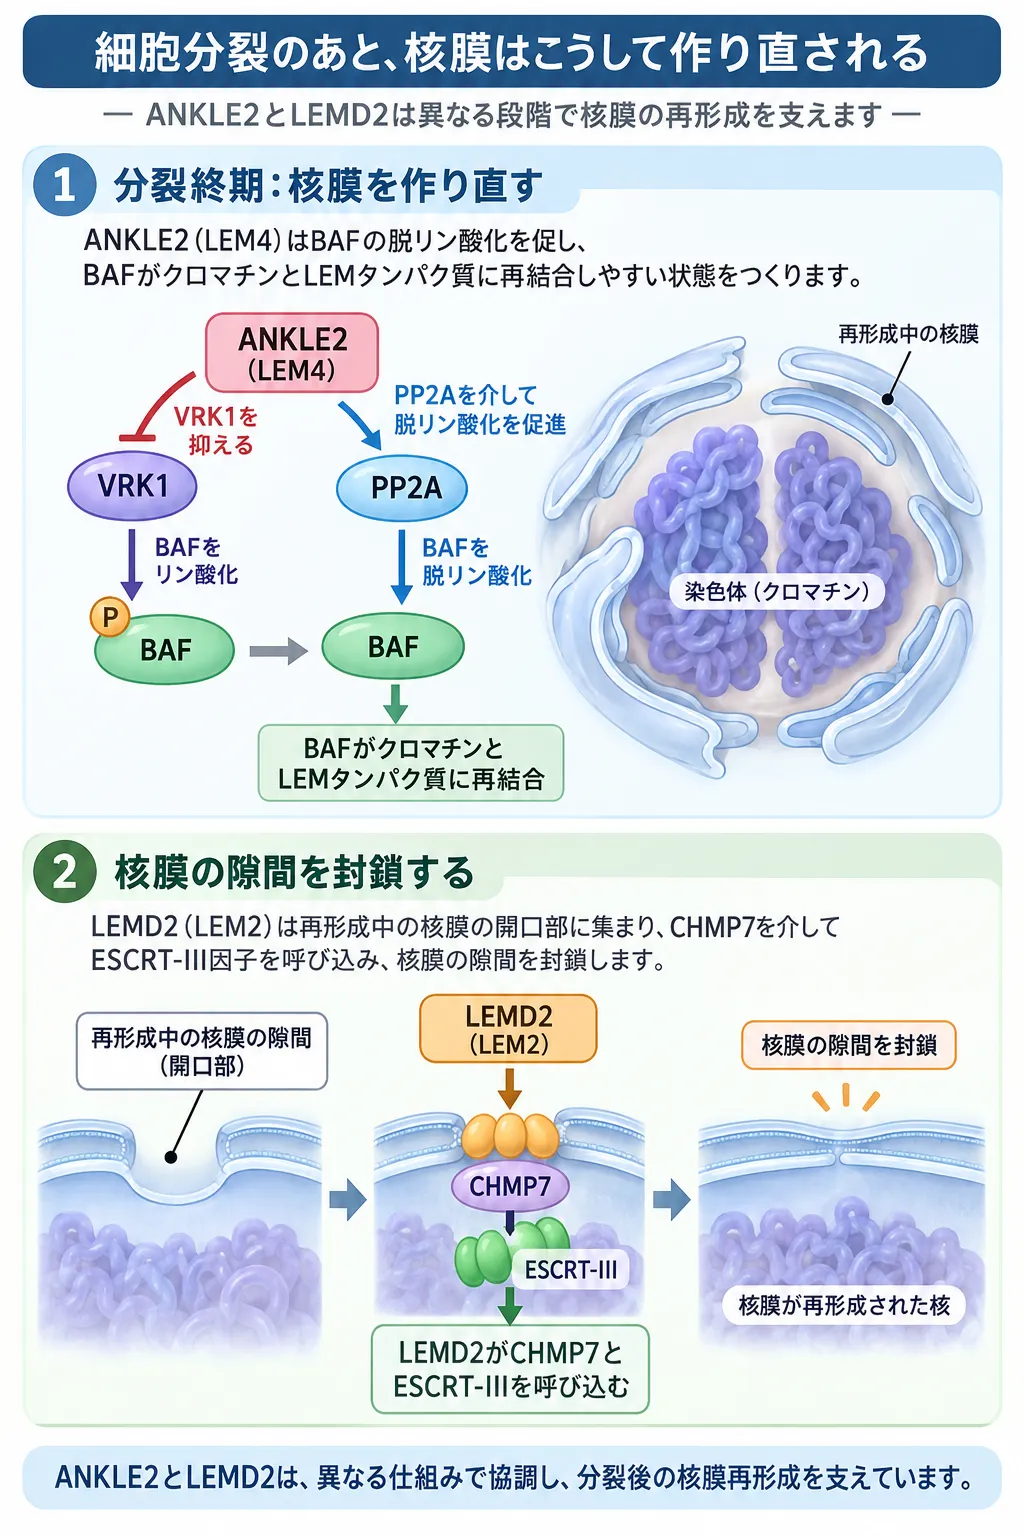
細胞分裂の終わりには、ANKLE2がVRK1を抑え、PP2Aを介してBAFの脱リン酸化を促すことで、BAFがクロマチンやLEMタンパク質へ再結合しやすい状態をつくります。その後、LEMD2がCHMP7を介してESCRT-IIIを核膜の開口部へ呼び込み、残った隙間の封鎖に関与します。
これらの知見は、線虫・分裂酵母・ヒト培養細胞などの実験から得られたものです。細胞周期の中で核膜がどのように壊され、作り直されるかという基本的な仕組みを示しています。一方で、ヒトの病気の症状がこの仕組みの異常でどこまで説明できるかは、次章の疾患ごとに分けて考える必要があります。
シグナル伝達の調節(MAN1とTGF-β/BMP)
LEMドメインタンパク質は、核に入ってくる信号の強さも調節します。最もよく分かっているのがMAN1(LEMD3)です。MAN1は、BMPシグナル伝達経路と、アクチビン/TGF-βシグナル伝達経路の受容体で活性化されたSMADタンパク質と結合し、両方の経路を抑えることがヒト細胞で示されています[6]。
SMADは、細胞表面の受容体から核へ信号を運び、標的遺伝子のスイッチを入れる転写因子です。MAN1が核膜でSMADをつかまえることで、信号が過剰に伝わるのを防いでいると考えられます。MAN1が半分に減ると両経路のシグナルが強まり、それが骨の過剰な形成につながると説明されています[12]。より広くは、LEMタンパク質がHedgehog、Wnt/β-カテニン、STAT3、Notch、TGF-βといった経路の転写因子を内膜にとどめ、クロマチンへの接近を時間的に制御するという総説もあります[13]。
エメリンのハブ機能
エメリンは、LEMタンパク質の中でも特に多くの相手と結合することが知られています。メカノトランスダクション(機械的な力を細胞内の信号に変える仕組み)、細胞の構造、転写調節、クロマチンの係留に関わるさまざまな分子と相互作用します。さらに、エメリン同士も結合して、核ラミナの中にネットワークをつくると予測されています[4]。
核の外側の細胞骨格と、核の内側のラミナとを力学的につなぐ装置としてLINC複合体が知られており、エメリンはこうした核膜の力学的なネットワークの中で働く分子の1つです。エメリンの異常が、全身に存在するタンパク質であるにもかかわらず骨格筋と心臓という、強い力がかかり続ける組織で主に症状を起こす理由は、このハブ機能との関連で研究されています。
4. LEMドメインをもつヒトの7遺伝子と関連疾患
7遺伝子のうち、疾患との関連が確立しているのはEMD・LEMD3・LEMD2・ANKLE2の4つです。TMPO・LEMD1・ANKLE1には、現時点で確立した単一遺伝子疾患はありません。遺伝形式も遺伝子ごとに異なります。
🧬 LEMドメイン含有遺伝子と関連疾患の一覧
| 遺伝子(別名) | 群 | 主な関連疾患 | 遺伝形式 |
|---|---|---|---|
| EMD(エメリン) | I | エメリー・ドレイフス型筋ジストロフィー1型[5] | X連鎖潜性 |
| TMPO(LAP2) | I | 確立した単一遺伝子疾患なし(拡張型心筋症との関連は否定的に再評価)[14] | — |
| LEMD1 | I | 確立した疾患なし(精巣で優位に発現)[3] | — |
| LEMD2(LEM2) | II | ①マルバッハ・ルスタッド早老症候群[15] ②若年発症白内障46型[16] | ①常染色体顕性(de novo) ②常染色体潜性 |
| LEMD3(MAN1) | II | 骨斑紋症、ブシュケ・オレンドルフ症候群、骨斑紋症を伴うメロレオストーシス[6] | 常染色体顕性 |
| ANKLE1 | III | 確立した疾患なし(DNA切断酵素として働くと推定)[3] | — |
| ANKLE2(LEM4) | III | 原発性小頭症16型(MCPH16)[17] | 常染色体潜性 |
※群は膜トポロジーによる整理の一例です。LEMD1・ANKLE1・TMPOとがんとの関連は、発現解析や細胞実験の段階の報告です。
この表で注目したいのは、同じLEMドメイングループに属していても、病気の現れる臓器が大きく異なることです。EMDは筋と心臓、LEMD3は骨と皮膚、LEMD2は水晶体や全身の老化様変化、ANKLE2は脳の発達に関わります。LEMタンパク質の多くは全身の細胞に発現していますが、どの組織が影響を受けるかは、それぞれが担う固有の結合相手や経路によって決まると考えられています[4]。
また、TMPOは一時期、拡張型心筋症の原因遺伝子候補として報告されました。しかしその後、報告された変異は「臨床的意義不明のバリアント」に再分類され、英国Genomics EnglandのPanelAppでは根拠が乏しいと評価されています[14]。古い文献や一部のデータベースには関連が残っていることがあるため、遺伝子検査の結果を読むときには注意が必要です。
5. LEMドメインタンパク質の異常で起こる病気
LEMドメインタンパク質の遺伝子変化は、核膜の異常によって起こる病気(核膜病、ラミノパチー)の一部を構成します。LEMタンパク質を1つ失うと、進行性で特定の組織に限られた病気が起こることが知られています[4]。以下では、疾患との関連が確立した遺伝子ごとに整理します。
エメリー・ドレイフス型筋ジストロフィー(EMD)
EMD遺伝子の変化は、X連鎖潜性遺伝のエメリー・ドレイフス型筋ジストロフィー(EDMD1)を起こします。典型的には、小児期からの関節拘縮、上腕・腓骨筋優位に始まる緩徐進行性の筋力低下・筋萎縮、心伝導障害や心筋症を特徴とします。心伝導障害や不整脈は重要な合併症で、突然死につながることもあります[22]。
1994年、X染色体のXq28領域にある遺伝子(当時の名称STA)の変化が、調べた患者5人全員に見つかりました。いずれもタンパク質の全部または一部が失われる変化で、この遺伝子がコードする新しいタンパク質が「エメリン」と名づけられました[5]。「エメリン症」という表記を見かけることがありますが、正式な疾患名ではありません。
EDMDは、EMDだけでなくLMNA遺伝子(ラミンA/C)の変化でも起こります。LMNAが原因の場合は常染色体顕性または潜性で遺伝するため、同じエメリー・ドレイフス型筋ジストロフィーでも、原因遺伝子によって家族への遺伝のしかたが変わります。症状だけでは原因遺伝子を区別しきれないため、遺伝形式を確定するうえで遺伝学的検査の意味が大きい病気です。
骨斑紋症・ブシュケ・オレンドルフ症候群・メロレオストーシス(LEMD3)と12q14欠失
LEMD3(MAN1)の片方のアレルが働かなくなる変化(ヘテロ接合性の機能喪失変異)は、骨斑紋症とブシュケ・オレンドルフ症候群の原因になります。2004年の研究では、骨斑紋症にブシュケ・オレンドルフ症候群やメロレオストーシスを伴う例を含む3家系で、調べた患者全員にLEMD3のヘテロ接合性機能喪失変異が見つかりました[6]。ただし、孤発性のメロレオストーシス全般を生殖細胞系列LEMD3変異で説明することはできません。
| 病名 | 主な特徴 |
|---|---|
| 骨斑紋症(osteopoikilosis) | X線写真で骨の中に小さな円形の硬化像(骨密度が高い部分)が多数みられる |
| ブシュケ・オレンドルフ症候群 | 皮膚の結合組織母斑と、骨の異常(多くは骨斑紋症)を併せもつ[12] |
| メロレオストーシス(melorheostosis) | 骨の表面に、ろうそくのろうが垂れたような過剰な骨ができる。慢性的な痛みや関節の拘縮を起こすことがある |
これら3つは、同じ家系の中でも人によって現れ方が異なることがあります。同じLEMD3変異が、ある人では骨斑紋症だけ、別の人ではブシュケ・オレンドルフ症候群として現れることがあり、その違いが生じる理由はまだ分かっていません[12]。一方、骨斑紋症を伴わずにメロレオストーシスだけが起きる場合は、生殖細胞系列のLEMD3変異では説明されないとされています[12]。
LEMD3は、染色体の微細な欠失でも失われることがあります。12q14欠失症候群として最初に報告された3例は、軽度の知的障害、乳児期の体重増加不良、均整のとれた低身長、骨斑紋症を示しました。欠失はいずれも新生(de novo)で、大きさは3.44〜6 Mb、共通して欠けている3.44 Mbの領域に13の遺伝子があり、その中にLEMD3が含まれていました[18]。その後、LEMD3を含まない12q14欠失では骨斑紋症がみられず、低身長と発達の遅れが中心になることが報告されています。低身長には、同じ領域にあるHMGA2の関与が考えられています[19]。つまり、12q14欠失で骨斑紋症が出るかどうかは、欠失の範囲にLEMD3が入るかどうかで説明できます。
早老症候群と若年発症白内障(LEMD2)
LEMD2では、性質の異なる2つの疾患が報告されています。
1つめはマルバッハ・ルスタッド早老症候群です。2019年、同じ新生(de novo)の変化(p.Ser479Phe)をもつ2人が報告されました。2人は年齢も民族的背景も異なっていましたが、早老症を思わせる顔つき、成長の遅れ、あごの低形成と多数の萌出しない過剰歯といった共通の特徴を示しました。患者の線維芽細胞では核の構造が乱れていました。思春期の予後は、古典的なハッチンソン・ギルフォード・プロジェリア症候群と比べて比較的良好とされています[15]。報告例はきわめて少なく、オーストラリアのPanelAppでは同じ変化をもつ4例の報告にもとづいて評価されています[20]。
2つめは若年発症白内障(Cataract 46)です。北米のフッター派の家系で、LEMD2のLEMドメイン内の保存されたアミノ酸を置き換える変化(p.Leu13Arg)が両方のアレルにあると、小児期に白内障が起こることが示されました。17人の患者で変化と発症が一致し、連鎖解析のLODスコアは9.62でした[16]。同じ家系では、白内障と心臓突然死を併せもつ故人が6人いたことも報告されています。ただし同じ家系内には心筋症に関わる別の遺伝子(DSC2)の変化をもつ人もいて、LEMD2変化と心臓突然死の因果関係は確立していません。PanelApp Australiaも、心臓の表現型との関連は根拠が限定的と評価しています[20]。
小頭症(ANKLE2)
ANKLE2の両方のアレルが変化すると、重い原発性小頭症(MCPH16)が起こります。ANKLE2は、ヒトの遺伝性小頭症との関連が知られているタンパク質で、ショウジョウバエでも同じ遺伝子の変化が脳の縮小を起こすことが確認されています[17]。
ショウジョウバエでAnkle2を減らすと、小胞体と核膜の形が乱れ、キナーゼVRK1の相同分子が細胞質へ漏れ出します。その結果、神経幹細胞の非対称分裂に必要なタンパク質の配置が崩れ、脳の体積が小さくなります[17]。さらに、ジカウイルスのタンパク質NS4AがANKLE2と結合してその経路を妨げることも示されています。ただし、この仕組みは主にショウジョウバエのモデルで証明されたものです。ジカウイルス感染による小頭症がすべてANKLE2を介して起こる、とまでは言えません。
関連:BAF(BANF1)とネストル・ギジェルモ早老症候群
LEMドメインの結合相手であるBAFの遺伝子BANF1にも病気が知られています。BANF1は「LEM domain containing」グループの遺伝子ではありませんが、LEMタンパク質の働きを理解するうえで欠かせないパートナーです。
2011年、2つの家系のエクソーム解析で、BANF1の同じ変化(p.Ala12Thr)が両方のアレルにある人に、早老症候群が起こることが報告されました。この病気は現在、ネストル・ギジェルモ早老症候群と呼ばれています。ハッチンソン・ギルフォード・プロジェリア症候群と一部似ていますが、心血管の障害がみられないこと、比較的長く生存すること、LMNAやZMPSTE24には変化がないことが異なります。患者の線維芽細胞ではBAFタンパク質が大きく減っており、核ラミナにこぶ状の突出(ブレブ)ができ、エメリンの分布も乱れていました[21]。LEMドメインの相手が失われることで核膜が乱れる、という点で、LEMタンパク質の働きを裏側から示す病気といえます。
🩺 院長コラム【同じ遺伝子でも、変化の種類で病気が変わる】
LEMD2は、遺伝子の「どこが」「どのように」変わるかで病気の姿が大きく変わることを示す例だと考えています。LEMドメイン内の変化が両方のアレルにある場合は若年発症の白内障、別の領域の新生変化が片方にある場合は早老症候群、と報告されている2つの病気は、遺伝形式も症状もまったく異なります。
遺伝子検査の報告書では、遺伝子名だけを見て病気を想像するのではなく、変化の位置、片方のアレルか両方か、親から受け継いだものか新生か、という情報を合わせて読むことが大切だと考えています。さらに、TMPOのように以前は原因候補とされた遺伝子が、のちに否定的に再評価されることもあります。遺伝子と病気の対応は、最新の評価にもとづいて確認する必要があります。
よくある質問(FAQ)
Q1. LEMは何の略ですか?
LEMは、このドメインが最初に見つかった3つの核膜タンパク質、LAP2(lamina-associated polypeptide 2)、Emerin(エメリン)、MAN1の頭文字です。遺伝子名では、LAP2はTMPO、エメリンはEMD、MAN1はLEMD3にあたります。
Q2. LEMドメインとLIMドメインの違いは何ですか?
名前が似ていますが、別のドメインです。LEMドメインは核膜タンパク質に共通する約40〜50アミノ酸の構造で、DNA結合タンパク質BAFと結合します。LIMドメインは亜鉛と結合するシステインに富んだ構造で、転写因子Lin-11・Isl-1・Mec-3の名前に由来し、タンパク質同士の結合を仲立ちします。
Q3. エメリンとラミンの違いは何ですか?
エメリンは核膜の内膜に埋め込まれたLEMドメインタンパク質で、EMD遺伝子がコードします。ラミンは内膜の内側に網目状の核ラミナをつくる中間径フィラメントで、ラミンA/CはLMNA遺伝子がコードします。両者は核ラミナの中で結合して働き、どちらの遺伝子の変化でもエメリー・ドレイフス型筋ジストロフィーが起こります。ただしEMDではX連鎖潜性、LMNAでは常染色体顕性または潜性と、遺伝形式が異なります。
Q4. LEMドメインタンパク質の病気はどのように遺伝しますか?
遺伝子ごとに異なります。EMDによるエメリー・ドレイフス型筋ジストロフィーはX連鎖潜性、LEMD3による骨斑紋症やブシュケ・オレンドルフ症候群は常染色体顕性、LEMD2による若年発症白内障とANKLE2による小頭症は常染色体潜性です。LEMD2による早老症候群は、新生(de novo)の変化による常染色体顕性の病気として報告されています。家族への遺伝の可能性は、原因遺伝子と変化の種類を確認したうえで個別に評価します。
参考文献
- [1] Cai M, et al. Solution structure of the constant region of nuclear envelope protein LAP2 reveals two LEM-domain structures: one binds BAF and the other binds DNA. EMBO J. 2001;20(16):4399-4407. [PMC125263]
- [2] Barton LJ, et al. Unique and Shared Functions of Nuclear Lamina LEM Domain Proteins in Drosophila. Genetics. 2014;197(2):653-665. [PMC4063922]
- [3] He T, et al. Collective analysis of the expression and prognosis for LEM-domain proteins in prostate cancer. World J Surg Oncol. 2022;20:174. [PMC9161513]
- [4] Barton LJ, Soshnev AA, Geyer PK. Networking in the nucleus: a spotlight on LEM-domain proteins. Curr Opin Cell Biol. 2015;34:1-8. [PMC4522374]
- [5] Bione S, et al. Identification of a novel X-linked gene responsible for Emery-Dreifuss muscular dystrophy. Nat Genet. 1994;8(4):323-327. [PubMed 7894480]
- [6] Hellemans J, et al. Loss-of-function mutations in LEMD3 result in osteopoikilosis, Buschke-Ollendorff syndrome and melorheostosis. Nat Genet. 2004;36(11):1213-1218. [PubMed 15489854]
- [7] HUGO Gene Nomenclature Committee. Gene Group Jamboree 2022. Genenames Blog. 2022. [HGNC Blog]
- [8] Rose M, et al. The expression and role of the Lem-D proteins Ankle2, Emerin, Lemd2, and TMPO in triple-negative breast cancer cell growth. Front Oncol. 2024. [Frontiers in Oncology]
- [9] PROSITE documentation PDOC50954: LEM and LEM-like domain profiles. SIB Swiss Institute of Bioinformatics. [PROSITE]
- [10] Asencio C, et al. Coordination of kinase and phosphatase activities by Lem4 enables nuclear envelope reassembly during mitosis. Cell. 2012;150(1):122-135. [PubMed 22770216]
- [11] Gu M, et al. LEM2 recruits CHMP7 for ESCRT-mediated nuclear envelope closure in fission yeast and human cells. Proc Natl Acad Sci U S A. 2017;114(11):E2166-E2175. [PMC5358359]
- [12] MedlinePlus Genetics. LEMD3 gene. U.S. National Library of Medicine. [MedlinePlus]
- [13] Lee B, Lee H, Shim J. LEM-Domain-Containing Inner Nuclear Membrane Proteins: Emerging Regulators of Intranuclear Signaling. 2026. doi:10.3390/ijms27020942. [PMC12841731]
- [14] Genomics England PanelApp. TMPO (Dilated Cardiomyopathy and conduction defects panel). Genomics England. [Genomics England PanelApp]
- [15] Marbach F, et al. The Discovery of a LEMD2-Associated Nuclear Envelopathy with Early Progeroid Appearance Suggests Advanced Applications for AI-Driven Facial Phenotyping. Am J Hum Genet. 2019;104(4):749-757. [PMC6451726]
- [16] Boone PM, et al. Hutterite-type cataract maps to chromosome 6p21.32-p21.31, cosegregates with a homozygous mutation in LEMD2, and is associated with sudden cardiac death. Mol Genet Genomic Med. 2016;4(1):77-94. [PMC4707028]
- [17] Link N, et al. Mutations in ANKLE2, a ZIKA Virus Target, Disrupt an Asymmetric Cell Division Pathway in Drosophila Neuroblasts to Cause Microcephaly. Dev Cell. 2019;51(6):713-729.e6. [DOI 10.1016/j.devcel.2019.10.009]
- [18] Menten B, et al. Osteopoikilosis, short stature and mental retardation as key features of a new microdeletion syndrome on 12q14. J Med Genet. 2007;44(4):264-268. doi:10.1136/jmg.2006.047860. PMID:17220210. [PubMed 17220210]
- [19] Mari F, et al. Refinement of the 12q14 microdeletion syndrome: primordial dwarfism and developmental delay with or without osteopoikilosis. Eur J Hum Genet. 2009;17(9):1141-1147. doi:10.1038/ejhg.2009.27. PMID:19277063. [PubMed 19277063]
- [20] PanelApp Australia. LEMD2 (Mendeliome panel). Australian Genomics. [PanelApp Australia]
- [21] Puente XS, et al. Exome sequencing and functional analysis identifies BANF1 mutation as the cause of a hereditary progeroid syndrome. Am J Hum Genet. 2011;88(5):650-656. [PMC3146734]
- [22] Ben Yaou R, Leturcq F, Bonne G. Emery-Dreifuss Muscular Dystrophy. GeneReviews®. Initial posting 2004; updated September 18, 2025. [NCBI Bookshelf NBK1436]






