

目次
- 1 1. 繊毛内輸送(IFT)とは ─ 「工場のない部屋」に部品を運ぶしくみ
- 2 2. 発見の歴史 ─ 「光学顕微鏡の限界」を押し広げて見えたもの
- 3 3. IFTトレインの構造 ─ 2種類の荷台「IFT-A」と「IFT-B」
- 4 4. 2つのモーター ─ 行きの「キネシン-2」と帰りの「ダイニン-2」
- 5 5. 繊毛の根もと ─ 厳しい「関所」を通り抜ける
- 6 6. 繊毛の先端 ─ 列車が「方向転換」するしくみ
- 7 7. IFTとシグナル伝達 ─ 「細胞のアンテナ」を支える
- 8 8. 繊毛病(ciliopathy)─ IFTの破綻が全身に及ぶ理由
- 9 9. 遺伝診療との接点 ─ IFTの理解が診断をどう支えるか
- 10 10. よくある誤解
- 11 まとめ ─ 「細胞の宅配便」が支える生命と健康
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

わたしたちの体をつくる細胞の多くは、表面に繊毛(せんもう/cilia)という細い突起を1本もっています。これは「細胞のアンテナ」とも呼ばれ、周囲の信号を受け取ったり、体の設計図どおりに臓器がつくられるように調整したりする、とても大切な器官です。ところが繊毛の内部には、タンパク質をつくる工場がありません。そこで、必要な部品を根もとから先端へ、また先端から根もとへと絶え間なく運び続けるしくみが欠かせません。それが繊毛内輸送(IFT:Intraflagellar Transport/イントラフラジェラー・トランスポート)です。このしくみがうまく働かないと、繊毛病(せんもうびょう)と呼ばれるさまざまな遺伝性の病気につながります。この記事では、IFTとは何か、どうやって双方向に荷物を運ぶのか、そして破綻するとなぜ全身に症状が出るのかを、医学的知見に基づいて解説します。
Q. 繊毛内輸送(IFT)とは何ですか?まず結論だけ知りたいです
A. 繊毛内輸送(IFT)とは、細胞の「アンテナ」である繊毛の内部で、タンパク質の部品を根もとと先端のあいだで双方向に運び続ける輸送システムのことです。繊毛の中には部品をつくる工場がないため、根もとで組み立てた「IFTトレイン」という列車のような運搬体が、線路にあたる微小管の上を、モータータンパク質の力で往復します。行き(根もと→先端)をキネシン-2、帰り(先端→根もと)をダイニン-2という2種類のモーターが担います。このしくみが遺伝子の変化で壊れると、腎臓・網膜・骨格・脳など全身にまたがる繊毛病を引き起こします。
- ➤正体 → 繊毛の中でタンパク質を双方向に運ぶ、進化的に保存された輸送システム
- ➤運搬体 → IFT-A・IFT-Bという複合体が数珠状につながった「IFTトレイン」
- ➤動力 → 行きはキネシン-2、帰りはダイニン-2という2つのモーター
- ➤シグナルの制御 → ヘッジホッグ経路など、細胞の重要な信号のオン・オフを左右する
- ➤病気とのつながり → 破綻すると多発性嚢胞腎・網膜変性・骨格異形成などの繊毛病になる
🧬 繊毛内輸送(IFT)の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | せんもうないゆそう/IFT(Intraflagellar Transport)。鞭毛(べんもう)内輸送とも訳される |
| 定義 | 繊毛・鞭毛の内部で、タンパク質複合体を根もとと先端のあいだで双方向に運ぶ細胞内輸送システム |
| 運搬体 | IFT-A複合体(6サブユニット)とIFT-B複合体(約16サブユニット)が連なった「IFTトレイン」 |
| 動力(モーター) | 前向き(根もと→先端)=キネシン-2/後ろ向き(先端→根もと)=ダイニン-2 |
| 発見 | 1993年、緑藻クラミドモナスの鞭毛で初めて観察された[1] |
| 医療との関わり | 破綻すると腎臓・網膜・骨格・脳などに症状が出る「繊毛病(ciliopathy)」の原因となる |
※本記事は繊毛内輸送(IFT)の医学的・分子生物学的な用語解説です。特定の検査を勧めるものではありません。
1. 繊毛内輸送(IFT)とは ─ 「工場のない部屋」に部品を運ぶしくみ
多くの脊椎動物細胞は、表面に一次繊毛(いちじせんもう)という、アンテナのような突起を1本もっています。繊毛は細胞の運動や、周囲の化学的・物理的な変化を感じ取るセンサーとして働き、細胞の外からの信号を内側へ伝える中継地点になっています。ところが、この繊毛の内部には、タンパク質をつくり出すリボソームという工場が存在しません。つまり繊毛は、自分の材料を自分でつくれない「工場のない部屋」なのです。
そこで必要になるのが、繊毛の根もと(細胞の本体側)で用意した部品を、繊毛の中の線路にあたる微小管(びしょうかん)に沿って先端まで運び、また不要になったものを根もとへ戻す、双方向の運搬システムです。これが繊毛内輸送(IFT)です。IFTは、繊毛をつくる(組み立てる)段階でも、できあがった繊毛を維持する段階でも、休みなく働き続けます[2]。生き物の種類を越えて、藻類からヒトまで、繊毛をもつ生物のほとんどが同じしくみを共有しており、進化の中で強く保存されてきたことがわかっています。
💡 用語解説:繊毛・鞭毛・微小管
繊毛(cilia)と鞭毛(flagella)は、どちらも細胞から突き出た細い突起で、基本的な構造はほぼ同じです。ヒトの精子のしっぽは鞭毛、気道の細胞にびっしり生えて異物を運ぶのは運動性の繊毛、そしてほとんどの細胞が1本だけもつセンサー役が一次繊毛です。その芯を貫く線路が「微小管」で、IFTトレインはこの上を走ります。「Intraflagellar(=鞭毛内の)」という名前は、最初に鞭毛で見つかった歴史に由来しますが、繊毛でも同じしくみが働いています。
IFTのしくみは、大きく分けて「運ぶ荷台(IFTトレイン)」と「動かすモーター(キネシン-2とダイニン-2)」の組み合わせでできています。荷台には、繊毛を組み立てるための構造タンパク質(チューブリンなど)や、信号を受け取る受容体など、さまざまな荷物が積み込まれます。この記事では、まずこの運搬システムがどうやって発見されたのかをふり返り、続いて荷台とモーターの構造、根もとと先端でのしくみ、そして破綻したときに起こる病気へと、順に説明します。
2. 発見の歴史 ─ 「光学顕微鏡の限界」を押し広げて見えたもの
IFTが初めて観察されたのは1993年のことです。米国イェール大学のローゼンバウム研究室で、当時大学院生だったコズミンスキーらが、緑藻の一種であるクラミドモナスという単細胞生物の鞭毛の中を、毎秒数マイクロメートルの速さで動く小さな粒子を見つけました[1]。この動きは、鞭毛そのものがしなって泳ぐ運動とは別物で、「鞭毛内輸送(intraflagellar transport)」と名づけられました。当時の光学顕微鏡の限界を押し広げた特殊な観察技術(ビデオ増強微分干渉顕微鏡)を使うことで、初めて捉えられた現象でした。
この粒子の動きは、あまりにも微妙だったため、最初は「顕微鏡が生み出した見せかけ(アーティファクト)ではないか」と疑う声もありました。しかし、鞭毛が泳ぐ動きをしない変異体を使った丁寧な観察によって、その存在は確かめられ、細胞生物学の大きな転換点となりました。粒子は、外側の微小管と繊毛膜のあいだにはさまれた、キャンディのような形の構造として電子顕微鏡でも確認されました[1]。
発見から30年あまりが経ったいまでは、この粒子の正体が、多数のタンパク質が数珠のように連なった「IFTトレイン」という巨大な構造であることがわかっています[2]。近年は、細胞をこわさずに凍らせて内部を立体的に観察するクライオ電子顕微鏡(cryo-EM)・クライオ電子線トモグラフィー(cryo-ET)という技術の進歩によって、この列車の精密な設計図が、原子に近いレベルまで解き明かされてきました。以降の章では、その最新の姿を見ていきます。
🩺 院長コラム【「見せかけ」を疑い抜くという科学の姿勢】
IFTの発見では、最初にこの動きが「顕微鏡のアーティファクトかもしれない」と疑われた点が重要です。新しく見えたものを、すぐに真実だと決めつけず、変異体を使って地道に検証していった。この慎重さこそが、のちに数多くの繊毛病の理解につながる大発見を支えました。
遺伝子検査の結果を読むときも、同じ姿勢が欠かせません。見つかった変化が本当に病気に関係するのか、それともただの個性なのか。遺伝子検査の結果も、文献・集団頻度・機能データ・表現型との整合性などを踏まえて慎重に評価する必要があり、この検証姿勢は科学的評価の基本です。
3. IFTトレインの構造 ─ 2種類の荷台「IFT-A」と「IFT-B」
IFTトレインは、大きく2種類の複合体からできています。IFT-B複合体(約16のサブユニット)とIFT-A複合体(6つのサブユニット)です[4]。この2つが規則正しく重なり合って、長い列車のような構造をつくります。まず全体像を図で見てみましょう。
IFT-B ─ 列車の骨格をつくり、行きを担う
IFT-Bは、IFTトレインの「骨格(バックボーン)」にあたる部分です[4]。線路である微小管に直接くっつき、規則正しい間隔で数珠状につながって、列車の背骨をつくります。IFT-Bはとても細長く、しなやかな構造をしています。この柔軟さのおかげで、絶えず動いてしなる繊毛の中で発生する機械的な負担にも耐えられると考えられています[3]。IFT-Bは、行き(前向き)のモーターであるキネシン-2と結びつくと同時に、繊毛の材料となるタンパク質や、後で説明する「帰りのモーター」を先端まで運ぶための土台にもなります。
IFT-A ─ 膜のそばに位置し、帰りと「搬入」を担う
一方のIFT-Aは、6つのサブユニット(IFT144、IFT140、IFT122、IFT121、IFT139、IFT43)からできています[5]。列車の中では、IFT-Bと繊毛膜のあいだにはさまれるように配置されます。この「膜のすぐそば」という位置は、後で述べるように、膜にある受容体などを繊毛の中へ運び入れる役割にぴったり合っています。近年のクライオ電子顕微鏡による解析では、IFT-Aは投げ縄(ラリアット)のような形をとり、中心部と周辺部が亜鉛を含む結合部で連結された構造であることが示されました[5]。
試験管内の再構成系では、IFT-Aだけでは列車状に並ぶことができず、先にIFT-Bの列ができてから、そこにIFT-Aが協力しながら組み上がっていく、という段階的なしくみが示唆されています[3]。列車全体が、決まった順番で秩序立って組み立てられていくのです。
💡 用語解説:サブユニットと複合体
タンパク質は、それぞれ役割の違う部品(サブユニット)が集まって、大きな機械のような「複合体」をつくることがあります。IFT-Bは約16個、IFT-Aは6個の部品が組み合わさった複合体です。それぞれの部品が欠けたり形が変わったりすると、機械全体の動きが止まってしまうことがあり、これが後で述べる繊毛病の分子的な原因になります。
4. 2つのモーター ─ 行きの「キネシン-2」と帰りの「ダイニン-2」
IFTがすばやく双方向に動けるのは、進む向きが正反対の2つの微小管モーターのおかげです。行き(根もと→先端)をキネシン-2が、帰り(先端→根もと)をダイニン-2が担います[3]。ここで一つ、大きな疑問が生まれます。強力な2つのモーターが同じ列車に乗っているのに、なぜ「綱引き」にならず、きちんと一方向に進めるのでしょうか。
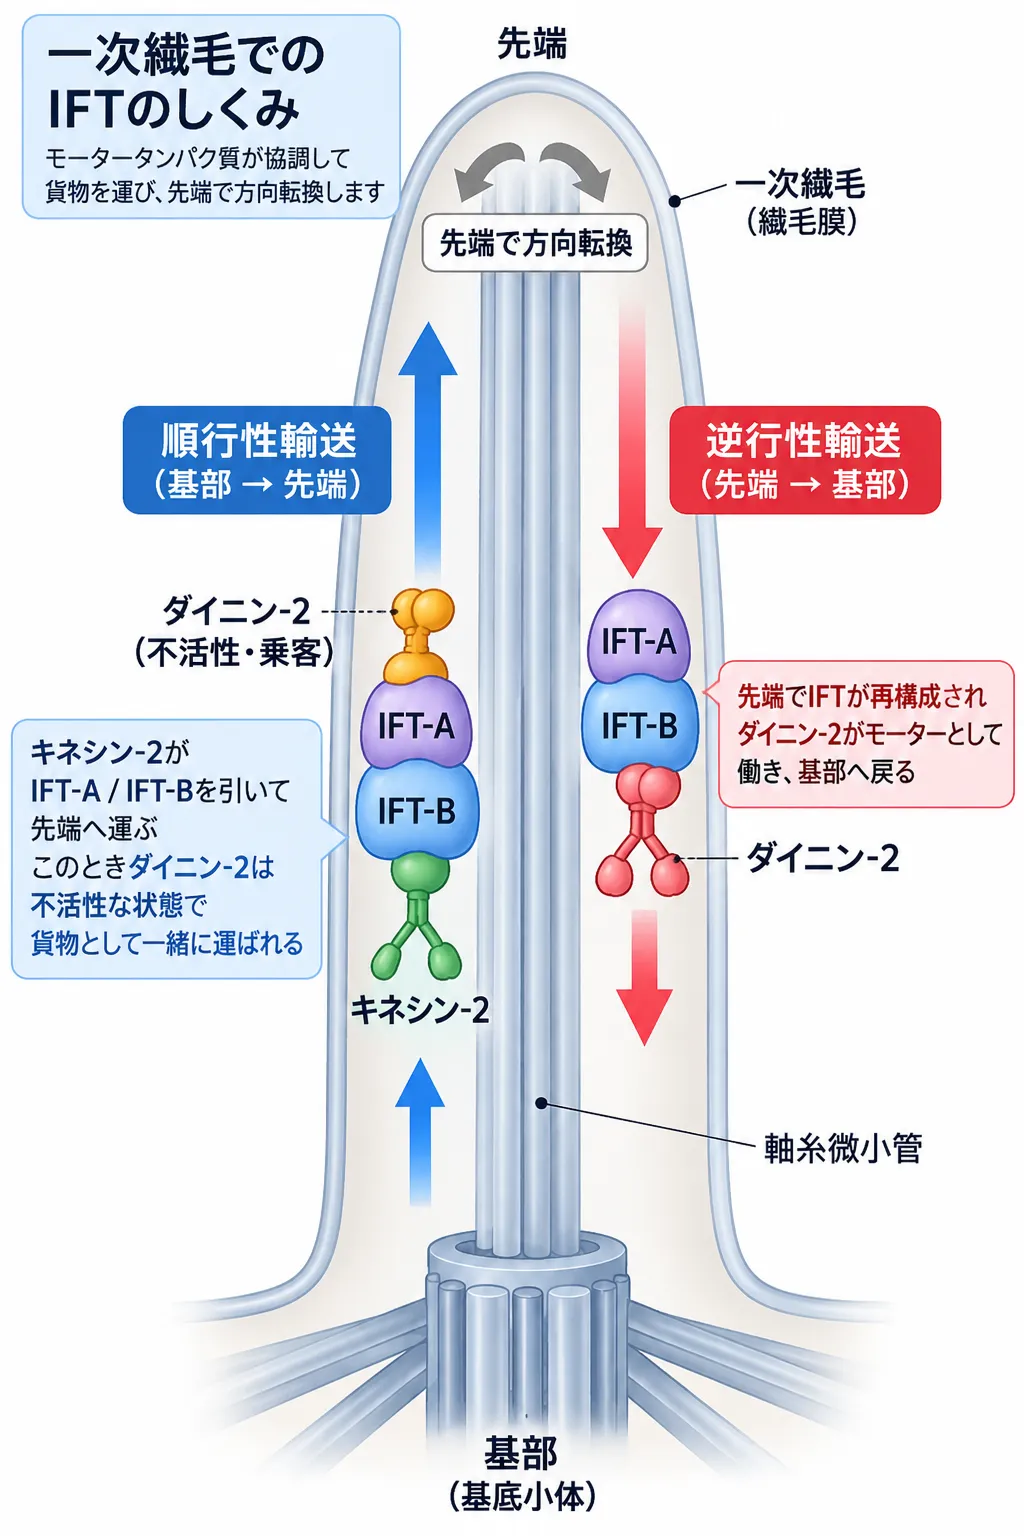
一次繊毛では、キネシン-2がIFT-A・IFT-BからなるIFTトレインを基部から先端へ運びます。このとき、逆行性輸送を担うダイニン-2は不活性な状態で「乗客」として先端まで運ばれます。先端でIFTトレインが再構成されるとダイニン-2が逆行性モーターとして働き、IFT成分などを先端から基部へ輸送します。このモーターの切り替えによって、繊毛内の双方向輸送が維持されます。
💡 覚え方:キネシンとダイニンの方向
「キネシンは毛先へ、ダイニンは台へ」と覚えると整理しやすくなります。キネシン-2は基部から繊毛の先端へ進む順行性輸送、ダイニン-2は先端から基底小体のある基部へ戻る逆行性輸送を担います。語呂で覚えるなら、「キネシン、先に行きんしゃい。ダイニン、台に帰りんしゃい」です。微小管の極性では、キネシン-2はプラス端側、ダイニン-2はマイナス端側への輸送に対応します。
キネシン-2 ─ 行きの動力
行きのモーターであるキネシン-2は、哺乳類ではKIF3A・KIF3Bという2つの異なるモーター部品と、KAP3という補助タンパク質が組み合わさった、少し変わった構造をしています。多くのキネシンが同じ部品2つでできているのに対し、キネシン-2は「異なる2つの部品」が組んだ形をとる点が特徴です。この非対称な組み合わせが、移動の速さと、途中で離れずに長く歩き続ける性能のバランスを、うまく最適化していると考えられています。
ダイニン-2 ─ 帰りのモーターは「乗客」として運ばれる
ここに、IFTのもっとも巧妙な工夫があります。帰りのモーターであるダイニン-2は、繊毛の先端に着くまでは、自分では動かず、行きの列車に「乗客(不活性な荷物)」として乗せられて運ばれるのです[3]。クライオ電子線トモグラフィーによる観察では、運ばれている最中のダイニン-2は、まるで足を交差させたような、極端に折りたたまれた「自己抑制」の姿勢をとっていることがわかりました[3]。
この状態では、ダイニン-2の微小管に結びつく部分が、線路とは反対の外側を向いていて、動く力も線路をつかむ力も完全にロックされています[3]。だからこそ、行きのキネシン-2との「綱引き」が起こらず、列車は毎秒3マイクロメートル前後という高速で、迷わず一方向に先端へ進めるのです[3]。この巨大なダイニン-2複合体(約1.4メガダルトン)の立体構造も、近年のクライオ電子顕微鏡で解明されました[6]。WDR60・WDR34といった部品が2本の重い鎖をそれぞれ違う形にねじ曲げることで、この自己抑制と列車への積み込みが実現しています[6]。
💡 「乗客として運ぶ」ことの意味
帰りのモーターを、あえて眠らせたまま先端まで運ぶ——この一見むだに見えるしくみこそ、IFTの効率のかなめです。もし帰りのモーターが行きの途中で目を覚まして線路をつかんでしまえば、列車は前にも後ろにも引っぱられて動けなくなります。眠らせておくことで綱引きを防ぎ、先端に着いてから初めて起こして働かせる。細胞は、こうした精密な「順番の制御」で、無駄のない往復を実現しています。
5. 繊毛の根もと ─ 厳しい「関所」を通り抜ける
IFTの旅は、繊毛の根もとから始まります。細胞の本体と繊毛の内部は、ただつながっているわけではなく、あいだに厳しい「関所」があります。この関所が、繊毛の中だけの特別な環境を保つうえで、決定的な役割を果たしています。
繊毛の根もとには、中心体に由来する基底小体(きていしょうたい)という土台があり、そこからトランジションファイバー(移行線維)という、プロペラのような9枚の繊維が広がっています。細胞の本体から繊毛へ向かうIFTの荷台は、まずこの繊維に最初にドッキングします。いわば、列車が発車前に待機する「駅のホーム」です。
その少し先にあるのが移行帯(いこうたい/Transition Zone)です。ここには「Y字型リンカー(Y-link)」と呼ばれる特徴的な構造があり、繊毛の芯である微小管と、外側の繊毛膜とを、しっかりつなぎ止めています。この移行帯は、単なる連結部ではなく、余計なタンパク質が繊毛の中に自由に入り込むのを防ぐ「拡散のバリア(関所)」として働きます。おかげで繊毛の内部は、細胞本体とは異なる独自の環境(プロテオーム)を保つことができます。
ふつうのタンパク質はこの関所ではじかれますが、IFTトレインは、この厳しいバリアを効率よく通り抜けられる「特別な通行証をもった運搬体」として働きます。IFT成分の観察によれば、列車の組み立ては根もとで一斉に行われるのではなく、まずIFT-Bが先に土台をつくり、続いてIFT-A、そして後で説明するBBSomeという複合体が順に結合していく、という決まった段取りで完成し、繊毛の中へ出発することがわかっています。
6. 繊毛の先端 ─ 列車が「方向転換」するしくみ
先端に到着したIFTトレインは、「方向転換(ターンアラウンド)」という、劇的な組み替えを行います[2]。行きのキネシン-2が線路から外れて働きを止め、荷物が降ろされ、IFT-AとIFT-Bがつくり直され、そしてこれまで眠っていた帰りのダイニン-2が目を覚まして活性化します。ダイニン-2は自己抑制を解いて線路をつかみ、力強く帰りの列車を引き始めます[6]。この一連の切り替えが、繊毛の長さを一定に保つ「恒常性」のかなめです。
切り替えのスイッチ役 ─ CILK1/MAKというキナーゼ
この複雑な方向転換のスイッチとして働くのが、CILK1(旧名ICK)と、その仲間であるMAKというキナーゼ(リン酸化酵素)です[8]。CILK1自身も、IFTによって行きの列車に乗って繊毛の先端まで運ばれ、そこで重要な調整役として働きます。CILK1は、行きのモーターであるキネシン-2の部品(KIF3A)を直接リン酸化することが報告されています[8]。リン酸化とは、タンパク質にリン酸という小さな目印を付けて、その働きのオン・オフを切り替えるしくみです。ただし、このKIF3Aのリン酸化がどこまで必須なのかについては、研究者のあいだでまだ議論が続いています。
CILK1やMAKの働きがうまくいかないと、モーターが適切なタイミングで外れられず、帰りの輸送への切り替えがうまく進みません。その結果、行き場を失った大量のタンパク質が繊毛の先端にたまり、先端が球のように膨れ上がる「先端の膨隆(バルジ)」という形の異常が起こります[8]。方向転換のしくみが、いかに繊毛の健康維持に欠かせないかがわかります。
荷物の受け渡し役 ─ BBSomeとARL6
先端での荷物のやりとりで、特別な役割を果たすのがBBSome(ビービーソーム)という、8つのタンパク質からなる複合体です[9]。BBSomeは、繊毛の中で特定の荷物(受容体など)を選び分ける「コート複合体」として働きます。BBSomeが繊毛膜に呼び寄せられるかどうかは、低分子量GTPアーゼと呼ばれる分子スイッチARL6(別名BBS3)によって厳密に制御されています[9]。
ARL6がGTPと結合したオンの状態になると、BBSomeと結びついて繊毛膜の上にコート(外殻)をつくり、ソマトスタチン受容体3(SSTR3)などの荷物を選んで運びます[9]。さらに、IFT27というタンパク質は、繊毛の中からBBSomeと荷物を送り出す(帰りの輸送へ渡す)働きを、ARL6を介して助けています[10]。こうした精密な受け渡しによって、荷物が繊毛の中にたまりすぎないよう調整されています。
安全弁 ─ エクトサイトーシス(小胞の放出)
もし方向転換や荷物の受け渡しがうまくいかず、繊毛の中にタンパク質がたまりすぎてしまったら、どうなるのでしょうか。繊毛には、そんなときのための「安全弁」が備わっています。それがエクトサイトーシスと呼ばれる、余分なタンパク質を袋(細胞外小胞)に詰めて先端から外へ切り離すしくみです[11]。
たとえばBBSomeの働きが失われると、本来なら繊毛から回収されるべき受容体が先端にたまってしまいます。このとき繊毛は、不要なタンパク質を包んだ小さな袋(エクトソーム)を先端から放出して、たまりすぎを解消しようとします[11]。1993年の最初の観察記録にも「鞭毛の先端から膜がふくらんでちぎれる」という現象が残されており[1]、これはまさにこの安全弁の働きを捉えていたものと考えられます。輸送のバランスが崩れたときに繊毛を守る、洗練されたしくみです。
7. IFTとシグナル伝達 ─ 「細胞のアンテナ」を支える
一次繊毛は、単なる細胞の飾りではなく、細胞の外の情報を受け取る「アンテナ」です。とくに、体の発生や組織の維持に欠かせないヘッジホッグ(Hedgehog)経路のシグナル伝達は、脊椎動物、とくに哺乳類では一次繊毛に強く依存しています。この経路のオン・オフは、GPCR(Gタンパク質共役型受容体)と呼ばれる受容体(SmoothenedやGPR161など)が、繊毛の中に入ったり出たりすることで切り替わります。この出入りを支えているのが、まさにIFTなのです。
ここで重要な役割を果たすのが、TULP3というアダプター(つなぎ役)のタンパク質です。TULP3は、IFT-A複合体と結びつく一方で、繊毛膜にある特定の脂質(ホスホイノシチド)とも結びつく、二重の親和性をもっています[7]。この「橋渡し」の働きによって、TULP3はIFT-Aを膜のそばにつなぎ止め、GPR161などの受容体を繊毛の中へ選んで運び入れます[7]。
つまりIFT-Aは、もともと知られていた「帰りの輸送」の役割に加えて、TULP3を介して特定の受容体を繊毛へ「搬入する」という、まったく別の第二の役割ももっているのです[7]。IFTは、ただ荷物を往復させるだけの運び屋ではなく、どの信号分子をいつ繊毛に入れるかを選別する輸送機構として、シグナル伝達を支えています。
💡 用語解説:なぜアンテナが大事なのか
一次繊毛は、細胞が周囲の状況を「聞き取る」ためのアンテナです。ヘッジホッグ経路は、赤ちゃんの体ができていく過程で、手足や脳、内臓が正しい形になるよう指示を出す、いわば発生の設計図の読み手です。IFTがうまく働かずアンテナが正しく機能しないと、この設計図が読み取れなくなり、体のさまざまな部分の形成に影響が及びます。これが、次章で述べる繊毛病の多彩な症状につながります。
8. 繊毛病(ciliopathy)─ IFTの破綻が全身に及ぶ理由
繊毛やIFTのしくみが遺伝子の変化で壊れると、繊毛病(ciliopathy/シリオパチー)と総称される、さまざまな先天性の遺伝性疾患を引き起こします。繊毛は全身の多くの細胞にあるため、症状は網膜の変性、多発性嚢胞腎、脳の形成異常、肥満、そして重い骨格の形成異常など、非常に多岐にわたります。1つの原因が全身の多くの臓器に症状を出すことを多面発現(pleiotropy)といい、繊毛病はその典型例です[12]。
同じ遺伝子でも、変異の性質で重症度が変わる
繊毛病でとても興味深いのは、同じIFT遺伝子の変化であっても、変異の性質によって病気の重さが劇的に違うという点です[12]。遺伝子の働きが完全に失われるような変異(ナンセンス変異など)では、繊毛そのものがつくれず、胎児期に亡くなるような重い状態になることがあります。一方、タンパク質どうしの結びつきを部分的に弱めるだけの変異(ミスセンス変異)では、IFTへの依存度が特に高い組織(骨格や網膜など)だけに症状が出る、比較的軽い形になることが多いのです[12]。
たとえばIFT-Aの部品であるIFT140遺伝子の変異は、軽いものでは網膜だけに症状が出る網膜ジストロフィから、重いものでは骨格や複数の臓器にまたがる病気まで、幅広い症状を示すことが報告されています[12]。また、帰りのモーターであるダイニン-2の重い鎖の遺伝子DYNC2H1の変異は、短肋骨胸郭異形成症3型(SRTD3)やジューヌ症候群の主要な原因の一つであり、同じ遺伝子型のきょうだいのあいだでも症状の重さが異なることが報告されています[14]。
💡 用語解説:常染色体潜性(劣性)遺伝
ここで挙げた骨格の繊毛病の多くは、常染色体潜性(せんせい/旧・劣性)遺伝という形で受け継がれます。これは、両親からそれぞれ受け継いだ1対の遺伝子の両方に変化があって初めて発症する、というしくみです。ご両親は変化を1つだけもつ「保因者」で、ふつうは症状がありません。同じ変化を保因する両親から子が生まれる場合に、発症のリスクが生じます。
主なIFT関連遺伝子と繊毛病
🧬 IFTの部品と、関連する代表的な繊毛病
| 複合体/モーター | 代表的な遺伝子 | 関連する繊毛病 | 主な影響 |
|---|---|---|---|
| IFT-A | IFT140/IFT122 | 網膜ジストロフィ、頭蓋外胚葉異形成症(CED)、短肋骨多指症候群 | 受容体の繊毛への搬入が障害され、ヘッジホッグ信号が乱れる[12] |
| IFT-B | IFT172/IFT80/IFT52 | ジューヌ症候群、マインツァー・サルディノ症候群 | 行きの輸送が根本から破綻する |
| ダイニン-2 | DYNC2H1/WDR34/WDR60 | 短肋骨胸郭異形成症(SRPS)などの重い骨格・腎の病気 | 帰りの輸送が止まり、先端に荷物がたまる[13] |
| BBSome/ARL6 | BBS1〜BBS3ほか | バルデー・ビードル症候群(BBS) | 受容体の選別・搬出が乱れ、先端にたまって過剰な小胞放出を招く[9] |
| キナーゼ | CILK1/MAK | 骨格・神経・網膜に関わる繊毛病 | 先端での方向転換が乱れ、IFT複合体が過剰にたまる[8] |
※上記は代表例であり、繊毛病に関わる遺伝子は非常に多岐にわたります。診断には専門的な評価が必要です。
9. 遺伝診療との接点 ─ IFTの理解が診断をどう支えるか
IFTのしくみを知ることは、繊毛病の遺伝子検査の結果を読み解くうえで、大切な土台になります。前章で述べたとおり、繊毛病は同じ遺伝子でも変異の性質によって症状の重さが大きく変わるという特徴があります[12]。これは、遺伝子検査で見つかった変化が、体にどのような影響を及ぼしうるかを考えるときに、単純な「あり・なし」では判断しきれないことを意味します。
同じ遺伝子でも変異のタイプによって表現型や解釈が変わりうることは、遺伝医学で重要な原則です。遺伝子型と表現型の関係は一対一で決まるものではなく、変異の性質、組織ごとの感受性、そしてもう一方の遺伝子の状態など、複数の要素が重なって現れます。遺伝子型と表現型の関係は、文献や臨床情報を踏まえて総合的に整理する必要があります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何がわかり何がわからないのか、見つかった変化がご本人やご家族にとってどういう意味をもつのか、そしてどのような選択肢があるのか、といった点です。診断名がつくまでに時間がかかる状況は、多くの希少・遺伝性疾患に共通して、ご本人にもご家族にも負担の大きいものです。当院では中立的な立場から、正確な診断に基づいて選択肢を検討できるよう、判断材料を整理します。なお、繊毛内輸送そのものは基礎研究が中心の分野であり、日常の診療で直接測る検査項目ではありません。ここでは「遺伝子の働きをどう読み解くか」という理解の土台として位置づけています。
10. よくある誤解
誤解①「繊毛はただの飾り」
一次繊毛は飾りではなく、細胞の重要なアンテナです。周囲の信号を受け取り、発生や組織維持のかなめとなるヘッジホッグ経路などを制御します。IFTはこのアンテナの機能を根底で支えています。
誤解②「モーターは行きと帰りで綱引きする」
綱引きは起こりません。帰りのモーター(ダイニン-2)は、行きのあいだ眠った状態で乗客として運ばれ、先端で初めて目を覚まします。この順番の制御が、迷いのない一方向輸送を可能にします。
誤解③「1つの遺伝子は1つの病気」
IFT遺伝子では、同じ遺伝子でも変異の性質で症状の重さが大きく変わります。網膜だけの軽い症状から、全身にまたがる重い病気まで、幅広い表現型を示すことがあります。
誤解④「症状がバラバラなら別々の原因」
腎臓・網膜・骨格・脳など、一見バラバラの症状も、繊毛という共通の器官の異常から説明できます。繊毛が全身にあるため、1つの原因が多くの臓器に影響する「多面発現」が起こります。
まとめ ─ 「細胞の宅配便」が支える生命と健康
繊毛内輸送(IFT)は、単なる「細胞内の宅配便」にとどまりません。繊毛という小さな空間に、どのタンパク質を、いつ、どれだけ届けるかを絶えず調整し、細胞が外の世界を感じ取る力そのものを支える、精密な分子のしくみです[2]。クライオ電子顕微鏡をはじめとする最新の構造解析によって、IFT-BとIFT-Aが段階的に組み上がるようす、そして巨大なダイニン-2が「眠った乗客」として運ばれるという巧妙な設計が、次々と明らかになってきました[4]。
根もとの厳しい関所を通り抜け、先端でCILK1などのキナーゼが方向転換のスイッチを入れ[8]、TULP3やBBSomeが受容体の出入りを選び分ける[7]。この一連の連携が、ヘッジホッグ経路をはじめとする細胞の信号を正しく保っています。そして、このしくみが遺伝子の変化で破綻したとき、腎臓・網膜・骨格・脳など全身にまたがる繊毛病が生じます[12]。IFTを理解することは、こうした多彩な病気が「なぜ一つの共通した原因から説明できるのか」を理解する鍵になります。分子レベルの構造の理解と、生きた細胞の中での動的な制御のしくみが結びつくことで、将来の診断や治療への道も少しずつ開かれていくと期待されています。
よくある質問(FAQ)
Q1. 繊毛内輸送(IFT)とは何ですか?
繊毛内輸送(IFT)とは、細胞の「アンテナ」である繊毛の内部で、タンパク質の部品を根もとと先端のあいだで双方向に運び続ける輸送システムのことです。繊毛の中には部品をつくる工場がないため、根もとで組み立てた「IFTトレイン」という運搬体が、線路にあたる微小管の上を、モータータンパク質の力で往復します。1993年に緑藻クラミドモナスの鞭毛で初めて観察され、藻類からヒトまで進化的に強く保存されています。
Q2. 行きと帰りのモーターは、なぜ綱引きにならないのですか?
帰りのモーターであるダイニン-2が、行きのあいだは自分では動かず、「乗客(不活性な荷物)」として行きの列車に乗せられて運ばれるからです。運ばれている最中のダイニン-2は、足を交差させたような折りたたまれた姿勢をとり、線路をつかむ力がロックされています。先端に着いて初めて目を覚まし、帰りの列車を引き始めます。この順番の制御によって、綱引きを防ぎ、一方向へのすばやい輸送が保たれています。
Q3. IFTが壊れると、どんな病気になりますか?
IFTのしくみが遺伝子の変化で壊れると、「繊毛病(ciliopathy)」と総称されるさまざまな遺伝性疾患が起こります。繊毛は全身の多くの細胞にあるため、症状は網膜の変性、多発性嚢胞腎、骨格の形成異常、脳の形成異常、肥満など多岐にわたります。代表例として、バルデー・ビードル症候群、ジュベール症候群、短肋骨胸郭異形成症などが知られています。
Q4. 同じ遺伝子の変化でも、症状の重さが違うのはなぜですか?
変異の性質によって、タンパク質の働きがどの程度損なわれるかが異なるためです。働きが完全に失われる変異では繊毛そのものがつくれず重い状態になる一方、結びつきを部分的に弱めるだけの変異では、IFTへの依存度が特に高い組織(骨格や網膜など)だけに症状が出る軽い形になることが多いと報告されています。同じ遺伝子でも幅広い症状を示すのが、繊毛病の特徴です。
Q5. 繊毛内輸送そのものを検査で調べられますか?
繊毛内輸送そのものは基礎研究が中心の分野で、日常の診療で直接測る検査項目ではありません。臨床では、繊毛病に関わる原因遺伝子を調べる遺伝子検査が行われます。検査を受けるかどうかや結果の意味については、臨床遺伝専門医による遺伝カウンセリングの中で整理していくことが大切です。診断に関する判断は、必ず専門の医療機関にご相談ください。
🏥 繊毛病・遺伝子検査のご相談
繊毛病や遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] A motility in the eukaryotic flagellum unrelated to flagellar beating. Proc Natl Acad Sci U S A. 1993. [PubMed 8516294]
- [2] The structural basis of intraflagellar transport at a glance. J Cell Sci. 2021. [J Cell Sci 134:jcs247163]
- [3] The cryo-EM structure of intraflagellar transport trains reveals how dynein is inactivated to ensure unidirectional anterograde movement in cilia. Nat Cell Biol. 2018. [PubMed 30323187]
- [4] The molecular structure of IFT-A and IFT-B in anterograde intraflagellar transport trains. Nat Struct Mol Biol. 2022. [PubMed 36593313]
- [5] Human IFT-A complex structures provide molecular insights into ciliary transport. Cell Res. 2023. [Cell Res 33:288-298]
- [6] Structure of the dynein-2 complex and its assembly with intraflagellar transport trains. Nat Struct Mol Biol. 2019. [Nat Struct Mol Biol 26:823-829]
- [7] TULP3 bridges the IFT-A complex and membrane phosphoinositides to promote trafficking of G protein-coupled receptors into primary cilia. Genes Dev. 2010. [PubMed 20889716]
- [8] ICK is essential for cell type-specific ciliogenesis and the regulation of ciliary transport. EMBO J. 2014. [PubMed 24797473]
- [9] The conserved Bardet-Biedl syndrome proteins assemble a coat that traffics membrane proteins to cilia. Cell. 2010. [Cell 141:1208-1219]
- [10] The intraflagellar transport protein IFT27 promotes BBSome exit from cilia through the GTPase ARL6/BBS3. Dev Cell. 2014. [PubMed 25443296]
- [11] Shedding of ciliary vesicles at a glance. J Cell Sci. 2022. [PubMed 36222105]
- [12] Ciliopathy-associated missense mutations in IFT140 are tolerated by the inherent resilience of the IFT machinery. Mol Cell Proteomics. 2025. [PubMed 39880085]
- [13] Short-rib polydactyly and Jeune syndromes are caused by mutations in WDR60. Am J Hum Genet. 2013. [PubMed 23910462]
- [14] Schmidts M, Arts HH, Bongers EMHF, et al. Exome sequencing identifies DYNC2H1 mutations as a common cause of asphyxiating thoracic dystrophy (Jeune syndrome) without major polydactyly, renal or retinal involvement. J Med Genet. 2013;50(5):309-323. doi:10.1136/jmedgenet-2012-101284. [PubMed 23456818]






