

目次

📍 クイックナビゲーション
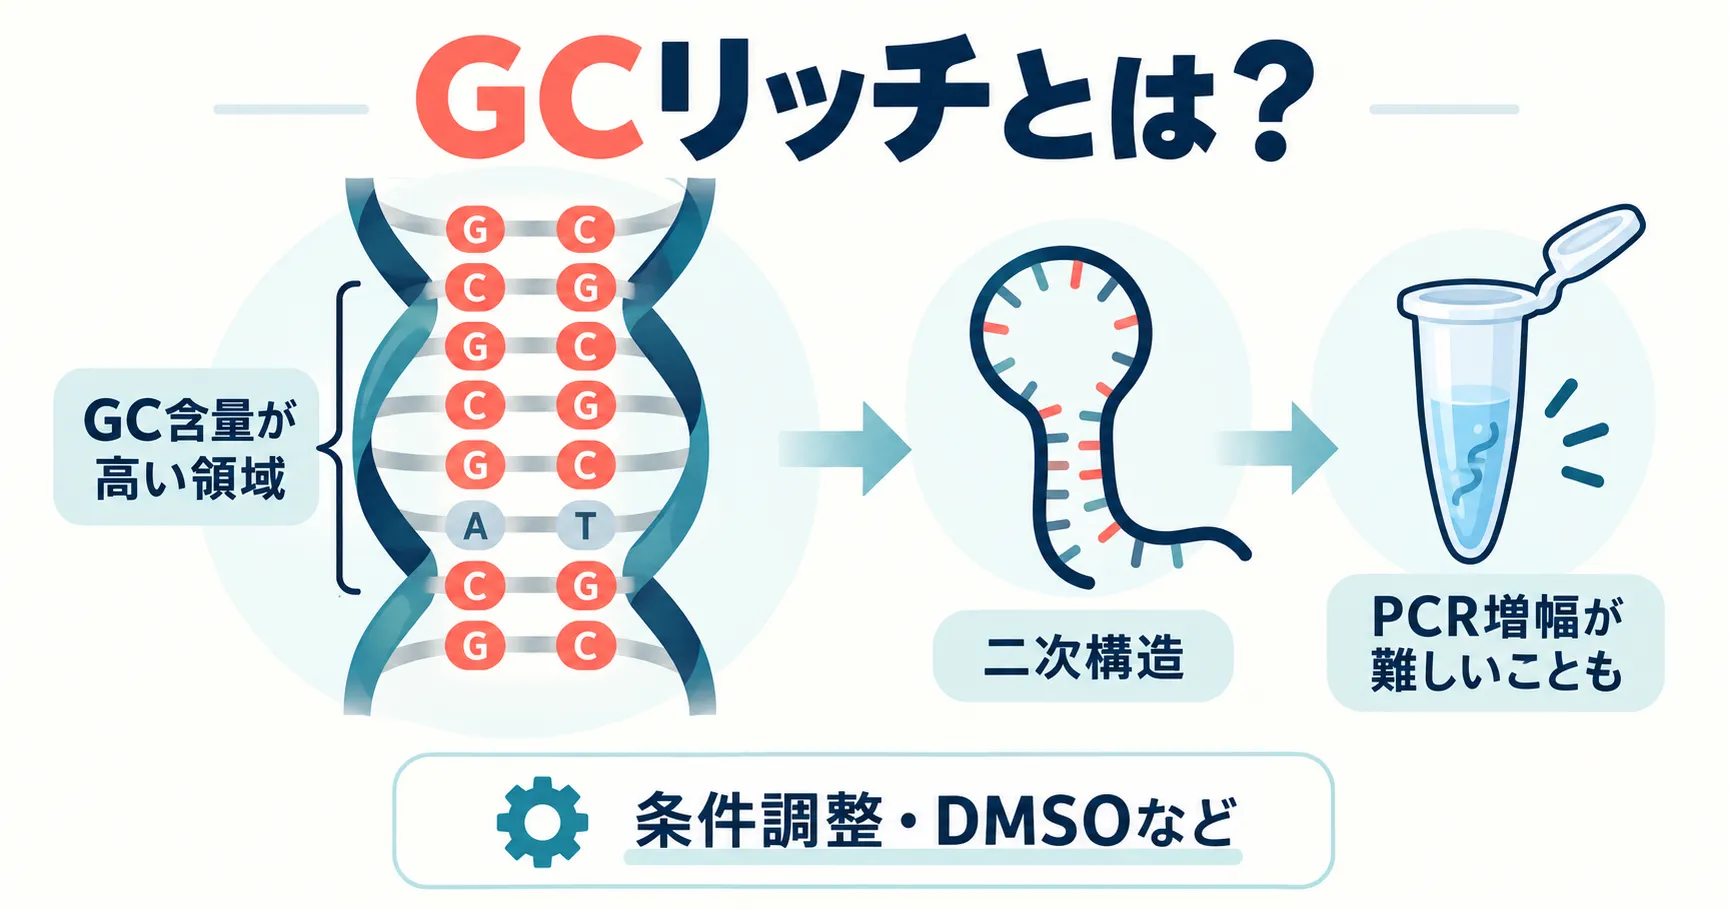
DNAはA(アデニン)・T(チミン)・G(グアニン)・C(シトシン)の4種類の塩基が並んだ分子です。そのうちGとCの割合が特に高い部分をGCリッチ(ジーシーリッチ)領域と呼びます。GCリッチ領域は遺伝子の働きを調節するプロモーターなどに多く含まれる一方、二本鎖がほどけにくく、折れ曲がった構造をつくりやすいため、PCR(ピーシーアール)で増やしにくく、シーケンスでも読みにくいことで知られています。この記事では、GCリッチの定義とGC含量の基本、PCRで増幅しにくい理由、DMSOやベタインなどの添加剤と温度条件による対策、シーケンスへの影響、そして遺伝学的検査との関わりまでを、臨床遺伝専門医の立場から順に解説します。
Q. GCリッチとは何ですか?まず結論だけ知りたいです
A. GCリッチとは、DNA配列のうちグアニン(G)とシトシン(C)の割合が高い領域のことです。目安としてGC含量60%以上を指すことが多いものの、統一された公式の基準はありません。GCが多い領域は二本鎖がほどけにくく、ヘアピンなどの二次構造をつくりやすいため、PCRでの増幅やシーケンスでの解読が難しくなります。対策として、変性温度を上げる、DMSOやベタインなどの添加剤を加える、GCリッチ向けの酵素やバッファーを使う、といった方法が用いられます。
- ➤定義 → GとCの割合が高いDNA領域。60%以上が慣用的な目安で、ヒトゲノム全体の平均GC含量は40.9%
- ➤安定な理由 → G-C対の水素結合が3本であることに加え、隣り合う塩基どうしの積み重なり(スタッキング)の寄与が大きい
- ➤どこにあるか → プロモーターやCpGアイランドなど、遺伝子の働きを調節する領域に多い
- ➤PCRが難しい理由 → 変性不良・二次構造によるポリメラーゼの停止・プライマー設計や反応条件の制約
- ➤主な対策 → 変性温度の調整、DMSO・ベタイン・7-deaza-dGTPなどの添加、専用酵素・バッファー、プライマー設計の見直し
- ➤医療との関係 → 脆弱X症候群のFMR1遺伝子CGGリピートのように、GCリッチであること自体が遺伝学的検査の難しさにつながる例がある
🧬 GCリッチの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・英語 | ジーシーリッチ(GC-rich)。反対にAとTが多い領域はATリッチ(エーティーリッチ)と呼ぶ |
| 定義 | DNA配列の中でグアニン(G)とシトシン(C)の割合が高い領域。GC含量60%以上が慣用的な目安で、公式な統一基準はない |
| 比較の基準 | ヒト核ゲノム全体の平均GC含量は40.9%[1] |
| 多い場所 | プロモーター、CpGアイランド、一部の反復配列(CGGリピートなど) |
| 実験上の特徴 | 融解温度(Tm)が高く、二次構造をつくりやすいため、PCR増幅やシーケンス解読が難しくなりやすい |
※本記事は用語と仕組みの解説です。特定の試薬や検査を勧めるものではありません。
1. GCリッチとは?定義とGC含量の基本
GCリッチの定義:何%からGCリッチと呼ぶのか
GCリッチとは、DNA配列のうちグアニン(G)とシトシン(C)の割合が、周囲やゲノム全体の平均と比べて高い領域を指す言葉です。何%からGCリッチと呼ぶかについて、学会などが定めた公式の基準はありません。実験の現場ではGC含量60%以上を目安にすることが多く、資料によっては60〜70%以上とされることもあります。つまり「GCリッチ」は厳密な定義語というより、「この配列はPCRやシーケンスで苦労しそうだ」という注意を促す実用上の言葉として使われています。
なぜ60%前後が目安になるのかというと、ヒトゲノム全体の平均GC含量が40.9%と報告されており[1]、それより明らかに高い領域では、後で説明する変性不良や二次構造の問題が目立ってくるためです。同じ60%でも、配列全体に均一にGCが散らばっている場合と、狭い範囲にGCが集中している場合とでは、実験の難しさが大きく変わります。短い区間にGやCが連続している配列ほど、局所的に強固な構造をつくりやすいからです。
反対に、AとTの割合が高い領域はATリッチと呼ばれます。ATリッチ領域もPCRで扱いにくいことがありますが、二本鎖が不安定でプライマーが結合しにくいという、GCリッチとは逆の理由によるもので、対策の方向も異なります。
GC含量とは:計算方法・融解温度(Tm)との関係・ヒトゲノムの平均
GC含量とは、DNA(またはRNA)の全塩基のうち、GとCが占める割合をパーセントで表したものです。計算式は「(Gの数+Cの数)÷ 全塩基数 × 100」です。たとえば100塩基のうちGが30個、Cが32個なら、GC含量は62%となり、目安のうえではGCリッチに分類されます。GC含量は、ゲノム全体、特定の遺伝子、PCRで増やしたい領域、あるいは20塩基程度のプライマー1本についても計算できます。
GC含量と深く関係するのが、融解温度(Tm:ティーエム)です。DNAの二本鎖は温度を上げると一本鎖にほどけますが、その半分がほどける温度をTmと呼びます。GC含量が高いDNAほどTmは高くなります。ヒト核ゲノム全体の平均GC含量は40.9%で[1]、これはゲノムの中の平均値にすぎません。実際には、ゲノムの中でもGC含量は領域ごとに大きく異なり、遺伝子が密集した領域ではGC含量が高く、遺伝子の少ない領域では低い傾向があります。
💡 用語解説:融解温度(Tm)
Tm(melting temperature)は、DNAの二本鎖のうち半分が一本鎖に分かれる温度です。GとCの割合が高いほど、また配列が長いほどTmは上がります。PCRでは、鋳型DNAを一本鎖にする「変性」と、プライマーを結合させる「アニーリング」の温度を決めるときの基準になります。GCリッチ領域はTmが高いため、通常の変性温度では二本鎖が十分にほどけないことがあります。
GC塩基対はなぜ安定なのか:水素結合3本とスタッキング
GとCが多いDNAが安定な理由として、よく「G-C対は水素結合が3本、A-T対は2本だから」と説明されます。GとCは互いの形がかみ合うように向き合い、3か所で水素結合をつくります。この相補的な塩基対の形成は、2本の鎖が正しい相手を見つけて二本鎖をつくるための重要な仕組みです。ただし、安定性の説明としては、これだけでは十分ではありません。
二重らせんの安定性には、主に2つの力が関わっています。1つは向かい合う塩基どうしの対形成、もう1つは、らせんの上下に隣り合う塩基が平たい面どうしで積み重なって引き合う塩基スタッキングです。DNAのニック(切れ目)やギャップを使って両者の寄与を分けて測定した研究では、A・Tからなる鎖とG・Cからなる鎖の安定性の違いのうち、少なくとも半分はスタッキングの違いで説明されることが示されています[2]。
つまり、GC含量の高いDNAが熱に強いのは、水素結合の本数だけでなく、G-C対を含む並びのスタッキングが強いことも大きな理由です。この理解は、PCRの対策を考えるうえでも役立ちます。後で紹介するDMSOやベタイン、7-deaza-dGTPといった添加剤は、塩基どうしの引き合いを弱めたり、G-C対とA-T対の安定性の差を縮めたりすることで、GCリッチ領域をほどきやすくする方向に働きます。
2. GCリッチ領域はゲノムのどこにあるか:遺伝子発現との関係
プロモーターとCpGアイランド
GCリッチ配列はゲノムに均一に分布しているわけではなく、プロモーターやCpGアイランドなど、遺伝子の働きの調節に関わる領域に多く見られます。プロモーターとは、遺伝子の転写(DNAからRNAを写し取る作業)が始まる場所の周辺にある調節領域で、転写を始めるための因子が集まる場所です。
GCリッチ領域の代表例がCpGアイランドです。CpGとは、Cのすぐ後ろにGが続く並び(CpGジヌクレオチド)のことで、ゲノム全体では少ない並びですが、CpGアイランドと呼ばれる区間ではまとまって見られます。古典的な定義では、長さ200塩基対以上、GC含量50%以上、CpGの観測数と期待数の比が0.6以上の領域をCpGアイランドとしています[3]。その後、研究目的に応じて改訂された定義も提案されていますが、「GとCが多く、CpGがまとまって存在する区間」という骨格は共通しています。
多くのハウスキーピング遺伝子(どの細胞でも常に働いている基本的な遺伝子)やがん抑制遺伝子、そして組織特異的な遺伝子の約40%は、プロモーター領域にGCリッチな配列を持つと報告されています[4]。遺伝子の働きを調べる研究で、プロモーター領域をPCRで増やす必要がある場面は多いのですが、まさにその領域がGCリッチであるために、実験がうまくいかないということが起こります。
💡 用語解説:CpGアイランド
CpGアイランドは、シトシン(C)とグアニン(G)が「C→G」の順に並ぶ部分がまとまって存在する、GCリッチな区間です。多くの遺伝子のプロモーター付近にあり、この部分のシトシンにメチル基が付くかどうかで、遺伝子のスイッチのオン・オフが調節されます。CpGアイランドはGCリッチであるため、PCRやシーケンスで扱いにくい領域の代表でもあります。
DNAメチル化とがん抑制遺伝子のサイレンシング
CpGアイランドのシトシンには、メチル基という小さな化学的な目印が付くことがあります。これをDNAメチル化と呼びます。プロモーターのCpGアイランドがメチル化されると、その遺伝子の働きが抑えられることがあります。DNAの配列そのものは変わらないまま遺伝子のオン・オフが切り替わる、エピジェネティックな調節の代表的な仕組みです。
がんの細胞では、本来は働いているはずのがん抑制遺伝子のプロモーターが異常にメチル化され、遺伝子が働かなくなっている例が知られています。そのため、がん研究や遺伝学的検査では、特定のプロモーターがメチル化されているかどうかをPCRで調べる解析(メチル化特異的PCRなど)が行われます。
ここでも、GCリッチであることが壁になります。代表的ながん抑制遺伝子であるp16INK4A(ピーじゅうろく・インクフォーエー)のプロモーターは、GCリッチで高次構造をつくりやすく、PCR産物を得ることや配列を読むことが難しい領域として知られていました。このプロモーターについて、dGTPの代わりに7-deaza-dGTPという類似体を使うことで、全長のPCR産物が得られ、シーケンスでも読めなかった部分が読めるようになったと報告されています[5]。GCリッチ領域の生物学的な重要性と、実験上の扱いにくさは、表裏一体の関係にあるといえます。
3. なぜGCリッチ領域はPCRで増幅しにくいのか
結論から言うと、GCリッチ領域がPCRで増えにくい主な理由は、二本鎖が解離しにくいこと(変性不良)と、ヘアピンなどの二次構造ができてDNAポリメラーゼが止まることです。さらに、標的に合わせて設計したプライマーのTmや二次構造、アニーリング条件の調整が難しくなることがあります。GCリッチな鋳型のPCRは、ヘアピンのような二次構造と高い融解温度によって妨げられやすいとされています[6]。
PCRは、鋳型DNAを加熱して一本鎖にする「変性」、プライマーを結合させる「アニーリング」、DNAポリメラーゼが新しい鎖を合成する「伸長」の3つの段階を繰り返して、目的の領域を増やす方法です。GCリッチ領域では、この3つの段階すべてに問題が起こりえます。下の図で、各段階で何が起きているかを整理します。
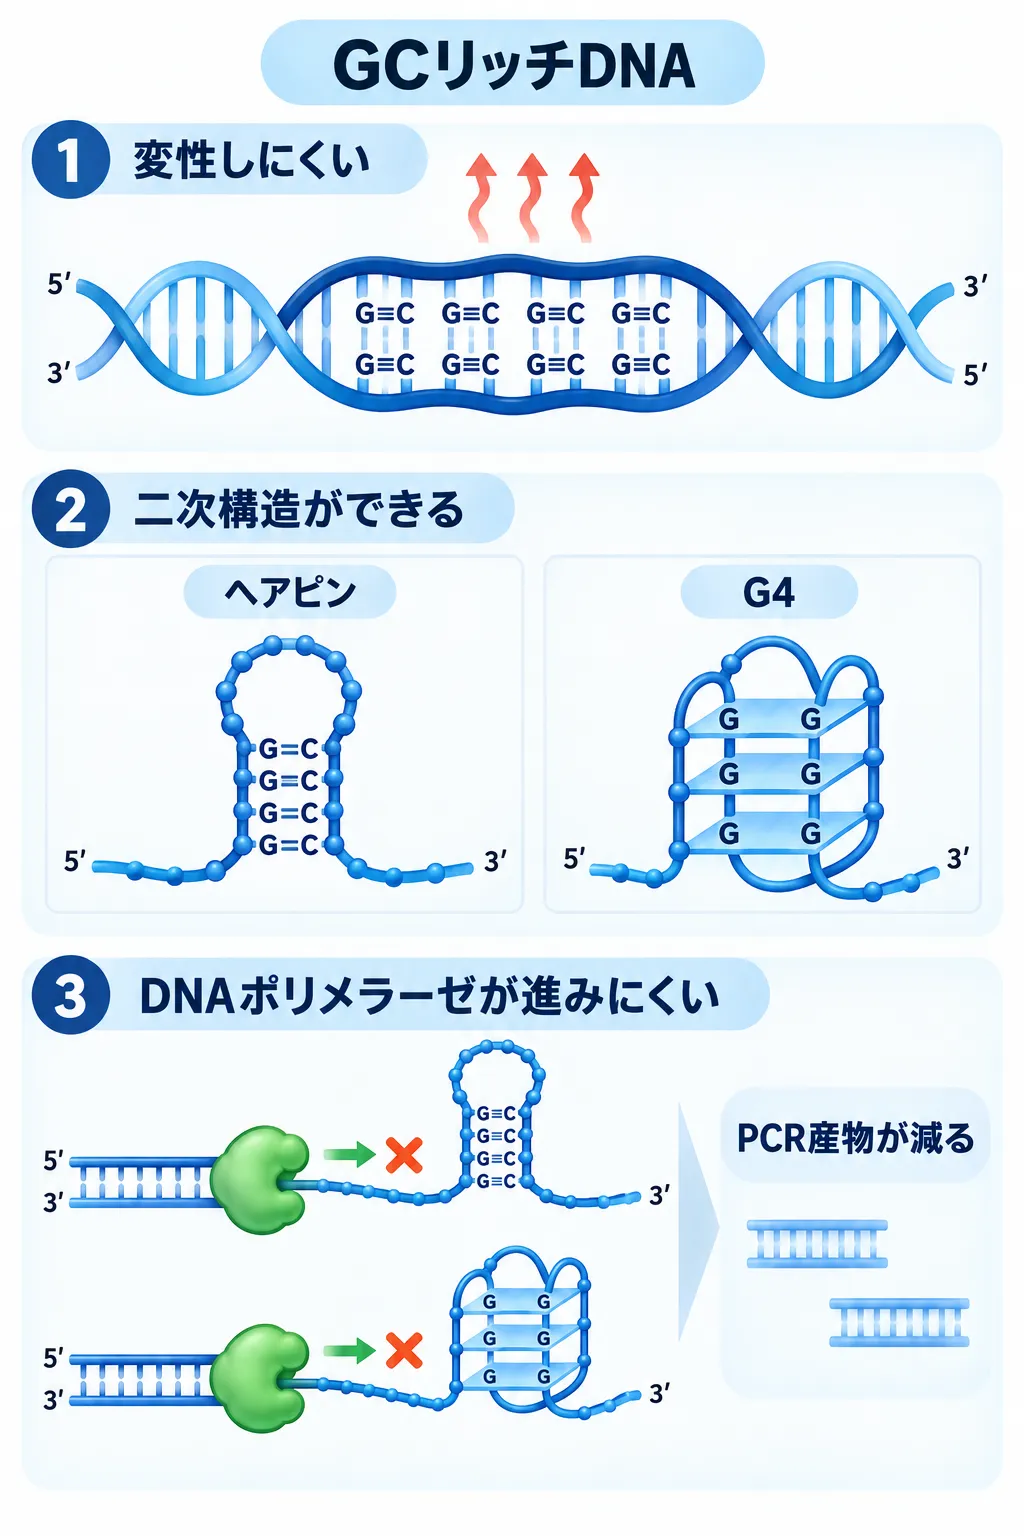
GCリッチDNAは融解温度が高く、PCRの熱変性で二本鎖が十分に分離しにくい傾向があります。また、一本鎖になった後もヘアピンやG4などの二次構造を形成し、DNAポリメラーゼの伸長を妨げることで、PCR産物が減少することがあります。
二本鎖が解離しにくい(変性不良)
PCRの最初の段階では、鋳型DNAを通常94〜98℃程度に加熱して一本鎖にします。ところがGCリッチ領域はTmが高いため、通常の温度と時間では二本鎖が完全にはほどけないことがあります。ほどけ残った部分にはプライマーが結合できず、DNAポリメラーゼも鋳型を読めません。その結果、目的の産物がほとんど増えない、あるいは増えても量が少ないという状態になります。
加えて、一度ほどけた鎖も、温度が下がる過程で相補鎖と素早く元の二本鎖に戻ろうとします。GCリッチ領域ではこの戻る力が強いため、プライマーが結合する前に鋳型どうしが再会合し、増幅効率が下がります。PCRは各サイクルで産物がおよそ倍になる反応なので、わずかな効率低下も最終的な産物量に大きく響きます。
ヘアピン・グアニン四重鎖などの二次構造でポリメラーゼが止まる
一本鎖になったDNAは、自分自身の中で相補的な部分どうしが対をつくり、折れ曲がった形をとることがあります。これを二次構造と呼び、代表的なものがヘアピンループ(ステムループ)です。GCリッチな配列では、この折れ曲がりの「茎」の部分がG-C対で固く結ばれるため、PCRの反応温度でも構造がほどけにくくなります。
また、Gが連続して並ぶ配列では、4本のGの並びが平面状に集まってグアニン四重鎖(G4)と呼ばれる特殊な構造をつくりうることが知られています。こうした構造が鋳型の上にあると、鋳型をなぞって新しい鎖を合成していくDNAポリメラーゼが、その手前で止まったり外れたりします。途中で止まった短い産物は目的の長さに届かず、電気泳動でスメア(帯状のにじみ)や短いバンドとして見えることがあります。
プライマーの非特異的結合・プライマーダイマー
GCリッチ領域を増やすためのプライマーは、それ自体もGCを多く含むことがあります。GC含量が高すぎるプライマーや、G・Cが局所的に連続するプライマーでは、Tmが高くなり、ヘアピンなどの二次構造やプライマーどうしの結合が生じやすくなることがあります。ただし、GCが多いだけで非特異的結合が決まるわけではなく、配列の相補性、プライマー長、アニーリング温度などを合わせて評価する必要があります。
反復配列を含むGCリッチ領域では、プライマーが本来の位置から少しずれた場所にも結合できてしまうため、長さの異なる複数のバンドが出ることもあります。GC含量57%のDNAを使った研究では、添加剤なしでは複数の非特異的なバンドが出ていました[7]。「産物が出ない」だけでなく「余計な産物が出る」ことも、GCリッチ領域のPCRでよく見られる問題です。
💡 用語解説:プライマーダイマー
プライマーは、増やしたい領域の両端に結合させる短いDNA断片です。プライマーダイマーとは、2本のプライマーが鋳型ではなくプライマーどうしで結合し、その短い断片が増幅されてしまう現象です。電気泳動では、目的の産物よりずっと短い位置に帯として現れます。特にプライマーの3’末端どうしに相補性があると起こりやすいため、設計段階での確認が大切です。
🩺 院長コラム【「増えない」「読めない」には理由がある】
遺伝学的検査の報告書を読んでいると、「この領域は解析できなかった」「この部分はカバレッジが不十分だった」といった但し書きに出会うことがあります。その背景の一つが、今回のテーマであるGCリッチ配列です。配列のせいで技術的に読み取りにくい場所がある、という事実は、検査の結果をどう受け止めるかにも関わってきます。
「異常が見つからなかった」という結果は、「その領域を十分に調べられたうえで異常がなかった」のか、「十分に調べられなかった」のかで意味が変わります。臨床遺伝専門医として検査結果をご説明するときには、何が分かったかだけでなく、技術的な限界も含めてお伝えするようにしています。
4. GCリッチ領域をPCRで増幅するための対策
GCリッチ領域のPCRを改善する方法は、大きく分けて、反応液に添加剤を加える方法、温度条件を変える方法、酵素やバッファーを選ぶ方法、プライマーを設計し直す方法の4つです。どれか1つで必ず解決するというものではなく、配列や使用する酵素によって効く方法が異なるため、いくつかを組み合わせて試すのが一般的です。
DMSOの役割と濃度
DMSO(ジメチルスルホキシド)は、GCリッチ領域のPCRで最もよく使われる添加剤の一つです。DNAの塩基どうしの対形成を弱めてTmを下げ、二次構造をほどきやすくすることが主な役割です。これにより変性がしやすくなり、プライマーが目的の位置に結合しやすくなるため、特異性の改善につながります。
GC含量57%のDNAを用いた研究では、添加剤なしでは非特異的なバンドが複数出ていましたが、ホルムアミド、グリセロール、DMSOなどを加えると、期待される大きさの単一のバンドが得られるようになりました。一方で、尿素やエタノールなどは増幅そのものを阻害しており[7]、添加剤なら何でもよいわけではないことも示されています。
濃度については注意が必要です。実務上は数%程度から試されることが多いのですが、濃度を上げすぎるとDNAポリメラーゼ自体の働きが阻害されます。10%のDMSOを用いた研究では、DMSOによる酵素阻害を補うため、DNAポリメラーゼ量を増やして反応を行っていました[7]。至適濃度は配列や酵素によって異なるため、固定の推奨値として覚えるより、「少量から段階的に試し、高濃度では酵素阻害に注意する」と理解しておくのが現実的です。また、DMSOを加えるとプライマーのTmも下がるため、アニーリング温度の見直しが必要になる場合があります。
ベタイン・ホルムアミド・7-deaza-dGTPとの違い
ベタインは、GCリッチ領域がつくる二次構造を減らすことでPCRを改善すると考えられている添加剤です[8]。G-C対とA-T対の安定性の差を縮める方向に働くとされ、GCリッチな部分だけが極端にほどけにくい状態を和らげます。同じ研究では、最適なベタイン濃度は増幅する配列の組成によって異なり、ある標的では約2.5 Mが最適であったと報告されています[8]。DMSOとベタインを組み合わせることで、GCリッチな配列の増幅が大きく改善したという報告もあります[9]。
7-deaza-dGTP(セブン・デアザ・ディージーティーピー)は、DNAの材料であるdGTPの一部を置き換えるヌクレオチド類似体です。グアニンの特定の位置の窒素が炭素に置き換わっているため、塩基どうしの余分な相互作用が弱まり、合成されたDNAが二次構造をつくりにくくなります。7-deaza-dGTPの添加と、温度変化の速度を落とした独自の温度サイクルを組み合わせた「Slowdown PCR」では、GC含量が83%を超える極端な標的の増幅に成功したと報告されています[6]。
🧪 GCリッチPCRで使われる主な添加剤の比較
| 添加剤 | 主な働き | 注意点 |
|---|---|---|
| DMSO | 塩基対形成を弱めTmを下げ、二次構造をほどく | 高濃度で酵素を阻害。アニーリング温度の再調整が必要な場合がある |
| ベタイン | G-C対とA-T対の安定性の差を縮め、二次構造を減らす | 最適濃度は配列によって異なる |
| ホルムアミド | DMSOと同様に変性を助け、特異性を改善 | 濃度が高いと酵素を阻害 |
| 7-deaza-dGTP | dGTPの一部を置き換え、合成DNAの二次構造を弱める | 産物をその後どう使うかに応じて適否を確認する |
※至適条件は配列・酵素・反応系によって異なります。表は一般的な傾向を示したものです。
温度条件:変性温度を上げる・アニーリング温度の考え方・2ステップPCR
変性不良への対策としてまず考えられるのが、変性温度を上げることです。たとえば94℃ではなく98℃に設定し、その代わりに酵素の失活を避けるため保持時間を短くする、といった調整が実践例として知られています。高温での保持が長すぎると酵素の働きが落ちるため、温度は上げ、時間は短くが基本です。
アニーリング温度については、「GCリッチだから下げればよい」という単純な話ではありません。アニーリング温度を下げすぎると、プライマーが目的外の場所に結合しやすくなり、非特異的な産物が増えます。逆に上げすぎると、プライマーが結合しにくくなって目的の産物も減ります。基本はプライマーのTmを基準に設定し、非特異的な産物が出る場合は上げ、産物が出ない場合は下げる、という方向で調整します。アニーリング温度の一般的な決め方は、PCRにおけるアニーリングの解説で詳しく扱っています。
もう一つの選択肢が2ステップPCRです。通常のPCRは変性・アニーリング・伸長の3段階ですが、2ステップPCRではアニーリングと伸長を同じ温度(たとえば68℃前後)でまとめて行います。高い温度のまま合成を進めるため、鋳型の二次構造が再形成されにくくなり、GCリッチ領域で有効な場合があります。前述のSlowdown PCRのように、温度を上げ下げする速度そのものを遅くして、プライマーの結合と合成をじっくり進める方法も報告されています[6]。
GCリッチ対応のDNAポリメラーゼとバッファー
試薬メーカー各社からは、GCリッチな標的の増幅を想定したDNAポリメラーゼや、専用のGCバッファー、エンハンサーが付属した製品が提供されています。これらは、変性を助ける成分をあらかじめ含んでいたり、二次構造があっても合成を続けやすい性質の酵素を用いていたりするもので、添加剤を一から検討する手間を減らせる場合があります。
ただし、製品ごとに対応できるGC含量の目安や推奨条件は異なり、製品の改良によって変わることもあります。そのため、使用する製品の最新の説明書に従って条件を設定し、それでも増えない場合は添加剤や温度条件と組み合わせて検討します。
プライマー設計のポイント
プライマー設計の見直しも、GCリッチ領域の対策として欠かせません。考え方は2つに分けると整理しやすくなります。1つは「増やしたい配列がGCリッチな場合」で、この場合は高い反応温度でも結合できるよう、Tmの高いプライマーを用いるのが基本です。反応全体を高温で行えるほど、鋳型の二次構造がほどけた状態を保ちやすくなります。
もう1つは「プライマー自体の組成」で、一般にプライマーのGC含量は40〜60%程度が設計上の目安とされます。ただし、GC含量だけで良否は決まりません。3’末端(合成が始まる側の端)にGやCが偏りすぎる設計や、末端でG・Cが連続する設計は、非特異的な伸長や二次構造の原因になりうるため避けます。また、プライマーどうしやプライマー自身が相補的にならないかも確認します。具体的な設計の手順はプライマー設計のための遺伝子バリアント位置の確認方法も参考になります。
5. 症状別トラブルシューティング
GCリッチ領域のPCRで困ったときは、電気泳動の結果から「何が起きているか」を読み取り、それに合った対策を選ぶと効率的です。下の表は、よく見られる症状ごとに、考えられる原因と次に試すことをまとめたものです。
🔧 GCリッチPCRの症状別トラブルシューティング
| 症状 | 考えられる原因 | 次に試すこと |
|---|---|---|
| 目的の産物が出ない | 変性不良、強い二次構造、酵素の阻害 | 変性温度を上げ時間を短く/DMSO・ベタインの添加/GCリッチ対応酵素・バッファー |
| 余分なバンドが出る | アニーリング温度が低い、プライマーの非特異的結合 | アニーリング温度を上げる/添加剤で特異性を改善/プライマーの再設計 |
| 目的のバンドが薄い | 増幅効率の低下、二次構造による合成の停止 | 伸長時間の延長/2ステップPCR/添加剤の組み合わせ |
| スメア・短いバンド | ポリメラーゼが途中で停止、鋳型量が多すぎる | 7-deaza-dGTPの使用/鋳型量の見直し/酵素の変更 |
| プライマーダイマー | プライマーどうしの相補性、GCの多いプライマー | プライマーの再設計/プライマー濃度の調整 |
※複数の症状が重なっている場合は、条件を1つずつ変えて効果を確かめると原因を絞り込みやすくなります。
「目的の産物が出ない」場合、真っ先にサイクル数を増やしたくなるかもしれません。しかしサイクル数を増やすと、目的外の産物やプライマーダイマーも一緒に増えやすくなります。まずは変性の条件や添加剤など、増えない原因そのものに働きかける対策を優先します。
「余分なバンドが出る」場合は、特異性の問題です。アニーリング温度を段階的に上げる、DMSOなどで特異性を高める、プライマーを別の位置に設計し直す、といった対策が考えられます。
6. GCリッチ領域とシーケンス
サンガー法で読みにくい理由と対策
DNAの配列を1塩基ずつ読み取るサンガー法は、PCRと同じくDNAポリメラーゼによる合成反応を利用しています。そのため、GCリッチ領域の二次構造はシーケンスでも問題になります。ポリメラーゼが二次構造の手前で止まると、そこから先の配列が読めなくなったり、波形が急に弱くなったりします。電気泳動の段階で分離がうまくいかず、隣り合う塩基のピークが重なる「バンド圧縮」が起きることもあります。
標準的な方法では読めない難読テンプレートに対しては、プライマーの位置を工夫するよりも、その領域に適した化学組成(修飾ヌクレオチドや添加剤を含む反応液)を用いることが有効だとする報告があります[10]。前述の7-deaza-dGTPを取り込ませたPCR産物では、GCリッチなために読めなかった部分がシーケンスで読めるようになったという報告もあります[5]。
NGSのGCバイアス
次世代シークエンサー(NGS)は、大量のDNA断片を並行して読み取る技術です。NGSでも、GC含量が極端に高い、または低い領域は、読み取られる量が少なくなったり、まったく読まれなかったりすることが知られています。これをGCバイアスと呼びます。解析では、各領域が何回読まれたか(カバレッジ)を確認しますが、GCリッチ領域はこのカバレッジが下がりやすいのです。
Illumina社のシーケンサーを用いた研究では、GC含量6〜90%の配列を追跡した結果、ライブラリ(読み取り用に準備したDNA断片の集まり)を調製する段階のPCRが、GCバイアスの主な原因であることが示されました[11]。この研究では、PCR条件を最適化することでバイアスが大きく減り、PCRを使わないライブラリではGCリッチ領域のカバレッジがより保たれていました[11]。この報告は2011年時点のものであり、その後の試薬や手法の改良でバイアスは改善されてきていますが、GCリッチ領域がNGSで読みにくい傾向そのものは、現在も解析上の注意点として残っています。
7. 遺伝学的検査とGCリッチ領域
GCリッチ領域の扱いにくさは、研究室の実験だけの問題ではありません。遺伝性疾患の中には、原因となる遺伝子の変化そのものがGCリッチな反復配列の伸びであるものがあり、その場合は「GCリッチであること」が検査法の選択に直接影響します。その代表が、脆弱X症候群(ぜいじゃくエックスしょうこうぐん)です。
脆弱X症候群は、X染色体上のFMR1(エフエムアールワン)遺伝子にある「CGG」という3塩基の繰り返しが、異常に長くなることで起こります。このように3塩基の繰り返しが伸びて病気につながる仕組みは、リピート伸長(トリプレットリピート病)と呼ばれます。CGGはGとCだけでできた並びなので、繰り返しが長くなるほど、そこは極めてGCリッチな領域になります。
米国臨床遺伝・ゲノム学会(ACMG)の技術標準では、FMR1のアレル(遺伝子の型)を繰り返し数によって、正常型、中間型、前変異、完全変異の4つに分類しています[12]。目安として、正常型は約5〜44回、中間型は45〜54回、前変異は55〜200回、完全変異は200回を超える繰り返しです。ただし、約200回まで測定できる通常PCRだけで、完全変異を含むすべてのアレルを十分に評価できるとは限りません。検査法ごとに、検出できるリピート長、メチル化状態、サイズモザイクの評価能力が異なるため、目的に応じてリピートプライムドPCR、長鎖PCR、メチル化解析、サザンブロット法などを組み合わせます[12]。この区分は検査結果を報告するための分類であり、個人がどの程度の確率で症状を示すかを直接表すものではありません。
問題は、完全変異のように繰り返しが非常に長い場合、GCリッチすぎて通常のPCRでは増幅しきれないことです。かつては、PCRで増えない大きなアレルを検出するためにサザンブロット法という手間のかかる方法が必要でした。そこで開発されたのがリピートプライムドPCR(rpPCR)です。反復配列の両側に結合する2本のプライマーに加え、CGGリピートそのものに結合する3本目のプライマーを使う方法で、ある研究ではサザンブロット法が報告したすべてのアレルを検出し、最大で1300回に及ぶCGGを含む完全変異も捉えられました[13]。
💡 用語解説:リピートプライムドPCR(rpPCR)
通常のPCRは、増やしたい領域の両端に結合する2本のプライマーを使います。リピートプライムドPCRでは、これに加えて反復配列の中に結合する3本目のプライマーを使うため、繰り返しのいろいろな位置から少しずつ長さの違う産物ができます。その産物を並べると「はしご」のような波形になり、繰り返しが長すぎて全長を増やせない場合でも、伸長したアレルの存在を検出できます。
このように、GCリッチ配列の扱いにくさは、検査法の進歩によって少しずつ克服されてきました。一方で、どの検査にも得意・不得意があり、結果の解釈には技術的な限界を踏まえる必要があります。FMR1遺伝子の検査については、FMR1遺伝子リピート伸長検査のページで扱っています。
🩺 院長コラム【検査法の選び方も「配列の性質」で変わる】
遺伝学的検査というと、どの病気も同じ方法で調べられるような印象を持たれるかもしれません。実際には、調べたい遺伝子の変化の種類によって、向いている検査法が変わります。点の変化を調べるのに向いた方法もあれば、今回のCGGリピートのように、長く伸びた反復配列を捉えるための専用の方法が必要な場合もあります。
GCリッチという配列の性質は、その「どの方法を選ぶか」を左右する要素の一つです。臨床遺伝専門医として検査をご案内するときは、調べたい変化の性質に合った方法が選ばれているか、その方法で何が分かり何が分からないかを整理してお伝えすることを大切にしています。
まとめ
GCリッチとは、DNA配列のうちグアニン(G)とシトシン(C)の割合が高い領域のことで、GC含量60%以上が慣用的な目安です。GCの多いDNAが安定なのは、G-C対の水素結合が3本であることに加え、塩基どうしのスタッキングの寄与が大きいためです[2]。GCリッチ領域はプロモーターやCpGアイランドなど遺伝子の働きを調節する場所に多く、研究や検査で調べたい重要な領域であることが少なくありません。
一方で、GCリッチ領域は変性しにくく、二次構造をつくりやすいため、PCRでもシーケンスでも扱いにくい領域です。変性温度の調整、DMSOやベタイン、7-deaza-dGTPなどの添加剤、GCリッチ対応の酵素とバッファー、プライマー設計の見直しを、症状に合わせて1つずつ組み合わせることが、解決への現実的な進め方です。脆弱X症候群のFMR1遺伝子のように、GCリッチであること自体が検査法の選択に関わる例もあり、配列の性質を知ることは、検査結果を正しく理解することにもつながります。
よくある質問(FAQ)
Q1. GCリッチは何%からですか?
公式に統一された基準はありませんが、実験の現場ではGC含量60%以上を目安にすることが多く、資料によっては60〜70%以上とされることもあります。ヒトゲノム全体の平均GC含量は40.9%で、それより明らかに高い領域ではPCRやシーケンスが難しくなりやすくなります。同じGC含量でも、狭い範囲にGCが集中している配列ほど扱いにくい傾向があります。
Q2. なぜGCリッチはPCRで増えにくいのですか?
主な理由は、二本鎖が解離しにくく変性が不十分になること、ヘアピンなどの二次構造ができてDNAポリメラーゼが途中で止まることです。加えて、標的に合わせたプライマーのGC含量が高くなると、二次構造やプライマーダイマーへの配慮が必要です。これらが重なると、産物が出ない、余分なバンドが出る、バンドが薄いといった結果になります。
Q3. DMSOは何%入れればよいですか?
至適濃度は配列や使用する酵素によって異なるため、固定の推奨値はありません。実務上は数%程度から段階的に試されることが多い一方、濃度を上げすぎるとDNAポリメラーゼの働きが阻害されます。DMSOはプライマーのTmも下げるため、加えた場合はアニーリング温度の見直しが必要になることがあります。使用する酵素の説明書も確認してください。
Q4. DMSOとベタインの違いは何ですか?
どちらもGCリッチ領域の二次構造を減らしてPCRを改善する添加剤ですが、作用の仕方が異なります。DMSOは塩基対の形成を弱めてTmを下げる溶媒として働き、ベタインはG-C対とA-T対の安定性の差を縮める方向に働くとされています。どちらが効くかは配列によって異なり、両者を組み合わせて改善したという報告もあります。
Q5. ATリッチとの違いは何ですか?
ATリッチはアデニン(A)とチミン(T)の割合が高い領域で、GCリッチとは逆に二本鎖が不安定でTmが低いことが特徴です。GCリッチでは「ほどけにくい・二次構造が強い」ことが問題になるのに対し、ATリッチでは「結合が弱くプライマーが安定して結合しにくい」ことが問題になります。
Q6. GCリッチだとシーケンスも難しいのですか?
難しくなることがあります。サンガー法ではDNAポリメラーゼが二次構造の手前で止まり、そこから先が読めなくなることがあります。NGSでは、GCリッチ領域の読み取り量(カバレッジ)が下がりやすいGCバイアスが知られており、ライブラリ調製時のPCRが主な原因の一つとされています。修飾ヌクレオチドや添加剤を用いた専用の条件で改善できる場合があります。
Q7. ミネルバクリニックでPCR実験の条件相談や解析の依頼はできますか?
いいえ、当院では研究目的のPCR実験の条件相談や受託解析は行っておらず、この件についてのご予約・お問い合わせもお受けしていません。実験条件については、ご使用の試薬メーカーの技術サポートや、所属機関の研究支援部門へご相談ください。
🏥 GCリッチ領域のPCR・シーケンスについて
当院では、研究目的のPCR実験の条件相談・受託解析・シーケンス解析を行っておりません。
この件についてのご予約・お問い合わせはお受けしておりません。
実験条件については、ご使用の試薬メーカーの技術サポートや、所属機関の研究支援部門へご相談ください。
この記事は用語と仕組みを正しく知っていただくための解説であり、当院での診療をご案内するものではありません。なお、他の診療の過程で具体的な遺伝学的評価が必要と判断された場合に限り、遺伝カウンセリングが関係することがあります。
参考文献
- [1] Piovesan A, Pelleri MC, Antonaros F, Strippoli P, Caracausi M, Vitale L. On the length, weight and GC content of the human genome. BMC Res Notes. 2019;12(1):106. doi:10.1186/s13104-019-4137-z. PMID:30813969. [PMC6391780]
- [2] Yakovchuk P, Protozanova E, Frank-Kamenetskii MD. Base-stacking and base-pairing contributions into thermal stability of the DNA double helix. Nucleic Acids Res. 2006;34(2):564-574. doi:10.1093/nar/gkj454. PMID:16449200. [PubMed]
- [3] Gardiner-Garden M, Frommer M. CpG islands in vertebrate genomes. J Mol Biol. 1987;196(2):261-282. doi:10.1016/0022-2836(87)90689-9. PMID:3656447. [PubMed]
- [4] Hubé F, Reverdiau P, Iochmann S, Gruel Y. Improved PCR method for amplification of GC-rich DNA sequences. Mol Biotechnol. 2005;31(1):81-84. doi:10.1385/MB:31:1:081. PMID:16118416. [PubMed]
- [5] Jung A, Ruckert S, Frank P, Brabletz T, Kirchner T. 7-Deaza-2′-deoxyguanosine allows PCR and sequencing reactions from CpG islands. Mol Pathol. 2002;55(1):55-57. doi:10.1136/mp.55.1.55. PMID:11836448. [PMC1187147]
- [6] Frey UH, Bachmann HS, Peters J, Siffert W. PCR-amplification of GC-rich regions: ‘slowdown PCR’. Nat Protoc. 2008;3(8):1312-1317. doi:10.1038/nprot.2008.112. PMID:18714299. [PubMed]
- [7] Varadaraj K, Skinner DM. Denaturants or cosolvents improve the specificity of PCR amplification of a G + C-rich DNA using genetically engineered DNA polymerases. Gene. 1994;140(1):1-5. doi:10.1016/0378-1119(94)90723-4. PMID:8125324. [PubMed]
- [8] Henke W, Herdel K, Jung K, Schnorr D, Loening SA. Betaine improves the PCR amplification of GC-rich DNA sequences. Nucleic Acids Res. 1997;25(19):3957-3958. doi:10.1093/nar/25.19.3957. PMID:9380524. [PubMed]
- [9] Jensen MA, Fukushima M, Davis RW. DMSO and betaine greatly improve amplification of GC-rich constructs in de novo synthesis. PLoS One. 2010;5(6):e11024. doi:10.1371/journal.pone.0011024. PMID:20552011. [PubMed]
- [10] Kieleczawa J. Effect of primer proximity to a difficult-to-sequence region on read length and sequence quality. J Biomol Tech. 2008;19(5):335-341. PMID:19183797. [PMC2628072]
- [11] Aird D, Ross MG, Chen WS, et al. Analyzing and minimizing PCR amplification bias in Illumina sequencing libraries. Genome Biol. 2011;12(2):R18. doi:10.1186/gb-2011-12-2-r18. PMID:21338519. [PubMed]
- [12] Spector E, Behlmann A, Kronquist K, et al. Laboratory testing for fragile X, 2021 revision: a technical standard of the American College of Medical Genetics and Genomics (ACMG). Genet Med. 2021;23(5):799-812. doi:10.1038/s41436-021-01115-y. PMID:33795824. [PubMed]
- [13] Chen L, Hadd A, Sah S, et al. An information-rich CGG repeat primed PCR that detects the full range of fragile X expanded alleles and minimizes the need for southern blot analysis. J Mol Diagn. 2010;12(5):589-600. doi:10.2353/jmoldx.2010.090227. PMID:20616364. [PubMed]






