

目次
- 1 1. CaMKIIとは ─ カルシウム信号を読み取る酵素
- 2 2. 分子のかたち ─ ドーナツ型に集まった酵素
- 3 3. 活性化の流れ ─ 自己リン酸化という記憶
- 4 4. 4つのアイソフォーム ─ 脳と心臓で異なる主役
- 5 5. 記憶とシナプス ─ CaMKIIが学習に必須である証拠
- 6 6. 「酵素か足場か」 ─ 記憶をめぐる最新の論争
- 7 7. 脳の病気との関係 ─ 神経発達症・てんかんから神経変性まで
- 8 8. 心臓と創薬 ─ 不整脈・心不全と新しい薬
- 9 9. 遺伝診療との接点 ─ CaMKIIの変化をどう読むか
- 10 10. よくある誤解
- 11 まとめ ─ 「記憶の分子」の新しい姿
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

脳が新しいことを覚えるとき、細胞の中では無数の分子が働いています。その主役の一つがCaMKII(Ca²⁺/カルモジュリン依存性プロテインキナーゼII/カムキナーゼ・ツー)です。CaMKIIは、神経細胞に流れ込むカルシウム(Ca²⁺)の信号を読み取り、それを記憶の土台となる変化へと変換する酵素です。長いあいだ「記憶を保存するスイッチ」と考えられてきましたが、近年の研究はそのイメージを大きく描き直しつつあります。さらにCaMKIIは、知的障害やてんかんといった神経の病気、そして不整脈や心不全といった心臓の病気とも深く関わり、いま新しい薬の標的としても注目されています。この記事では、CaMKIIとは何か、記憶とどうつながるのか、そして遺伝性の病気や最新の創薬とどう結びつくのかを、遺伝医学の観点から解説します。
Q. CaMKIIとは何ですか?まず結論だけ知りたいです
A. CaMKII(Ca²⁺/カルモジュリン依存性プロテインキナーゼII)は、細胞内のカルシウム濃度が上がったことをきっかけに、他のタンパク質にリン酸という目印を付ける酵素(リン酸化酵素・キナーゼ)です。特に脳の神経細胞に多く、記憶や学習の基盤となるシナプスの変化に欠かせません。自分自身にリン酸を付ける「自己リン酸化」によって、カルシウムが下がったあとも働き続けられるのが最大の特徴で、これが「カルシウム信号を記憶する分子」と呼ばれる理由です。CaMKIIをつくる遺伝子(CAMK2A・CAMK2B など)の変化は知的障害やてんかんの原因になり、心臓のCaMKIIは不整脈や心不全に関わります。
- ➤正体 → カルシウム信号を受けて他のタンパク質をリン酸化する、脳に豊富な酵素
- ➤特徴 → 自己リン酸化でカルシウムが下がっても活性が続く(自律的活性)
- ➤記憶との関係 → シナプスの強化(LTP)や空間学習に必須であることが動物実験で確立
- ➤最新の見方 → 「酵素として働き続ける」より「分子の足場・組織化役」という側面が重視されつつある
- ➤病気との関わり → CAMK2A/CAMK2Bの変化は神経発達症・てんかんの原因に。心臓型は不整脈・心不全に関与し、創薬が進行中
🧬 CaMKIIの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | カムキナーゼ・ツー/Ca²⁺/カルモジュリン依存性プロテインキナーゼII(calcium/calmodulin-dependent protein kinase II) |
| 種類 | セリン/スレオニン型のリン酸化酵素(キナーゼ)。多数の同じ部品が集まった多量体で働く |
| おもな遺伝子 | CAMK2A(α型)、CAMK2B(β型)、CAMK2G(γ型)、CAMK2D(δ型)の4種類 |
| 主なはたらき | カルシウム信号の読み取り、シナプス可塑性、記憶・学習、心臓のカルシウム制御 |
| 最大の特徴 | 自己リン酸化(Thr286/Thr287)により、カルシウムが下がっても活性が持続する[1] |
| 医療との関わり | 神経発達症・てんかんの原因遺伝子であり、心疾患では治療薬の標的として臨床試験が進行中 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. CaMKIIとは ─ カルシウム信号を読み取る酵素
私たちの細胞では、カルシウムイオン(Ca²⁺)が重要な信号として使われています。ふだんは細胞の中のカルシウム濃度は低く抑えられていますが、神経細胞が刺激を受けると、ごく短時間だけカルシウムが一気に流れ込みます。この「カルシウムの波」を受け取って、細胞の中の変化へと翻訳する装置の一つがCaMKIIです。
CaMKIIは、キナーゼ(リン酸化酵素)という酵素の一種です。キナーゼは、標的となるタンパク質に「リン酸」という小さな目印を付けることで、その相手の働きをオンにしたりオフにしたりします。この目印付けをリン酸化と呼びます。CaMKIIは、カルシウムそのものではなく、カルシウムと結びついた「カルモジュリン」というセンサータンパク質を目印にして活性化します。名前にある「Ca²⁺/カルモジュリン依存性」とは、この二段構えの仕組みを指しています。
💡 用語解説:カルモジュリン(calmodulin/CaM)
カルモジュリンは、細胞の中でカルシウムを感じ取る「センサー役」のタンパク質です。カルシウム濃度が上がるとカルシウムと結合して形を変え、その形の変化を使ってCaMKIIをはじめとする多くの酵素のスイッチを入れます。CaMKIIは単独ではカルシウムを直接感じることができず、カルモジュリンを介してはじめて活性化します。
CaMKIIの大きな特徴は、単純に「カルシウムが上がったら働き、下がったら止まる」酵素ではないことです。活性化したCaMKIIは、自分自身にもリン酸を付ける自己リン酸化という反応を起こします。この自己リン酸化が起きると、カルシウムが下がったあとでもCaMKIIは活性を保ち続けます。この「カルシウムがなくても働き続ける状態」を自律的活性(オートノミー)と呼びます。1986年、ミラーとケネディは、自己リン酸化を受けたCaMKIIがカルシウムを取り除いても基質へのリン酸化を続けることを示し、この酵素を「カルシウムが引き金を引く分子スイッチ」と表現しました[1]。
つまりCaMKIIは、一瞬のカルシウム信号を受け取って、しばらく続く活性状態に変換する装置だと言えます。このため古くから、CaMKIIは「一度きりの電気的な出来事を、長く続く分子の変化に翻訳する」記憶の担い手として注目されてきました。ただし後で述べるように、その「翻訳」が具体的に何を意味するのかは、いまも活発に議論されています。
2. 分子のかたち ─ ドーナツ型に集まった酵素
CaMKIIの一つ一つの部品(サブユニット)は、大きく4つの領域からできています。相手をリン酸化する「キナーゼドメイン」、ふだんは酵素活性にブレーキをかけている「調節領域」、長さがさまざまに変わる「リンカー(つなぎの部分)」、そして複数の部品を束ねる「ハブ(結合ドメイン)」の4つです。
CaMKIIがユニークなのは、この部品が単独では働かず、ハブどうしが集まってドーナツ(環)状の巨大な複合体をつくることです。中心にハブのリングがあり、その周りからキナーゼドメインが放射状に伸びる、花火のような形をしています。完全な複合体(ホロ酵素)は多くの場合12個の部品からなりますが、14個で組み上がるものも観察されており、部品の数そのものが調節に関わる可能性が検討されています。同じCaMKIIでも、リンカーの長さが遺伝子のスプライシング(設計図の読み分け)によって大きく変わるため、カルシウムへの感じやすさや複合体の形にも幅が生まれます。
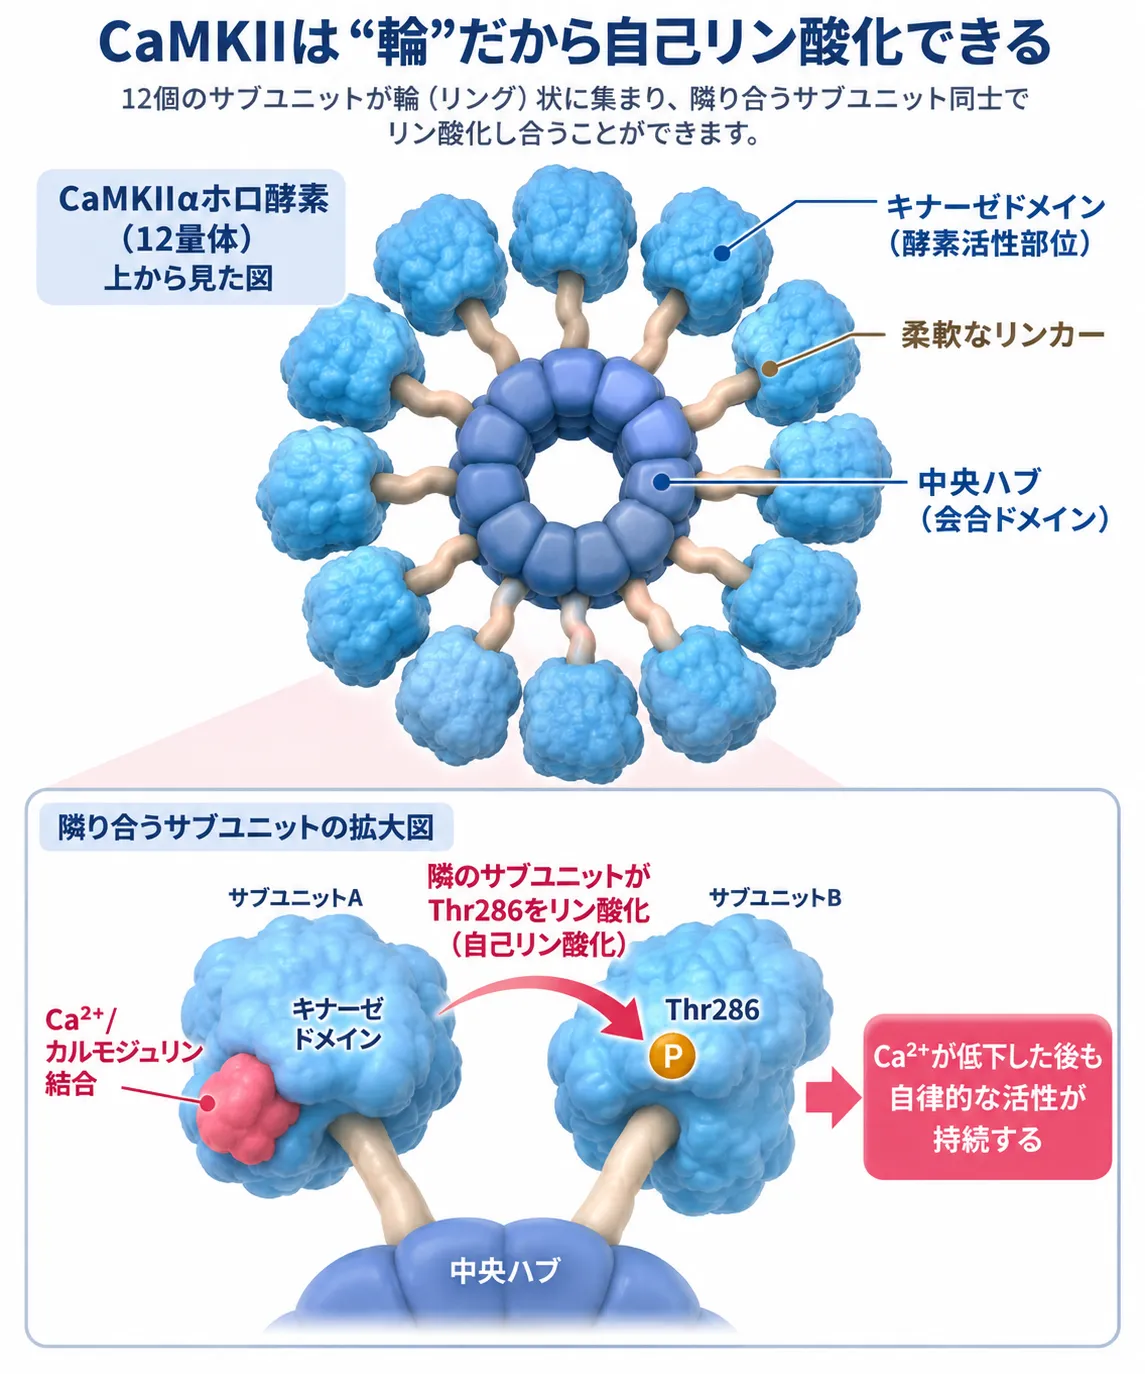
CaMKIIαは複数のサブユニットが中央のハブを介して環状のホロ酵素を形成します。Ca²⁺/カルモジュリンによって活性化されると、隣接するサブユニット間でThr286の自己リン酸化が起こり、Ca²⁺濃度が低下した後も一定の自律的活性を維持できるようになります。この多量体構造が、一過性のCa²⁺シグナルを持続する分子状態へ変換する重要な基盤となります。
この「複数の部品が輪になって集まる」構造は、単なる形の問題ではありません。隣り合った部品どうしがお互いをリン酸化し合えるため、次章で述べる自己リン酸化が効率よく進みます。CaMKIIが一瞬のカルシウム信号の頻度を読み取れるのも、この集団構造があってこそです。
🩺 院長コラム【「形」が働きを決めるということ】
遺伝子やタンパク質の機能を考えるうえで、「形と働きは切り離せない」という視点は重要です。CaMKIIはその好例で、部品が輪になって集まるという立体的な仕掛けそのものが、カルシウム信号を読み取る計算能力を生み出しています。設計図(遺伝子)の小さな変化が、この精巧な形をわずかに崩すだけで、細胞の情報処理が変わってしまうことがあります。
臨床遺伝専門医として文献を踏まえると、遺伝子の変化が病気につながるかどうかを考えるときには、「そのアミノ酸がタンパク質のどの部分にあり、どんな役割を担っているか」を丁寧に見ていく必要があります。CaMKIIの研究は、その視点の大切さをあらためて教えてくれます。
3. 活性化の流れ ─ 自己リン酸化という記憶
CaMKIIが活性化する道のりは、順を追って見ると理解しやすくなります。まず神経細胞が刺激され、カルシウムが細胞内に流れ込みます。カルシウムはカルモジュリンと結合し、そのカルシウム/カルモジュリンがCaMKIIの調節領域に結びつきます。すると、ふだんかかっていたブレーキが外れ、キナーゼドメインが露出して酵素が働き始めます。
ここで起きるのが自己リン酸化です。輪になって集まったCaMKIIでは、隣の部品どうしが特定の場所にリン酸を付け合います。α型ではスレオニン286番(Thr286)、β・γ・δ型では相当する287番(Thr287)が主な場所です。この場所にリン酸が付くと、外れていたブレーキが元に戻れなくなり、カルシウムが下がったあとも活性が続きます。
さらに1992年、マイヤーらは、Thr286の自己リン酸化が起きるとカルモジュリンがCaMKIIから離れる速さが極端に遅くなることを示しました[2]。カルモジュリンがいわば「捕まえられた」状態になるため、CaMKIIはカルシウム信号が去ったあとも活性を保ちやすくなります。この現象はカルモジュリン・トラッピングと呼ばれます。
こうした仕組みのおかげで、CaMKIIはカルシウムの波を単に後追いするのではなく、その頻度(どれくらいの速さで繰り返し来るか)を読み分けられます。1998年、ド・コーニンクとシュルマンは、カルシウムのパルスを速く繰り返すほどCaMKIIの活性化と自己リン酸化が増えることを示し、CaMKIIが生化学的な「周波数デコーダー(頻度の読み取り装置)」として働く根拠を与えました[3]。単なるオン・オフのスイッチではなく、信号のリズムを数値に変換する計算装置だという点が、CaMKIIの面白さです。
💡 用語解説:Thr286 / Thr287(スレオニンの番号)
タンパク質はアミノ酸が数珠つなぎになってできており、端から数えた番号で場所を示します。「Thr286」はα型CaMKIIの286番目のスレオニン(Thr)というアミノ酸のこと。ここにリン酸が付くかどうかが、カルシウムがなくても働き続けられるかどうかを決める重要なスイッチです。β・γ・δ型では、同じ役割の場所が287番目にあります。
4. 4つのアイソフォーム ─ 脳と心臓で異なる主役
ヒトのCaMKIIには、それぞれ別の遺伝子がつくる4つのタイプ(アイソフォーム)があります。α型(CAMK2A)、β型(CAMK2B)、γ型(CAMK2G)、δ型(CAMK2D)です。基本の設計は共通していますが、体のどこで多く働くか、どんな相手と結びつくかが少しずつ異なります。
🧬 CaMKIIの4つのアイソフォーム
| タイプ(遺伝子) | 主な分布 | 特徴的なはたらき |
|---|---|---|
| α型(CAMK2A) | 脳の興奮性シナプスに濃縮 | 最もよく研究された神経型。記憶・学習に中心的な役割 |
| β型(CAMK2B) | 脳でα型と共存 | アクチン(細胞の骨組み)と結合し、シナプスの形の変化を制御 |
| γ型(CAMK2G) | 神経系を含め広い組織 | カルシウム情報の伝達。心臓にも分布 |
| δ型(CAMK2D) | 広く分布、特に心臓で重要 | 心臓のカルシウム制御・リモデリング。心疾患創薬の主要標的 |
※残基の番号はスプライシングのタイプによってわずかに異なる場合があります。
脳では主にα型とβ型が働きます。α型とβ型は混ざり合って一つの複合体(ヘテロ多量体)をつくることができ、β型がシナプスの骨組みであるアクチンと結びつくことで、複合体全体をシナプスの正しい場所に配置します。一方、心臓ではδ型が特に重要で、次章以降で述べるように不整脈や心不全と深く関わります。同じCaMKIIという名前でも、働く場所によって役割がずいぶん変わるのです。
この「場所ごとに顔を変える」性質は、CaMKIIを標的とする薬を難しくする理由の一つでもあります。脳のCaMKIIは記憶に欠かせない一方、全身のCaMKIIを一律に止めてしまうと、正常なカルシウム信号まで乱れてしまうためです。
5. 記憶とシナプス ─ CaMKIIが学習に必須である証拠
記憶や学習の細胞レベルのモデルとして、最もよく研究されているのが長期増強(LTP:long-term potentiation)です。LTPとは、シナプス(神経細胞どうしのつなぎ目)を繰り返し強く刺激すると、その伝達効率が長く高まる現象で、記憶の土台と考えられています。このLTPの中心にいるのがCaMKIIです。
LTPの古典的な流れはこうです。まずNMDA受容体という入口からカルシウムがシナプスに流れ込み、CaMKIIが活性化してThr286の自己リン酸化を起こします。すると活性化したCaMKIIはシナプスの後ろ側の構造(シナプス後肥厚、PSD)へ移動し、そこでNMDA受容体のGluN2Bという部品と結合します。2001年、ベイヤーらは、このGluN2Bとの結合が単なる係留ではなく、CaMKIIを活性型の形に固定することを示しました[4]。NMDA受容体は、カルシウムの入口であると同時に、活性化したCaMKIIを刺激されたシナプスに捕まえておく「ドッキング装置」でもあるわけです。
シナプスに集まったCaMKIIは、AMPA受容体という、すばやい興奮を伝える受容体の働きを高めます。1997年、バリアらは、LTPに伴ってAMPA受容体(GluA1)がCaMKIIによってリン酸化され、その機能が高まることを示しました[5]。GluA1のSer831という場所へのリン酸化は、AMPA受容体を通る電流を増やす代表的な仕組みとして知られています。
CaMKIIが記憶に必須であることは、遺伝子改変マウスの研究で強く裏づけられています。1992年、シルヴァらは、α型CaMKIIをつくれないマウスが海馬のLTPを起こせず、モリス水迷路という課題で空間学習ができないことを示しました[6]。さらに1998年、ギーゼらは、タンパク質そのものは残したままThr286の自己リン酸化だけを起こせないようにしたマウス(T286A変異マウス)でも、LTPと学習が大きく損なわれることを示しました[7]。これは、Thr286の自己リン酸化そのものが学習に因果的に必要であることを明確にした重要な成果です。
6. 「酵素か足場か」 ─ 記憶をめぐる最新の論争
ここまでの話からは、「CaMKIIが記憶している間じゅう、酵素としてリン酸を付け続けている」という単純なイメージが浮かぶかもしれません。ところが、この古典的なスイッチ像は、近年かなり描き直されています。
2023年、タリスらは、CaMKIIの「酵素としての働き」と「構造上の働き(足場としての役割)」を切り分けられる新しい実験ツールを開発しました。その結果、LTPを引き起こすのに本当に必要なのは、CaMKIIがGluN2Bと結合するという構造的な役割であり、下流のタンパク質を広くリン酸化する酵素活性は、これまで考えられていたほど必須ではない、と報告しました[8]。彼らによれば、酵素活性の唯一の貢献は、Thr286の自己リン酸化を通じてこの構造的役割を可能にすることだったといいます。
2024年、チェンらもこれを補強する結果を示しました。彼らは、Thr286の自己リン酸化がGluN2Bとの長く続く結合を生み出すことこそがLTPの維持に必要な唯一の要件であり、下流タンパク質のリン酸化はLTPに必須ではない、というモデルを提示しました[9]。つまり、Thr286の自己リン酸化は依然として中心的ですが、その重要性は「酵素として働き続けること」よりも「GluN2Bと結合できる構造をつくること」にある、という見方です。
💡 見方が変わってきたポイント
「一度リン酸化されれば永久にオンになり続ける酵素が記憶を保存する」という強い仮説は、現在では未確定とされています。動物実験はCaMKIIが記憶に必須であることを強く支持しますが、その理由は「酵素活性がずっと続くこと」ではなく、「分子の配置や複合体の組み立てが長く保たれること」にあるのではないか、と重心が移りつつあります。CaMKIIは、カルシウム信号を分子の構造変化へと翻訳する「組織化役(オーガナイザー)」に近い存在だと考えられ始めています。
ただし、酵素としての働きがまったく不要というわけでもありません。GluN2Bと結合したCaMKIIの自律的な酵素活性が、LTPのある特定の時間帯には必要だとする報告もあります。これらを総合すると、現時点で最も整合的なのは、「初期のカルシウム検出 → Thr286の自己リン酸化 → GluN2Bとの結合 → 時間を限った酵素活性と、長く続く分子の組織化」という、時間相によって酵素の役割と構造の役割が切り替わるモデルです。完全な「酵素だけ」説も「足場だけ」説も、単純化しすぎだと考えられています。
7. 脳の病気との関係 ─ 神経発達症・てんかんから神経変性まで
CaMKIIと脳の病気の関係は、病気によって「原因」としての強さが異なります。最も遺伝学的な証拠が強いのが、神経発達症(知的障害)とてんかんです。2018年、秋田らは、知的障害や発達の遅れ、てんかんのある患者から、CAMK2A・CAMK2Bの新生突然変異(de novo変異:親になく子で新たに生じた変化)を同定しました[10]。これらの変異には自己リン酸化を高めるものと低下させるものの両方が報告されています[13]。つまりCaMKIIは、「働きが強すぎても弱すぎても問題が起きる」酵素であり、ちょうどよい調節のバランス(自己抑制の設定値)が神経の発達に必要だと考えられます。
💡 用語解説:新生突然変異(de novo変異/デノボ変異)
両親のどちらの遺伝子にも見られないのに、子どもで新しく生じた遺伝子の変化を「新生突然変異」といいます。親から受け継いだものではないため、家族に同じ病気の人がいないことが多いのが特徴です。CAMK2A・CAMK2Bに関連する神経発達症の多くは、この新生突然変異によって起こると報告されています。
一方、アルツハイマー病、パーキンソン病、統合失調症では、CaMKIIの異常は病気のメカニズムの一部として有力ですが、原因としての位置づけは神経発達症ほど確立していません。アルツハイマー病では、アミロイドβがシナプスのCaMKIIの集まりを減らし、AMPA受容体の働きを低下させるという経路が報告されていますが、CaMKII異常が主原因というより、アミロイドβなどの下流・増幅の仕組みとして捉えるのが妥当です。パーキンソン病では、線条体でのCaMKIIの異常が運動症状に関わることが動物モデルで示されていますが、ヒトでの主原因とする証拠は限定的です。統合失調症でもCAMK2Aの稀な変異が報告されていますが、これがこの病気全般の主要なリスク遺伝子であることを意味するわけではありません。
また、脳梗塞などで過剰なグルタミン酸信号が生じたあとには、CaMKIIの自律的活性が病的に持続しうることが知られています。正常なシナプスのCaMKIIと、傷害後に暴走するCaMKIIを時間的に区別して抑えられれば、神経を守れる可能性があると考えられており、これも研究が進む領域です。
8. 心臓と創薬 ─ 不整脈・心不全と新しい薬
CaMKIIは脳だけの分子ではありません。心臓では特にδ型(CAMK2D)が重要で、慢性的なストレスがかかるとCaMKIIの働きが過剰になり、不整脈や心臓の構造変化(リモデリング)、心不全を促すことが知られています。心臓のCaMKIIは、自己リン酸化だけでなく、調節領域の酸化によっても活性化しうる点が特徴で、酸化されたCaMKIIはカルシウムが下がったあとも活性を保ちます。心筋のδ型を遺伝的に操作すると病的なストレス反応が変わることからも、その因果的な役割が支持されています。
こうした背景から、心臓のCaMKIIは現時点で最も臨床開発が進んだ治療標的になっています。ただし、その臨床的な有効性はまだ決着していません。2021年、ボイルらは、前壁の心筋梗塞(STEMI)後に心機能が低下した147人の患者を対象に、経口のCaMKIIδ阻害薬NP202を検証する第II相試験を行いました[11]。安全性と忍容性は良好でしたが、3か月後の左室のリモデリングをプラセボに対して有意には改善しませんでした。これはCaMKIIが不適切な標的だと証明するものではなく、投与のタイミングや病期、薬の効き方、タイプ選択性などが極めて重要であることを示す結果だと受け止められています。
💡 用語解説:CPVT(カテコラミン誘発性多形性心室頻拍)
運動や興奮でアドレナリンが増えたときに、命に関わる不整脈が起きる遺伝性の病気です。心筋のカルシウム制御の乱れが関わるため、カルシウム信号の下流にあるCaMKIIが治療標的として注目されています。詳しくはCPVT遺伝子検査のページもご参照ください。
より新しいCaMKII阻害薬であるCRD-4730については、CPVTを対象とした第II相試験と、駆出率が低下した心不全(HFrEF)を対象とした第II相試験が進行中です。したがってCaMKIIは、「臨床的に検証済みの治療標的」というより、いままさに臨床での有効性が試されている段階の標的だと表現するのが正確です。心臓の遺伝子検査全体については拡張型心筋症の遺伝子検査パネルや遺伝性不整脈の遺伝子検査パネルもあわせてご覧ください。
なお、CaMKIIの研究では、「阻害薬を使った=CaMKIIの酵素活性だけを止めた」と考えてはいけない、という重要な注意点があります。長く使われてきたKN-93という阻害薬について、2019年、ウォンらは、この分子がCaMKII本体ではなくカルシウム/カルモジュリンに結合することを示しました[12]。つまり過去の「KN-93が効いた現象」をすべてCaMKII依存と断定することはできません。現在の研究では、作用のしかたが異なる複数の阻害薬や遺伝子改変を組み合わせて、慎重に結論を出すことが必須になっています。
9. 遺伝診療との接点 ─ CaMKIIの変化をどう読むか
CaMKIIは、遺伝診療の観点からも示唆に富む分子です。CAMK2A・CAMK2Bの新生突然変異が神経発達症やてんかんの原因になることは、直接的なヒトの遺伝学的証拠があるため、因果関係が強いと考えられています[10]。一方で、アルツハイマー病やパーキンソン病、統合失調症におけるCaMKIIの関与は、再現性のある候補メカニズムであっても、病気の上流の原因なのか下流の反応なのかは病気ごとに異なります。「CaMKIIが関わる病気」とひとくくりにするのではなく、疾患ごとに証拠の強さを見分けることが大切です。
💡 用語解説:バリアント(遺伝子の変化)
「変異」や「バリアント」とは、遺伝子の設計図(DNAの並び)が多くの人と異なっている状態を指します。病気につながるものもあれば、体質の個性にとどまるものもあります。CaMKIIのように機能の増加・低下のいずれも疾患につながり得る酵素では、その変化が働きをどちら向きに変えるのかを丁寧に評価することが、意味を読み解くうえで重要になります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。検査を受けるかどうかを含め、決めるのはご本人であり、私たちは中立の立場で判断材料を整理する役割を担います。なお、CaMKIIそのものは基礎研究が中心の分野であり、この分子を単独で検査するわけではありません。ここでは、関連する遺伝子(CAMK2A・CAMK2Bなど)や、シナプスに関わる遺伝子群を理解するための土台として位置づけています。CAMK2A・CAMK2Bと同じくシナプスに関わる遺伝子については、GRIN2B遺伝子やGRIN1遺伝子、SHANK3遺伝子のページもあわせてご覧いただくと、シナプスの分子ネットワークの全体像がつかみやすくなります。
10. よくある誤解
誤解①「CaMKIIはカルシウムがある間だけ働く」
CaMKIIは自己リン酸化によって、カルシウムが下がったあとも活性を保つことができます。この「自律的活性」こそが、一瞬の信号を長く続く変化に変換する鍵で、CaMKIIが記憶に関わる分子とされる理由です。
誤解②「CaMKIIは酵素としてずっと記憶を保存している」
近年は、記憶に必要なのは酵素活性が続くことよりも、GluN2Bとの結合など分子の構造・配置が保たれることだという見方が強まっています。「酵素か足場か」は、いまも研究が続くテーマです。
誤解③「CaMKIIは脳だけの分子」
CaMKIIには4つのタイプがあり、心臓のδ型は不整脈や心不全に深く関与します。心疾患を対象とした阻害薬の臨床試験も進行しており、脳と心臓の両方で重要な分子です。
誤解④「働きが弱くなる変化だけが病気の原因」
CaMKIIは強すぎても弱すぎても問題が起きます。CAMK2A/CAMK2Bの変異には自己リン酸化を高めるものも低めるものもあり[13]、ちょうどよい調節のバランスが神経発達に必要です。
まとめ ─ 「記憶の分子」の新しい姿
CaMKIIをめぐる研究は、「カルシウム依存性の酵素」という素朴な理解から出発し、「自己リン酸化する分子スイッチ」[1]、「カルシウムの頻度を読み取るデコーダー」[3]、そして「シナプスを組織化するオーガナイザー」へと、その姿を更新し続けてきました。Thr286の自己リン酸化が中心的であることは変わりませんが、それだけでCaMKIIのすべてを説明できるわけではありません。
動物実験はCaMKIIが記憶に必須であることを強く支持し[6][7]、近年の構造機能を分離する実験は、その必要性の理由を「酵素活性の持続」から「分子の組織化の持続」へと配置し直しつつあります[8][9]。同時にCaMKIIは、神経発達症やてんかんの原因遺伝子として、また心疾患の治療標的として、遺伝医療と臨床の両面で重要性を増しています[10][11]。一つの分子が、記憶の謎から心臓の薬まで橋渡しをしている——CaMKIIは、基礎研究と臨床の接点として、現在も研究が続く重要な分子です。
よくある質問(FAQ)
Q1. CaMKIIとは何ですか?
CaMKII(Ca²⁺/カルモジュリン依存性プロテインキナーゼII/カムキナーゼ・ツー)は、細胞内のカルシウム濃度が上がったことをきっかけに、他のタンパク質にリン酸という目印を付ける酵素(リン酸化酵素)です。特に脳の神経細胞に多く、記憶や学習の基盤となるシナプスの変化に欠かせません。カルシウムと結びついたカルモジュリンをセンサーとして活性化するのが名前の由来です。
Q2. なぜCaMKIIは「記憶の分子」と呼ばれるのですか?
CaMKIIは自己リン酸化(Thr286/Thr287へのリン酸付加)によって、カルシウムが下がったあとも活性を保ち続けられます。この「自律的活性」により、一瞬のカルシウム信号を長く続く分子の変化に変換できるため、記憶を保存する候補分子として注目されてきました。ただし近年は、酵素活性そのものより、シナプスでの分子の配置や結合が長く保たれることが重要だという見方が強まっています。
Q3. CaMKIIにはどんな種類がありますか?
ヒトには4つのタイプがあり、それぞれ別の遺伝子がつくります。α型(CAMK2A)とβ型(CAMK2B)は主に脳で働き、記憶やシナプスの変化に関わります。γ型(CAMK2G)は広い組織に、δ型(CAMK2D)は特に心臓で重要で、不整脈や心不全に関与します。同じCaMKIIでも、働く場所によって役割が異なります。
Q4. CaMKIIは病気と関係がありますか?
関係します。CAMK2A・CAMK2Bの新生突然変異は、知的障害・発達の遅れ・てんかんといった神経発達症の原因になることが報告されています。これらの変異には自己リン酸化を高めるものも低めるものもあり、調節のバランスが神経発達に重要だと考えられています。また心臓のδ型は不整脈や心不全に関わり、治療薬の標的として臨床試験が進んでいます。
Q5. CaMKIIを標的とする薬はありますか?
心疾患を対象に開発が進んでいます。経口のCaMKIIδ阻害薬NP202は心筋梗塞後の患者で第II相試験が行われ、安全性は良好でしたが左室リモデリングの改善は示されませんでした。より新しいCRD-4730は、CPVTや心不全(HFrEF)を対象に第II相試験が進行中です。現時点でCaMKIIは「臨床的に検証済みの標的」ではなく、有効性がまさに試されている段階にあります。治療の判断は必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Miller SG, Kennedy MB. Regulation of brain type II Ca2+/calmodulin-dependent protein kinase by autophosphorylation: a Ca2+-triggered molecular switch. Cell. 1986;44(6):861-870. doi:10.1016/0092-8674(86)90008-5. [PubMed 3006921]
- [2] Meyer T, Hanson PI, Stryer L, Schulman H. Calmodulin trapping by calcium-calmodulin-dependent protein kinase. Science. 1992;256(5060):1199-1202. doi:10.1126/science.256.5060.1199. [PubMed 1317063]
- [3] De Koninck P, Schulman H. Sensitivity of CaM kinase II to the frequency of Ca2+ oscillations. Science. 1998;279(5348):227-230. doi:10.1126/science.279.5348.227. [PubMed 9422695]
- [4] Bayer KU, De Koninck P, Leonard AS, Hell JW, Schulman H. Interaction with the NMDA receptor locks CaMKII in an active conformation. Nature. 2001;411(6839):801-805. doi:10.1038/35081080. [PubMed 11459059]
- [5] Barria A, Muller D, Derkach V, Griffith LC, Soderling TR. Regulatory phosphorylation of AMPA-type glutamate receptors by CaM-KII during long-term potentiation. Science. 1997;276(5321):2042-2045. doi:10.1126/science.276.5321.2042. [PubMed 9197267]
- [6] Silva AJ, Stevens CF, Tonegawa S, Wang Y. Deficient hippocampal long-term potentiation in alpha-calcium-calmodulin kinase II mutant mice. Science. 1992;257(5067):201-206. doi:10.1126/science.1378648. [PubMed 1378648]
- [7] Giese KP, Fedorov NB, Filipkowski RK, Silva AJ. Autophosphorylation at Thr286 of the alpha calcium-calmodulin kinase II in LTP and learning. Science. 1998;279(5352):870-873. doi:10.1126/science.279.5352.870. [PubMed 9452388]
- [8] Tullis JE, Larsen ME, Rumian NL, et al. LTP induction by structural rather than enzymatic functions of CaMKII. Nature. 2023;621(7977):146-153. doi:10.1038/s41586-023-06465-y. [PubMed 37648853]
- [9] Chen X, Cai Q, Zhou J, Pleasure SJ, Schulman H, Zhang M, Nicoll RA. CaMKII autophosphorylation is the only enzymatic event required for synaptic memory. Proc Natl Acad Sci U S A. 2024;121(26):e2402783121. doi:10.1073/pnas.2402783121. [PubMed 38889145]
- [10] Akita T, Aoto K, Kato M, et al. De novo variants in CAMK2A and CAMK2B cause neurodevelopmental disorders. Ann Clin Transl Neurol. 2018;5(3):280-296. doi:10.1002/acn3.528. [PubMed 29560374]
- [11] Boyle AJ, Schultz C, Selvanayagam JB, et al. Calcium/Calmodulin-Dependent Protein Kinase II Delta Inhibition and Ventricular Remodeling After Myocardial Infarction: A Randomized Clinical Trial. JAMA Cardiol. 2021;6(7):762-768. doi:10.1001/jamacardio.2021.0676. [PubMed 33851966]
- [12] Wong MH, Samal AB, Lee M, et al. The KN-93 Molecule Inhibits Calcium/Calmodulin-Dependent Protein Kinase II (CaMKII) Activity by Binding to Ca2+/CaM. J Mol Biol. 2019;431(7):1440-1459. doi:10.1016/j.jmb.2019.02.001. [PubMed 30753871]
- [13] Küry S, van Woerden GM, Besnard T, et al. De Novo Mutations in Protein Kinase Genes CAMK2A and CAMK2B Cause Intellectual Disability. Am J Hum Genet. 2017;101(5):768-788. doi:10.1016/j.ajhg.2017.10.003. [PubMed 29100089]






