

目次

📍 クイックナビゲーション
SLC7A11(エスエルシー・セブン・エー・イレブン、別名xCT)は、細胞が生き延びるために欠かせない「抗酸化のしくみ」の中心にある遺伝子です。細胞の外からシスチンという材料を取り込み、グルタチオンという“細胞のさび止め”を作らせることで、細胞を酸化のダメージから守っています。ところが、この同じしくみをがん細胞が乗っ取ると、抗がん剤や放射線がなかなか効かない「治療抵抗性」が生まれます。
この遺伝子は、フェロトーシスという鉄に依存した細胞死を抑える「守り」の役割を持つ一方で、条件しだいではジスルフィドトーシスという別の細胞死の「引き金」にもなる、二つの顔を持ちます。さらに近年は、脳の神経を守ったり傷つけたりする働きや、細胞のゴミ処理場であるリソソームのpHを調整する意外な機能まで見つかり、がん治療とパーキンソン病の両方で注目される分子になっています。
- ➤ SLC7A11(xCT)がどんな働きをする遺伝子で、なぜ「抗酸化の要」なのか
- ➤ フェロトーシスを「防ぐ守り」と、ジスルフィドトーシスを「起こす引き金」という二面性
- ➤ がん細胞がこの遺伝子を乗っ取って治療抵抗性を得るしくみと、その弱点
- ➤ 脳・リソソームでの新しい働きと、パーキンソン病とのつながり
- ➤ PROTACやPET画像診断など、SLC7A11を狙う最新の治療・診断技術
🧬Q. SLC7A11とはどんな遺伝子ですか?
細胞膜にある「シスチン/グルタミン酸の交換ポンプ(System xc-)」の本体を作る遺伝子です。シスチンを取り込んで抗酸化物質グルタチオンの材料を供給し、細胞を酸化ダメージから守ります。
🩺Q. なぜがん治療で重要なのですか?
多くのがんがこの遺伝子を過剰に働かせ、抗がん剤や放射線への抵抗性を獲得します。逆にこのしくみを止めると、がん細胞をフェロトーシスという細胞死に追い込めるため、有望な治療標的です。
🌸Q. 遺伝する病気の原因になりますか?
現時点で、SLC7A11の生まれつきの変化が単一の遺伝性疾患を起こすとは確立されていません。主に「がんの中で後天的に働きが強まる遺伝子」として、治療と診断の観点から重要です。
SLC7A11(xCT)とは——細胞の「抗酸化」を支える輸送体
シスチンを取り込み、グルタチオンを作らせる「入口」
SLC7A11は、細胞膜を12回もつらぬく形をした膜輸送タンパク質を作る遺伝子です。単独では働かず、パートナーのSLC3A2(CD98hc/4F2hc)というタンパク質とジスルフィド結合(硫黄どうしのつながり)でくっつき、「System xc-(システム・エックス・シー・マイナス)」という一つの輸送体として機能します[1]。このうち実際に物質を運ぶ“エンジン”の役割を担うのがSLC7A11で、パートナーのSLC3A2は輸送体を正しく細胞膜へ運び、安定させる“付き添い役(シャペロン)”です。
System xc-は、細胞の外にあるシスチンを1つ取り込むのと引きかえに、細胞の中のグルタミン酸を1つ外へ出すという、きっちり1対1の交換輸送を行います[1]。取り込まれたシスチンは細胞の中ですぐにシステインへと変えられ、このシステインがグルタチオン(GSH)という、体の中でもっとも豊富な抗酸化物質を作るための「材料の要(律速前駆体)」になります。
シスチンは、アミノ酸のシステインが2つ手をつないだ「酸化された形」です。細胞の外ではこの安定な形で存在し、細胞の中に入るとすぐにバラバラのシステインに戻されます。このシステインを材料に作られるグルタチオン(GSH)は、細胞にたまる「活性酸素(ROS)」というサビの元を無害化する“さび止め”です。SLC7A11は、この一連の流れのいちばん最初の「入口」を担っています。
SLC7A11が働くことで、細胞は活性酸素(ROS)による酸化ストレスから守られます。とりわけ、細胞膜の脂質が酸化されて壊れる連鎖反応を食い止め、鉄に依存した細胞死である「フェロトーシス」を抑える強力な防御壁として働きます[2]。
図1:System xc- の交換輸送と、抗酸化までの流れ
シスチンを取り込み、グルタミン酸を排出。取り込んだシスチンからグルタチオン(GSH)を作り、細胞を守ります。
マウスの毛色から見つかった歴史
この遺伝子の生理的な役割は、意外にもマウスの毛色の研究から明らかになりました。「サトルグレー(subtle gray/sut)」という灰色がかった毛色の変異マウスは、Slc7a11遺伝子に大きな欠失を持っています[3]。このマウスでは黒色の色素(ユーメラニン)は保たれる一方、黄・赤色の色素(フェオメラニン)が作れなくなり、本来黄色い毛の背景が灰色に変わります[3]。シスチンの取り込みが減ると、フェオメラニンの材料が不足するためです。SLC7A11は、フェオメラニン色素を直接コントロールする遺伝子として同定された、初めての例でした[3]。
ヒトのSLC7A11は4番染色体(4q28.3)にあり、501個のアミノ酸からなるタンパク質をコードしています[4]。ヒトでは、この遺伝子の生まれつきの変化が特定の遺伝性疾患を起こすとは、現時点では確立されていません。SLC7A11の重要性は、むしろがんの中で後天的に発現が強まり、治療標的になるという点にあります。この違いは、遺伝カウンセリングの場面でも大切なポイントです。

構造と輸送のしくみ——薬はどこにくっつくのか
長らく謎だったSystem xc-の立体構造は、クライオ電子顕微鏡(Cryo-EM)という技術によって大きく解明が進みました。2022年、研究チームが、代表的なフェロトーシス誘導薬であるエラスチン(Erastin)が結合したヒトのSLC7A11-SLC3A2複合体の構造を高い解像度で明らかにしました[5]。この構造から、12回膜貫通のSLC7A11と1回膜貫通のSLC3A2がジスルフィド結合でつながり、シスチンとグルタミン酸を交換輸送するようすが視覚的に裏づけられました[5]。
エラスチン(Erastin)は、System xc-の働きをブロックしてフェロトーシスを引き起こす実験用の化合物です。皮膚の弾性線維タンパク質「エラスチン(elastin)」とは名前が似ていますが、まったくの別物です。研究の世界では、フェロトーシスを起こす“標準試薬”として広く使われています。
構造解析では、エラスチンがSLC7A11の細胞内側にある特定のポケットに結合し、輸送体を「内向き」の形で固定してしまうことが分かりました[5]。とくに、膜貫通部分にあるフェニルアラニンという残基(F254)が、エラスチンと相互作用する重要な接点であることが示されています。ただし、この一か所(F254)を別のアミノ酸に置き換えても、エラスチンの阻害効果は部分的にしか弱まらず、結合を完全になくすには複数のアミノ酸の変化が必要だと考えられています[5]。薬をこのポケットにうまく結合させる設計が、次世代のフェロトーシス誘導薬の開発につながっています。
「行き来する扉」として物質を運ぶ
SLC7A11は、細胞の外に向かって開いた「外向き」の形と、内に向かって開いた「内向き」の形を交互に切り替えることで、シスチンとグルタミン酸を反対方向に運びます。これは、多くの膜輸送体に共通する「交互アクセス機構(オルタネーティング・アクセス)」という運び方です。外側の扉が開くとシスチンを受け取り、扉を閉じて内側の扉を開くと、こんどはグルタミン酸を外へ送り出す——この“片方ずつ開く二重扉”のような動きで、方向をきちんと制御しています。
相反する2つの細胞死——「守り」と「引き金」
SLC7A11のいちばん面白い点は、まったく逆向きの2つの細胞死を、同時にあやつっているところにあります。ひとつは「フェロトーシス」を抑える守りの働き、もうひとつは「ジスルフィドトーシス」を引き起こす引き金の働きです。
図2:SLC7A11がもつ「二面性」
🛡️ 守り:フェロトーシスを抑える
シスチンをどんどん取り込み、グルタチオンを作って脂質のサビを消す。SLC7A11がよく働く=フェロトーシスに強い。がん細胞はこれを利用して生き延びる。
🔗 引き金:ジスルフィドトーシスを起こす
ブドウ糖が足りなくなると、取り込みすぎたシスチンを処理できず、細胞の骨組みが異常な結合で固まって崩壊。SLC7A11が強いほど、この死に弱くなる。
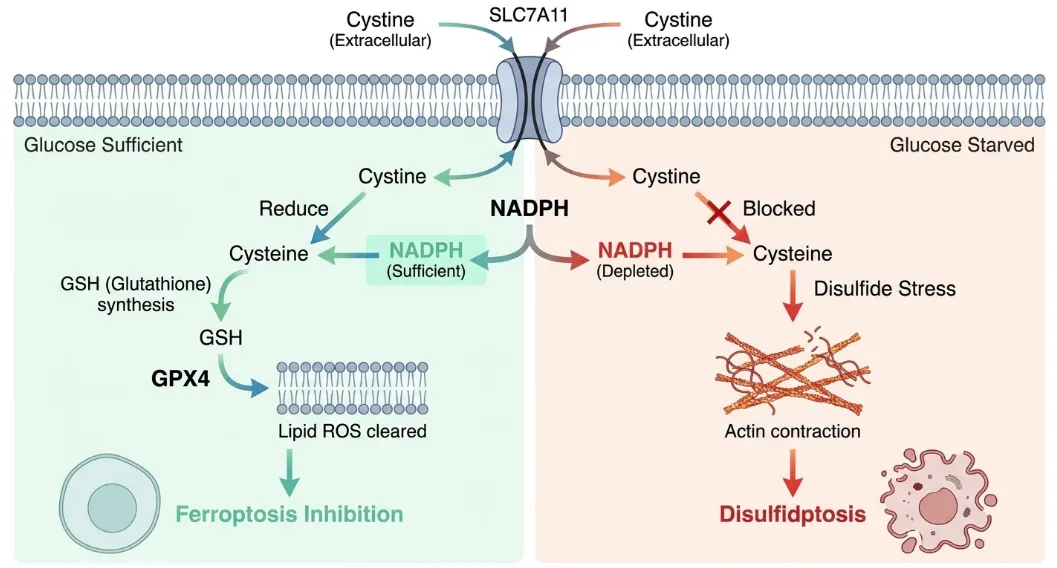
フェロトーシスに対する強い防御壁
フェロトーシスは、鉄の存在下で細胞膜の脂質が酸化され、有毒な「脂質の過酸化物」がたまることで起こる細胞死です。アポトーシスなど古典的な細胞死とは、形も生化学的なしくみも明確に区別されます。SLC7A11がシスチンを取り込んでグルタチオンを作ると、GPX4という酵素がグルタチオンを還元力源として利用し、脂質ヒドロペルオキシドを還元します。つまり「SLC7A11 → グルタチオン → GPX4」という一本のラインが、フェロトーシスに対する細胞の主要な防御システムなのです[2]。
近年は、SLC7A11がシスチンだけでなく、トリプトファンの代謝産物であるL-キヌレニンも取り込むことが分かってきました[15]。取り込まれたキヌレニンは下流の産物に変換され、フリーラジカルを直接消去してフェロトーシスに抗うシグナルを広げる、という補助的な役割も担っています。SLC7A11は、幾重にも重なった抗酸化ネットワークの中心にいるといえます。
ジスルフィドトーシス——「取り込みすぎ」が命取りに
2023年に提唱されたジスルフィドトーシス(Disulfidptosis)は、SLC7A11が逆に細胞死の引き金になる、という驚きの発見でした[6]。SLC7A11が過剰に働くがん細胞は、外から大量のシスチンを絶え間なく取り込みます。細胞の中では、ブドウ糖から作られるNADPHという“還元力”を使って、酸化されたシスチンを元のシステインに戻し続けています。
ところが、ブドウ糖が足りなくなる(グルコース飢餓)と、この還元力(NADPH)が枯渇し、処理できないシスチンが細胞内にあふれます[6]。この異常な「ジスルフィドストレス」が、細胞の骨組みであるアクチン(F-アクチン)どうしを無秩序なジスルフィド結合で固めてしまい、細胞骨格が急激に収縮・崩壊して細胞が死にます[6]。
アポトーシスのような遺伝子プログラムによる“細胞の自殺”とは異なり、ジスルフィドトーシスは代謝の過負荷で構造が内側から破綻する“物理的な崩壊”です。このしくみは、SLC7A11の過剰発現が、がんにとって「生存の武器」であると同時に、ブドウ糖を断たれると致命傷になる「アキレス腱」でもあることを示しました。実際に、ブドウ糖の取り込みを止めるGLUT阻害剤が、SLC7A11の多いがんにジスルフィドトーシスを起こし、腫瘍の増殖を抑えることが示されています[6]。
がんはどうやってSLC7A11を「乗っ取る」のか
SLC7A11の働きは、遺伝子のオン・オフを決める転写、タンパク質になった後の修飾など、あらゆる段階で厳密に制御されています。がん細胞は、この制御のしくみを乗っ取ってSLC7A11を過剰に働かせ、酸化ストレスへの強さと生き延びる力を手に入れます。
アクセルとブレーキ:NRF2・ATF4・p53
SLC7A11の転写は、いくつかの“司令塔”によってアクセルとブレーキが踏まれます。酸化ストレスに応じてアクセルを踏むのがNRF2(Nrf2/KEAP1/ARE経路)です。肺がんなどでKEAP1という“ブレーキ役”に変異が入ると、NRF2が常にオンになり、SLC7A11が過剰に発現して、広い範囲の抗がん剤・放射線への抵抗性をもたらします[7]。
一方、強力なブレーキ役となるのが、がん抑制遺伝子として有名なTP53(p53)です。正常なp53はSLC7A11の発現を抑え込み、シスチンの取り込みを減らして細胞をフェロトーシスへ向かわせます[8]。この「SLC7A11を抑えてフェロトーシスを促進する」働きは、p53によるがん抑制に寄与する重要な機構の一つとして示されています[8]。がんでp53機能が失われると、この抑制機構が弱まり、腫瘍の状況によってはSLC7A11を介したフェロトーシス抵抗性が高まる可能性があります。アミノ酸が枯渇したときに働くATF4も、SLC7A11のアクセルを踏み、薬剤耐性の獲得に関わります[7]。
図4:SLC7A11を制御する司令塔たち
▶ アクセル(発現を増やす)
- NRF2(KEAP1変異で暴走)
- ATF4(アミノ酸枯渇に応答)
- Ets-1(KRASの下流)
■ ブレーキ(発現を抑える)
- p53(TP53)
- BAP1(ヒストン修飾を介する)
BAP1とエピジェネティックな抑制
がん抑制遺伝子のBAP1は、ヒストンという“DNAの巻き取り軸”についた目印(H2Aのユビキチン化)を外す酵素で、SLC7A11の発現を抑えます[9]。悪性中皮腫や腎細胞がんなどでBAP1が働かなくなると、この抑制が外れてSLC7A11が異常に増え、フェロトーシスに強くなって腫瘍ができやすくなります[9]。SLC7A11の発現は、こうしたエピジェネティクス(DNAの配列を変えずに遺伝子の働きを調節するしくみ)によっても、細かく調整されています。
タンパク質になった後の「安定化」制御
SLC7A11は、タンパク質になった後も安定性を細かく調節されます。ユビキチン化という“分解の目印”がつくと、プロテアソームで分解されてフェロトーシスが進みます[4]。逆に、この目印を外す脱ユビキチン化酵素(OTUB1など)がSLC7A11を守って安定させると、フェロトーシスに強くなります[4]。ほかにも、脂質をつけて細胞膜につなぎとめる「S-パルミトイル化」という修飾が、膠芽腫(グリオーマ)でSLC7A11を安定化させ、フェロトーシスへの抵抗性を高めることも報告されています。
脳とリソソーム——がんの外で見つかった新しい顔
神経を守り、時に傷つける「グルタミン酸」
脳の中では、System xc-は主にアストロサイトという“神経のサポート役”の細胞にたくさんあります。アストロサイトはSLC7A11でシスチンを取り込み、グルタチオンの材料を未熟な神経細胞に届けて、酸化のダメージから守っています。ところが、シスチンを取り込む代わりに、大量のグルタミン酸を細胞の外へ放出します。
脳梗塞(虚血・再灌流)やてんかん、脳腫瘍などの状況でSLC7A11が過剰に働くと、この放出されたグルタミン酸が神経のすき間で毒性レベルまで高まり、「興奮性神経毒性」によって神経細胞を死なせてしまいます。実際、Slc7a11を欠いたマウスでは、脳梗塞のモデルで血流の低下は同じでも梗塞の体積が大きく減ることが確認されており、System xc-由来のグルタミン酸が脳の傷を広げていることが示されています[10]。SLC7A11は、神経にとって「守り手」でもあり「危険因子」でもある、両義的な存在です。
リソソームの「pH調整役」という大発見
2025年、細胞生物学の常識をくつがえす発見がCell誌に報告されました。これまで細胞膜にあると考えられてきたSLC7A11が、実は細胞のゴミ処理場であるリソソームの膜にもたくさんあり、「風変わりな水素イオン(H+)の漏れ出し口」として働いていることが分かったのです[11]。
リソソームは、中身を分解するために内部を強い酸性(pH 4.5〜5.0)に保つ必要がありますが、酸性になりすぎても酵素が働かなくなります。そのため、水素イオンを送り込むポンプ(V-ATPase)と、余分な水素イオンを逃がすしくみのバランスが大切です。すでに知られていた「速い漏れ出し口(TMEM175)」に加えて、SLC7A11が「遅い漏れ出し口」を担うことが明らかになりました[11]。そのしくみは巧妙で、酸性のリソソーム内でグルタミン酸に水素イオンがくっつき、それを中性の細胞質へ運んだときに水素イオンが離れる、という「物質にのせて運ぶ」方式で、リソソームの酸性度を微調整しています[11]。
重要なのは、SLC7A11が欠けたりエラスチンで止められたりすると、リソソームが酸性になりすぎて分解機能が落ち、神経で病的なαシヌクレインというタンパク質が固まりやすくなることです[11]。αシヌクレインの凝集はパーキンソン病の代表的な病理学的特徴の一つであり、SLC7A11を介したリソソームpH調節は、神経変性の機序を理解するうえで新たな研究標的となる可能性があります[11]。がんの分子が、神経変性疾患の研究にも橋をかけた形です。
最新の治療と診断——弱点を突く戦略
「グルタミン依存」という、もう一つのアキレス腱
SLC7A11が過剰に働くがんは、強い抗酸化力を得る代わりに、大きな“代償”を払っています。シスチンを取り込むたびに大量のグルタミン酸を外へ捨てるため、細胞は生合成の要であるグルタミン酸のプールを急速に使い果たしてしまうのです[4]。これを補うため、SLC7A11の多いがんは血液中のグルタミンを大量に取り込んでグルタミン酸へ変換する「グルタミン依存」という状態に陥ります。この依存は、グルタミンの枯渇やグルタミナーゼ阻害剤に対する弱点にもなるため、SLC7A11阻害とグルタミン代謝阻害の併用は、理にかなった治療戦略と考えられています。
免疫療法とフェロトーシスの意外なつながり
SLC7A11は、がん細胞そのものだけでなく、まわりの免疫チェックポイント阻害薬による治療とも深くつながっています。抗PD-L1抗体などで活性化されたCD8陽性T細胞は、インターフェロンγ(IFN-γ)を分泌します。このIFN-γが、がん細胞のSLC7A11の発現を直接抑え込み、シスチンの取り込みを遮断して、がん細胞に特異的なフェロトーシスを起こすことが示されました[12]。免疫療法とフェロトーシスが、SLC7A11という一点で結びついていることを証明した重要な発見です。SLC7A11を狙う治療は、制御性T細胞(Treg)を抑えつつ、望ましい免疫環境をつくる可能性も報告されています。
SLC7A11を丸ごと壊す「PROTAC」という新技術
SLC7A11の働きを阻害する研究用・既存化合物として、スルファサラジンやエラスチンなどが知られています[7]。さらに最新の創薬では、PROTAC(標的タンパク質分解誘導キメラ)という技術を使い、SLC7A11そのものを分解して消し去る戦略が登場しました[13]。
PROTACは、「標的にくっつく部品」と「分解装置を呼ぶ部品」を1本の分子でつないだ、いわば“標的に分解の目印を貼る両面テープ”です。働きを一時的に邪魔するだけの従来の阻害剤と違い、標的タンパク質を細胞の分解装置(プロテアソーム)へ引き渡して物理的に消してしまうのが特徴です。
開発された「dSLC7A11」は、SLC7A11阻害剤スルファサラジンと、分解装置を呼び込むセレブロン(CRBN)のリガンド(ポマリドミド)をつないだ分子です[13]。これがSLC7A11を分解してSystem xc-を消し去り、GPX4の枯渇と強い酸化ストレスを引き起こします。動物モデルでは、スルファサラジン単独を上回る抗腫瘍効果(腫瘍増殖の65%超の抑制)が示され、フェロトーシス誘導療法の新しい方向性を切り開いています[13]。
がんの「抗酸化力」を画像で見る——PET診断
SLC7A11を狙った臨床応用でもっとも進んでいるのが、PET(陽電子断層撮影)用の放射性プローブ「[18F]FSPG」です。これはグルタミン酸によく似た分子で、System xc-を通じてがん細胞に取り込まれるため、細胞の抗酸化能(グルタチオンを作る力)を、体を傷つけずに画像化できます。
非小細胞肺がんの前臨床モデルでは、[18F]FSPGの集積が、治療抵抗性に関わる「NRF2の活性化(KEAP1変異など)」を感度・特異度高く反映することが示されました[14]。将来的には、画像から腫瘍の抗酸化状態を非侵襲的に評価し、治療選択に役立てられる可能性がありますが、現時点では臨床評価が必要な研究段階です。従来の糖代謝を見る[18F]FDG PETは正常な脳への集積が高く脳の病変が見えにくいのに対し、[18F]FSPGは正常な脳への集積が低く、脳腫瘍の描出にも優れるという利点もあります。
※本記事の治療・診断に関する記述は、研究段階の内容や、日本国内では一般診療として確立していないものを含みます。特定の検査や治療を推奨するものではなく、情報提供を目的としています。実際の診断・治療については、担当医にご相談ください。
\ がん・遺伝子・遺伝のことを、専門医と一緒に整理しませんか /
よくある質問(FAQ)
🏥 ネットの情報に疲れたら、一度専門医の話を聞きに来ませんか?
がんの遺伝子、遺伝性のがん、遺伝のご相談は、臨床遺伝専門医が運営するミネルバクリニックへ。遺伝子検査の解釈から遺伝カウンセリングまで、終始責任をもって支援します。一人で抱え込まないでください。
🏥 ミネルバクリニックの特徴
臨床遺伝専門医が運営する、稀有な医療機関です
✓ 遺伝子検査の設計・結果説明・遺伝カウンセリングまで一貫対応
✓ 必要な検査をターゲット法で精度よく行うことを重視
✓ 生涯にかかわる情報だからこそ、スピードより「正確性」を最優先
「患者のための医療を実現することを貫いています」
関連記事
参考文献
- [1] Amino acid transporter SLC7A11/xCT at the crossroads of regulating redox homeostasis and nutrient dependency of cancer. Cancer Commun (Lond). 2018. [PMC5993148]
- [2] SLC7A11/xCT in cancer: biological functions and therapeutic implications. Am J Cancer Res. 2020. [PMC7642655]
- [3] Slc7a11 gene controls production of pheomelanin pigment and proliferation of cultured cells. Proc Natl Acad Sci U S A. 2005. [PMC1178012]
- [4] Cystine transporter SLC7A11/xCT in cancer: ferroptosis, nutrient dependency, and cancer therapy. Protein Cell. 2021. [PMC8310547]
- [5] The structure of erastin-bound xCT–4F2hc complex reveals molecular mechanisms underlying erastin-induced ferroptosis. Cell Res. 2022. [PMC9253326]
- [6] Actin cytoskeleton vulnerability to disulfide stress mediates disulfidptosis. Nat Cell Biol. 2023. [PMC10027392]
- [7] SLC7A11/xCT in cancer: biological functions and therapeutic implications. Am J Cancer Res. 2020. [PMC7642655]
- [8] Ferroptosis as a p53-mediated activity during tumour suppression. Nature. 2015. [PMID 25799988]
- [9] BAP1 links metabolic regulation of ferroptosis to tumour suppression. Nat Cell Biol. 2018. [PMC6170713]
- [10] The Cystine/Glutamate Antiporter, System xc–, Contributes to Cortical Infarction After Moderate but Not Severe Focal Cerebral Ischemia in Mice. Front Cell Neurosci. 2022. [PMC9165760]
- [11] SLC7A11 is an unconventional H+ transporter in lysosomes. Cell. 2025. [PMID 40280132]
- [12] CD8+ T cells regulate tumour ferroptosis during cancer immunotherapy. Nature. 2019. [PMID 31043744]
- [13] Precision Ferroptosis Amplification via SLC7A11-Directed Proteasomal Degradation for Enhanced Cancer Therapy. Adv Healthc Mater. 2026. [PMID 41467569]
- [14] Imaging NRF2 activation in non-small cell lung cancer with positron emission tomography. Nat Commun. 2024. [PMC11652680]
- [15] Kynurenine importation by SLC7A11 propagates anti-ferroptotic signaling. Mol Cell. 2022. [PMID 35245456]
本記事は情報提供を目的としており、特定の検査・治療の推奨や、診断・医療行為に代わるものではありません。個別の医療判断については、必ず担当医にご相談ください。(公開日:2026年8月29日/更新日:2026年8月30日)






