

目次
- 1 1. HEXIM2遺伝子とは ─ 転写の「ブレーキ役」をつくる遺伝子
- 2 2. 遺伝子としての基本 ─ 場所・仲間・転写産物
- 3 3. 7SK・P-TEFbのしくみ ─ 「待機するアクセル」という発想
- 4 4. HEXIM2タンパク質の構造 ─ 3つの領域で役割を分担
- 5 5. HEXIM1との違い ─ どこまで同じで、どこから違うのか
- 6 6. 発現とバランス調整 ─ 片方が減れば、もう片方が補う
- 7 7. がん・HIVとの関わり ─ 期待とエビデンスの距離
- 8 8. 遺伝診療との接点 ─ 「原因遺伝子ではない」という情報の意味
- 9 9. 未解明の課題 ─ なぜ2つのHEXIMが必要なのか
- 10 10. よくある誤解
- 11 まとめ ─ 転写のバランスを支える「もう一つのブレーキ」
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
遺伝子の中には、病気の原因として名前が知られているものだけでなく、「細胞の中で情報がどれだけ活発に読み取られるか」を裏側で調整している、いわば調節役のグループがあります。HEXIM2(ヘキシム2)遺伝子は、その一つです。遺伝子の情報を写し取る「転写」というはたらきの中で、アクセルにあたるP-TEFb(ピー・テフビー)という因子に一時停止をかける、ブレーキ役のタンパク質をつくります。よく似た兄弟遺伝子であるHEXIM1(ヘキシム1)の陰に隠れて研究の数はまだ多くありませんが、片方が減るともう片方が補うという、精巧なバランス調整のしくみが見えてきています。この記事では、HEXIM2とは何か、7SK(セブンエスケー)というRNAやP-TEFbとどう協力しているのか、そしてがんやHIV、遺伝診療とどうつながるのかを、HEXIM2の分子機能と現在の臨床的な位置づけを、基礎研究と遺伝医学の観点から整理します。
Q. HEXIM2遺伝子とは何ですか?まず結論だけ知りたいです
A. HEXIM2遺伝子は、遺伝子情報を読み取る「転写」のスピードを調整するP-TEFbという因子に、7SKという小さなRNAと協力してブレーキをかける、調節タンパク質HEXIM2の設計図です。いわば、いつでも走り出せるアクセル(P-TEFb)を「待機状態」でプールしておくための、安全装置の一部です。よく似た兄弟であるHEXIM1と協力しあい、片方が足りなくなるともう片方が量・はたらきの両面で補います[1]。現時点でHEXIM2そのものが原因と確定した単一遺伝子の病気は見つかっておらず、基礎的な転写研究の遺伝子として位置づけられています。
🧬 HEXIM2遺伝子の基本情報
| 項目 | 内容 |
|---|---|
| 遺伝子記号・読み方 | HEXIM2(ヘキシム2)。正式名称は「HEXIM P-TEFb complex subunit 2」 |
| 旧名・別名 | hexamethylene bisacetamide inducible 2、FLJ32384 |
| 染色体上の位置 | 第17番染色体長腕(17q21.31)、順鎖(forward strand) |
| 主なデータベースID | Ensembl:ENSG00000168517/UniProt:Q96MH2/HGNC:28591/OMIM:615695 |
| ヒトのパラログ(兄弟遺伝子) | HEXIM1(1つ) |
| 主なはたらき | 7SK RNAと協力してP-TEFb(CDK9/サイクリンT)を捕まえ、転写伸長にブレーキをかける[3] |
| 確立した疾患 | HEXIM2単独が原因の遺伝性疾患は現時点で確認されていない |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた遺伝子解説です。特定の検査を勧めるものではありません。
1. HEXIM2遺伝子とは ─ 転写の「ブレーキ役」をつくる遺伝子
わたしたちの体のほぼすべての細胞は、同じ設計図(DNA)を持っています。それでも心臓の細胞と皮膚の細胞がまったく違うはたらきをするのは、どの遺伝子を・いつ・どれくらい読み取るかが細かく調整されているからです。この「読み取り」の最初の段階が転写で、DNAの情報がRNAへと写し取られます。HEXIM2遺伝子は、この転写のスピードを調整する側にまわる遺伝子です。
HEXIM2という名前は、もともとヘキサメチレンビスアセトアミド(hexamethylene bisacetamide、略してHMBA)という化合物で発現が変化するタンパク質群にちなんで付けられました。現在の分類では、その由来よりも「P-TEFbという因子を制御するはたらき」が前面に出ており、正式名称も「HEXIM P-TEFb complex subunit 2(HEXIM・P-TEFb複合体サブユニット2)」に変わっています[4]。
💡 用語解説:転写とP-TEFb
「転写」とは、DNAに書かれた遺伝情報を、RNAという写しに書き写す作業のことです。この作業を実際に行うのがRNAポリメラーゼIIという酵素です。ところがこの酵素は、遺伝子の入り口で少し進んだところで一度立ち止まる(一時停止する)ことが知られています。この一時停止を解除して本格的な読み取り(伸長)へと進ませる「発進スイッチ」が、P-TEFbです。HEXIM2は、このP-TEFbが暴走しないよう、必要なときまで待機させておくブレーキ側の部品です。
大切なのは、HEXIM2が単独で何かを「切ったり」「くっつけたり」する酵素ではない、という点です。HEXIM2は、RNAに結合する力、P-TEFbに結合する力、そして自分どうしで組み合わさる力という3つを組み合わせて、複合体(分子の集まり)の中でブレーキとしてはたらく調節タンパク質です。この「反応そのものより、集まってバランスを取ることで機能する」という性質が、HEXIM2を理解するうえでの出発点になります。
2. 遺伝子としての基本 ─ 場所・仲間・転写産物
HEXIM2遺伝子は、ヒトの第17番染色体の長腕(17q21.31)にあり、順鎖の向きに並んでいます。つくられるタンパク質はUniProtでQ96MH2として登録され、標準的なかたちは286個のアミノ酸からできています[5]。1つの遺伝子から複数の種類の写し(転写産物・スプライスバリアント)がつくられますが、その数はデータベースの更新ごとに変わり得るため、現時点では「複数の転写産物がある」という理解にとどめておくのが正確です。これらすべてが安定した別々のタンパク質になるとは限らず、個々のバリアントの生化学的な違いは、主要な研究ではまだほとんど分かっていません。
💡 用語解説:パラログ(兄弟遺伝子)
大昔に1つの遺伝子がコピーされて2つに増えたとき、その2つはパラログ(同じ生き物の中の兄弟遺伝子)と呼ばれます。HEXIM2にとってのパラログは、ヒトではHEXIM1ただ1つです。逆にHEXIM1から見た兄弟もHEXIM2で、2つは互いに「唯一の相棒」の関係にあります。配列は全体としてよく似ていますが、N末端(タンパク質の頭側)を含め、完全に同一ではありません。
HEXIM2はヒトだけが持つ特別な遺伝子ではなく、多くの脊椎動物に対応する遺伝子(オルソログ)が存在する、進化的に保存されたファミリーの一員です。さらに視野を広げると、ショウジョウバエにもHEXIMファミリーに相当する遺伝子(dHEXIM)があり、こちらは発生に欠かせないことが報告されています。ショウジョウバエでdHEXIMを大きく減らすと胚が生き残れず、特定の組織で減らすと発生に重い異常が出ました[6]。ただし、これはHEXIMファミリー全体の進化的な重要性を示すものであって、「ヒトのHEXIM2だけが発生に必須」という証拠ではない点に注意が必要です。脊椎動物では遺伝子が重複した後、HEXIM1と2で役割を部分的に分け合った可能性が考えられています。
3. 7SK・P-TEFbのしくみ ─ 「待機するアクセル」という発想
HEXIM2のはたらきを理解するには、まずP-TEFbという因子と、それを取り巻くしくみを知る必要があります。P-TEFbは、CDK9というキナーゼ(リン酸をつける酵素)と、サイクリンT(T1またはT2)がペアになった複合体です。P-TEFbは、一時停止していたRNAポリメラーゼIIにリン酸という目印を付けることで、本格的な転写(伸長)へと発進させます[7]。転写のアクセルにあたる、とても重要な因子です。
細胞は、このアクセルをいつも全開にしているわけではありません。細胞の核の中では、タンパク質をつくらないRNA(ノンコーディングRNA)の一種である7SK snRNAが足場となり、そこにP-TEFbを可逆的に(いつでも放せるかたちで)閉じ込めておく大きな複合体(7SK snRNP)がつくられます。この複合体の中で、7SK RNAと手を組んでP-TEFbのキナーゼ活性を抑え込む役が、HEXIM1またはHEXIM2なのです[8]。
2005年に報告されたByersらの研究は、HEXIM2について最も基本となる一次研究です。この研究は、HEXIM2がHEXIM1に似たタンパク質として、7SKとの結合を介してP-TEFbを負に(抑える方向に)制御することを、実験で直接示しました[3]。電気泳動を使った結合実験や試験管内でのキナーゼ活性測定から、HEXIM2が7SKとP-TEFbを含む複合体をつくり、7SKと一緒になってP-TEFbの活性を抑えることが確かめられています[3]。
💡 用語解説:7SK snRNP という「貯金箱」
7SK snRNP(セブンエスケー・スモール核リボ核タンパク質)は、7SK RNAを土台に、それを安定させるLARP7・MEPCEというタンパク質、そしてHEXIM1(またはHEXIM2)とP-TEFbが集まった複合体です。ここに閉じ込められたP-TEFbは、壊れているわけでも未完成なわけでもありません。いつでも活性化できる「使えるアクセル」を、あえて抑えた状態で貯めておく貯金箱のようなものだと考えると分かりやすいでしょう。必要になれば放出され、すぐにはたらけます。
さらに生化学的な解析によって、この大きな不活性のP-TEFb複合体には、おおよそ1分子の7SK RNA+HEXIM1(またはHEXIM2)の二量体+2分子のP-TEFbという構成が含まれ得ることが示されました[9]。しかも、この複合体の中のCDK9は、活性化に必要なトレオニン186(Thr186)という部位がリン酸化された「本来なら働ける形」でありながら、HEXIMと7SKによって機能的に抑えられていました[9]。つまり7SK snRNPは、未熟な酵素をしまっているのではなく、すぐ使える状態のアクセルを、抑えたまま貯蔵しているバッファー(緩衝装置)だと考えられます。
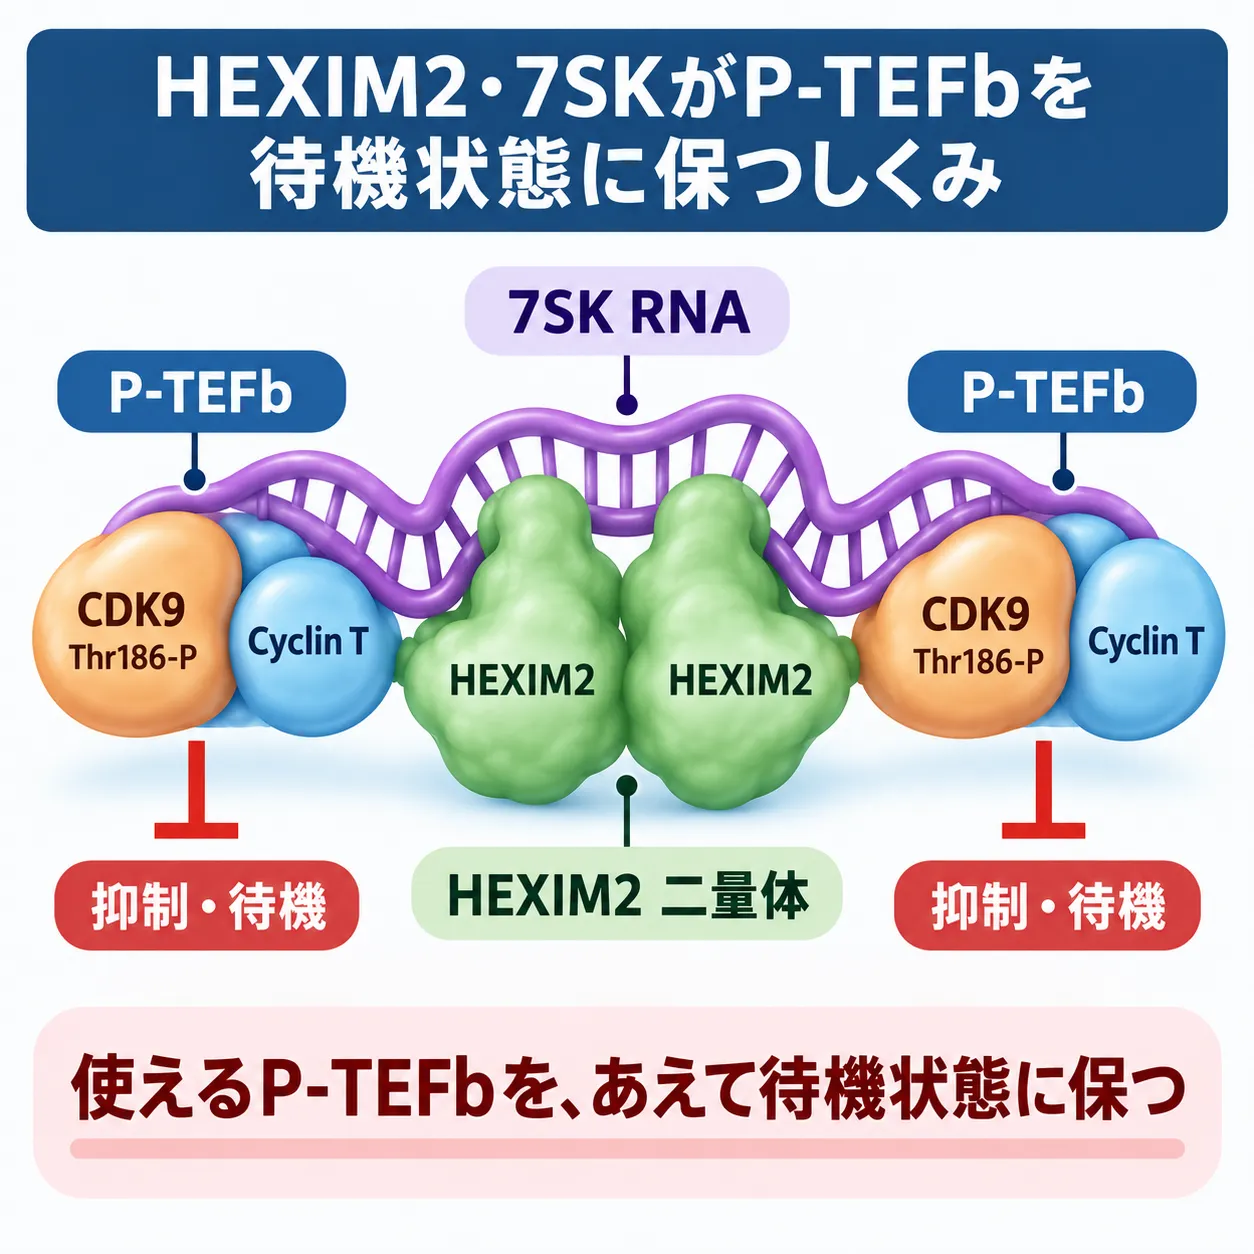
7SK RNAを足場としてHEXIM2二量体がP-TEFb(CDK9+Cyclin T)と複合体を形成し、その活性を抑制する仕組みを示します。複合体中のCDK9は活性化に必要なThr186がリン酸化された状態でも、7SKとHEXIM2によって機能的に抑制されており、P-TEFbは必要時に利用できる「待機状態」として保持されます。
4. HEXIM2タンパク質の構造 ─ 3つの領域で役割を分担
HEXIMタンパク質は、典型的な酵素のような「反応を起こす道具」ではなく、複数の相手と結びつくことではたらく調節タンパク質です。HEXIM2の全長の立体構造は、HEXIM1ほど詳しく解析されていません。そのため、ここで示す領域のモデルは、HEXIM2の2005年の機能解析と、HEXIM1で行われた詳しい変異・構造研究を組み合わせた「機能的なモデル」として理解してください。
おおまかに、HEXIM2タンパク質は3つの部分に分けて考えられます。頭側(N末端)は種による違いが比較的大きい領域、真ん中はアルギニンに富む塩基性の領域で、ここが7SK RNAを認識して結合します。そして尾側(C末端)は、P-TEFbとの安定な結合と、自分どうしの組み合わせ(オリゴマー化)を担う領域です。
HEXIM1では、このアルギニンに富む塩基性領域が7SKとの結合に不可欠で、7SKが結合することによってはじめてP-TEFbを抑える状態へと切り替わることが、詳しく示されています。HEXIM2も7SKに依存してP-TEFbに会合するため、同じ基本設計を共有していると考えられます。C末端側については、DulacらがHEXIM1とHEXIM2が安定なホモ二量体(同じ種類どうし)およびヘテロ二量体(HEXIM1とHEXIM2の組み合わせ)をつくることを示し、これが複数のP-TEFb分子を取り込むしくみと結びつくモデルを提示しました[10]。
一方で、HEXIM1については、進化的に保存された短いペプチド(PYNT配列と呼ばれる領域)がCDK9の活性中心へ直接作用してキナーゼを抑える、という分子レベルのしくみが後の研究で精密に示されています[11]。しかし、これと同じ高解像度の解析がHEXIM2そのものについて行われたという確かな証拠は、現時点では見当たりません。ここは「HEXIM1からの妥当な推定」と「HEXIM2で直接確かめられた事実」を、はっきり区別しておく必要があります。
💡 用語解説:翻訳後修飾とリン酸化
タンパク質は、つくられた後にリン酸などの小さな目印を付けたり外したりすることで、はたらきを細かく調整されます。これを翻訳後修飾といいます。HEXIM2も、細胞の核の中でリン酸化され得るタンパク質であることが、大規模なタンパク質解析(プロテオミクス)で検出されています。ただし、どの部位の修飾がHEXIM2のはたらきをどう変えるか、という因果のつながりが確立したものは、まだ分かっていません。
🩺 院長コラム【「よく似ている」ことと「同じ」ことは違う】
遺伝子やタンパク質を読み解くとき、遺伝医学では、「配列がよく似ている=はたらきも同じ」とは限らない、という点が重要です。HEXIM1とHEXIM2は、まさにその好例です。両者はよく似ていて、実際に片方がもう片方を補えるほどですが、それでも進化の中で両方が保たれてきました。似ているのに両方残っているという事実は、「どこかに、片方にしかできない役割があるのではないか」という問いを投げかけます。
同じ遺伝子ファミリーでも、変異の性質や分子・組織の文脈によって意味が変わります。文献を踏まえて分子のふるまいを一段深く見ることが、遺伝子検査の結果を解釈するうえでも役に立ちます。
5. HEXIM1との違い ─ どこまで同じで、どこから違うのか
HEXIM2を語るうえで避けて通れないのが、兄弟遺伝子HEXIM1との比較です。両者は「7SKに結合してP-TEFbを抑える」という中心的な機能を共有しており、その意味ではかなり似ています。実際、Byersらは、HEXIM1を減らすとHEXIM2がその役割を機能的に補うことを直接示しました[3]。しかし、研究の蓄積量や、細部のはたらきには、無視できない差(非対称性)があります。
🔬 HEXIM2とHEXIM1の比較
| 特徴 | HEXIM2 | HEXIM1 |
|---|---|---|
| ヒトでの関係 | HEXIM1のパラログ | HEXIM2のパラログ(互いに唯一の兄弟) |
| 7SK RNAとの結合 | 結合し、P-TEFb抑制に必要(直接実証) | 結合し、P-TEFb抑制に必要 |
| P-TEFbの抑制 | 7SK依存的に複合体へ入り抑制[3] | 同様 |
| オリゴマー化 | HEXIM2どうし・HEXIM1との組み合わせが可能[10] | HEXIM1どうし・HEXIM2との組み合わせが可能 |
| 構造・変異の解析量 | 少ない。一部をHEXIM1から推定 | 詳しい変異・構造解析あり[11] |
| 7SK以外のはたらき | 十分に確立していない | 他のRNAや核内のハブ機能など多数報告[12] |
| 生体内(動物)の遺伝学 | 専用の全身ノックアウトの体系的データは乏しい | より豊富 |
※HEXIM1とHEXIM2の正確な配列一致率は、比較に使うバリアントや手法によって変わるため、ここでは特定の数値を挙げていません。
この表からわかる最大の非対称点は、「7SK以外のはたらき」です。HEXIM1については、7SK以外のRNAとの結合や、転写因子・核内受容体との相互作用など、「RNAに制御されるタンパク質のハブ(結節点)」とも呼べる多彩な機能が報告されています[12]。一方、HEXIM2の文献は依然としてP-TEFb・7SK機能に集中しており、同じ多彩さがHEXIM2にもあるかどうかは、まだ証明されていません。HEXIM1で分かったことをそのままHEXIM2に当てはめることは、現状の証拠では適切ではありません。
6. 発現とバランス調整 ─ 片方が減れば、もう片方が補う
HEXIM2は、特定の狭い組織だけにあらわれる遺伝子ではありません。発現情報を集めたデータベースでは、多くの組織・細胞で発現が確認されています。旧来の統合的なアノテーション(注釈)では「広く発現するが、精巣で比較的高い」と要約されており、最も慎重な言い方をすれば「広範囲に発現し、精巣で相対的に高いというデータセットがある」となります。
ここで重要なのが、HEXIM1とHEXIM2の量の比(バランス)です。Yikらは、両者が似たP-TEFb抑制能を持ちながら、ヒトの組織や細胞株によって発現パターンが異なる(distinct expression patterns)ことを報告し、その量比がP-TEFb制御の細胞種ごとの違いを生み得ることを示しました[1]。
このバランス調整を最もよく示すのが、代償(補い合い)の現象です。細胞のHEXIM1を人為的に減らす(ノックダウンする)と、HEXIM2が量・はたらきの両面で補い、7SKに結合した不活性型P-TEFbの総量をほぼ一定に保ちました[1]。これは、HEXIM遺伝子どうしのあいだに、恒常性を保つためのクロストーク(相互のやり取り)があることを示す、強い証拠です。細胞は、活性型と不活性型のP-TEFbの比率を、HEXIMファミリー全体の量でしっかり調節しているのです。
💡 実験を解釈するうえでの注意点
この代償のしくみは、実験結果の読み方にも大切な注意を投げかけます。HEXIM2を単独で減らしても大きな変化が出ないからといって、HEXIM2が不要だとは限りません。HEXIM1が肩代わりして表現型(見た目の変化)を隠してしまう可能性があるからです。HEXIM2に固有の役割を本当に調べるには、HEXIM1と2を同時に操作する、急速に分解させる技術(degron)を使う、組織ごとにノックアウトする、といった工夫が必要になります。
7. がん・HIVとの関わり ─ 期待とエビデンスの距離
P-TEFbは、がん・炎症・HIV(ヒト免疫不全ウイルス)の転写など、医療上重要な場面に深く関わっています。そのブレーキ役であるHEXIM2にも、当然、病気との関わりが期待されます。ただし、期待とエビデンス(証拠)のあいだには、まだ距離があります。
がんとの関わり
古い発現スクリーニングの研究で、HEXIM2(当時L3として報告)は非小細胞肺がんで過剰発現する候補遺伝子群の一つとして同定されました[2]。しかし、これを「HEXIM2が肺がんの原因(ドライバー)である」と解釈する根拠は不足しています。腫瘍でのmRNAの上昇は、増殖の速さ、細胞の構成、転写ストレス、P-TEFb需要の増大などにともなう二次的な変化でも説明できるためです。HEXIM2について、くり返し見つかる活性化変異、必須性を示す生体内の腫瘍モデル、患者を層別化できる予後効果、薬剤反応を予測する前向きのバイオマーカー、といった一連の証拠は、現時点では確立していません。
HIVとの関わり
HIVのTat(タット)というタンパク質は、P-TEFbを利用してウイルスの転写を強力に進めます。そのため、7SK・HEXIM・P-TEFbの軸はHIV研究でとても重要です。ただし、この分野の詳しいメカニズム研究の多くはHEXIM1を対象としており、HEXIM2に固有の抗HIV機能や臨床的な標的性を直接証明したデータは限られています。HEXIM2がP-TEFbのプールを調節する以上、HIVの転写に影響し得るというしくみ上の妥当性は高いものの、それは臨床応用の証明とは別の話です。
📋 HEXIM2の臨床的な位置づけ(現時点)
| 項目 | 現在の評価 |
|---|---|
| 単一遺伝子疾患 | 確立したHEXIM2単独の遺伝性疾患は確認されていない |
| がんとの関連 | 発現相関の報告あり。ただし因果関係は弱い[2] |
| HIV | P-TEFb制御を通じたしくみ上の関連は強いが、HEXIM2固有の臨床エビデンスは弱い |
| 薬剤標的 | HEXIM2そのものを標的とする承認薬は確認されていない |
| 検査で使うバイオマーカー | 臨床で検証されたバイオマーカーとしては未確立 |
| 病的バリアント | 臨床的に確立した主要な病的バリアントは確認されていない |
※上表は現時点で優先的に確認できた主要文献にもとづく整理であり、研究の進展により変わり得ます。
まとめると、HEXIM2は現時点では「臨床遺伝子」というより「基礎的な転写制御の遺伝子」とみなすのが妥当です。一方で、CDK9を狙う薬や、転写への依存度が高い腫瘍を研究する場面では、HEXIM2とHEXIM1の比がP-TEFbの使える量を左右する可能性は、検討する価値があります。ただしこれは、これまでの代償のしくみから導かれる研究上の仮説であって、臨床的に検証済みの事実ではありません。
8. 遺伝診療との接点 ─ 「原因遺伝子ではない」という情報の意味
遺伝子検査を受けると、たくさんの遺伝子について「変化があるかどうか」の情報が返ってきます。その中には、HEXIM2のように、現時点では病気との因果関係が確立していない遺伝子も含まれます。こうした遺伝子の情報を、どう受け止めればよいのでしょうか。
まず知っておきたいのは、「今のところHEXIM2単独が原因と確定した病気は見つかっていない」という情報そのものにも価値があるということです。遺伝子検査では、意味のはっきりしない変化(バリアント)が見つかることが少なくありません。ある遺伝子に確立した疾患関連がないことを知っておくと、過度に不安になったり、逆に安心しすぎたりすることを避け、落ち着いて結果全体を見渡すための材料になります。
💡 用語解説:バリアント(遺伝子の変化)
「変異」や「バリアント」とは、遺伝子の並び(DNAの配列)が多くの人と異なっている状態を指します。病気につながるものもあれば、体質の個性にとどまるものもあります。HEXIM2のように調節役の遺伝子であっても、そのはたらき(RNA結合・P-TEFb抑制・二量体形成など)が損なわれるような変化であれば、理屈のうえでは影響が出る可能性はあります。ただし、それが実際にヒトの病気を起こすかどうかは、証拠がそろってはじめて言えることです。
HEXIM2の研究は、「遺伝子のはたらきを、単純な一面だけで判断してはいけない」という視点も教えてくれます。反応そのものを起こさない調節タンパク質でも、複合体の中でバランスを取る役として重要なら、その変化は意味を持ち得ます。臨床遺伝専門医として文献を踏まえると、こうした「役割の重み」を見極める姿勢は、遺伝子検査で見つかった変化を解釈するうえで欠かせません。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのか、といった点です。HEXIM2のように基礎研究が中心の遺伝子は、日常の診療で単独に検査する対象ではありませんが、「遺伝子のはたらきをどう読み解くか」という理解の土台として位置づけられます。正確な情報にもとづいて選択肢を検討できるよう、中立の立場で判断材料を整理する役割を担います。
9. 未解明の課題 ─ なぜ2つのHEXIMが必要なのか
HEXIM2をめぐる最も本質的な問いは、「なぜ脊椎動物はHEXIM1とHEXIM2の両方を持ち続けているのか」です。P-TEFbを閉じ込めるという基本反応だけを見ると両者はかなり重複しており、実際HEXIM1の減少をHEXIM2が補えます。しかし、この重複だけでは、遺伝子が重複した後も両方が保たれてきた理由を完全には説明できません。発現のタイミング、RNAへの好み、相互作用する相手、ストレス応答、組織ごとの違いのどこかに、片方にしかできない役割(非冗長機能)がある可能性が高いと考えられます。
今後の研究の方向性としては、次のようなものが挙げられます。第一に、内在性のHEXIM2そのものの構造解析です。HEXIM1・HEXIM2それぞれのホモ二量体と、両者のヘテロ二量体を直接比べれば、機能の差を分子レベルで検証できます。第二に、HEXIM1と2を同時に操作する二重の遺伝学です。単独のノックアウトでは補い合いが起きてしまうため、両方を同じ条件で比較し、「どこで補償が破綻するか」を調べる必要があります。第三に、1細胞レベルでの発現とP-TEFb活性の同時計測や、HEXIM2に固有のRNA相互作用の検証、そしてどの修飾が機能を変えるかの因果解析です。
結局のところ、HEXIM2研究のボトルネックは「はたらきが分からない」ことではありません。基本的なはたらきがHEXIM1と似すぎているために、HEXIM2に固有の生物学が、従来の過剰発現や単独ノックダウンの実験では見えにくい、という点にあります。兄弟遺伝子を同時に操作し、内在レベルで構造・RNA相互作用・細胞種・P-TEFb活性を統合して見ていく研究が、HEXIM2の本当の役割を明らかにする鍵になると考えられます。
🩺 院長コラム【「まだ分かっていない」を正しく伝える】
遺伝医療の情報発信で難しいのは、「分かっていること」と「まだ分かっていないこと」を、どちらも誇張せずに伝えることです。HEXIM2は、転写のブレーキ役としての基本的なはたらきははっきりしている一方で、生体内での固有の役割や病気との因果関係は、これからの課題として残されています。
こうした「確からしさの濃淡」を丁寧に区別することは、遺伝子検査の結果を読み解くときの姿勢とまったく同じです。断定できることは断定し、分からないことは分からないと伝える。その積み重ねが、ご本人やご家族が次の判断を行うための土台になります。
10. よくある誤解
誤解①「HEXIM2はHEXIM1の弱いコピー」
HEXIM2は「HEXIM1の劣化版」ではありません。7SK依存的にP-TEFbを抑える能力を持ち、HEXIM1が減ると量・はたらきの両面で補うことが実験で示されています。単なる予備ではなく、バランス調整に不可欠な存在です。
誤解②「ブレーキ役だから、あってもなくても同じ」
P-TEFbはいつでも走り出せるアクセルで、それを待機状態で貯めておくしくみが転写の暴走を防ぎます。HEXIM2はその安全装置の一部であり、バランスが崩れれば転写全体に影響し得ます。
誤解③「肺がんで高いなら、がんの原因だ」
肺がんでHEXIM2の発現が高いという古い報告はありますが、これは相関のレベルです。増殖や転写ストレスにともなう二次的な変化でも説明でき、原因(ドライバー)である証拠は今のところありません。
誤解④「HEXIM1で分かったことは全部あてはまる」
HEXIM1には7SK以外の多彩なはたらきが報告されていますが、それをそのままHEXIM2に当てはめる根拠は、現状ありません。HEXIM2で直接確かめられた事実と、推定を区別することが大切です。
まとめ ─ 転写のバランスを支える「もう一つのブレーキ」
HEXIM2遺伝子は、遺伝子情報を読み取る転写のスピードを、7SK RNAと協力してP-TEFbにブレーキをかけることで調整する、調節タンパク質の設計図です。兄弟遺伝子HEXIM1とよく似ており、片方が減るともう片方が補うという精巧なバランス調整のしくみが、複数の一次研究で再現的に確かめられています[1][3]。この「待機できるアクセルを、抑えた状態で貯めておく」というしくみは、細胞が転写全体を安定して制御するための、巧みな設計です。
一方で、HEXIM2に固有の構造、生体内での役割、病気との因果関係、そしてなぜHEXIM1と2の両方が必要なのかといった問いは、いまも主要な未解明課題として残されています。現時点でHEXIM2そのものが原因と確定した病気はなく、基礎的な転写制御の遺伝子として位置づけられます。遺伝医療の現場では、「分かっていること」と「これからの課題」を丁寧に区別しながら、正確な情報にもとづいて判断材料を整えていくことが大切です。
よくある質問(FAQ)
Q1. HEXIM2遺伝子とは何ですか?
HEXIM2遺伝子は、遺伝子情報を読み取る「転写」のスピードを調整するP-TEFbという因子に、7SKという小さなRNAと協力してブレーキをかける、調節タンパク質HEXIM2の設計図です。第17番染色体(17q21.31)にあり、UniProtではQ96MH2として登録されています。兄弟遺伝子であるHEXIM1と協力しあい、片方が減るともう片方が補うことで、待機状態のP-TEFb量を一定に保ちます。
Q2. HEXIM2とHEXIM1は何が違うのですか?
両者は「7SKに結合してP-TEFbを抑える」という中心的なはたらきを共有しており、互いに補い合えるほど似ています。ただし、HEXIM1のほうが構造や変異の解析が進んでおり、7SK以外のRNAや転写因子との相互作用など多彩なはたらきが報告されています。HEXIM2はまだP-TEFb・7SK機能を中心に研究されており、HEXIM1で分かったことをそのまま当てはめられるかは分かっていません。
Q3. HEXIM2はどんな病気と関係がありますか?
現時点で、HEXIM2そのものが原因と確定した単一遺伝子の病気は見つかっていません。古い研究では非小細胞肺がんで過剰発現する候補遺伝子群の一つとして報告されていますが、これは相関のレベルで、原因である証拠にはなりません。P-TEFbはHIVの転写やがんに関わるため、しくみ上はHEXIM2も影響し得ますが、HEXIM2固有の臨床的な証拠は限られています。
Q4. HEXIM2は遺伝子検査で調べる対象ですか?
HEXIM2は基礎研究が中心の遺伝子で、日常の診療で単独に検査する対象ではありません。ただし、遺伝子のはたらきをどう読み解くかという理解の土台として役立ちます。ある遺伝子に確立した疾患関連がないことを知っておくことも、検査結果を落ち着いて受け止めるための材料になります。結果の解釈は、臨床遺伝専門医による遺伝カウンセリングの中で整理していくことができます。
Q5. 「転写のブレーキ役」とは、具体的にどういう意味ですか?
転写を発進させるアクセルにあたるのがP-TEFbという因子です。細胞はこのアクセルをいつも全開にせず、7SKというRNAを足場にした複合体の中に、抑えた状態で貯めておきます。HEXIM2は、この複合体の中でP-TEFbの活性を抑えるブレーキの役を担います。壊れたアクセルをしまっているのではなく、すぐ使えるアクセルを待機させておくための、安全装置のような存在です。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子のはたらきや遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Yik JHN, Chen R, Pezda AC, Zhou Q. Compensatory contributions of HEXIM1 and HEXIM2 in maintaining the balance of active and inactive positive transcription elongation factor b complexes for control of transcription. J Biol Chem. 2005;280(16):16368-16376. doi:10.1074/jbc.M500912200. [PubMed 15713661]
- [2] Petroziello J, Yamane A, Westendorf L, et al. Suppression subtractive hybridization and expression profiling identifies a unique set of genes overexpressed in non-small-cell lung cancer. Oncogene. 2004;23(46):7734-7745. doi:10.1038/sj.onc.1207921. [PubMed 15334068]
- [3] Byers SA, Price JP, Cooper JJ, Li Q, Price DH. HEXIM2, a HEXIM1-related protein, regulates positive transcription elongation factor b through association with 7SK. J Biol Chem. 2005;280(16):16360-16367. doi:10.1074/jbc.M500424200. [PubMed 15713662]
- [4] HEXIM2 HEXIM P-TEFb complex subunit 2 [Homo sapiens (human)]. NCBI Gene. [NCBI Gene 124790]
- [5] Gene: HEXIM2 (ENSG00000168517) — Homo sapiens. Ensembl. [Ensembl ENSG00000168517]
- [6] Nguyen D, Krueger BJ, Sedore SC, et al. The Drosophila 7SK snRNP and the essential role of dHEXIM in development. Nucleic Acids Res. 2012;40(12):5283-5297. doi:10.1093/nar/gks191. [PubMed 22379134]
- [7] Michels AA, Nguyen VT, Fraldi A, et al. MAQ1 and 7SK RNA interact with CDK9/cyclin T complexes in a transcription-dependent manner. Mol Cell Biol. 2003;23(14):4859-4869. doi:10.1128/MCB.23.14.4859-4869.2003. [PubMed 12832472]
- [8] Quaresma AJC, Bugai A, Barboric M. Cracking the control of RNA polymerase II elongation by 7SK snRNP and P-TEFb. Nucleic Acids Res. 2016;44(16):7527-7539. doi:10.1093/nar/gkw585. [PubMed 27369380]
- [9] Li Q, Price JP, Byers SA, Cheng D, Peng J, Price DH. Analysis of the large inactive P-TEFb complex indicates that it contains one 7SK molecule, a dimer of HEXIM1 or HEXIM2, and two P-TEFb molecules containing Cdk9 phosphorylated at threonine 186. J Biol Chem. 2005;280(31):28819-28826. doi:10.1074/jbc.M502712200. [PubMed 15965233]
- [10] Dulac C, Michels AA, Fraldi A, et al. Transcription-dependent association of multiple positive transcription elongation factor units to a HEXIM multimer. J Biol Chem. 2005;280(34):30619-30629. doi:10.1074/jbc.M502471200. [PubMed 15994294]
- [11] Kobbi L, Demey-Thomas E, Braye F, Proux F, Kolesnikova O, Vinh J, Poterszman A, Bensaude O. An evolutionary conserved Hexim1 peptide binds to the Cdk9 catalytic site to inhibit P-TEFb. Proc Natl Acad Sci U S A. 2016;113(45):12721-12726. doi:10.1073/pnas.1612331113. [PubMed 27791144]
- [12] Michels AA, Bensaude O. Hexim1, an RNA-controlled protein hub. Transcription. 2018;9(4):262-271. doi:10.1080/21541264.2018.1429836. [PubMed 29345523]






