

目次
- 1 1. 7SK snRNPとは ─ 転写のブレーキを握る「格納庫」
- 2 2. P-TEFbとは ─ 転写を加速する「鍵」
- 3 3. 7SK snRNPの構造 ─ 4つの部品で組み立てる
- 4 4. HEXIM1 ─ P-TEFbを抑え込むスイッチ
- 5 5. P-TEFbの放出と相分離 ─ 必要なときに一気に働く
- 6 6. クロマチンとエンハンサーの制御 ─ 場所を選んで働く
- 7 7. RNAの化学修飾による制御 ─ m6Aとシュードウリジン化
- 8 8. Alazami(アラザミ)症候群 ─ LARP7の変異が招く発達の病気
- 9 9. がん・HIVとの関係 ─ 医療への広がり
- 10 10. よくある誤解
- 11 まとめ ─ 「転写のブレーキ」を握る司令塔
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
遺伝子は、いつでも全開で読まれているわけではありません。多くの遺伝子では、読み取り装置が始まりの手前でいったん「一時停止」し、必要なときにだけブレーキが外れて一気に読み進められます。この「一時停止」と「再スタート」を細かく管理しているのが、7SK snRNP(セブンエスケイ・エスエヌアールエヌピー)という巨大なRNAとタンパク質の複合体です。7SK snRNPは、転写を加速させる強力な酵素P-TEFb(ピー・テフビー/その中心がCDK9)を、いわば「安全装置つきの待機状態」で抱え込んでおく格納庫の役割を担っています。この記事では、7SK snRNPとは何か、どうやって転写のブレーキを操作しているのか、そしてAlazami(アラザミ)症候群という遺伝性疾患やがん・HIV感染とどうつながるのかを、遺伝医学・分子生物学の知見に基づいて解説します。
Q. 7SK snRNPとは何ですか?まず結論だけ知りたいです
A. 7SK snRNPとは、7SKという長い非コードRNAを土台に、複数のタンパク質が組み合わさってできた核の中の巨大な複合体で、遺伝子の「読み取り(転写)」の速度を調整する司令塔です。その最大の役割は、転写を強力に加速する酵素P-TEFb(CDK9)を、すぐに使える待機状態のまま抱え込んで、むやみに働かないよう抑えておくことです。細胞が増殖したり、ストレスやウイルス感染に応じたりするとき、この複合体からP-TEFbが放出され、遺伝子の読み取りが一気に進みます。7SK snRNPの部品(LARP7・MEPCEなど)に生まれつきの変化があると、Alazami症候群という発達の病気につながることも分かっています。
- ➤正体 → 7SK非コードRNAを足場に、LARP7・MEPCE・HEXIM・P-TEFbが組み合わさった核内の複合体
- ➤おもな役割 → 転写を加速する酵素P-TEFb(CDK9)を「待機状態」で抱え込み、活性を抑えておく
- ➤ブレーキの解除 → 増殖シグナルやストレスに応じてP-TEFbが放出され、遺伝子の読み取りが加速する
- ➤病気とのつながり → 部品のLARP7の両アレル性変異はAlazami(アラザミ)症候群の原因になる
- ➤医療への応用 → がん治療のCDK9阻害薬や、BRCA1変異がん・HIV研究の標的として注目されている
🧬 7SK snRNPの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・正体 | セブンエスケイ・エスエヌアールエヌピー。7SK small nuclear ribonucleoprotein(低分子核内リボ核タンパク質)の略 |
| 中心となるRNA | 7SK RNA。RNAポリメラーゼIIIが作る、約331〜332塩基の高発現な非コードRNA[2] |
| おもな部品 | 7SK RNA/MEPCE/LARP7/HEXIM1(またはHEXIM2)/P-TEFb(CDK9+サイクリンT) |
| 主なはたらき | P-TEFb(CDK9)を待機状態で隔離し、転写の伸長を抑える。必要時にはP-TEFbを放出する |
| 関連する疾患 | Alazami(アラザミ)症候群(LARP7の変異)ほか。がん・HIV感染の研究対象 |
| 医療との関わり | 基礎研究が中心の分野。がん治療のCDK9阻害薬など創薬の標的として研究が進む |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 7SK snRNPとは ─ 転写のブレーキを握る「格納庫」
わたしたちの体の細胞では、遺伝子の情報(DNA)が「転写」という過程でRNAに写し取られ、タンパク質づくりの設計図になります。この写し取りを担うのがRNAポリメラーゼII(Pol II)という酵素です。ところが、多くの遺伝子では、Pol IIは読み始めてすぐ、20〜60塩基ほど進んだところで、いったん立ち止まります。これを「プロモーター近傍での一時停止(pausing)」といいます[1]。
この一時停止は、けっして故障ではありません。むしろ、細胞が「いつ・どの遺伝子を・どれくらい読むか」を細かく決めるための、重要なチェックポイント(関所)です[1]。関所を通してよいと判断されたときにだけ、Pol IIは本格的な読み取り(生産的な伸長)へと進みます。この関所を開ける鍵となる酵素が、次章でくわしく述べるP-TEFbです。
そして、この強力な鍵であるP-TEFbを、ふだんは「すぐ使えるけれど、勝手には働かない」待機状態で抱え込んでいるのが、この記事の主役7SK snRNPです。7SK snRNPは、7SKという長い非コードRNA(タンパク質の設計図にはならないRNA)を土台に、複数のタンパク質が組み合わさってできた、核の中の巨大な複合体です[4]。いわば、強力な工具を安全装置つきのケースに収めておく「格納庫」のような存在です。
💡 用語解説:非コードRNA(ノンコーディングRNA)
RNAには、タンパク質の設計図(メッセンジャーRNA)になるものと、設計図にはならず、それ自体が細胞の中で働く「非コードRNA」があります。7SK RNAは後者の代表で、タンパク質にはならず、複数のタンパク質をまとめる「足場」として働きます。7SK RNAは細胞あたり約20万コピーもあり、ヒトから昆虫まで進化的によく保存された、とてもありふれた非コードRNAです[2]。
2. P-TEFbとは ─ 転写を加速する「鍵」
7SK snRNPの働きを理解するには、まずP-TEFb(正の転写伸長因子b)という酵素を知る必要があります。P-TEFbは、触媒の中心であるCDK9(サイクリン依存性キナーゼ9)と、その相棒であるサイクリンT(おもにCycT1)という2つの部品からできています[1]。
P-TEFbの仕事は、一時停止しているPol IIとその周辺のブレーキ役に、リン酸化という目印を付けることです。具体的には、Pol IIのしっぽ(C末端ドメイン)や、DSIF・NELFといった負のブレーキ因子にリン酸を付けます[1]。すると、ブレーキ役のNELFは複合体から外れ、もう一方のDSIFは逆に「アクセル役」へと性質を変えます。こうしてPol IIは一時停止から解放され、本格的な読み取りへと進むのです[1]。
💡 用語解説:キナーゼとリン酸化
キナーゼとは、ATPからリン酸という小さな目印を、相手のタンパク質に付け替える酵素です。この「リン酸を付ける」ことをリン酸化といいます。リン酸化は、タンパク質のはたらきをオン・オフする「スイッチ」としてよく使われます。CDK9はこのキナーゼの一種で、リン酸化を通じて転写のスイッチを入れる役割を担っています。
これほど強力な酵素だからこそ、細胞は勝手に働かせるわけにはいきません。そこで、細胞内のP-TEFbの大部分は、7SK snRNPの中に「厳重に抑え込まれた状態」で隔離されています[1]。ここで大切なのは、抑え込まれたP-TEFbは完全に壊されているわけではなく、いつでも動ける「準備万端の待機状態」で保管されているという点です[4]。必要になった瞬間に、遅れなく放出できるようになっているのです。
3. 7SK snRNPの構造 ─ 4つの部品で組み立てる
7SK snRNPは、7SK RNAという土台の上に、役割の異なるタンパク質が順番に組み上がってできています。まず全体像を図で見てみましょう。
7SK RNAは、ただの一本の紐ではなく、細胞の中で複雑な立体構造(おもに4つのステムループと呼ばれるヘアピン構造)に折りたたまれます[4]。近年のクライオ電子顕微鏡やNMRという構造解析技術によって、7SK RNAは両端が近づいた「環状」の形と、両端が離れた「線状」の形のあいだを行き来することが分かってきました[3]。この大きな形の変化こそが、タンパク質の付け外しを操るしくみの土台になっています[3]。
💡 用語解説:クライオ電子顕微鏡とNMR
クライオ電子顕微鏡(cryo-EM)は、試料を急速凍結して分子の立体構造を観察する方法です。NMR(核磁気共鳴)は、原子核の磁気的性質を利用して、溶液中での分子構造や動きを調べる方法です。7SK RNPでは、これらを組み合わせることでRNAとタンパク質の配置や構造変化が解析されています。
MEPCE ─ 5’末端に「キャップ」をかぶせる
生まれたばかりの7SK RNAは、そのままだと分解酵素に食べられて壊れてしまいます。そこで、まずMEPCEというタンパク質が、7SK RNAの片方の端(5’末端)にメチル基という「ふた(キャップ)」をかぶせて、この端を守ります[3]。MEPCEはこの修飾を行ったあとも7SK RNAに結合し続け、コア7SK RNPの構成因子となります。LARP7との協調的な相互作用によりMEPCEのメチル化酵素活性は抑えられ、7SK RNAの5′末端側を安定化します[3]。
LARP7 ─ 3’末端を守るシャペロン
もう一方の端(3’末端)を守るのがLARP7というタンパク質です[18]。LARP7は、7SK RNAの端にあるウリジンの並び(ポリU)を認識してつかみ、分解酵素から守ります。さらに、そのしっぽの部分(xRRM2という領域)で7SK RNAのヘアピン構造の一つ(SL4)にしっかり結合します[18]。
💡 用語解説:シャペロン
シャペロンとは、もともと社交界で若い人に付き添う世話役を指す言葉で、細胞生物学では、他の分子が正しい形を保ったり、正しく組み上がったりするのを助けるタンパク質を指します。LARP7は7SK RNA全体の形を安定させるRNAシャペロンとして働き、MEPCEと協力して、7SK snRNPの土台となる「MEPCE-7SK-LARP7」という頑丈な骨組みを完成させます[3]。
こうしてMEPCEとLARP7で両端を守られた7SK RNAは、代謝的にとても安定した「コア7SK snRNP」となります。このコアは、細胞がストレスを受けたときやP-TEFbが離れたあとでも、壊れずに安定して保たれ続けます[4]。
4. HEXIM1 ─ P-TEFbを抑え込むスイッチ
安定したコア7SK snRNPに、抑え込み役のHEXIM1(またはHEXIM2)と、標的であるP-TEFbが組み込まれると、いよいよ「P-TEFbを抑え込む完成形」になります[4]。ここで中心となるのが、HEXIM1というタンパク質の巧妙なしくみです。
HEXIM1には、7SK RNAに結合したときにP-TEFb阻害能が現れる自己阻害機構があります。7SK RNAと結合していない遊離状態のHEXIM1は、自分自身のプラス電荷の部分とマイナス電荷の部分がくっつき合って、P-TEFbと結合する場所をわざと隠しています。これを「自己阻害(オートインヒビション)」といいます[23]。7SK RNAがない場所でうっかりP-TEFbを止めてしまわないための、フェイルセーフ(安全弁)のしくみです[23]。
HEXIM1が7SK RNAの特定の場所(SL1という領域の2か所)に同時に結合すると、この自己阻害が解けます。すると、それまで隠されていたCDK9との結合部位が外に現れ、P-TEFbを捕まえられる状態になります[23]。つまり、7SK RNAという足場の上でだけ、HEXIM1はP-TEFbを捕まえるスイッチが入るのです。
💡 「壊す」のではなく「鍵穴をふさぐ」
HEXIM1は、P-TEFbのはたらきを止めるとき、CDK9そのものを壊すわけではありません。HEXIM1の中の保存された短い配列(PYNTモチーフ)が、CDK9の活性化セグメント近傍に接触し、基質結合面へのアクセスを妨げることでキナーゼ活性を抑える[28]。しかも、このとき捕まえられるCDK9は、あらかじめリン酸化されて「すぐ働ける状態」に整えられています。だからこそ、放出されればただちに活性を発揮できる、準備万端の待機状態が保たれるのです[4]。
5. P-TEFbの放出と相分離 ─ 必要なときに一気に働く
細胞が増殖のシグナルを受けたり、ストレスやウイルス感染にさらされたりすると、7SK snRNPからP-TEFbがすばやく放出され、遺伝子の読み取りが一気に加速します[1]。この放出は、いいかげんに起こるのではなく、精密に制御されています。
放出のきっかけの一つが、ホスファターゼ(脱リン酸化酵素)による作業です。たとえば炎症応答では、PPM1Gという酵素が呼ばれ、CDK9に付いていたリン酸の目印を外します[29]。このTループのリン酸化が外れると、HEXIM1を含む7SK snRNPとの相互作用が弱まり、P-TEFbが複合体から解離します[29]。解離したP-TEFbは、再び活性型として利用される過程で、AFF1/4やELLなどからなる「超伸長複合体(SEC)」などの活性型複合体に取り込まれ、転写伸長を促進します[4]。
液-液相分離(LLPS)という「反応の部屋」
近年、この超伸長複合体(SEC)が、細胞の中で液-液相分離(LLPS)という現象を起こし、膜のない小さな「液滴(コンデンセート)」をつくることが分かってきました[32]。
💡 用語解説:液-液相分離(LLPS)
水の中に油が集まって粒になるように、細胞の中でも特定のタンパク質やRNAが集まって、周囲と混ざらない小さな「液滴」をつくることがあります。これを液-液相分離といいます。膜で仕切られていないのに、必要な分子だけを内側に集め、いらない分子を外に締め出す「仮設の部屋」として働きます。
このSEC液滴は、単なる寄せ集めではありません。抑え込み役のHEXIM1を外に締め出しながら、放出されたP-TEFbだけを内側に選んで濃縮する「反応の部屋(バイオリアクター)」として働きます[32]。これによって、遺伝子の読み始めの近くで局所的にP-TEFbの濃度が一気に高まり、Pol IIを含む転写関連因子へのリン酸化が効率よく進みます[32]。ストレスなどに応じて、刺激応答遺伝子群の迅速な転写活性化に寄与するしくみと考えられています[32]。
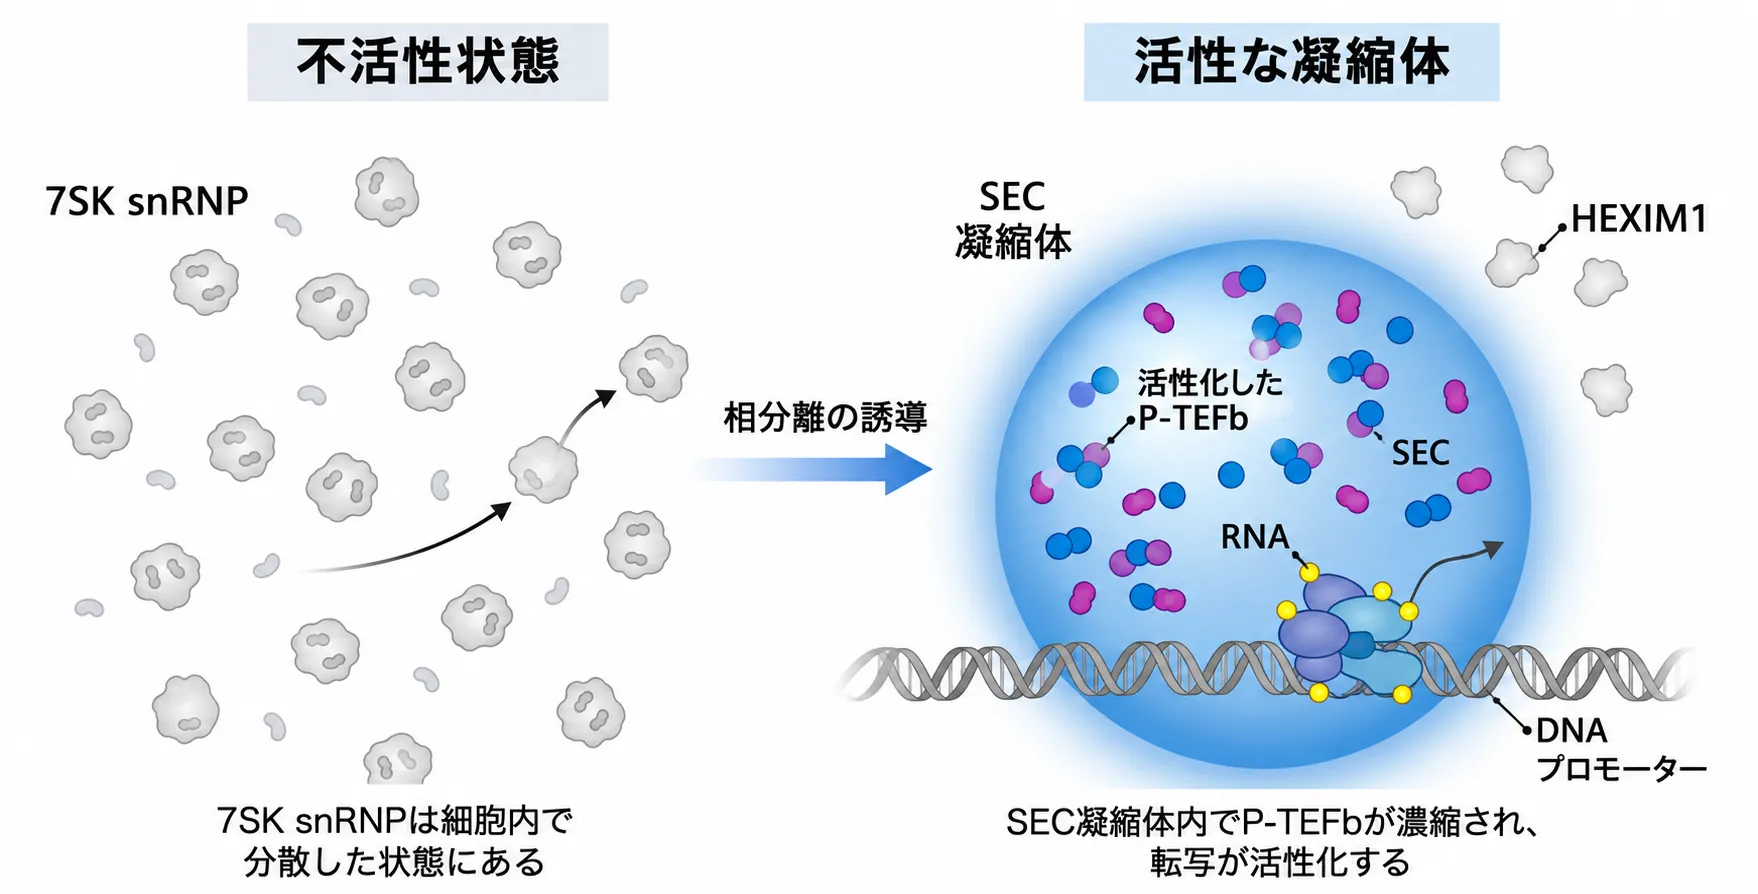
図:7SK snRNPからのP-TEFb放出と液-液相分離。左は不活性状態で、7SK snRNPが細胞内に分散して存在する。右は活性化した状態で、相分離によってできたSEC(超伸長複合体)凝縮体の内部に活性化P-TEFbが濃縮される一方、抑え込み役のHEXIM1は外へ締め出される。凝縮体はDNAプロモーター上で局所的にP-TEFbの濃度を高め、転写を活性化する。
6. クロマチンとエンハンサーの制御 ─ 場所を選んで働く
かつて7SK snRNPは、核の中をただ漂っていると考えられていました。しかし最新のゲノム解析により、7SK snRNPがDNA上の特定の場所につなぎ止められ、場所を選んで働いていることが分かってきました[1]。
まず、不活性な7SK snRNPは、KAP1(TRIM28)というタンパク質を介して、Pol IIが一時停止しているプロモーターの近くに積極的に配置されます[5]。P-TEFbが核の中をランダムに漂ってたどり着くのを待つのではなく、あらかじめ標的遺伝子のそばに待機させておくことで、シグナルが来た瞬間に遅れなく一時停止を解除できる、合理的なしくみです[5]。
さらに7SK RNAは、遺伝子の発現を強める調節領域であるスーパーエンハンサーにも高い密度で存在します[35]。ここで7SK RNAは、BAF複合体(SWI/SNF)というクロマチンリモデリング装置と協力し、過剰なエンハンサーRNAの合成を抑えます[35]。これによって、プロモーター方向とエンハンサー方向の転写が正面衝突する「収束的転写」と、それに伴うDNA損傷を未然に防いでいます[35]。
💡 用語解説:エンハンサー
エンハンサーとは、遺伝子の読み取りを「もっと読め」と後押しする、DNA上のスイッチ領域です。とくに強力なものをスーパーエンハンサーと呼び、細胞の個性を決める重要な遺伝子の制御に関わります。7SK snRNPは、こうしたエンハンサーで転写が暴走しないように、ブレーキ役としても働いています。
7. RNAの化学修飾による制御 ─ m6Aとシュードウリジン化
近年、RNAそのものに付く化学的な「目印(修飾)」が、7SK RNAのはたらきを細かく調整していることが注目されています。この分野をエピトランスクリプトミクスといいます。
m6A(メチルアデノシン)による制御
7SK RNAには、m6A(N6-メチルアデノシン)という修飾が付く場所が複数あります。非小細胞肺がんの細胞(A549)を使った研究では、7SK RNAからこのm6A修飾を特異的に取り除くと、7SK RNAの構造が組み変わり、P-TEFbの抱え込み(不活性化)が強く促されることが示されました[45]。その結果、Pol IIのリン酸化が減り、がん細胞の増殖が抑えられました[45]。RNAの目印一つで、転写全体のアクセルとブレーキが切り替わるという、興味深いしくみです。
シュードウリジン化という「アンカー」
もう一つの目印がシュードウリジン化(Ψ)です。7SK RNAの特定のウリジンは、PUS7やDKC1という酵素によってシュードウリジンに変換されます[22]。大腸がんのモデルを使った研究では、PUS7が失われて7SKのシュードウリジン化が低下すると、P-TEFbの解離が異常に促され、Pol IIの読み取りが過剰に活性化することが確認されました[47]。シュードウリジン化は、7SKとP-TEFbの結びつきを適切な強さに保つ「固定用のアンカー」として働いていると考えられます[47]。
💡 用語解説:シュードウリジン化(Ψ)
シュードウリジン化とは、RNAを構成するウリジンという部品が、その異性体であるシュードウリジン(Ψ)に変換される修飾です。「5番目のRNA塩基」とも呼ばれるほどありふれた修飾で、RNAの立体構造を安定させたり、タンパク質との結びつきを調整したりする役割を担います。
8. Alazami(アラザミ)症候群 ─ LARP7の変異が招く発達の病気
7SK snRNPが臨床の場面と直接つながる代表例が、Alazami(アラザミ)症候群です。これは、7SK RNAを守るLARP7遺伝子の両アレル性の機能喪失変異によって起こる、まれな常染色体劣性(潜性)の神経発達障害です[48]。
LARP7が働かなくなると、7SK RNAが分解酵素の標的となって急速に壊れ、細胞内の7SKレベルが大きく枯渇します[48]。その結果、P-TEFbを抑えるしくみが崩れ、発生段階での転写プログラム全体に乱れが生じると考えられています[48]。おもな特徴には、生まれる前からの重い成長の遅れ(原発性小人症)、重度の知的障害・発達遅滞、特徴的な顔立ち(突出した前頭部、奥まった目、広い鼻梁など)が挙げられます[48]。
💡 用語解説:常染色体劣性(潜性)遺伝と両アレル性
ヒトは、多くの遺伝子を父由来・母由来の2本ペアで持っています。常染色体劣性(潜性)遺伝とは、この2本の両方(両アレル)に変化があってはじめて症状が出るタイプの遺伝形式です。片方だけに変化がある人は「保因者」と呼ばれ、多くは症状が出ません。Alazami症候群では、両親がともに保因者の場合、子どもに一定の確率で受け継がれる可能性があります。詳しくは臨床遺伝専門医による遺伝カウンセリングでご相談いただけます。
Alazami症候群は世界的にも報告数が限られる希少な疾患です。遺伝診療の観点からは、「LARP7というタンパク質は7SK RNAを守る裏方にすぎない」と軽く見るのではなく、その変化が発生全体に大きな影響を及ぼしうる、という点が重要になります。診断や見通し、ご家族での受け継がれ方については、臨床遺伝専門医が中立の立場で、検査で何が分かり何が分からないのかを含めて整理します。
9. がん・HIVとの関係 ─ 医療への広がり
がん治療の標的としてのCDK9
多くのがんは、MYCやMCL-1といった、細胞の増殖を促したり細胞死を防いだりするタンパク質の持続的な発現に強く依存しています。これらは寿命が短いため、がん細胞はP-TEFbによる絶え間ない転写を必要とする「転写嗜癖(てんしゃしへき)」という状態にあると考えられています[54]。
この弱点を突いて、CDK9のはたらきを薬で抑えると、生存に必須な遺伝子の転写が止まり、がん細胞に細胞死を誘導できることが期待されています[55]。現在、選択性の高いCDK9阻害薬が複数開発されており、さらに、CDK9タンパク質そのものを分解するPROTACという新しい手法の研究も進んでいます[55]。なお、これらは研究・開発段階のものを含み、効果や安全性、適応は今後も更新されていきます。治療に関する判断は、必ず主治医とご相談ください。
💡 用語解説:PROTAC
PROTAC(proteolysis-targeting chimera)は、標的タンパク質と細胞内のユビキチン・プロテアソーム系を近づけ、標的タンパク質の分解を促す二機能性分子です。CDK9では、酵素活性を一時的に阻害するだけでなく、CDK9タンパク質自体を減らす方法として研究されています。
BRCA1変異がんとMEPCEの「合成致死」
最近の研究で、7SKのコア部品であるMEPCEが、遺伝性乳がん・卵巣がん症候群などに関わるBRCA1と「合成致死」の関係にあることが報告されました[68]。BRCA1が欠損したがん細胞でMEPCEを枯渇させると、Pol IIの一時停止の制御が崩れ、Rループが蓄積し、転写とDNA複製の衝突および複製ストレスが増加します[68]。その結果、BRCA1欠損細胞の生存率が低下することから、転写・複製衝突を利用する治療標的候補として研究されています[68]。
💡 用語解説:Rループ(R-loop)
Rループは、転写中に新しく作られたRNAがDNAの片方の鎖と再び結合し、もう片方のDNA鎖が一本鎖として押し出された三本鎖状の核酸構造です。生理的な役割もありますが、過剰に蓄積するとDNA複製との衝突やゲノム不安定性の原因になります。
💡 用語解説:合成致死(synthetic lethality)
2つの遺伝子について、片方だけが失われても細胞は生きられるのに、両方が同時に失われると死んでしまう関係を「合成致死」といいます。がん細胞がすでに片方(例:BRCA1)を失っている場合、もう片方(例:MEPCE)を薬で抑えれば、正常細胞は生き残る一方でがん細胞だけを狙って死滅させられる、という治療戦略の土台になります。
HIV感染とLARP7の相分離
HIV-1(ヒト免疫不全ウイルス)は、自分の遺伝子を読ませるために、宿主のP-TEFbを必要とします。ウイルスのTatというタンパク質は、宿主の7SK snRNPなどから利用可能なP-TEFbを動員し、HIV-1の転写伸長を強く促進します[4]。ところが、宿主側もただ奪われているわけではありません。近年の研究では、HIV-1の感染そのものをきっかけに、宿主細胞の中でLARP7の液-液相分離が引き起こされることが発見されました[73]。LARP7が膜のない液滴をつくり、その内部にウイルスのTatとP-TEFbを閉じ込めることで、ウイルスによる転写の乗っ取りを妨げようとする、宿主側の防御のしくみと考えられています[73]。
10. よくある誤解
誤解①「7SKはただの分子のかたまり」
7SK snRNPは、単なるP-TEFbの倉庫ではありません。転写のブレーキ、クロマチンの制御、エンハンサーの調整までを、場所と時間を選んで統合する司令塔です。近年は、DNA上の特定の場所につなぎ止められて働くことも分かっています。
誤解②「抑え込まれたP-TEFbは働けない」
7SK snRNPに抱え込まれたP-TEFbは、壊されているわけではありません。リン酸化されて「すぐ働ける状態」のまま保管されており、放出されればただちに活性を発揮します。いわば準備万端の待機状態です。
誤解③「裏方の部品の変化は病気に無関係」
7SKを守る裏方のLARP7であっても、その遺伝子の両アレル性の変化は、Alazami症候群という重い発達の病気につながります。分子の役割の大切さは、酵素活性の有無だけでは測れません。
誤解④「基礎研究で医療には縁遠い」
7SK snRNPの理解は、がんのCDK9阻害薬、BRCA1変異がんでの合成致死、HIV-1転写制御などの研究と関係しています。基礎的な構造生物学・転写制御研究から、治療標的の候補が検討されています。
まとめ ─ 「転写のブレーキ」を握る司令塔
7SK snRNPは、単なる酵素の格納庫ではなく、RNAポリメラーゼIIによる転写の伸長、クロマチンの制御、エンハンサーの調整までを、時間的・空間的に束ねる中心的な分子ハブです。7SKという長い非コードRNAが土台となり、MEPCEとLARP7が両端を守り、HEXIM1が安全装置つきのスイッチとして働き、P-TEFbを「準備万端の待機状態」で抱え込む——この精巧なしくみが、遺伝子を「いつ・どこで・どれだけ読むか」を細かく決めています[4]。
近年のクライオ電子顕微鏡による構造解析や、HEXIM1の自己阻害のしくみの解明、液-液相分離やm6A修飾による制御の報告により、7SK snRNPの転写制御機構について分子レベルの理解が進んでいます[3]。同時に、LARP7の変化がAlazami症候群を、MEPCEの抑制がBRCA1欠損がんの治療標的候補として研究され、P-TEFbの制御がHIV研究でも重要であるように、7SK snRNPの理解は、発生生物学から腫瘍学、感染症学まで幅広い分野につながっています。7SK snRNPは、基礎的な転写制御の理解から遺伝性疾患・腫瘍・感染症研究までをつなぐ重要な研究対象の一つです。
🩺 院長コラム【「働きを止める部品」の大切さ】
遺伝子やタンパク質の世界では、「何かを抑える」「ブレーキをかける」役割が、しばしば「進める」役割と同じくらい重要です。7SK snRNPは、その典型といえます。強力なアクセルであるP-TEFbを、ふだんはきちんと抑えておき、必要なときにだけ放す——このメリハリがあるからこそ、細胞は環境に応じて正確に反応できます。
臨床遺伝専門医として文献を踏まえると、こうした「抑える側」の部品の変化が、思いがけず大きな病気につながる例は少なくありません。ある遺伝子の産物が、目立つ酵素反応を起こさない裏方であっても、その変化が体にどう影響しうるかを丁寧に読み解くこと。それが、遺伝子検査の結果を前にしたときに、わたしたちが大切にしている姿勢です。
よくある質問(FAQ)
Q1. 7SK snRNPとは何ですか?
7SK snRNP(セブンエスケイ・エスエヌアールエヌピー)とは、7SKという長い非コードRNAを土台に、LARP7・MEPCE・HEXIM1・P-TEFbなどのタンパク質が組み合わさってできた、核の中の巨大な複合体です。おもな役割は、遺伝子の読み取り(転写)を加速する酵素P-TEFb(その中心がCDK9)を、すぐ使える待機状態のまま抱え込んで、むやみに働かないよう抑えておくことです。細胞の状況に応じてP-TEFbを放出し、転写のブレーキとアクセルを切り替えます。
Q2. P-TEFbやCDK9とはどう関係しますか?
P-TEFbは、転写を一気に加速させる酵素で、その触媒の中心がCDK9です。7SK snRNPは、このP-TEFbを抱え込んで抑えておく「格納庫」の役割を果たします。抑え込まれたP-TEFbは壊されているわけではなく、リン酸化されて「すぐ働ける状態」で保管されており、必要になると放出されて転写を推進します。
Q3. 7SK snRNPは病気と関係がありますか?
関係することがあります。7SK RNAを守る部品であるLARP7遺伝子の両アレル性(父由来・母由来の両方)の機能喪失変異は、Alazami(アラザミ)症候群という、まれな常染色体劣性(潜性)の神経発達障害の原因になります。おもな特徴は、生まれる前からの重い成長の遅れ、重度の知的障害・発達遅滞、特徴的な顔立ちなどです。
Q4. 7SK snRNPはがん治療とどうつながりますか?
多くのがんは、P-TEFb(CDK9)による絶え間ない転写に依存する「転写嗜癖」という状態にあると考えられています。この弱点を突いてCDK9のはたらきを抑える薬(CDK9阻害薬)や、CDK9そのものを分解する手法の研究が進んでいます。また、7SKのコア部品MEPCEは、BRCA1変異がんに対する「合成致死」の標的としても注目されています。いずれも研究・開発段階を含み、治療の判断は主治医とご相談ください。
Q5. 7SK snRNPの検査は受けられますか?
7SK snRNPそのものは、おもに基礎研究の対象であり、日常の診療で直接検査する項目ではありません。ただし、その部品であるLARP7の変異が関わるAlazami症候群のように、関連する遺伝子の変化が問題になる場面はあります。遺伝子検査の結果の意味や、ご家族での受け継がれ方については、臨床遺伝専門医による遺伝カウンセリングで整理できます。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] McNamara RP, Bacon CW, D’Orso I. Transcription elongation control by the 7SK snRNP complex: Releasing the pause. Cell Cycle. 2016;15(16):2115-2123. doi:10.1080/15384101.2016.1181241. [PMC4993427]
- [2] Egloff S, Studniarek C, Kiss T. 7SK small nuclear RNA, a multifunctional transcriptional regulatory RNA with gene-specific features. Transcription. 2018;9(2):95-101. doi:10.1080/21541264.2017.1344346. [PMC5834218]
- [3] Yang Y, Liu S, Egloff S, et al. Structural basis of RNA conformational switching in the transcriptional regulator 7SK RNP. Mol Cell. 2022;82(9):1724-1736.e7. doi:10.1016/j.molcel.2022.03.001. [PubMed 35320752]
- [4] Quaresma AJC, Bugai A, Barboric M. Cracking the control of RNA polymerase II elongation by 7SK snRNP and P-TEFb. Nucleic Acids Res. 2016;44(16):7527-7539. doi:10.1093/nar/gkw585. [Nucleic Acids Research]
- [5] 7SKiing on chromatin: Move globally, act locally. [RNA Biology]
- [18] Structural basis for recognition of human 7SK long noncoding RNA by the La-related protein Larp7. [PubMed 29946027]
- [22] Zhao Y, Karijolich J, Glaunsinger B, Zhou Q. Pseudouridylation of 7SK snRNA promotes 7SK snRNP formation to suppress HIV-1 transcription and escape from latency. EMBO Rep. 2016;17(10):1441-1451. doi:10.15252/embr.201642682. [PMC5048380]
- [23] Yang Y, Murrali MG, Galvan S, et al. HEXIM1 inter-monomer autoinhibition governs 7SK RNA binding specificity and P-TEFb inactivation. Nat Commun. 2026;17:1570. doi:10.1038/s41467-026-68285-8. [PMC12901311]
- [28] Kobbi L, Demey-Thomas E, Braye F, et al. An evolutionary conserved Hexim1 peptide binds to the Cdk9 catalytic site to inhibit P-TEFb. Proc Natl Acad Sci U S A. 2016;113(45):12721-12726. doi:10.1073/pnas.1612331113. [PNAS]
- [29] McNamara RP, Reeder JE, McMillan EA, Bacon CW, McCann JL, D’Orso I. Transcription factors mediate the enzymatic disassembly of promoter-bound 7SK snRNP to locally recruit P-TEFb for transcription elongation. Cell Rep. 2013;5(5):1256-1268. doi:10.1016/j.celrep.2013.11.003. [PMC3882317]
- [32] Guo C, Che Z, Yue J, et al. ENL initiates multivalent phase separation of the super elongation complex (SEC) in controlling rapid transcriptional activation. Sci Adv. 2020;6(14):eaay4858. doi:10.1126/sciadv.aay4858. [PMC7112754]
- [35] Flynn RA, Do BT, Rubin AJ, et al. 7SK-BAF axis controls pervasive transcription at enhancers. Nat Struct Mol Biol. 2016;23(3):231-238. doi:10.1038/nsmb.3176. [PMC4982704]
- [45] Wang Y, Traugot CM, Bubenik JL, et al. N6-methyladenosine in 7SK small nuclear RNA underlies RNA polymerase II transcription regulation. Mol Cell. 2023;83(21):3818-3834.e7. doi:10.1016/j.molcel.2023.09.020. [PubMed 37820733]
- [47] Zhao Y, Sun HL, Li W, et al. Pseudouridylation of 7SK by PUS7 regulates Pol II transcription elongation. Nat Commun. 2025;16:9595. doi:10.1038/s41467-025-64668-5. [PMC12575831]
- [48] Alazami AM, Al-Owain M, Alzahrani F, et al. Loss of function mutation in LARP7, chaperone of 7SK ncRNA, causes a syndrome of facial dysmorphism, intellectual disability, and primordial dwarfism. Hum Mutat. 2012;33(10):1429-1434. doi:10.1002/humu.22175. [PubMed 22865833]
- [54] Toure MA, Koehler AN. Addressing Transcriptional Dysregulation in Cancer through CDK9 Inhibition. Biochemistry. 2023;62(6):1114-1123. doi:10.1021/acs.biochem.2c00609. [PMC10035036]
- [55] Yin J, Zhang N, Wang T, Zhang X. Beyond Inhibition: Recent Advances of Heterobifunctional Molecules Targeting CDK9. J Med Chem. 2025;68(21):22095-22115. doi:10.1021/acs.jmedchem.5c02127. [PubMed 41137769]
- [68] Patel PS, Algouneh A, Krishnan R, et al. Excessive transcription-replication conflicts are a vulnerability of BRCA1-mutant cancers. Nucleic Acids Res. 2023;51(9):4341-4362. doi:10.1093/nar/gkad172. [PubMed 36928661]
- [73] Li Z, Fang X, Zhao B, et al. Liquid-liquid phase separation of LARP7 restrains HIV-1 replication. EMBO Rep. 2025;26(8):1935-1956. doi:10.1038/s44319-025-00421-9. [PMC12019422]






