

目次
- 1 1. MEPCE遺伝子とは ─ 名前にすべてが詰まっている
- 2 2. 遺伝子の基本情報 ─ 座位・アイソフォーム
- 3 3. 7SKのキャップ形成 ─ MEPCEの酵素としての仕事
- 4 4. MEPCEの二重の顔 ─ 「酵素」と「構造材」
- 5 5. 7SK snRNPと転写のブレーキ ─ P-TEFbを閉じ込める
- 6 6. 動く制御装置 ─ 2022年の構造が変えた見方
- 7 7. 発現と局在 ─ どこで、どこに働くのか
- 8 8. 疾患・変異解釈との接点 ─ 「重要な遺伝子だから病的」とは限らない
- 9 9. がん・染色体7q・創薬との関わり
- 10 10. よくある誤解
- 11 まとめ ─ 「縁の下の力持ち」としてのMEPCE
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

遺伝子の名前には、その働きがそのまま刻まれていることがあります。MEPCE(メプシー/methylphosphate capping enzyme)もそのひとつで、日本語にすると「メチルリン酸キャップ形成酵素」です。この遺伝子がつくるタンパク質は、細胞の中で7SK snRNA(セブンエスケイ・エスエヌアールエヌエー)という特別なRNAの端に、独特の「キャップ(ふた)」を取り付けます。そしてそのキャップ形成だけにとどまらず、遺伝子の転写にブレーキをかける装置「7SK snRNP」を土台から支える構造材としても働いています。この記事では、MEPCEとはどんな遺伝子なのか、7SK snRNAやP-TEFbという転写のしくみとどう関わるのか、そして病気や遺伝子検査の解釈とどうつながるのかを、医学文献に基づいて解説します。
Q. MEPCE遺伝子とは何ですか?まず結論だけ知りたいです
A. MEPCE遺伝子は、7SK snRNAという非コードRNAの5′末端に「メチルリン酸キャップ」という特別なふたを付ける酵素の設計図です。このキャップは7SK snRNAを安定させます。さらにMEPCEは、酵素としての働きとは別に、LARP7というタンパク質や7SK snRNAと組んで「7SK snRNP」という複合体の芯(コア)を形づくります。この複合体は、転写のアクセルにあたるP-TEFbを一時的に閉じ込めておく貯蔵庫として働き、遺伝子の読み取り(転写)の速さを調整します。MEPCEでは、de novoナンセンスバリアントを持つ神経発達障害の単一症例が機能解析付きで報告されていますが、反復症例に基づく確立したメンデル遺伝病としての位置づけはまだ十分に確立していません。細胞にとって基本的な役割を担う遺伝子として研究が続いています。
- ➤正体 → 7SK snRNAの5′末端にメチルリン酸キャップを付けるSAM依存性RNAメチルトランスフェラーゼ
- ➤二重の顔 → 「キャップを付ける酵素」と「7SK snRNPの芯を支える構造材」という2つの役割を併せ持つ
- ➤何を調整するか → 転写のアクセルP-TEFbを閉じ込める7SK snRNPを維持し、間接的に転写の速さを左右する
- ➤発現 → 特定の臓器に限らず広く発現し、細胞内では主に核(核質)にある
- ➤疾患との関係 → de novoナンセンスバリアントを持つ神経発達障害の単一症例報告があるが、反復症例に基づく確立した疾患概念には至っていない。変異を見つけても働きへの影響を慎重に評価する必要がある
🧬 MEPCE遺伝子の基本情報
| 項目 | 内容 |
|---|---|
| 遺伝子名・読み方 | MEPCE(メプシー)/正式名称:methylphosphate capping enzyme(メチルリン酸キャップ形成酵素) |
| 別名 | BCDIN3、FLJ20257(※名前の似た BCDIN3D は別の遺伝子で、混同しないよう注意) |
| 主な識別番号 | NCBI Gene 56257/HGNC 20247/Ensembl ENSG00000146834/UniProt Q7L2J0/OMIM 611478 |
| 染色体上の位置 | 第7番染色体長腕 7q22.1 |
| 代表的なタンパク質 | 689アミノ酸・約74.4 kDa。中央にRNAメチル化ドメイン、C末端にBin3ドメインを持つ[4] |
| 主なはたらき | 7SK snRNAへのメチルリン酸キャップ形成と、7SK snRNPコアの構造維持という二重機能 |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた遺伝子解説です。特定の検査を勧めるものではありません。遺伝子名・座位・転写産物数は参照するゲノムアセンブリやデータベースの版によって更新されることがあります。
1. MEPCE遺伝子とは ─ 名前にすべてが詰まっている
MEPCEは、正式名称をmethylphosphate capping enzyme(メチルリン酸キャップ形成酵素)といい、その頭文字をとった名前です。歴史的には BCDIN3 や FLJ20257 という別名でも呼ばれてきました。この酵素の仕事を一言でいうと、非コードRNA(タンパク質にならないRNA)である7SK snRNAの5′末端に、特別な「メチルリン酸キャップ」というふたを取り付けることです。
MEPCEが医学・生物学の舞台に本格的に登場したのは、2007年のことです。ジェロニモらは、ヒトの転写装置に関わるタンパク質の巨大な相互作用ネットワークを解析するなかで、BCDIN3(=MEPCE)こそが7SK snRNAのキャップをつくる酵素であることを突き止めました[4]。この発見によって、それまで「7SKに付いている謎めいた化学修飾」だったものに、担い手となる酵素の顔がはっきりと与えられたのです。
💡 用語解説:メチルリン酸キャップとは
私たちのメッセンジャーRNA(mRNA)の多くは、5′末端に「m7Gキャップ」という目印が付いています。一方、7SK snRNAやU6 snRNAといった一部の小さなRNAには、それとは化学的にまったく違う「γ(ガンマ)-メチルリン酸キャップ」という珍しいふたが付きます。MEPCEは、メチル基の供与体であるSAM(S-アデノシルメチオニン)からメチル基を受け取り、7SKの5′末端のリン酸に付け替えます。このふたが、RNAの端を分解から守る役割を果たします。
MEPCEは、進化的にはショウジョウバエの Bin3 というタンパク質の仲間(Bin3ファミリー)にあたります。文献ではタンパク質を「MePCE」と表記することも多く、同じ分子を指しています。ここで一つ注意が必要なのは、名前がよく似た BCDIN3D という遺伝子は、MEPCE(別名BCDIN3)とはまったく別の遺伝子だという点です。検査結果や論文でこの2つを取り違えないことが、遺伝診療の実務では意外と大切になります。
2. 遺伝子の基本情報 ─ 座位・アイソフォーム
MEPCE遺伝子は、第7番染色体の長腕、7q22.1 という場所にあります。公的なデータベースでは、NCBI Gene ID 56257、HGNC ID 20247、Ensembl ID ENSG00000146834、UniProt ID Q7L2J0、そしてOMIM登録番号611478として整理されています[10][11]。臨床の遺伝子検査でバリアント(塩基配列の違い)を記載するときは、どのゲノムアセンブリ(GRChのバージョン)とどの転写産物(transcript)の番号を使ったかを必ず併記することが、混乱を防ぐうえで重要です。
MEPCEには複数の転写産物(アイソフォーム)が注釈されていますが、実験研究の大部分が対象にしてきたのは、689アミノ酸・約74.4 kDaの代表的な長い型です。この型がUniProtのQ7L2J0に対応します。データベースには、これより短い予測産物も複数登録されていますが、それらの短い型が細胞の中で実際にどれくらいの量つくられ、7SKへのキャップ形成やLARP7との結合といった働きを持つのかは、主要な一次文献では体系的に検証されていません。「タンパク質をコードすると注釈される」ことと、「その型が十分な量、実際に機能している」こととは、区別して考える必要があります。
💡 用語解説:アイソフォーム(isoform)
1つの遺伝子から、選択的スプライシングなどによって、少しずつ違う複数のタンパク質がつくられることがあります。これらをアイソフォームと呼びます。MEPCEでも複数のアイソフォームが予測されていますが、機能がよくわかっているのは主に689アミノ酸の長い型です。短い型の役割の解明は、今後の研究課題として残されています。
3. 7SKのキャップ形成 ─ MEPCEの酵素としての仕事
まず、MEPCEの「本業」であるキャップ形成のしくみを見ていきましょう。MEPCEは、SAMを材料に使うRNA 5′-メチルトランスフェラーゼです。おおまかな反応は、次のように表せます。
(5′-三リン酸)できたての7SK
+ SAMメチル基を転移
キャップ付き7SK安定化した7SK
RNAポリメラーゼIIIによってつくられたばかりの7SKは、5′末端に3つのリン酸(三リン酸)を持っています。MEPCEは、そのいちばん外側のリン酸(γ-リン酸)にSAM由来のメチル基を付け替え、特別なメチルリン酸キャップをつくります[8]。これは、mRNAに付くm7Gキャップとは、化学的にもつくられ方も異なる独特のふたです。
重要なのは、MEPCEが「細胞の中にある無数のRNAの端を手当たり次第にメチル化する」のではなく、7SKという特定のRNAをきちんと選んでキャップを付けている、という点です。2019年、ヤンらはMEPCEのメチル化ドメインと7SKの5′領域が結びついた立体構造をX線結晶構造解析で明らかにし、MEPCEが7SKの5′末端の三リン酸だけを化学基質として認識するのではなく、その周りのRNAの立体構造(ヘアピン構造や一本鎖部分)と何点も接触することで、正しい端を触媒中心に導いていることを示しました[8]。細胞内に5′-三リン酸を持つRNAが多数あっても、MEPCEが7SKやU6といった限られた相手を選べる理由が、この構造から説明されます。
💡 用語解説:SAM(S-アデノシルメチオニン)
SAMは、細胞の中でメチル基(-CH₃)を配る「メチル基の運び屋」です。メチオニン回路という代謝の流れの中でつくられ、DNAのメチル化、タンパク質のメチル化、そしてMEPCEによるRNAのメチル化まで、さまざまなメチル化反応の共通の材料になります。MEPCEはこのSAMからメチル基を受け取って、7SKにキャップを付けます。
このメチルリン酸キャップは、7SKの安定化に役立ちます。ただし、MEPCEが減ると7SKが減ってしまう理由は、キャップが失われるからだけではありません。この点は次の章でくわしく見ますが、MEPCEにはキャップ形成とは独立した、もう一つの働きがあることがわかっています[7]。なお、MEPCEは7SKだけでなくU6 snRNAの安定性にも関わることがヒト細胞でも示されています[14]が、7SKほどには基質認識やRNP構造、反応の順序がくわしく解明されていないため、「7SKで確立したしくみをそのままU6に当てはめる」ことには注意が必要です。
🩺 院長コラム【「端に小さなふたを付ける」ことの重み】
RNAの端に小さなメチル基を1つ付けるだけ、と聞くと、とても地味な仕事に思えるかもしれません。けれども、その一手間があるかないかで、RNAが分解されずに残るか、すぐに消えてしまうかが変わってきます。分子生物学では、こうした「小さな修飾」が、細胞全体の大きな挙動を左右することが珍しくありません。
文献上、MEPCEのように「一見地味だが基盤を支える」タイプの遺伝子では、変化が起きたときの影響を分子機能だけから予測することは容易ではありません。派手な働きをする遺伝子だけでなく、こうした基盤的な因子にも目を向けることが、遺伝子の全体像を理解するうえで重要です。
4. MEPCEの二重の顔 ─ 「酵素」と「構造材」
MEPCEを理解するうえで、いちばん大切なのがこの章です。MEPCEは「7SKにキャップを付ける酵素」と「7SK snRNPの芯を支える構造材」という、2つの顔を併せ持っています。この二重機能を決定的に示したのが、2010年のシュエらの研究です[7]。
シュエらは、放射性標識したSAMを使ったキャップ形成の実験などを組み合わせ、次のことを示しました。まず、LARP7と結合していない状態のMEPCEは、7SKを効率よくメチル化します。ところが、成熟した7SK snRNPの中でLARP7というタンパク質と複合体をつくると、MEPCEのキャップ形成の働きは抑えられてしまうのです[7]。著者らは、LARP7がMEPCEの触媒中心(反応の現場)へのアクセスを物理的にふさぐモデルを提案しました。
(遊離型)酵素として働く
と結合コアを形成
ふさがれるキャップ活性は低下
コアを維持7SKを安定化
重要なのは、キャップ活性が抑えられても、MEPCEが役立たずになるわけではない、という点です。MEPCEは、酵素としての働きとは独立して、LARP7と7SKの結合を促し、安定した「MEPCE–LARP7–7SK」という芯(コア複合体)の形成を助けます[7]。実際、MEPCEやLARP7を細胞内で減らすと、7SKの量が低下します。つまりMEPCEとLARP7は、協力して7SKを安定させているのです。したがって、MEPCEが失われたときに起きることを「7SKのキャップが失われたから」だけで説明するのは不十分だといえます。
この「反応する酵素から、構造を支える部品へ」という機能のスイッチは、後の構造研究によっても裏づけられました[8]。MEPCEは、7SKを一度メチル化して離れてしまうのではなく、コアにとどまることで、RNAとLARP7を幾何学的に固定する土台になっていると考えられています。
5. 7SK snRNPと転写のブレーキ ─ P-TEFbを閉じ込める
では、MEPCEが支えている7SK snRNPとは、いったい何をしている装置なのでしょうか。ここで登場するのが、P-TEFbという転写のアクセルです。
遺伝子が読み取られる転写という過程では、RNAポリメラーゼII(Pol II)が、遺伝子の始まりのすぐ近くでいったん立ち止まる「一時停止(プロモーター近傍ポーズ)」という段階があります。この停止を解除して、本格的な読み取り(伸長)へと進ませる主役が、CDK9とサイクリンTからなるP-TEFbというキナーゼ(リン酸化酵素)です。
2001年、ヤンらとグエンらは、それぞれ独立に、7SK snRNAがこのP-TEFb(CDK9/サイクリンT複合体)のキナーゼ活性を抑えることを報告しました[1][2]。これが、現在の7SK snRNPモデルの出発点になった重要な発見です。ただし、7SKだけでP-TEFbを強力に止めるわけではありません。2004年のミシェルらの研究は、HEXIM1というタンパク質が7SKと結合すると、P-TEFbを捕まえて抑える「阻害役」に変身することを実験的に示しました[3]。
この一連のしくみの中で、MEPCEの立ち位置は「CDK9を直接止める阻害役」ではありません。MEPCEの役割は、抑制性の7SK粒子そのものを成熟させ、安定に保つことです。つまり、HEXIM1とP-TEFbが乗っていられる土台(プラットフォーム)を維持しているのです。このため、MEPCEの量や働きが低下すると、P-TEFbを閉じ込めておく貯蔵庫が不安定になり、結果として自由に使える(活性型の)P-TEFbの割合が変わりうる、と考えられます[7]。MEPCEが、細胞が利用できるP-TEFbの量を調整する「上流のバッファー(緩衝装置)」として働いている、というイメージです。
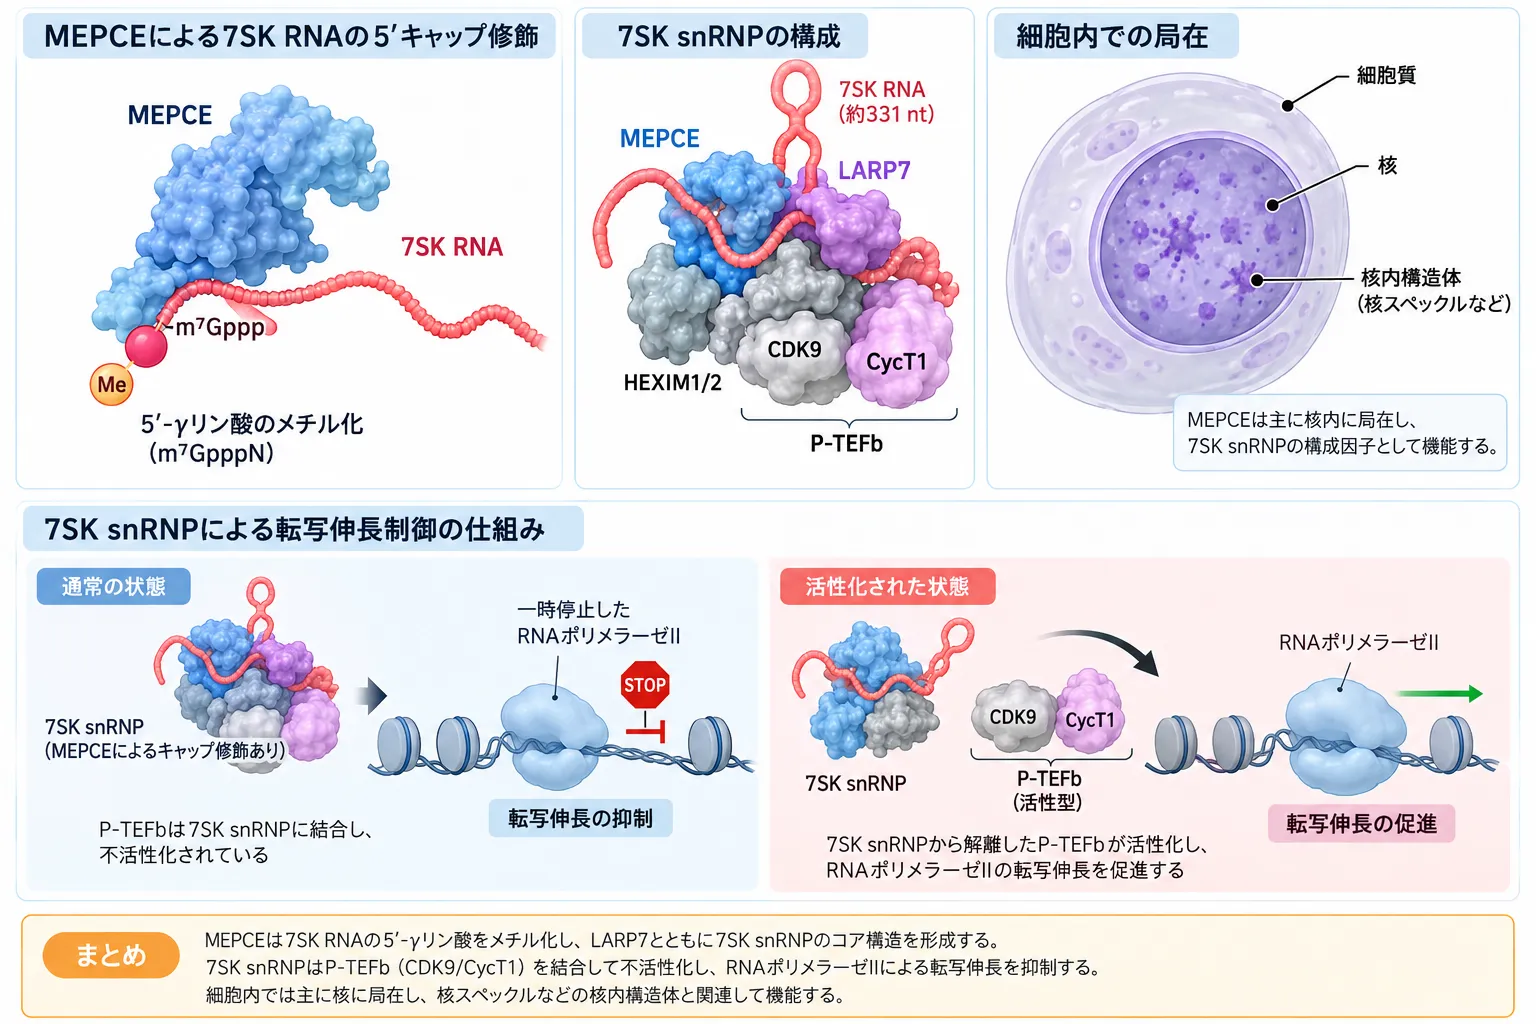
MEPCEは7SK RNAの5′末端を修飾するとともに、LARP7とともに7SK snRNPのコアを形成・安定化します。7SK snRNPはHEXIM1/2を介してP-TEFb(CDK9/Cyclin T)を不活性状態に保持し、RNAポリメラーゼIIの転写伸長を制御します。細胞の状態に応じてP-TEFbが7SK snRNPから放出されると、P-TEFbが活性化して生産的な転写伸長を促進します。
コア土台を維持
(CDK9)を捕捉活性を抑制
ポーズ解除を制限転写にブレーキ
💡 用語解説:7SK snRNPの「コア」と「可逆的な因子」
7SK snRNPは、いつも同じ顔ぶれで固まっているわけではありません。2008年のクルーガーらの研究は、MEPCEとLARP7は安定してとどまる「コア(芯)」である一方、P-TEFb・HEXIM1・hnRNP A1などは、細胞の状態に応じて出たり入ったりする「可逆的な因子」である、という階層構造を明確にしました[5]。この「変わらない芯」と「入れ替わる部品」という設計が、7SK snRNPが状況に応じて働きを切り替えられる秘密です。
6. 動く制御装置 ─ 2022年の構造が変えた見方
MEPCEと7SK snRNPの理解は、構造生物学の進歩とともに大きく前進してきました。その集大成のひとつが、2022年のヤンらによるクライオ電子顕微鏡(cryo-EM)の研究です[9]。この研究では、ヒトのMEPCE・LARP7・7SK RNAからなる7SKコアRNPが、直線状(linear)と円状(circular)という2つの異なる高次構造をとりうることが可視化されました。関連する構造データは、EMDBにEMD-25198、モデルはPDBに7SLQとして登録されています[12]。
この研究が示したのは、7SKが「タンパク質を乗せるだけの固定された足場」ではなく、RNA自身が形を切り替えることで、P-TEFbを閉じ込めたり放したりを制御する、動的な装置だという新しいモデルです[9]。細胞のシグナルや転写の需要に応じて7SKの構造が組み変わり、P-TEFbが放出されると、Pol IIが本格的な伸長へ進めるようになります。
このモデルは、MEPCEの「構造材としての働き」がなぜ重要なのかも説明してくれます。MEPCEが7SKを一度メチル化して離れるだけなら、成熟した7SKの構造の切り替えには直接関わらないはずです。しかし実際には、MEPCEがコアにとどまることで、RNAの特定の領域とLARP7を固定する枠組みをつくり、可逆的な因子が出入りできる「舞台」を用意していると考える方が、構造や生化学のデータとよく合います。
なお、MEPCEが維持する7SK RNPは、P-TEFbを抑えるだけの装置ではありません。データベースの注釈によれば、7SK RNPは「リトル伸長複合体(LEC)」との関わりを通じて、一部のsnRNA遺伝子の転写を支える働きも持つとされています。したがって「MEPCE=転写をいつも抑える因子」という単純な理解は正確ではなく、文脈によって転写を抑えたり、特定の遺伝子の転写系を支えたりする、両面のある存在だといえます。
7. 発現と局在 ─ どこで、どこに働くのか
MEPCEは、特定の臓器だけで働く特殊な酵素ではありません。ヒトタンパク質アトラス(HPA)とGTExを統合したRNAのデータでは、MEPCEは組織特異性が低く(low tissue specificity)、幅広い正常組織に発現するタンパク質とされています[10]。細胞内での場所(局在)は主として核(核質=nucleoplasm)で、代表的な長い型には分泌のためのシグナルペプチドも膜を貫通する構造もなく、基本的に核の中で働く分子であることと整合しています[10]。
発現のパターンをくわしく見ると、精巣ではearly spermatid(初期の精子細胞)に相対的に多く、単一細胞レベルの解析では血小板・精巣上体の一部の細胞・上衣細胞などで比較的高いカテゴリーに分類されます[10]。ただし、これは「MEPCEの働きがこれらの細胞に限られる」という意味ではありません。広く発現している上に、相対的な差が重なっていると読むのが妥当です。たとえば血小板は核を持たない細胞なので、そこで検出されるRNAを「血小板の核内でMEPCEが7SK転写を制御している」と直結させることはできず、巨核球由来の残りのRNAなど、データの解釈に注意が必要な場合もあります。
💡 用語解説:発生期の発現はまだよくわかっていない
成人の組織や正常細胞についての発現データは充実している一方で、ヒトの胚や胎児の時期に、MEPCEがどの細胞系譜でいつ働くのかを、MEPCEを中心に調べた研究は、まだ多くありません。「発生に重要である可能性」と「特定の発生段階で発現がピークになること」は別の話であり、現時点では区別して考える必要があります。近縁のショウジョウバエのBin3/7SK系には発生への関与を示唆する研究がありますが、そのままヒトに当てはめることはできません。
8. 疾患・変異解釈との接点 ─ 「重要な遺伝子だから病的」とは限らない
MEPCEの分子のしくみが非常によく解明されているのに対して、その疾患遺伝学は、まだはっきりとは確立していません。英語の一次文献や主要な公的リソースを優先して確認すると、2019年にde novo MEPCEナンセンスバリアントc.1552C>T/p.(Arg518*)を持つ神経発達障害の男児が報告され、患者由来細胞でMEPCE低下、7SK snRNPの不安定化、P-TEFb活性化を支持する機能異常が示されています[13]。一方、反復する独立症例に基づいてMEPCE固有のメンデル遺伝病として確立した疾患概念は、現時点では十分に確立していません。これは、同じ7SK snRNPコアの相方であるLARP7が明確な病態と結びついていることと、対照的です。
ただし、単一症例の報告だけで、MEPCEのあらゆる変異を病的とみなすことはできません。考えられる説明のひとつとして、MEPCEが細胞の基本的な機能に必要であるため、強い機能喪失(loss-of-function)が細胞レベルで強く選択され、患者として観察されにくいという可能性があります。実際、HPAではMEPCEは「必須タンパク質(essential protein)」のクラスに分類されています[10]。とはいえ、「ヒトでMEPCEが完全になくなると致死である」と断定できる直接的な臨床証拠はまだなく、現時点ではあくまで検証すべき仮説である点に注意が必要です。
💡 遺伝診療で大切な視点
臨床の遺伝子検査でMEPCEにまれなバリアント(塩基配列の違い)が見つかったとき、「MEPCEは重要な遺伝子だから、この変化はきっと病的だろう」と判断するのは適切ではありません。少なくとも、集団での頻度、家系内での分離、新生(de novo)かどうか、RNAスプライシングへの影響、MEPCEタンパク質の量、7SKのレベルなど、複数の情報を統合した機能評価が必要になります。「遺伝子の重要さ」と「そのバリアントの病原性」は、切り離して考えるべきものです。
この点は、今後変わっていく可能性があります。現時点でMEPCE固有の疾患像が十分に確立していなくても、大規模な家族単位のゲノム解析や、発達障害コホート、構造変異の解析が広がることで、追加症例や完全な機能喪失ではない「部分的に機能が下がるタイプ」のバリアントが見つかってくる可能性があります。将来のバリアント解釈では、単一のスコアだけに頼るのではなく、7SKの量や5′キャップの状態、LARP7との結合、P-TEFbの隔離といった一連の機能的な読み出しを組み合わせることが理想的だと考えられます。
💡 用語解説:VUS(意義不明のバリアント)
遺伝子検査で見つかった塩基配列の違いのうち、病的なのか良性なのか、現時点では判断できないものを「VUS(Variant of Uncertain Significance)」と呼びます。MEPCEのように疾患との関連がまだ確立していない遺伝子では、見つかったバリアントがVUSと判定されることも十分に考えられます。VUSは「病的」でも「良性」でもなく、追加の情報が集まるまで慎重に扱う、という位置づけです。
9. がん・染色体7q・創薬との関わり
MEPCEはがんとどう関わるのでしょうか。まず、第7番染色体やその長腕(7q)の欠失は、骨髄系の腫瘍などで問題になることがあります。しかし、欠失する領域には多数の遺伝子が含まれるため、7q22.1にMEPCEがあるというだけでは、MEPCEをがんの「ドライバー遺伝子(がんを駆動する遺伝子)」と同定することはできません。単一の遺伝子の量(用量)と腫瘍の性質を、因果的に結びつける必要があります。
HPAのがんデータでは、MEPCEのRNA量が腎淡明細胞癌(KIRC)や腎乳頭状細胞癌(KIRP)で予後と関連するマーカーとして分類されています[10]。ただし、これはあくまで患者集団の中での「発現と予後の相関」であって、MEPCEが腫瘍を引き起こす、あるいはMEPCEを阻害すれば治療効果が得られる、ということを示す証拠ではありません。相関と因果を混同しないことが大切です。7SK経路全体としては、LARP7が7SK snRNPの健全性を保つことでP-TEFb依存の転写や腫瘍化を抑える、という研究があり[6]、これはMEPCEにも間接的に重要ですが、LARP7で見られたことをそのままMEPCEに当てはめることはできません。両者は同じコアにいても、MEPCEには酵素活性、LARP7にはRNA結合という、非対称な役割があるからです。
創薬の観点では、MEPCEそのものを標的とする、臨床的に確立した治療薬は今のところありません。現時点でのMEPCEは、直接の薬の標的というより、P-TEFb/7SK系を操作するための「しくみ上の要所」として重要だと考えられています。理論的には、SAM結合や触媒ポケットを阻害してキャップ形成を抑える、MEPCE–LARP7の接触面を変えてコアの安定性を操作する、といった介入点が考えられます。ただし、MEPCEは7SKに加えてU6 snRNAの安定性にも関わり、広く発現しているため、全身的に阻害すると基本的なRNAの恒常性を広く損なうおそれがあります。したがって、単純な酵素阻害薬は、効果と副作用のバランス(治療域)がかなり狭くなる可能性があります。
2019年・2022年の構造研究は、触媒ポケットそのものよりも、特定のタンパク質とRNA、あるいはタンパク質同士の接触面を、離れた場所から調節する(アロステリックな)発想を可能にしました。これは、MEPCEの「酵素としての働き」と「足場としての働き」を、薬理学的に分けて操作できる可能性を示唆します。ただし現段階では、あくまで創薬の仮説であり、生体での検証が必要な段階です。P-TEFbはHIVのTat依存の転写や、がん細胞の高い転写状態にも関わるため、7SKの貯蔵庫が形成・放出されるしくみは治療生物学上も注目されていますが、「MEPCEを阻害すれば抗がん・抗HIV作用が得られる」とする直接的な臨床証拠は、現時点では不足しています。
10. よくある誤解
誤解①「MEPCEはただのキャップ酵素」
MEPCEは7SKにキャップを付ける酵素であると同時に、7SK snRNPコアを支える構造材でもあります。成熟した複合体の中ではキャップ活性が抑えられ、むしろ足場としての役割が前面に出ます。この二重の顔がMEPCEの本質です。
誤解②「MEPCEは転写をいつも止める」
MEPCEが支える7SK RNPは、P-TEFbを抑えて転写にブレーキをかける一方、特定のsnRNA遺伝子の転写を支える働きも持ちます。「常に抑制する因子」という単純な理解は正確ではありません。
誤解③「確立した疾患概念がないから重要でない」
MEPCEではde novoナンセンスバリアントを持つ神経発達障害の単一症例が報告されていますが、反復症例に基づく確立した疾患概念には至っていません。基本的な細胞機能に関わるため、強い機能喪失が患者として観察されにくい可能性も考えられます(現時点では仮説)。疾患概念の確立度と遺伝子の重要さは別問題です。
誤解④「BCDIN3とBCDIN3Dは同じ」
MEPCEの別名は BCDIN3 ですが、名前のよく似た BCDIN3D はまったく別の遺伝子です。検査結果や論文でこの2つを取り違えないことが、実務ではとても大切です。
まとめ ─ 「縁の下の力持ち」としてのMEPCE
MEPCEについて、現時点でもっとも確かにいえるのは、「7SKを化学的に成熟させる酵素」であると同時に「成熟した7SK RNPを支える、酵素活性によらない足場タンパク質」でもある、という二重機能です[7]。この二つの顔は、生化学・機能喪失実験・タンパク質やRNAの相互作用解析・X線構造・クライオ電子顕微鏡という、たがいに補い合う手法から強く裏づけられています[8][9]。
一方で、ヒトの発生における役割、組織ごとの具体的な機能、MEPCE自身の機能的な翻訳後修飾、患者レベルでの遺伝型と表現型の関係、アイソフォームごとの実際の働きは、7SKの生化学に比べて、まだ大きく未解明のまま残されています。MEPCEは、派手さこそありませんが、遺伝子の読み取りという生命の根幹を静かに支える「縁の下の力持ち」です。分子のしくみへの確信度と、臨床的な表現型への確信度には大きな差があること――この距離感を丁寧に扱うことが、こうした基盤的な遺伝子を理解するうえで欠かせません。
よくある質問(FAQ)
Q1. MEPCE遺伝子とは何ですか?
MEPCE(メプシー/methylphosphate capping enzyme)は、7SK snRNAという非コードRNAの5′末端に「メチルリン酸キャップ」という特別なふたを付ける酵素の設計図です。このキャップは7SK snRNAを安定させます。さらにMEPCEは、酵素としての働きとは別に、LARP7というタンパク質や7SK snRNAと組んで「7SK snRNP」という複合体の芯(コア)を形づくる構造材としても働きます。別名はBCDIN3で、第7番染色体の7q22.1にあります。
Q2. MEPCEはどんな働きをしているのですか?
大きく2つの顔があります。1つは「酵素」として、SAM(メチル基の運び屋)から受け取ったメチル基を7SK snRNAの5′末端に付け、キャップをつくる働きです。もう1つは「構造材」として、LARP7や7SK snRNAと安定な芯(コア)をつくり、転写のアクセルであるP-TEFbを閉じ込めておく7SK snRNPを支える働きです。成熟した複合体の中では、キャップをつくる活性はむしろ抑えられ、足場としての役割が前面に出ます。
Q3. MEPCEの変異で起こる病気はありますか?
2019年に、de novo MEPCEナンセンスバリアントc.1552C>T/p.(Arg518*)を持つ神経発達障害の男児が報告され、患者由来細胞でMEPCE低下と7SK snRNPの機能異常が示されています。ただし、反復する独立症例に基づく確立したメンデル型疾患としての位置づけは、現時点では十分に確立していません。遺伝子検査でMEPCEにまれなバリアントが見つかっても、「重要な遺伝子だから病的」とすぐには判断できず、複数の情報を統合した慎重な評価が必要になります。
Q4. 名前の似たBCDIN3Dとは同じ遺伝子ですか?
いいえ、別の遺伝子です。MEPCEの別名は「BCDIN3」ですが、それとよく似た名前の「BCDIN3D」は、MEPCEとはまったく異なる遺伝子です。名前が紛らわしいため、論文や検査結果でこの2つを取り違えないよう注意することが、遺伝診療の実務では大切になります。
Q5. MEPCEはがんや治療薬と関係がありますか?
MEPCEのRNA量が、腎臓のがん(腎淡明細胞癌・腎乳頭状細胞癌)で予後と相関するという報告があります。ただし、これは患者集団内での相関であって、MEPCEががんを引き起こす、あるいはMEPCEを阻害すれば治療できる、という証拠ではありません。創薬の面では、MEPCE自体を狙う確立した治療薬はまだなく、P-TEFb/7SK系を操作するための「しくみ上の要所」として注目されている段階です。治療に関する判断は、必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Yang Z, Zhu Q, Luo K, Zhou Q. The 7SK small nuclear RNA inhibits the CDK9/cyclin T1 kinase to control transcription. Nature. 2001;414(6861):317-322. doi:10.1038/35104575. [PubMed 11713532]
- [2] Nguyen VT, Kiss T, Michels AA, Bensaude O. 7SK small nuclear RNA binds to and inhibits the activity of CDK9/cyclin T complexes. Nature. 2001;414(6861):322-325. doi:10.1038/35104581. [PubMed 11713533]
- [3] Michels AA, Fraldi A, Li Q, et al. Binding of the 7SK snRNA turns the HEXIM1 protein into a P-TEFb (CDK9/cyclin T) inhibitor. EMBO J. 2004;23(13):2608-2619. doi:10.1038/sj.emboj.7600275. [PubMed 15201869]
- [4] Jeronimo C, Forget D, Bouchard A, et al. Systematic analysis of the protein interaction network for the human transcription machinery reveals the identity of the 7SK capping enzyme. Mol Cell. 2007;27(2):262-274. doi:10.1016/j.molcel.2007.06.027. [PubMed 17643375]
- [5] Krueger BJ, Jeronimo C, Roy BB, et al. LARP7 is a stable component of the 7SK snRNP while P-TEFb, HEXIM1 and hnRNP A1 are reversibly associated. Nucleic Acids Res. 2008;36(7):2219-2229. doi:10.1093/nar/gkn061. [PubMed 18281698]
- [6] He N, Jahchan NS, Hong E, et al. A La-related protein modulates 7SK snRNP integrity to suppress P-TEFb-dependent transcriptional elongation and tumorigenesis. Mol Cell. 2008;29(5):588-599. doi:10.1016/j.molcel.2008.01.003. [PubMed 18249148]
- [7] Xue Y, Yang Z, Chen R, Zhou Q. A capping-independent function of MePCE in stabilizing 7SK snRNA and facilitating the assembly of 7SK snRNP. Nucleic Acids Res. 2010;38(2):360-369. doi:10.1093/nar/gkp977. [PubMed 19906723]
- [8] Yang Y, Eichhorn CD, Wang Y, Cascio D, Feigon J. Structural basis of 7SK RNA 5′-γ-phosphate methylation and retention by MePCE. Nat Chem Biol. 2019;15(2):132-140. doi:10.1038/s41589-018-0188-z. [PubMed 30559425]
- [9] Yang Y, Liu S, Egloff S, et al. Structural basis of RNA conformational switching in the transcriptional regulator 7SK RNP. Mol Cell. 2022;82(9):1724-1736.e7. doi:10.1016/j.molcel.2022.03.001. [PubMed 35320752]
- [10] MEPCE gene/protein information. The Human Protein Atlas. [proteinatlas.org]
- [11] METHYLPHOSPHATE CAPPING ENZYME; MEPCE. OMIM. [OMIM 611478]
- [12] Cryo-EM structure of 7SK core RNP with MePCE, LARP7 and 7SK RNA. EMBL-EBI Electron Microscopy Data Bank. [EMD-25198]
- [13] Schneeberger PE, Bierhals T, Neu A, Hempel M, Kutsche K. de novo MEPCE nonsense variant associated with a neurodevelopmental disorder causes disintegration of 7SK snRNP and enhanced RNA polymerase II activation. Sci Rep. 2019;9(1):12516. doi:10.1038/s41598-019-49032-0. [PubMed 31467394]
- [14] Peng Q, Wang Y, Xiao Y, et al. Drosophila Amus and Bin3 methylases functionally replace mammalian MePCE for capping and the stabilization of U6 and 7SK snRNAs. Sci Adv. 2023;9(50):eadj9359. doi:10.1126/sciadv.adj9359. [PubMed 38100593]






