

目次
- 1 1. HEXIMとは ─ 転写のアクセルを「留め置く」ブレーキ役
- 2 2. HEXIMの構造と、HEXIM1・HEXIM2の違い
- 3 3. 7SK–P-TEFb軸のしくみ ─ HEXIMはどう働くのか
- 4 4. RNPスイッチとP-TEFbのリザーバー ─ 「すぐ使える在庫」を管理する
- 5 5. 7SK選択性の謎と、2026年の最新研究
- 6 6. リン酸化による調節 ─ HEXIMの「スイッチ」を切り替える
- 7 7. 分化・細胞運命・p53とのつながり
- 8 8. 疾患との関わり ─ 乳がん・心臓・HIV
- 9 9. 遺伝診療との接点 ─ 「転写のアクセルとブレーキ」を読む視点
- 10 10. よくある誤解
- 11 補足 ─ 研究の歩みと、これからの課題
- 12 まとめ ─ HEXIMという「在庫管理役」
- 13 よくある質問(FAQ)
- 14 参考文献
- 15 関連記事

📍 クイックナビゲーション
遺伝子が読み取られて働き始めるまでには、いくつもの「アクセルとブレーキ」が用意されています。その中でも、HEXIM1・HEXIM2(ヘキシム1・ヘキシム2)というタンパク質は、遺伝子を写し取る作業(転写)のアクセル役であるP-TEFb(ピー・テフビー)を、必要になるまで一時的に「留め置く」ブレーキ役として働いています。しかもそのブレーキは、7SK RNAという短いRNAをセンサーとして使う、たいへん精巧なしくみです。この記事では、HEXIMとは何か、HEXIM1とHEXIM2はどう違うのか、そして乳がん・心臓の発生・HIVといった病気とどうつながるのかを、遺伝専門医の視点でやさしく解説します。
Q. HEXIM(HEXIM1・HEXIM2)とは何ですか?まず結論だけ知りたいです
A. HEXIMは、7SK RNAという短いRNAと結合することで、転写のアクセルであるP-TEFb(CDK9とサイクリンTの複合体)を一時的に取り込んで働けない状態に隔離する、RNA依存性の調節タンパク質です。哺乳類にはHEXIM1とHEXIM2という2つの近縁タンパク質があり、たがいに補い合いながら、細胞内で「すぐ使えるP-TEFbの量」を細かく調整しています。HEXIM1はさらに、乳がんを抑える方向の働きや、p53というがん抑制因子を安定させる働きも報告されています。
- ➤正体 → 7SK RNAと結合してP-TEFb(転写のアクセル)を一時的に隔離するRNA依存性の調節タンパク質
- ➤2つの仲間 → HEXIM1とHEXIM2があり、別々の遺伝子から作られる「パラログ(近縁タンパク質)」。片方が減っても他方が補う
- ➤どう効くか → HEXIM単独では弱く、7SK RNAと結びついて初めてP-TEFbを抑える力を得る
- ➤病気とのつながり → 乳がん・心臓の発生・HIVで実験的な裏づけが強い
- ➤遺伝診療での意味 → 「転写のアクセルとブレーキの量」を決めるしくみとして、遺伝子の働きを読み解く土台になる
🧬 HEXIMの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・名前の由来 | ヘキシム。HEXamethylene bis-acetamide(HMBA)という分化誘導物質で発現が誘導されるタンパク質として見つかったことに由来します |
| 別名 | HEXIM1はMAQ1、EDG1(乳腺)、CLP-1(心臓)という名前でも研究されてきました |
| 2つの仲間 | HEXIM1(古典的なヒト型は359アミノ酸)と、そのパラログHEXIM2(286アミノ酸)[6] |
| 主なはたらき | 7SK RNAをセンサーに使い、転写のアクセルP-TEFbを可逆的に隔離すること |
| 関わる病気 | 乳がん、心臓の発生・心肥大、HIVの転写など |
| 医療との関わり | 直接の検査対象ではなく、遺伝子の働きや転写制御を理解するための基礎知識として重要です |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. HEXIMとは ─ 転写のアクセルを「留め置く」ブレーキ役
私たちの体の細胞では、遺伝子(DNA)の情報がRNAへと写し取られ、そのRNAをもとにタンパク質が作られています。この最初の「写し取り」を転写といい、担当するのがRNAポリメラーゼII(Pol II)という酵素です。ところが、Pol IIは遺伝子の入り口付近でいったん立ち止まる(一時停止する)ことが知られています。この止まったPol IIを、本格的な写し取り(伸長)へと踏み出させる「アクセル」が、P-TEFbという酵素です。
アクセルが強すぎても弱すぎても、細胞の遺伝子発現は大きく乱れてしまいます。そこで細胞は、P-TEFbの一部を「使わないときは倉庫にしまっておく」しくみを持っています。この倉庫の入り口で鍵を握っているのが、今回の主役HEXIMです。HEXIMは、7SK RNAという短いRNAと組んで、P-TEFbを一時的に取り込んで働けない状態にします。必要になれば、またP-TEFbを解き放つことができる、可逆的なしくみです。
💡 用語解説:P-TEFbと転写伸長
P-TEFb(正の転写伸長因子b)は、CDK9という酵素(キナーゼ)とサイクリンT1またはT2という部品が組み合わさったものです。入り口付近で止まっているPol IIやその周囲の因子にリン酸という目印を付けることで、Pol IIを「本格的な写し取り」へと移行させます。いわば転写のアクセルです。
HEXIMという少し変わった名前は、その発見の経緯に由来します。もともとHEXIM1は、ヒトの血管平滑筋細胞をヘキサメチレンビスアセトアミド(HMBA)という物質で処理したときに、発現が増える遺伝子として見つかりました。HMBAは、がん化した細胞を「分化」の方向へ促す物質として研究されていたため、HEXIMは発見の当初から「細胞の分化」と縁の深いタンパク質でした。その後、同じタンパク質が乳腺の研究ではEDG1、心臓の発生研究ではCLP-1という別名で研究されていたことも分かり、HEXIM1が体のさまざまな場面で顔を出すことが明らかになっていきました。
2. HEXIMの構造と、HEXIM1・HEXIM2の違い
まず名前の整理からです。「HEXIM1/HEXIM2アイソフォーム」という言い方を見かけることがありますが、遺伝学的には正確ではありません。HEXIM1とHEXIM2は、別々の遺伝子から作られる独立したタンパク質で、「パラログ(遺伝子重複で生まれた近縁の仲間)」と呼ぶのが適切です。2005年、HEXIM1の359アミノ酸の配列をもとにした相同性検索から、286アミノ酸のHEXIM2が見つかり、その後7SKに依存したP-TEFb抑制の働きと、HEXIM1との機能的な重なりが実験的に確かめられました[6]。
HEXIM1のかたちは、大きく4つの部分に分けて考えると理解しやすくなります。前半のN末端領域(比較的保存性が低く、決まった形を持たない部分)、中央の塩基性/RNA結合領域、その後ろのP-TEFbを抑えるための領域、そして末端のコイルドコイル二量体化領域です。末端のコイルドコイルは、同じHEXIM1どうしがしっかり結びついて安定した二量体(ペア)を作るのに使われ、サイクリンTやP-TEFbとの結合にも重要です。
💡 用語解説:二量体(にりょうたい)とコイルドコイル
「二量体」とは、同じ種類のタンパク質が2つ組み合わさってペアになったものです。「コイルドコイル」は、らせん状のタンパク質どうしが縄のように巻き合って結びつく、丈夫な接着構造のことです。HEXIMはこのコイルドコイルを使って、まず自分どうしがペアを組み、そのうえで7SK RNAやP-TEFbと出会います。
中央の塩基性領域には、7SKと結合するために必要な部分があります。研究では、7SKを認識するのに重要な150番台の配列と、P-TEFbとの結合に欠かせない202〜205番あたりの保存された配列とが、それぞれ別々に切り分けられることが示されました[4]。さらに、この塩基性領域は核へ移動するための信号も兼ねていて、隣にある酸性領域との電気的な引き合いによって、7SKと結びついていないときのHEXIM1を「自己抑制」状態に保っていることも分かってきました[5]。つまりHEXIM1は、ふだんは自分で自分にブレーキをかけていて、7SKと出会うことでそのロックが外れる、という巧みな設計になっているのです。この「自己抑制」は、一見まわりくどく思えるかもしれません。しかし、7SKと出会っていないときにHEXIM1が勝手にP-TEFbを抑えてしまうと、必要な転写まで止まりかねません。あらかじめロックをかけておき、正しい相手と出会ったときだけ働く——この設計は、ブレーキが誤作動しないための安全装置だと考えると理解しやすくなります。後の章で紹介する2026年の構造研究は、この安全装置のしくみを分子のレベルで解き明かしました。
🔬 HEXIM1とHEXIM2の比較
| 特徴 | HEXIM1 | HEXIM2 |
|---|---|---|
| 遺伝的な関係 | 独立したHEXIMファミリー遺伝子の産物。古典的なヒト型は359アミノ酸 | HEXIM1のパラログ。2005年の原著では286アミノ酸として同定[6] |
| かたち | N末端・塩基性RNA結合領域・P-TEFb抑制領域・末端コイルドコイル | N末端がHEXIM1よりかなり短い一方、中央〜末端の相同性は高い |
| 7SKとの結合 | 強い実験的裏づけ。7SK結合がP-TEFb抑制能を引き出す[4] | 7SKと会合し、P-TEFbを不活性な複合体へ取り込める[6] |
| 補い合い | HEXIM2が減ったときにP-TEFbの隔離を補える[7] | HEXIM1が減ったときに不活性P-TEFbプールを部分的に補う[7] |
| 疾患との直接証拠 | 乳がん・p53・心臓の発生・HIV・分化など多数 | 直接結びつける証拠はHEXIM1より少なく、主にP-TEFb恒常性の補償 |
発現のしかたにも個性があります。HEXIM1は、HMBAや分化の刺激、ホルモン、ストレスなどに応じて量が変わります。一方、HEXIM2はさまざまな組織で発現しますが、HEXIM1とは相対的な発現のパターンが異なります。ただし、「どちらの組織でどちらが多いか」を単純な高い・低いの表に固定してしまうのは危険です。発現量は、調べたデータセットやRNAとタンパク質のどちらを見るか、細胞の状態などによって変わるからです。したがって発現量だけからP-TEFbの活性を推定することはできず、2つのHEXIMが補い合う性質も含めて考える必要があります。
3. 7SK–P-TEFb軸のしくみ ─ HEXIMはどう働くのか
HEXIMの働きを理解する鍵は、7SK snRNPと呼ばれる大きな部品の集まりです。物語は2001年にさかのぼります。この年、2つの独立した研究グループが、7SKという短い核内RNAがP-TEFb(CDK9/サイクリンT)と結合し、その酵素活性を抑えることを相次いで報告しました[1][2]。当時は7SKだけで抑えているように見えましたが、その後の解析で、7SKの抑える力をP-TEFbへ伝える「橋渡し役」のタンパク質が必要であることが分かりました。それがHEXIM1だったのです[3]。
ここが重要な点です。HEXIM1は、単独ではP-TEFbを強く抑えることができません。7SK RNAと結びつくことで初めて、P-TEFbを抑える力を獲得します。2004年の再構成実験では、精製したタンパク質を使って、7SKがあるときにHEXIM1がP-TEFbに結合してCDK9の活性を抑えられることが再現されました。同時に、7SKと結合できなくする変異と、P-TEFbとだけ結合できなくする変異を作り分けることに成功し、「7SKがHEXIM1のかたちを変える → その結果P-TEFbと結合して抑える」という順序のモデルが強く裏づけられました[4]。
💡 用語解説:RNA依存性の調節タンパク質とは
ふつう、タンパク質の働きは他のタンパク質や小さな分子によって調整されます。ところがHEXIMは、RNA(7SK)を「スイッチ」として使う点が特徴的です。7SKと結びつくかどうかで、HEXIMは「ただのタンパク質」から「P-TEFbを抑えるブレーキ」へと切り替わります。RNAが道具として使われる、少し珍しいしくみです。
では、実際にどんな部品が集まっているのでしょうか。7SK RNAには、5′端を保護するMEPCEという酵素と、3′端を安定させるLARP7というタンパク質が、いつも比較的しっかりと付いています。これが7SK snRNPの「土台(コア)」です。この土台に、HEXIMとP-TEFbが乗ったり、あるいはhnRNPと呼ばれる別のタンパク質群が乗ったりして、状況に応じて構成が入れ替わります。つまり7SK snRNPは、固定された「抑制の装置」ではなく、転写の需要に応じて中身が変わるRNP(RNAとタンパク質の複合体)のスイッチなのです。全体の流れを図で見てみましょう。
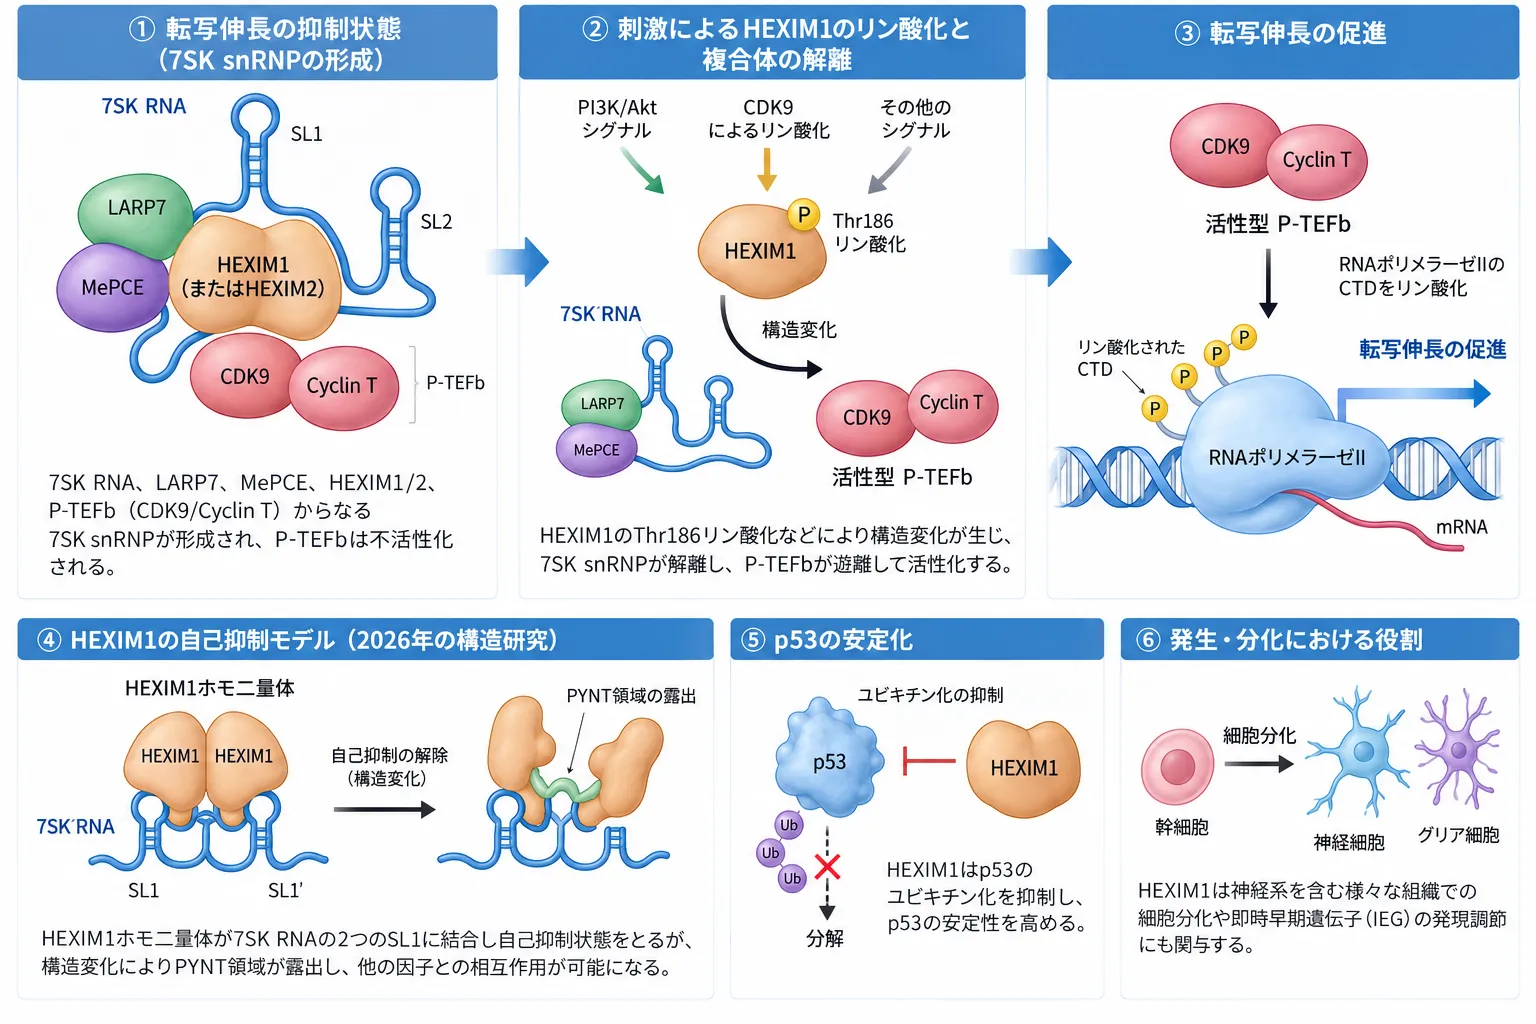
HEXIM1・HEXIM2は7SK RNA、LARP7、MEPCEなどからなる7SK snRNPにP-TEFb(CDK9/Cyclin T)を隔離し、転写伸長を可逆的に制御します。刺激に応じてP-TEFbが放出されると、RNAポリメラーゼIIなどのリン酸化を介して生産的な転写伸長が促進されます。HEXIM1では、7SK RNAとの結合による自己抑制の解除とP-TEFb結合領域の露出が示されており、さらにp53の安定化や発生・分化に関わる転写制御との関連も報告されています。
この不活性な複合体の「組成」を定量的に調べた研究があります。2005年のLiらの解析によれば、大きな不活性複合体は、おおむね1分子の7SK、HEXIM1またはHEXIM2の二量体、そして2分子のP-TEFbから成り立っていました[8]。とくに興味深いのは、隔離されていたP-TEFbのCDK9が、活性化に必要なスレオニン186(Thr186)という部位がすでにリン酸化された状態だった点です。Thr186のリン酸化はCDK9が働くための必須条件なので、これはHEXIM–7SKが「壊れたP-TEFbをしまっている」のではなく、いつでも働ける状態のP-TEFbを、あえて留め置いていることを意味します[8]。
4. RNPスイッチとP-TEFbのリザーバー ─ 「すぐ使える在庫」を管理する
前の章の内容をひとことでまとめると、HEXIM–7SKは「すぐ使えるP-TEFbの在庫(リザーバー)」を管理するしくみだといえます。P-TEFbを永久に止めているのではなく、需要が低いときはしまい、需要が高まれば取り出せるようにしている。この「在庫管理」があるおかげで、細胞は転写のアクセルを過不足なく使えるわけです。
HEXIM2についても、2005年に7SKとの会合、P-TEFbの取り込み、転写の抑制が示されました[6]。同じ時期の別の研究では、HEXIM1またはHEXIM2を減らす実験から、一方が減ると他方がある程度肩代わりして、働けるP-TEFbと働けないP-TEFbの比率を保つことが示されました[7]。つまりHEXIM2は、単なる「発現量の少ないHEXIM1もどき」ではなく、P-TEFbの在庫管理に予備の余裕を与える、生理的なバックアップ系だと考えられます。
7SK snRNPが「動的なスイッチ」だという点も、もう少し具体的に見ておきましょう。土台のMEPCE・LARP7が比較的しっかり付いているのに対し、HEXIM/P-TEFbと、hnRNP(ヘテロ核リボ核タンパク質)と呼ばれる別のタンパク質群は、より入れ替わりやすい関係にあります。ざっくりいうと、7SK snRNPには「HEXIM+P-TEFbが乗った抑制型」と「hnRNP群が乗った型」の2つの状態があり、転写を止める薬などで刺激すると、HEXIMとP-TEFbが追い出されてhnRNP群と入れ替わることが知られています。つまり同じ7SKの足場の上で、乗る顔ぶれが状況に応じて交代しているのです。だからこそ7SK snRNPは、固定された「抑制装置」ではなく、転写の需要に合わせて中身を組み替える可変のRNPだといえます。
P-TEFbを解き放つ引き金は一つではありません。転写の需要、細胞の増殖状態、ストレス、T細胞の活性化、そしてHIVのTat(タット)というタンパク質など、さまざまな刺激に応じて、P-TEFbは7SK snRNPから放出されたり、また取り込まれたりします。細胞の中には、BRD4のようにP-TEFbを遺伝子へ呼び込む因子もいて、これらはHEXIM–7SK系と「P-TEFbの奪い合い」をしています。したがってHEXIMの役割は、「CDK9を永久にオフにする」ことではなく、いつ、どの転写プログラムに、どれだけP-TEFbを供給するかを制限することにあります。放出されたP-TEFbが本格的な写し取りに参加するときは、スーパー伸長複合体やPaf1複合体といった、他の伸長装置とも協力します。
🩺 院長コラム【「量」ではなく「配り方」を決めるしくみ】
遺伝子の働きを考えるとき、つい「その因子が多いか少ないか」に目が行きがちです。しかしHEXIMのしくみを見ていると、大切なのは総量よりも「必要なときに、必要な場所へ、どれだけ配れるか」だと気づかされます。すぐ使える在庫を確保しつつ、使いすぎないように留め置く——これは、限られた資源をやりくりする現場の知恵にも通じる考え方です。
臨床遺伝専門医として文献を踏まえると、遺伝子の変化を読むときも同じ視点が役に立ちます。あるタンパク質の「量」だけでなく、「そのタンパク質が調整役として何をどう配っているのか」まで考えることで、変化の意味がより立体的に見えてくるのです。HEXIMのように、酵素反応そのものを担うわけではないけれど、全体の流れを整える「調整役」に光を当てることは、遺伝子の働きを一面的に決めつけないための、よい訓練になると感じています。
5. 7SK選択性の謎と、2026年の最新研究
ここで、長年研究者を悩ませてきた一つの疑問があります。HEXIM1は、細胞の中にある無数のRNAの中から、どうやって7SKだけを選んで働くのでしょうか。実は2007年、HEXIM1が7SK以外のさまざまな二本鎖RNAとも結合し得る「えり好みしない(promiscuous)RNA結合タンパク質」であることが示されていました。近年では、HEXIM1がNEAT1という長鎖ノンコーディングRNAや、いくつかのメッセンジャーRNAとも相互作用することが報告されており、HEXIM1の働きが7SKだけにとどまらない可能性も示されています。それだけに、「では、細胞の中の無数のRNAの中から、なぜ7SKを選んで機能できるのか」という難問が、長らく残っていたのです。
ここで、7SKそのものの位置づけも押さえておきましょう。7SKは約330塩基ほどのノンコーディングRNAで、タンパク質の設計図としては使われませんが、Pol IIによる転写の制御に中心的な役割を果たします。HEXIMにとって7SKは、単なる結合相手ではなく、自身を「働けるブレーキ」に切り替えるためのセンサーであり足場でもあります。この特別な関係が、どのようにして無数のRNAの中から成立するのか——そこに、次に述べる最新研究がメスを入れました。
この問いに、大きな手がかりを与えたのが2026年のNature Communications誌の構造研究です[16]。この研究は、NMR(核磁気共鳴)などの手法を使って、HEXIM1のふるまいを詳しく調べました。その結果、遊離したHEXIM1の二量体には「二量体内自己抑制(inter-monomer autoinhibition)」というしくみがあることが分かりました。ペアを組んだHEXIM1どうしが、P-TEFb抑制に重要な「PYNT」という部分をたがいに覆い隠し合って、勝手に働かないようにしているのです[16]。このPYNTという保存された配列は、2016年の研究でCDK9の触媒部位の近くに作用してその働きを妨げることが示されており、HEXIMがP-TEFbを抑える分子的な実体として注目されてきました[13]。
💡 「二本のカギ穴」で7SKを選ぶ
この研究によれば、HEXIM1の二量体は、7SK RNAの特定の部分(SL1)にある2つの高親和性サイトに結合します。この「2か所同時の結合」が引き金となって、隠されていたP-TEFb結合面(PYNT)が露わになり、2分子のP-TEFbを抑えられる状態になります[16]。RNAへの物理的な結合そのものはえり好みしなくても、「P-TEFbを抑える力が生まれる生産的な結合」は、7SKの立体的な配置によって厳しく選ばれる——これが謎への一つの答えでした。
この発見は、HEXIM1を「ただの非特異的な二本鎖RNA結合タンパク質」とみなす古い解釈を、大きく更新するものでした。えり好みしない結合という一見矛盾する性質と、7SKへの高い選択性とが、「自己抑制の解除」と「2か所配置の認識」という2段構えのしくみで両立していたのです。ただし、7SKからMEPCE・LARP7・HEXIM・P-TEFbまでを、細胞内に近い状態で完全に再現した原子レベルの構造は今なお限られており、モデルのすべてが決着したわけではありません。
6. リン酸化による調節 ─ HEXIMの「スイッチ」を切り替える
HEXIM–7SK–P-TEFbのバランスは、固定されたものではありません。細胞の状態に応じて、P-TEFbが放出されたり、また捕まえ直されたりします。その切り替えに関わる代表的なしくみがリン酸化(タンパク質にリン酸の目印を付ける修飾)です。
2007年のContrerasらの研究は、HIV転写のモデルを使って、HMBA処理のあとにPI3K/Aktという経路が一過性に活性化し、続いてHEXIM1のリン酸化、HEXIM1/7SKからのP-TEFb放出、HIV転写の増強が連続して起こることを示しました[11]。ただし、この論文をめぐってよく見られる「AktがHEXIM1を直接リン酸化する」という記述は、少し強すぎます。データはPI3K/Akt経路が必要であることを支持していますが、著者自身もAktによる直接のリン酸化は推測として提示しており、酵素と基質の直接的な関係を決定的に証明したわけではありません。HEXIMの文献を読むときには、この区別が大切です。
💡 用語解説:リン酸化と「スイッチ」
リン酸化とは、タンパク質の特定の場所にリン酸という小さな目印を付ける化学修飾です。この目印が付くかどうかで、タンパク質の形や結びつく相手が変わることがあります。HEXIMの場合、リン酸化は「分解の合図」ではなく、P-TEFbを放出する速さを調整するスイッチとして働く可能性が示されています。
より具体的な部位も分かってきました。2015年のMbonyeらは、HIV潜伏のモデルからHEXIM1の複合体を精製し、高分解能の質量分析でHEXIM1のリン酸化されうる部位を丹念に調べました[12]。その中で、コイルドコイル二量体化領域のすぐ手前にあるTyr271/Tyr274(271番目と274番目のチロシン)のリン酸化が、刺激後に検出されました。これらをリン酸化されたように見せかける変異は、HEXIM1の核内での分布は大きく損なわないまま、P-TEFbを7SK snRNPへ取り込むのを妨げました。逆に、リン酸化できないように変えた変異体は、P-TEFbとは正常に複合体を作るものの、その交換を強く抑え、刺激に対するHIVの再活性化を弱め、T細胞の増殖にも重い障害を与えました[12]。この結果は、HEXIM1のリン酸化が、不活性なP-TEFbの在庫からの放出の速さを調整する分子スイッチになり得ることを示しています。
一方で、注意すべき例もあります。7SK結合領域の近くにあるSer158のリン酸化は、以前からRNA結合やP-TEFb放出への関与が提案され、「リン酸化を模倣する変異体」を使った研究では大きな効果が示唆されてきました。ところが2026年のNMR解析では、実際にSer158をリン酸化したHEXIM1では自己抑制の変化が比較的小さく、強い電荷の置換変異のほうがずっと大きく7SKへの結合を弱めていました[16]。つまり、「リン酸化を模倣した変異」の結果を、そのまま「本物のリン酸化の効果」と同一視してはいけないのです。HEXIM1で機能が最もよく確立している修飾はリン酸化ですが、個々の部位について「どのキナーゼが、どの部位を、どう変えるか」という因果の鎖が完成している例は、まだ限られています。
リン酸化されうる部位は、ほかにもいくつか提案されています。コイルドコイル領域の入り口付近にあるThr270やSer278などがその例で、大規模な質量分析ではさらに多くの修飾候補が検出され得ます。ただし、ここでも「リン酸化を模倣した変異体で見られる効果」と「本物のリン酸化による効果」が食い違う場合があり、部位ごとに慎重な検証が必要です。アセチル化やユビキチン化といった別の修飾を探索した研究もありますが、それらをリン酸化と同じくらい確立した7SK制御のしくみとして扱うのは、現時点では慎重であるべきです。
もう一つ見逃せない調節の層が、HEXIM1の発現量そのものです。HMBAや分化の刺激はHEXIM1を増やし、乳腺系ではエストロゲンがHEXIM1(EDG1)を減らします。転写を標的とする薬(BET阻害薬など)でもHEXIM1の誘導が観察され、HEXIM1の発現は「P-TEFb阻害がどれだけ効いているか」を測る目印としても使われてきました。つまり細胞は、「HEXIM1の量」「7SKとの結合状態」「HEXIM1のリン酸化」「P-TEFb側の修飾」を重ね合わせて、転写のアクセルとブレーキを多層的に調整しているのです。
7. 分化・細胞運命・p53とのつながり
HEXIM1の物語は、発見の当初から「分化」と深く結びついていました。HMBAは、がん化した細胞を分化の方向へ促す物質として研究され、その条件でHEXIM1が強く誘導されました。2006年のTuranoらは、HMBA以外の条件も含めた赤白血病や神経芽腫(しんけいがしゅ)の分化モデルで、HEXIM1の発現が増えることを確認しました[10]。これは、HEXIM1の誘導が単なる一つの薬の副作用ではなく、「増殖する状態」から「分化した状態」への転写プログラムの切り替えと関連していることを示します。
ただし、分化のときにHEXIM1が増えるという事実だけでは、因果関係までは証明できません。より妥当な説明はこうです。増殖している細胞は、MYCなどの働きで大量のP-TEFb依存の転写を必要とします。一方、分化するときにはP-TEFbの「働ける/働けない」の平衡が組み替えられ、HEXIM1の増加がこの平衡を「働けない側」へ押す——という考え方です[9]。細胞周期についても、「HEXIM1が細胞周期のエンジンを直接動かす」というより、P-TEFb依存の転写やp53を介して間接的に調整する、と考えるほうが実験結果とよく合います。
そのp53との関係は、HEXIM1がP-TEFbとは別の経路でも細胞に影響することを示す重要な例です。2012年、HEXIM1がp53というがん抑制因子を安定させる方向の調節因子として報告されました。相互作用やユビキチン化の解析から、HEXIM1はp53へのHDM2の結合と競い合い、p53が壊されるのを抑え得ることが示されました[14]。HEXIM1を減らすとp53の応答が弱まることから、HEXIM1はストレス時にp53がたまるのを後押しする因子と考えられます。
💡 用語解説:p53とHDM2
p53は「ゲノムの守護者」とも呼ばれる、がんを抑える代表的なタンパク質です。細胞がストレスを受けると増えて、修復や細胞周期の停止、必要ならアポトーシス(細胞の自死)を促します。HDM2は、そのp53に目印を付けて分解へ導く相手役です。HEXIM1がHDM2とp53の結合を邪魔することで、p53が長持ちしやすくなる、というわけです。
もっとも、「HEXIM1が増えれば必ずアポトーシスが起きる」という単純な関係ではありません。7SKをsiRNAで枯渇させてもアポトーシスが起きることが報告されており、P-TEFb系では抑えすぎも解放しすぎも転写の恒常性を壊し得ます[9]。したがって細胞の生き死にを決めるのは、HEXIM1の絶対量というより、P-TEFbの需要との相対的なバランスである可能性が高いのです。総じてHEXIM1は、単一の運命決定因子ではなく、強く誘導される転写プログラムの「伸長段階」にブレーキをかけ、その結果として増殖・炎症・分化の見え方を変える調整役だと位置づけるのが適切です。
8. 疾患との関わり ─ 乳がん・心臓・HIV
乳がん ─ もっとも一貫したデータ
がんとの関連で、HEXIM1についてもっとも一貫したデータがあるのは乳がんです。2003年、HEXIM1/EDG1がエストロゲンによって発現が下がる乳腺細胞の増殖抑制因子として同定され、乳がんの試料でも発現の低下が報告されました。これにより、HEXIM1は早くからがん抑制因子の候補として位置づけられました。その後の乳腺モデルでは、HEXIM1の増加がエストロゲン依存のVEGFやHIF-1α、血管新生に関わる転写を抑え、細胞の浸潤・転移を弱めることが報告されました。これは、HEXIM1が「細胞自身の増殖」だけでなく、腫瘍の周囲に必要な血管を作るプログラムまで制限し得ることを示しています。
p53との関わりは、乳がんにおける第二のブレーキを与えます。HEXIM1はHDM2とp53の結合を妨げてp53を安定させ得るため、P-TEFbの抑制とは(部分的に)独立して、DNA損傷への応答や増殖の停止を後押しできます[14]。逆にいえば、HEXIM1が低下すると「使えるP-TEFbが増える」ことと「p53の応答が弱まる」ことが同時に起こり得る、という二重の増殖優位が理論的には考えられます。これは複数の実験結果から導かれる推論であり、すべての腫瘍で実証されたわけではありません。より最近では、トリプルネガティブ乳がん(TNBC)でHEXIM1の低下が報告され、HEXIM1がP-TEFbの成熟過程や薬剤への感受性を左右し得ることが示されました[15]。ただし、がんの種類ごとに依存の度合いは一様ではないため、「HEXIM1を増やせば普遍的な抗がん治療になる」と結論できる段階ではありません。なお、乳がん以外でもHEXIMとがんの接点は報告されています。HEXIM1に対する抗体が卵巣がんの患者で高まっていたという報告や、HEXIM2が一部の肺がんで正常組織より高く発現していたという報告もあり、7SK・HEXIM・P-TEFbによる転写制御の乱れと、さまざまながんとのつながりが検討されています。ただし、これらの関連の強さや意味づけには、さらなる研究が必要です。
心臓の発生と心疾患
心臓の筋肉は、P-TEFbの制御にとくに敏感です。2002年、心筋が肥大するときにサイクリンT–CDK9/P-TEFbが活性化し、肥大に関わる転写を促すことが示されました。これと対照的に、マウスでCLP-1/Hexim1の遺伝子を壊すと、HAND1という因子の低下、左心室の形成異常、そして胎生致死(生まれる前に亡くなること)が起こりました。つまりHEXIM1は、大人の心臓での単なる「肥大を抑える因子」ではなく、胎児の心臓の発生に必要な転写のバランサーでもあるのです。さらに、成体のHexim1/CLP-1が半分だけ働くマウスを虚血再灌流やリモデリングにさらすと、完全に欠損した胎仔とは異なる表現型が得られます。すなわち心臓におけるHEXIM1の作用には、発生の段階、遺伝子の量、病的ストレスの種類に依存した非線形性があるのです。
HIV ─ 最も機構が解明された応用
HIVは、HEXIMの生物学がもっとも詳しく解明された病気の応用例です。HIVのTatというタンパク質は、CDK9/サイクリンT1に結合してTAR RNAの上へP-TEFbを呼び込み、止まっていたPol IIを高速の伸長状態へと移行させます。このため、7SK–HEXIMに隔離されているP-TEFbの割合が、Tatにとって使えるP-TEFbの量を決めることになります。前述のContrerasらの実験では、PI3K/Akt依存のシグナルに続いてHEXIM1/7SKからP-TEFbが解離し、HIVのプロモーターへのP-TEFb動員とウイルス転写が増えました。生化学的な「P-TEFbの放出」と、実際の「ウイルス転写の出力」とが結びつけられた点が重要です[11]。
2015年のMbonyeらの研究は、この過程をHEXIM1自身の修飾にまで落とし込みました。リン酸化できないY271F/Y274F型のHEXIM1は、7SK–P-TEFb複合体を過度に安定化し、TNF-αやPMA、T細胞受容体の刺激などに対する潜伏プロウイルスの再活性化を強く抑えました[12]。したがってHEXIM1のリン酸化の状態は、HIVの潜伏と再活性化を左右する一つの分子的な閾値になり得ます。もっとも、HIVの潜伏をHEXIM1だけで説明することはできません。休止しているT細胞ではサイクリンT1の合成そのものが制限され、LTRのクロマチン状態、Tatの量、転写の開始なども律速段階になります。HEXIM1–7SKはHIV転写の重要な「P-TEFb供給側」ではありますが、唯一の潜伏の決定因子ではないのです。
神経系 ─ 記憶と転写
さらに2026年には、神経の分野でも新しい報告がありました。ニューロンが脱分極したあとの最初期遺伝子(IEG)の誘導において、HEXIM1/P-TEFb複合体がPol IIの一時停止からの解放を調整することが示されたのです[17]。カルシウムの刺激に応じてP-TEFbが動員され、その後の転写系の「リセット」にHEXIM1が関わることが示され、記憶や神経の可塑性に関わる転写にも7SK–HEXIM軸が使われている可能性が高まりました。同じ研究では、神経のHEXIM1発現とアルツハイマー病に関連するデータとのつながりも論じられましたが、これは現時点では病気の原因を証明するものではなく、相関や機構の候補として解釈すべきものです[17]。
疾患との関係は、次のように強さを分けて理解するのが妥当です。乳がん・HIV・心臓の発生では、細胞モデルに加えて患者試料や動物モデル、機構の解析が揃っています。一方、多くの炎症・神経・感染症との関連は、現状では生化学的な妥当性や発現の相関が先行しており、HEXIMの異常が病気を直接引き起こすのか、病気の状態に応じて二次的に変化するのかを、さらに切り分けていく必要があります。
9. 遺伝診療との接点 ─ 「転写のアクセルとブレーキ」を読む視点
HEXIMそのものは、日常の遺伝診療で直接検査する対象ではありません。基礎研究が中心の分野です。それでも、HEXIMのしくみを知っておくことは、遺伝子の働きを読み解くうえで役に立ちます。なぜなら、HEXIMは「遺伝子の発現量そのもの」ではなく「発現の調整のされ方」を教えてくれる、格好の教材だからです。
遺伝子検査では、ある遺伝子に変化(バリアント)が見つかったとき、その変化が体にどう影響しうるかを考えます。このとき、遺伝子産物が「酵素として働くか」だけでなく、「他の分子とどう組んで、何を、いつ、どれだけ配っているか」まで視野に入れると、変化の意味がより立体的に見えてきます。HEXIMは、まさに「配り方を決める調整役」であり、その視点の大切さを示す好例です。転写のアクセル(P-TEFb)とブレーキ(HEXIM–7SK)のバランスという考え方は、遺伝子発現の異常が関わるさまざまな病態を理解するうえでの土台になります。
💡 用語解説:バリアント(遺伝子の変化)
「変異」や「バリアント」とは、遺伝子の設計図(DNAの並び)が多くの人と異なっている状態を指します。病気につながるものもあれば、体質の個性にとどまるものもあります。転写を調整する因子の働きに関わるバリアントであれば、遺伝子発現のバランスを通じて体に影響しうる、という視点が遺伝診療では大切になります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。正確な診断に基づいて次の一歩を選べるよう、医学的根拠を中立の立場で整理してお伝えすることを大切にしています。HEXIMのような転写制御の基礎知識も、そうした「遺伝子の働きをどう読み解くか」という理解の一部として位置づけています。
10. よくある誤解
誤解①「HEXIMはP-TEFbを壊す因子」
HEXIMはP-TEFbを壊すのではなく、いつでも働ける状態のまま一時的に留め置く因子です。隔離されたP-TEFbのCDK9は、活性化に必要なThr186がすでにリン酸化されています[8]。「すぐ使える在庫」を管理するイメージが近いです。
誤解②「HEXIM1とHEXIM2は同じ遺伝子のアイソフォーム」
両者は別々の遺伝子から作られるパラログです。中央から末端のかたちはよく似ていますが、N末端の長さが違い、疾患との結びつきもHEXIM1のほうが多く報告されています[6]。
誤解③「HEXIM1だけでP-TEFbを抑える」
HEXIM1は単独では弱く、7SK RNAと結びついて初めてP-TEFbを抑える力を得ます[4]。RNAをスイッチとして使う、RNA依存性の調節タンパク質です。
誤解④「HEXIM1が増えれば必ずがんが抑えられる」
乳がんなどで抑制的な働きは報告されていますが、がんの種類で依存度は一様ではありません。抑えすぎも解放しすぎも転写の恒常性を乱し得るため、単純な増減では語れません[15]。
補足 ─ 研究の歩みと、これからの課題
HEXIMの研究の歩みをふり返ると、その位置づけが「分化のマーカー」から「7SK依存のP-TEFb阻害因子」、さらに「RNAで制御される転写のハブ(結節点)」へと、少しずつ大きくなってきたことが分かります。1999年にHMBAで誘導される遺伝子としてクローニングされ、2001年に7SKによるP-TEFb阻害が発見され、2003〜2004年にHEXIM1がその橋渡し役だと確立し[3][4]、2005年に不活性複合体の組成(1×7SK・2×HEXIM・2×P-TEFb)が定義されました[8]。2012年にはp53を安定させる7SK非依存の働きが加わり[14]、そして2026年には自己抑制と7SK選択性の構造的なしくみが明らかになりました[16]。
一方で、未解決の課題も少なくありません。とりわけHEXIM2は大きな未開拓領域です。HEXIM2が7SK依存のP-TEFb阻害とHEXIM1の補償を担えることは2005年から明らかですが[6]、その後の疾患研究や細胞型ごとのノックアウト、修飾の解析、構造解析は、いずれもHEXIM1に大きく偏っています。また、発現の変化が「病気を引き起こす原因」なのか「病気の状態への二次的な反応」なのかを切り分けること、そして患者の組織で「HEXIMの量」ではなく「HEXIM–7SK–P-TEFbの交換の速さ」を直接測ることも、これからの重要な焦点です。これらが解ければ、HEXIMを単なる「P-TEFbの阻害因子」から、転写の在庫量を設定するシステムレベルの制御因子として、より定量的に理解できるようになるでしょう。
まとめ ─ HEXIMという「在庫管理役」
HEXIM1・HEXIM2は、7SK RNAをセンサー兼足場として使い、転写に使えるP-TEFbのプールの大きさを可逆的に決めるという、最もよく確立した役割を担っています。単純に「アクセルを止める」のではなく、「すぐ使える在庫を確保しつつ、使いすぎを防ぐ」在庫管理役だといえます。その土台の上に、HEXIM1に固有のp53の安定化、ホルモンへの応答、発生・分化といった働きが重なっています。
2026年の構造研究が明らかにした「二量体内自己抑制」と「7SKの2か所結合による選択性」[16]、そして神経の最初期遺伝子への関与[17]など、HEXIMの理解は今も更新され続けています。今後は、HEXIM2の生理機能、内在するリン酸化の定量的な意味、完全な7SK snRNPの動的な構造、そして患者の組織におけるHEXIMの量ではなく「HEXIM–7SK–P-TEFbの交換の速さ」を直接測ることが、重要な焦点になっていくでしょう。遺伝子の働きを「量」だけでなく「配り方」から見る——HEXIMは、その視点の大切さを教えてくれる分子です。転写のアクセルとブレーキがどのように釣り合っているかを知ることは、遺伝子の発現にまつわるさまざまな現象を、より深く理解する助けになるはずです。
よくある質問(FAQ)
Q1. HEXIM(HEXIM1・HEXIM2)とは何ですか?
HEXIMは、7SK RNAという短いRNAと結合することで、転写のアクセル役であるP-TEFb(CDK9とサイクリンTの複合体)を一時的に取り込んで働けない状態に隔離する、RNA依存性の調節タンパク質です。哺乳類にはHEXIM1とHEXIM2という2つの近縁タンパク質があり、たがいに補い合いながら、細胞内で「すぐ使えるP-TEFbの量」を調整しています。名前は、HMBAという分化を促す物質で発現が誘導されるタンパク質として見つかったことに由来します。
Q2. HEXIM1とHEXIM2は何が違うのですか?
HEXIM1(古典的なヒト型は359アミノ酸)とHEXIM2(286アミノ酸)は、別々の遺伝子から作られるパラログ(近縁の仲間)です。中央から末端にかけての7SK/P-TEFbに関わる部分はよく似ていますが、HEXIM2はN末端がかなり短くなっています。どちらも7SKと組んでP-TEFbを抑えることができ、片方が減るともう片方がある程度肩代わりします。ただし、疾患との結びつきはHEXIM1のほうが多く報告されています。
Q3. HEXIMはどうやってP-TEFbを抑えるのですか?
HEXIMは単独ではP-TEFbを強く抑えられません。まず自分どうしがペア(二量体)を組み、7SK RNAの特定の部分に結合することで、隠れていたP-TEFb結合面が現れ、初めてP-TEFbを取り込んで抑える力を得ます。抑えられたP-TEFbは壊されるわけではなく、活性化に必要な部位がリン酸化された「いつでも働ける」状態のまま留め置かれ、必要なときに解き放たれます。
Q4. HEXIMはどんな病気と関係がありますか?
実験的な裏づけがとくに強いのは、乳がん、心臓の発生・心肥大、そしてHIVの転写です。乳がんではHEXIM1が増殖を抑える方向に働き、心臓ではHEXIM1(CLP-1)が発生に必要なことがマウスで示されています。HIVでは、隔離されているP-TEFbの量がウイルスの転写に直結します。神経系や炎症との関連も報告されていますが、これらは現時点では相関や機構の候補という段階です。
Q5. HEXIMは遺伝子検査で調べるものですか?
HEXIMそのものは、日常の遺伝診療で直接検査する対象ではなく、基礎研究が中心の分野です。ただし、転写のアクセル(P-TEFb)とブレーキ(HEXIM–7SK)のバランスという考え方は、遺伝子の働きや発現の異常を理解するうえで役立つ土台になります。遺伝子検査で見つかった変化の意味については、臨床遺伝専門医による遺伝カウンセリングで、中立の立場から一緒に整理していくことができます。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] The 7SK small nuclear RNA inhibits the CDK9/cyclin T1 kinase to control transcription. Nature. 2001. [PubMed 11713532]
- [2] 7SK small nuclear RNA binds to and inhibits the activity of CDK9/cyclin T complexes. Nature. 2001. [PubMed 11713533]
- [3] Inhibition of P-TEFb (CDK9/Cyclin T) kinase and RNA polymerase II transcription by the coordinated actions of HEXIM1 and 7SK snRNA. Mol Cell. 2003. [PubMed 14580347]
- [4] Binding of the 7SK snRNA turns the HEXIM1 protein into a P-TEFb (CDK9/cyclin T) inhibitor. EMBO J. 2004. [PubMed 15201869]
- [5] Interplay between 7SK snRNA and oppositely charged regions in HEXIM1 direct the inhibition of P-TEFb. EMBO J. 2005. [PubMed 16362050]
- [6] HEXIM2, a HEXIM1-related protein, regulates positive transcription elongation factor b through association with 7SK. J Biol Chem. 2005. [PubMed 15713662]
- [7] Compensatory contributions of HEXIM1 and HEXIM2 in maintaining the balance of active and inactive P-TEFb complexes for control of transcription. J Biol Chem. 2005. [PubMed 15713661]
- [8] Analysis of the large inactive P-TEFb complex indicates that it contains one 7SK molecule, a dimer of HEXIM1 or HEXIM2, and two P-TEFb molecules containing Cdk9 phosphorylated at threonine 186. J Biol Chem. 2005. [PubMed 15965233]
- [9] The Yin and Yang of P-TEFb Regulation: Implications for Human Immunodeficiency Virus Gene Expression and Global Control of Cell Growth and Differentiation. Microbiol Mol Biol Rev. 2006. [MMBR 10.1128/MMBR.00011-06]
- [10] Increased HEXIM1 expression during erythroleukemia and neuroblastoma cell differentiation. J Cell Physiol. 2006. [PubMed 16222711]
- [11] HMBA Releases P-TEFb from HEXIM1 and 7SK snRNA via PI3K/Akt and Activates HIV Transcription. PLoS Pathog. 2007. [PubMed 17937499]
- [12] Phosphorylation of HEXIM1 at Tyr271 and Tyr274 Promotes Release of P-TEFb from the 7SK snRNP Complex and Enhances Proviral HIV Gene Expression. Proteomics. 2015. [PubMed 25900325]
- [13] An evolutionary conserved Hexim1 peptide binds to the Cdk9 catalytic site to inhibit P-TEFb. Proc Natl Acad Sci U S A. 2016. [PNAS 10.1073/pnas.1612331113]
- [14] HEXIM1, a New Player in the p53 Pathway. Cancers (Basel). 2013. [PMC3795367]
- [15] HEXIM1 controls P-TEFb processing and regulates drug sensitivity in triple-negative breast cancer. Mol Biol Cell. 2020. [Mol Biol Cell 10.1091/mbc.E19-12-0704]
- [16] HEXIM1 inter-monomer autoinhibition governs 7SK RNA binding specificity and P-TEFb inactivation. Nat Commun. 2026. [PMC12901311]
- [17] HEXIM1/P-TEFb complex controls RNA polymerase II pause release and immediate early gene induction following neuronal depolarization. J Biol Chem. 2026. [PubMed 41759739]






