

目次
- 1 1. HEXIM1とは ─ 転写の「ブレーキ」を握る遺伝子
- 2 2. HEXIM1遺伝子とタンパク質の構造
- 3 3. 7SK RNAがHEXIM1を「ブレーキ」に変える
- 4 4. 2026年の最新モデル ─ 「二量体をまたぐ自己抑制」
- 5 5. CDK9とサイクリンTをどう止めるのか
- 6 6. リン酸化スイッチ ─ 細胞の刺激がブレーキを外す
- 7 7. がんとの関係 ─ 「増えると抑える」が多いが、文脈しだい
- 8 8. 心臓との関係 ─ 病的な肥大と生理的な肥大を分ける
- 9 9. 免疫との関係 ─ 抑える顔と、促す顔
- 10 10. よくある誤解
- 11 まとめ ─ RNAで働き方を切り替える「調節のハブ」
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
遺伝子は、必要なときに必要な分だけ「読み出す」ことで、体の設計図を使い分けています。その読み出し(転写)には、いったん動き出したものを勢いよく最後まで走らせる「アクセル」と、走りすぎないようにかける「ブレーキ」の両方が要ります。HEXIM1(ヘキシム・ワン)遺伝子は、このブレーキ側の中心をなすHEXIM1タンパク質をコードしています。転写のアクセル役であるP-TEFb(ピー・テフ・ビー)という酵素を、7SK snRNAという短いRNAと一緒に捕まえて、必要になるまで待機させておく——それがHEXIM1のいちばんの仕事です。この記事では、HEXIM1がどんな遺伝子で、コードされるHEXIM1タンパク質がどうやってブレーキをかけ、どうやってそれを解除するのか、そしてそのバランスの崩れが、がん・心臓の肥大・免疫という一見バラバラな場面で、なぜ違った顔を見せるのかを解説します。
Q. HEXIM1とはどんな遺伝子ですか?
A. HEXIM1遺伝子は、遺伝子の読み出し(転写)を勢いよく進めるアクセル役の酵素P-TEFb(CDK9とサイクリンT)を、7SKという短いRNAと組んで捕まえ、待機状態にしておく「転写のブレーキ役」として働くHEXIM1タンパク質をコードします[1][2]。細胞が刺激を受けると、このブレーキがゆるんでP-TEFbが解き放たれ、必要な遺伝子の読み出しが一気に進みます。がん・心臓・免疫など、さまざまな場面でこのバランスが働いています。
- ▶正体:17番染色体にある遺伝子で、359個のアミノ酸からなるRNA結合タンパク質をつくります。
- ▶仕事:7SK RNAと組んでP-TEFb(CDK9/サイクリンT)を捕まえ、転写のアクセルを一時停止させます。
- ▶解除:細胞が刺激を受けてHEXIM1がリン酸化されると、ブレーキが外れてP-TEFbが働きだします。
- ▶病気との関係:がんでは「増えると増殖を抑える」側に、心臓や免疫では場面によって逆向きの顔を見せます。
1. HEXIM1とは ─ 転写の「ブレーキ」を握る遺伝子
遺伝子の情報がタンパク質になるまでには、まずDNAの情報をRNAに写し取る「転写」という段階があります。この転写を担うのがRNAポリメラーゼII(RNAPII)という酵素です。近年の研究で、転写は「始まる」ことよりも、始まったあとにどこまで勢いよく走り続けられるか(伸長)のほうが、遺伝子ごとの読み出し量を決める重要な調節点だとわかってきました[4]。多くの遺伝子では、RNAポリメラーゼIIはスタート地点のすぐ先でいったん一時停止(プロモーター近傍でのポーズ)し、ゴーサインを待っています。
このゴーサインを出すのが、P-TEFb(正の転写伸長因子b)という酵素です。P-TEFbは、CDK9という酵素部分とサイクリンTという相棒がペアになったもので、RNAポリメラーゼIIやその周辺のブレーキ因子にリン酸という目印を付けることで、一時停止を解除し、勢いのある伸長(生産的伸長)へと切り替えます[1]。いわば、転写のアクセルを踏むかどうかを決める鍵がP-TEFbなのです。
ここで登場するのがHEXIM1です。細胞の中では、P-TEFbのかなりの割合が、すぐには使えない「待機状態」に隔離されています[1]。その待機状態をつくり出しているのがHEXIM1で、7SK snRNAという短いRNAと一緒にP-TEFbを抱え込み、CDK9の働きを抑えています。つまりHEXIM1は、アクセル役のP-TEFbに対する内因性のブレーキとして働く遺伝子です[1][2]。そして重要なのは、このブレーキが固定ではなく、細胞の状態に応じてかけたり外したりできる可変式である、という点です。
🩺 院長コラム【「ブレーキ役」という言葉の受け止め方】
遺伝子の働きを説明するとき、「アクセル」「ブレーキ」というたとえは理解の助けになります。ただ、ブレーキ役だからといって「弱いほうがよい」「多いほど安心」と単純化することはできません。車と同じで、ブレーキが利かなくなっても、逆に踏みっぱなしでも、どちらも困ります。大切なのは、必要なときに必要なだけ利く「調節」です。
HEXIM1は、まさにこの「調節」を体現する分子です。あとで見るように、がんの場面と心臓の場面では、HEXIM1が増えることの意味がまるで違って見えます。文献を評価する際には、「その分子が多いか少ないか」だけでなく、「どの細胞の、どの状況での話か」をセットで考えることが重要です。
2. HEXIM1遺伝子とタンパク質の構造
HEXIM1遺伝子は、17番染色体の長腕(17q21.31)に位置する、比較的単純な構造の遺伝子です。ここからつくられるタンパク質は359個のアミノ酸からなり、国際的なタンパク質データベースUniProtでは「O94992」という番号で登録されています[2]。もともとは、ヘキサメチレンビスアセトアミド(HMBA)という化合物によって血管平滑筋細胞で誘導される遺伝子として発見され、MAQ1・HIS1などの別名でも呼ばれてきました。
💡 用語解説:isoform(アイソフォーム)とHEXIM2
1つの遺伝子から、部品の組み合わせを変えて複数の種類のタンパク質(アイソフォーム)がつくられることがあります。ただしHEXIM1については、現在の主要データベース上、機能の違う複数のタンパク質が確立しているという根拠は限られています。よく似た名前のHEXIM2は、HEXIM1のアイソフォームではなく、構造と働きが関連する別の遺伝子(パラログ)です。記事では「HEXIM1には多数のアイソフォームがある」とは考えず、単一の代表的なタンパク質を中心に理解します。
HEXIM1タンパク質は、役割の異なるいくつかの領域(ドメイン)を組み合わせた「モジュール構造」として理解すると分かりやすくなります。大まかには、決まった形を持たない柔らかいN末端領域、7SK RNAを認識する塩基性領域(BR/ARM)、CDK9を抑えるのに重要なPYNTモチーフ、そしてサイクリンT1との結合とHEXIM1同士のペア(二量体)形成を担うC末端のコイルドコイル領域からできています[8]。次の図で、一次構造の上での並びを見てみましょう。
N末端側:柔らかく形の定まらない領域。さまざまなタンパク質と相互作用しうる。
塩基性領域(BR/ARM):7SK RNAを認識する「RNAセンサー」。S158というリン酸化部位を含む。
PYNTモチーフ:CDK9の触媒部分に直接触れて阻害する要となる配列。
酸性領域:塩基性領域と静電的に関わり、自己抑制に寄与する。
C末端コイルドコイル:サイクリンT1の認識とHEXIM1同士のペア形成を担う。
構造生物学の研究では、DamesらがHEXIM1のサイクリンT結合ドメインを核磁気共鳴法(NMR)で解析し、この領域が2本の鎖が平行に巻きついたコイルドコイル二量体を形づくること、そしてその表面がサイクリンT1を認識することを示しました[8]。つまりHEXIM1は「サイクリンT1につなぎ止まる係留装置」と「CDK9の触媒部分を抑える阻害装置」を1つの分子に組み合わせて、アクセル役のP-TEFbを抑えているのです。
HEXIM1がどの臓器で使われているかを見ると、ヒトタンパク質アトラス(HPA)などのデータでは「組織特異性が低く、ほぼすべての組織で検出される」と分類されています[2]。特定の臓器専用の因子ではなく、幅広い細胞が共通して使う転写調節のしくみだと考えるのが適切です。なお、HEXIM1の発現量そのものもP-TEFb系と連動しており、活性のあるP-TEFbが増えるとHEXIM1の産生が誘導され、増えたHEXIM1がふたたびP-TEFbを待機状態へ戻す、という負のフィードバックが働きます[5]。ですから、薬剤を投与したあとにHEXIM1が増えていても、それは「最初からHEXIM1が働いていた」こととは限らず、先に起きたP-TEFb放出に対する後追いの反応である場合があります。
3. 7SK RNAがHEXIM1を「ブレーキ」に変える
HEXIM1の働きで最も大切なのは、HEXIM1は単独ではブレーキになれないという点です。2003年のYikらの研究は、HEXIM1と7SK snRNAが協調してはじめてP-TEFb(CDK9/サイクリンT)とRNAポリメラーゼIIの働きを抑えられること、そしてHEXIM1が単独では十分な阻害活性を示さないことを明らかにしました[1]。翌2004年のMichelsらの研究は、精製した部品を試験管内で組み合わせる実験で、7SK RNAが結合することによってHEXIM1がP-TEFb阻害因子へと変換されることを直接検証しました[2]。つまり7SK RNAは、HEXIM1を「オフ状態」から「ブレーキが利く状態」へ切り替えるスイッチなのです。
💡 用語解説:7SK snRNPという複合体
7SK snRNPとは、7SKという短いRNAを土台にした、RNAとタンパク質の複合体です。土台の安定した部分にはLARP7、MePCEというタンパク質が含まれ、そこにHEXIM1とP-TEFbがより動的に出入りします。7SK RNA自体も1つの決まった形ではなく、複数の立体構造を取り得ることがわかっており、単なる「HEXIM1の足場」ではなく、P-TEFbを隔離するか放出するかを左右する調節役のRNAとして理解が進んでいます。
この一連の流れを、状態の移り変わりとして図にすると理解しやすくなります。左から右へ、「待機状態のHEXIM1」→「7SKと結合して活性化」→「P-TEFbを隔離してブレーキON」という順に進みます。
HEXIM1二量体RNAなしでは待機
して活性化結合面が露出
CDK9活性オフ転写のブレーキON
逆に、細胞が刺激を受けると、この複合体が組み替わって活性のあるP-TEFbが解き放たれ、RNAポリメラーゼIIやブレーキ因子(DSIF・NELF)がリン酸化されて、勢いのある転写伸長が進みます[1]。この「解き放たれたP-TEFb」と「HEXIM1・7SKに隔離されたP-TEFb」の間のバランスは固定されておらず、細胞の刺激・ストレス・代謝状態に応じて刻々と変化します。ブレーキとアクセルの綱引きが、遺伝子の読み出し量をきめ細かく決めているのです。
4. 2026年の最新モデル ─ 「二量体をまたぐ自己抑制」
HEXIM1がどうやって「RNAがないときは待機し、RNAが来たら働く」を実現しているのか。この仕組みは長らく謎でしたが、初期の研究では、HEXIM1の塩基性領域と隣の酸性領域が静電的に引き合って自分自身をふさぎ(自己抑制)、7SKが塩基性領域に結合するとその封印が解ける、と考えられてきました[2]。また、C末端のコイルドコイルを壊すとHEXIM1が集合できなくなり阻害も損なわれることから、HEXIM1同士がペアを組むこと(二量体化)そのものが重要だとわかっていました。
この理解を大きく精密化したのが、2026年のYangらの研究です[3]。核磁気共鳴法(NMR)や熱量測定などの生物物理学的な手法を用いて、著者らは次のようなモデルを示しました。HEXIM1のペア(二量体)では、一方の分子の塩基性領域が、もう一方の分子のPYNT/酸性領域と手を結ぶ「二量体をまたぐ頭尾型の自己抑制」が形づくられている、というのです。この状態ではCDK9に触れるためのPYNTが隠されていて、うっかりP-TEFbを止めてしまうことが防がれています。
💡 何が新しくなったのか
従来は「1分子の中で塩基性領域と酸性領域が閉じている」と考えられていました。新しいモデルでは、その封印は主にHEXIM1の2分子をまたいで成立していて、特定の形をした7SK RNA(直線型)の2か所の高親和性部位に協調して結合することで解除される、と更新されました[3]。旧モデルが「まったくの誤り」だったというより、より高次の二量体レベルの仕組みへと描き直された、と受け止めるのが正確です。
興味深いのは、この自己抑制が単なる「ブレーキの二重掛け」ではなく、相手を選ぶための工夫でもあるという点です。Yangらは、自己抑制があることで、HEXIM1が直線型の7SKを、別の形(環状型)よりも選んで結合できるようになること、そして無関係なRNAに捕まって動けなくなるのを防ぎ、本来の標的である7SKを効率よく探せるようになることを示しました[3]。つまり自己抑制は、正しい相手にだけ確実に反応するための「安全装置」として働いているのです。この最新モデルは、2003〜2016年に積み上げられた古典的な生化学・構造研究と矛盾せず、それらを一段深いレベルで統合するものだといえます。
5. CDK9とサイクリンTをどう止めるのか
HEXIM1がP-TEFbを止める仕組みは、大きく2つの接点に分けて理解できます。1つはサイクリンT1側、もう1つはCDK9側です。
サイクリンT1側については、先ほど触れたDamesらのNMR構造が、HEXIM1のC末端が平行なコイルドコイル二量体を形づくり、その第一のコイルドコイル面を中心にサイクリンT1を認識することを示しました[8]。ここはいわば、HEXIM1がP-TEFbをつかんで引き寄せる「係留」の部分です。
CDK9側については、2016年のKobbiらが決め手となる証拠を示しました。彼らは、光で反応するアミノ酸をタンパク質に組み込む手法(架橋質量分析など)を使い、HEXIM1の保存されたPYNT配列がCDK9の活性化セグメント(触媒部位への入り口を制御する部分)に直接触れることを、生きた細胞・細胞抽出物・試験管内の複合体のいずれでも示したのです[7]。これにより、HEXIM1が基質の結合を邪魔することでCDK9のリン酸化活性を抑える、という具体的な仕組みが見えてきました。
つまりHEXIM1は、単にサイクリンTを「捕まえてP-TEFbを隔離する」だけでなく、CDK9の触媒装置そのものに直接干渉するという、二段構えの抑え込みを行っているのです。2026年の自己抑制モデルと合わせると、「自己抑制状態 → 直線型7SKへの協調結合 → サイクリンT1結合とPYNTによるCDK9阻害」という2状態のスイッチとして、20年以上にわたる複数の研究を1つの機構に統合して描くことができます。
6. リン酸化スイッチ ─ 細胞の刺激がブレーキを外す
HEXIM1のブレーキを外す最も直接的な仕組みが、リン酸化(タンパク質にリン酸という目印を付ける修飾)です。重要なのは、HEXIM1のリン酸化が場所によって違う意味を持つことです。大きく2つのグループに分けて理解すると、混乱せずに済みます。
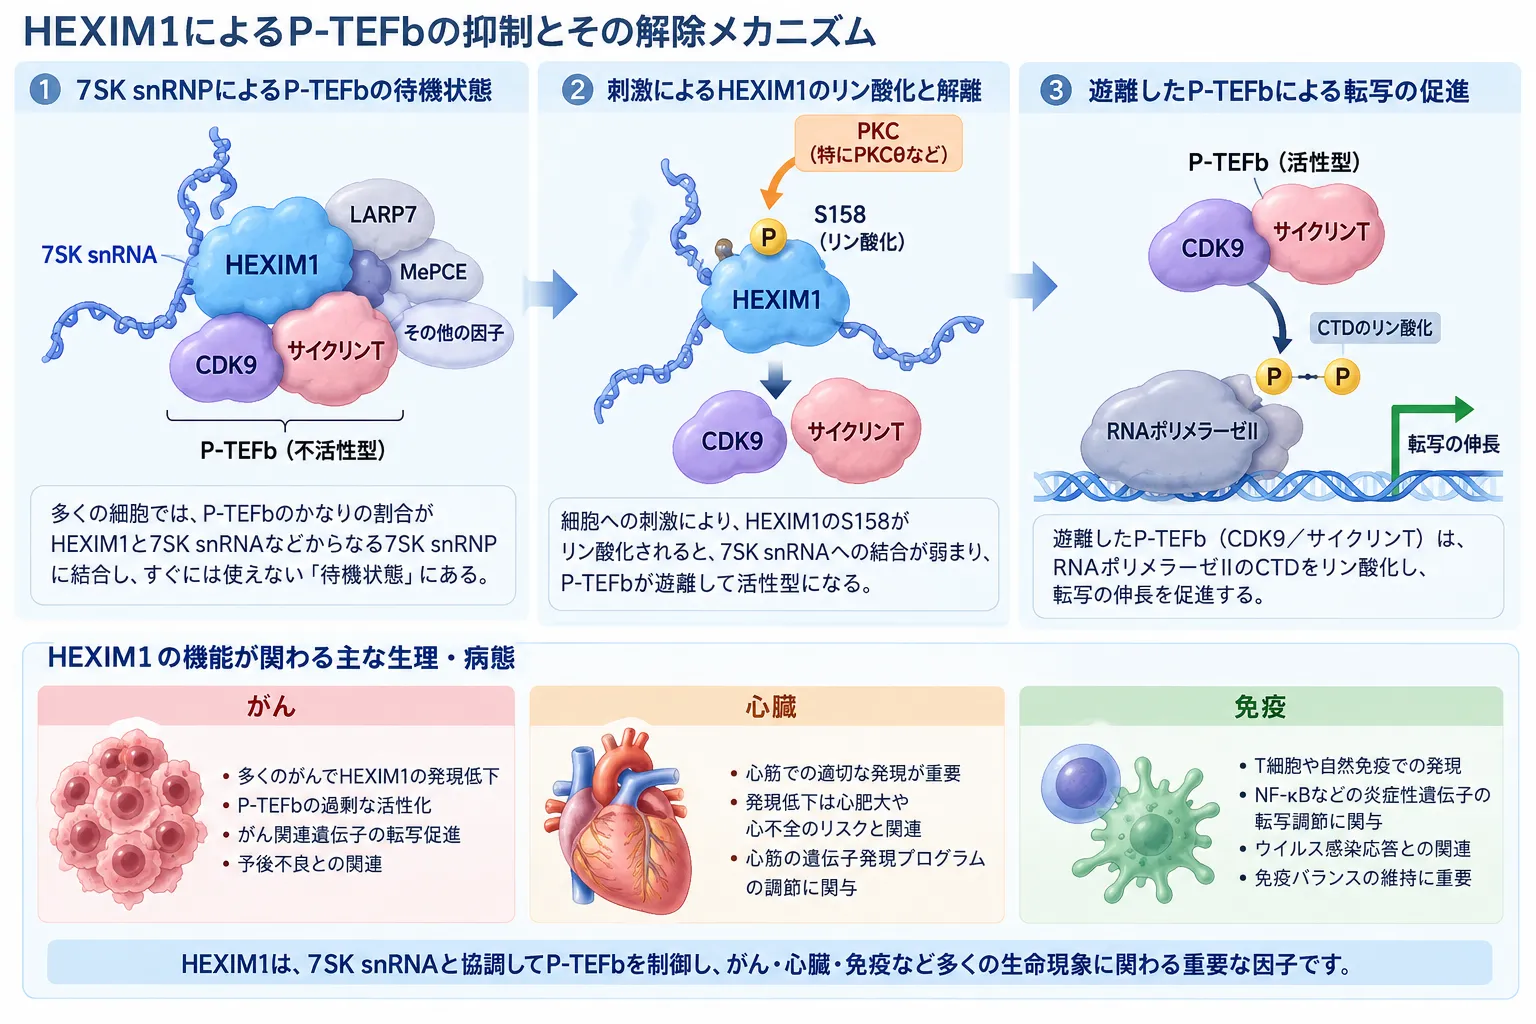
HEXIM1は7SK snRNAと協調してP-TEFb(CDK9/サイクリンT)を7SK snRNPに隔離し、転写伸長を抑制します。細胞刺激によりHEXIM1のS158がリン酸化されると7SK snRNAとの結合が弱まり、P-TEFbが放出されます。遊離したP-TEFbはRNAポリメラーゼIIなどをリン酸化して生産的な転写伸長を促進します。HEXIM1はこの転写制御に加え、がん、心臓、免疫などさまざまな生理・病態との関連が研究されています。
① S158のリン酸化 ─ 「7SK RNAとの結合」を切る
2012年のFujinagaらは、プロテインキナーゼC(PKC)、とくにT細胞のシグナルに関わるPKCθが、HEXIM1の158番目のセリン(S158)をリン酸化することを示しました[4]。このS158は7SK RNAとの結合に関わる塩基性領域の中心にあり、ここがリン酸化されると、HEXIM1は7SK RNAに結合できなくなり、P-TEFbを抑えられなくなります[4]。実際に、T細胞受容体を刺激したり、活性型のPKCθを発現させたりすると、P-TEFbのバランスが「解き放たれる側」へ動きました。これは「細胞への刺激 → キナーゼ → HEXIM1のリン酸化 → 7SKからの解放」という、シグナルが転写伸長へつながる最も明快な経路の1つです。
② T270/S278のリン酸化 ─ 「P-TEFbとの結合」を弱める
2007年のContrerasらは、細胞分化を促す化合物HMBAがPI3K/Akt経路を一過性に活性化し、それに伴ってHEXIM1のT270/S278(270番目のトレオニンと278番目のセリン)付近がリン酸化され、HEXIM1とP-TEFbの結合が弱まり、P-TEFbが解き放たれることを示しました[5]。この部位はサイクリンTとの結合面の近くにあり、リン酸化がブレーキの「つかむ力」を弱めると考えられます。
💡 用語解説:ここは慎重に読む必要があります
Contrerasらのデータは「Akt経路の活性化に依存してT270/S278がリン酸化される」ことを強く支持しますが、Aktがこの2つの残基を直接リン酸化するとまでは断定していません。ですのでこの記事でも「PI3K/Akt依存的にT270/S278リン酸化が誘導される」という言い方にとどめ、「AktがHEXIM1を直接リン酸化する」とは書きません。証拠のある部分と、まだ推測にとどまる部分を分けて理解することが、正確さのために大切です。
さらに、2015年のMbonyeらは、HEXIM1のTyr271/Tyr274(271番目・274番目のチロシン)のリン酸化が、HEXIM1とP-TEFb/7SK複合体を不安定にすることを報告しました[6]。これらの残基もサイクリンT結合領域の近くに集まっており、C末端付近が、複数のキナーゼからのシグナルを「P-TEFbの放出」へと変換する調節のホットスポットになっていることを示唆します。
これらを整理すると、HEXIM1のリン酸化は「常に同じ結果になる」のではなく、RNAとの結合面を切るタイプ(S158)と、P-TEFbとの結合面を切るタイプ(T270/S278、Y271/Y274)とが、分子の上で場所的に役割分担している、と理解できます。次の表に、主なリン酸化とその意味をまとめます。
📊 HEXIM1の主なリン酸化と、その働き
※いずれもHEXIM1のリン酸化が「ブレーキをゆるめる」方向に働く点は共通ですが、切る場所(RNA結合面か、P-TEFb結合面か)が異なります。
7. がんとの関係 ─ 「増えると抑える」が多いが、文脈しだい
がんの場面では、HEXIM1は腫瘍を抑える側(腫瘍抑制的)に働く証拠が比較的しっかりしています。ただし、その働き方は「常に同じ」ではなく、がんの種類や細胞の状態に依存します。
乳がん ─ エストロゲン受容体と転写伸長の接点
乳腺では、HEXIM1はもともとエストロゲンによる増殖制御との関連で研究されてきました。Ogbaらは、HEXIM1が増えると、17β-エストラジオール刺激下でのエストロゲン受容体α(ERα)/P-TEFb依存の転写や、サイクリンD1などの遺伝子の発現が低下することを示しました[9]。HEXIM1がサイクリンT1をめぐってERαと競合することで、ホルモン受容体のシグナルと転写伸長の接点になっている、というわけです。
さらにKetchartらは、エストロゲン受容体陽性の乳がんで、HEXIM1がタモキシフェン(抗エストロゲン薬)の効き方を左右することを示しました。タモキシフェンはHEXIM1を標的遺伝子のプロモーターに呼び寄せ、サイクリンT1やリン酸化RNAポリメラーゼIIの動員を減らします。逆にHEXIM1を減らすと、タモキシフェンによる抑制効果が弱まりました[10]。臨床検体の解析でも、HEXIM1が低い患者では、タモキシフェン治療後の再発との関連が報告されています[10]。
トリプルネガティブ乳がん・分化の制御
ホルモン受容体を持たないトリプルネガティブ乳がん(TNBC)でも、HEXIM1とP-TEFbのバランスの変化が報告されています。ある研究では、HEXIM1がP-TEFbの成熟過程と薬剤感受性を制御し、HEXIM1が低下したTNBC細胞ではHsp90阻害薬に対する感受性が変わることが示されました[11]。また、ヒストン脱メチル化酵素KDM5Bを阻害するとHEXIM1が誘導され、それが乳がん細胞の分化・増殖抑制に必要である、という独立した研究もあります[17]。「HEXIM1が増える → P-TEFb制御・細胞状態の変換」という軸は、複数の乳がんモデルで再現されています。
メラノーマ ─ 代謝ストレスを転写に橋渡しする
仕組みの面でとくに明快なのが、2016年のTanらによるメラノーマ(悪性黒色腫)の研究です。ヌクレオチド(DNAやRNAの材料)が枯渇するストレスに応答してHEXIM1が誘導され、メラノーマ細胞の生存や腫瘍の増殖を抑えることが、培養細胞やゼブラフィッシュを用いた実験で示されました[12]。メラノーマではHEXIM1の発現がもともと低く、これを増やすと腫瘍形成が抑えられ、逆に働かなくすると腫瘍の発生が早まりました[12]。これは、HEXIM1を代謝ストレスを転写制御に結びつける腫瘍抑制因子として位置づける研究です。
以上をまとめると、がんにおけるHEXIM1は「一律の腫瘍抑制遺伝子」というより、P-TEFb依存の増殖性転写、ホルモン受容体シグナル、代謝ストレス応答、分化プログラムを、状況に応じて抑えたり配線し直したりする、文脈依存的な腫瘍抑制側の調節因子と表現するのが、最も証拠に忠実です。なおHEXIM1そのものは基礎研究が中心の分野で、日常の診療で直接検査する対象ではありません。ここでは「遺伝子の働きをどう読み解くか」という理解の土台として紹介しています。
8. 心臓との関係 ─ 病的な肥大と生理的な肥大を分ける
心臓の話は、HEXIM1の「多いほどよい/少ないほどよい」という単純化がいかに危ういかを、はっきり示してくれます。心筋では、P-TEFbの活性化そのものが心臓の肥大(心肥大)と密接に結びついています。
まず病的な肥大の側から見てみましょう。Espinoza-Deroutらは、カルシニューリンによって駆動される肥大心で、マウスのHEXIM1(CLP-1)とP-TEFbの結びつきが低下していることを示しました。サイクリンT1の増加とHEXIM1の量的な不足が重なると、CDK9の活性やRNAポリメラーゼIIのリン酸化が増え、肥大が起こりやすくなります。つまり、HEXIM1からのP-TEFb解放は、病的な肥大シグナルの1つの経路なのです。また、HEXIM1に変異が生じると、心臓・血管の形成異常や胎生期の致死をもたらし、VEGFの調節も損なわれることから、HEXIM1は成体心筋だけでなく心血管の発生そのものにも必要だとわかっています。
ところが逆説的に、2013年のMontanoらは、成体の心筋細胞でHEXIM1を胎児期のレベルまで再発現させると、血管新生を伴う「生理的な」心肥大が起こることを示しました[13]。この生理的肥大では、血管の新生、心筋の成長、心機能(駆出率)の改善がみられました。著者らは、HEXIM1がHIF-1α・c-Myc・GATA4・PPAR-αといった他の転写因子の調節を通じて、組織の成長と血管新生を協調させている可能性を挙げています[13]。さらにYoshikawaらは、心筋特異的にHEXIM1を過剰発現させると、慢性低酸素による肺高血圧モデルで右室肥大が抑えられることを示しました[14]。
💡 一見矛盾する結果をどう整理するか
「HEXIM1は心肥大を抑える」と一文でまとめると不正確になります。整理すると、病的な刺激 → P-TEFbの過剰な活性化 → 病的肥大という流れに対してはHEXIM1が抑制的に働き、一方で適切なHEXIM1の発現 → 血管新生や代謝を含む発生様プログラムの再編 → 生理的肥大という別の流れも存在します[13]。後者には、P-TEFbの阻害だけでは説明できないHEXIM1の多機能性が関わっている可能性が高いのです。
9. 免疫との関係 ─ 抑える顔と、促す顔
免疫の場面では、HEXIM1は2つの向きの異なる働きを持ちます。一見矛盾して見えますが、働く複合体が別物なので、じつは両立します。
① 炎症性の転写を「抑える」顔
1つめは、P-TEFbとNF-κBを介した炎症性転写の抑制です。2003年のOuchidaらは、血管平滑筋細胞でHEXIM1がNF-κBのp65と相互作用し、NF-κB依存の遺伝子発現を抑えることを示しました[15]。P-TEFbはNF-κBによる勢いのある転写にも必要なので、HEXIM1によるP-TEFbの隔離とNF-κBへの直接作用が、炎症性の転写を抑える方向に働くと考えられます。
② DNAへの自然免疫を「促す」顔
2つめは、まったく逆向きの働きです。2017年のMorchikhらは、HEXIM1と長鎖ノンコーディングRNAであるNEAT1、そしてDNA感知に関わる因子からなるHDP-RNPという複合体を発見しました[16]。この複合体では、HEXIM1がNEAT1に結合することが組み立ての前提になっており、細胞内に外来のDNA(ウイルスなど)が入ると、cGAS-STING-IRF3という自然免疫の経路を通じてインターフェロンの産生を促します[16]。これは古典的な7SK-P-TEFb阻害では説明できない、HEXIM1のもう1つの顔です。
まとめると、HEXIM1は炎症を一方向に抑えるだけの因子ではありません。NF-κB/P-TEFb依存の炎症性転写にはブレーキをかける一方、NEAT1依存のDNA感知では自然免疫応答を促進できるのです。働くRNA-タンパク質複合体(7SK系か、NEAT1系か)が違うため、この2つは必ずしも矛盾しません。こうした性質から、HEXIM1は「普遍的な転写抑制因子」というより、RNA・リン酸化・細胞の状態によって複数の複合体を切り替える「ハブ(結節点)」として理解するのが最も整合的です。
10. よくある誤解
誤解①「HEXIM1は単独でブレーキになる」
HEXIM1は単独ではP-TEFbを十分に抑えられません。7SK RNAが結合してはじめてブレーキが利く状態に変わります[1][2]。RNAとタンパク質が組んではじめて働く点が、この分子の大きな特徴です。
誤解②「HEXIM1には多くのアイソフォームがある」
主要データベース上、機能の違う複数のタンパク質が確立している根拠は限られています。名前が似たHEXIM2はアイソフォームではなく別遺伝子(パラログ)です[2]。
まとめ ─ RNAで働き方を切り替える「調節のハブ」
HEXIM1遺伝子は、転写のアクセル役であるP-TEFb(CDK9/サイクリンT)に対する内因性のブレーキとして7SK snRNAと組んで働くHEXIM1タンパク質をコードします[1][2]。2026年に更新された最新モデルでは、HEXIM1はペア(二量体)をまたぐ形で自分自身を抑えておき、直線型の7SK RNAの2か所に協調して結合することでその封印を解き、CDK9への阻害面を露出させることがわかってきました[3]。そしてS158・T270/S278・Y271/Y274などのリン酸化が、RNA結合面やP-TEFb結合面を切ることで、細胞の刺激を転写伸長へと変換します[4][5][6]。
その破綻が病気で見せる顔は一様ではありません。がんでは腫瘍抑制側に働くことが多く[12]、心臓では病的肥大を抑えつつ、適切な再発現では生理的肥大を促し[13]、免疫ではNF-κBによる炎症性転写を抑える一方でNEAT1を介したDNA感知は促進します[15][16]。こうしてHEXIM1は、RNA・リン酸化・細胞の状態に応じて複数の転写・免疫複合体を切り替える「調節のハブ」として、生命の情報の読み出しを細やかに整えています。遺伝子の働きを、量の多い少ないだけでなく「どんな複合体で、どんな状況か」まで含めて読み解くことの大切さを、HEXIM1はよく教えてくれます。
よくある質問(FAQ)
Q1. HEXIM1とは何ですか?
HEXIM1(ヘキシム・ワン)は、17番染色体にある遺伝子で、359個のアミノ酸からなるRNA結合タンパク質をコードします。このHEXIM1タンパク質は、遺伝子の読み出し(転写)を勢いよく進めるアクセル役の酵素P-TEFb(CDK9とサイクリンT)を、7SKという短いRNAと一緒に捕まえて待機状態にしておく、いわば「転写のブレーキ役」です。細胞が刺激を受けるとこのブレーキがゆるみ、必要な遺伝子の読み出しが進みます。
Q2. HEXIM1は単独で働けるのですか?
いいえ。HEXIM1は単独ではP-TEFbを十分に抑えられません。7SK RNAが結合してはじめて、P-TEFbを抑えられる「ブレーキが利く状態」に変わります。RNAとタンパク質が組んではじめて機能する点が、この分子の大きな特徴です。2026年の研究では、HEXIM1のペアが直線型の7SK RNAの2か所に協調して結合することで、隠れていたCDK9への阻害面が露出する仕組みが示されています。
Q3. HEXIM1が増えると、がんは抑えられるのですか?
多くのがんでは、HEXIM1が増えると腫瘍を抑える側に働くという実験的な証拠があります。乳がんではエストロゲン受容体を介した増殖性の転写を抑え、メラノーマではヌクレオチド枯渇ストレスに応じて誘導され腫瘍を抑えます。ただし「常にそうなる」わけではなく、がんの種類や細胞の状態に依存します。またHEXIM1そのものは基礎研究が中心の分野で、日常の診療で直接検査する対象ではありません。
Q4. HEXIM1は心臓の肥大を抑えるのですか、促すのですか?
どちらの側面もあります。カルシニューリンなどによる病的な心肥大では、HEXIM1からP-TEFbが解放されることが肥大シグナルの一経路になります。一方で、成体の心筋でHEXIM1を適切に再発現させると、血管新生を伴う「生理的な」心肥大が起こることも報告されています。ですから「抑える/促す」と一言でまとめるのは不正確で、どの刺激で、どのような状況かによって意味が変わります。
Q5. HEXIM1は免疫では抑制と促進のどちらに働きますか?
両方です。NF-κBを介した炎症性の転写に対してはブレーキをかける一方、長鎖ノンコーディングRNAのNEAT1と組んでHDP-RNPという複合体をつくると、外来DNAに対する自然免疫(cGAS-STING経路を介したインターフェロン産生)を促進します。働くRNA-タンパク質複合体が異なるため、この2つの向きは矛盾しません。HEXIM1は状況に応じて複数の複合体を切り替える「ハブ」として理解されています。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お調べの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Inhibition of P-TEFb (CDK9/Cyclin T) kinase and RNA polymerase II transcription by the coordinated actions of HEXIM1 and 7SK snRNA. Mol Cell. 2003. [PubMed 14580347]
- [2] Binding of the 7SK snRNA turns the HEXIM1 protein into a P-TEFb (CDK9/cyclin T) inhibitor. EMBO J. 2004. [EMBO J]
- [3] HEXIM1 inter-monomer autoinhibition governs 7SK RNA binding specificity and P-TEFb inactivation. Nat Commun. 2026. [PMC12901311]
- [4] PKC phosphorylates HEXIM1 and regulates P-TEFb activity. Nucleic Acids Res. 2012. [PMC3467075]
- [5] HMBA releases P-TEFb from HEXIM1 and 7SK snRNA via PI3K/Akt and activates HIV transcription. PLoS Pathog. 2007. [PLoS Pathogens]
- [6] Phosphorylation of HEXIM1 at Tyr271 and Tyr274 promotes release of P-TEFb from the 7SK snRNP complex and enhances proviral HIV gene expression. Proteomics. 2015. [PMC4487608]
- [7] An evolutionary conserved Hexim1 peptide binds to the Cdk9 catalytic site to inhibit P-TEFb. Proc Natl Acad Sci U S A. 2016. [PMC5111705]
- [8] Structure of the Cyclin T binding domain of Hexim1 and molecular basis for its recognition of P-TEFb. Proc Natl Acad Sci U S A. 2007. [PMC1955226]
- [9] HEXIM1 regulates 17beta-estradiol/estrogen receptor-alpha-mediated expression of cyclin D1 in mammary cells via modulation of P-TEFb. Cancer Res. 2008. [PubMed 18757415]
- [10] HEXIM1 is a critical determinant of the response to tamoxifen. Oncogene. 2011. [PubMed 21423213]
- [11] HEXIM1 controls P-TEFb processing and regulates drug sensitivity in triple-negative breast cancer. Mol Biol Cell. [PMC7525814]
- [12] Stress from nucleotide depletion activates the transcriptional regulator HEXIM1 to suppress melanoma. Mol Cell. 2016. [PMC4836061]
- [13] Inducible re-expression of HEXIM1 causes physiological cardiac hypertrophy in the adult mouse. Cardiovasc Res. 2013. [PubMed 23585471]
- [14] Cardiomyocyte-specific overexpression of HEXIM1 prevents right ventricular hypertrophy in hypoxia-induced pulmonary hypertension in mice. PLoS One. [PMC3534105]
- [15] Suppression of NF-kappaB-dependent gene expression by a hexamethylene bisacetamide-inducible protein HEXIM1 in human vascular smooth muscle cells. Genes Cells. 2003. [PubMed 12581153]
- [16] HEXIM1 and NEAT1 long non-coding RNA form a multi-subunit complex that regulates DNA-mediated innate immune response. Mol Cell. 2017. [PubMed 28712728]
- [17] Inhibition of the histone demethylase, KDM5B, directly induces re-expression of tumor suppressor protein HEXIM1 in cancer cells. Breast Cancer Res. 2019. [PMC6896798]






