

目次
- 1 1. 軸索誘導とは ─ 神経の「配線」を導くしくみ
- 2 2. 成長円錐 ─ 進む方向を決める「探索の手」
- 3 3. 4大ガイダンス分子 ─ 引き寄せと押し返しの道しるべ
- 4 4. 正中線の交差 ─ 引き寄せから押し返しへの見事な切り替え
- 5 5. 視覚系の地図づくり ─ 化学親和性説とEphrinの勾配
- 6 6. 成長円錐の自律性 ─ その場でタンパク質をつくる
- 7 7. 力を感じるPiezo1 ─ 硬さを読み取る機械センサー
- 8 8. 軸索誘導と関連する遺伝性疾患
- 9 9. 再生医療と最新研究 ─ 発生の道しるべを治療に活かす
- 10 10. よくある誤解
- 11 まとめ ─ 軸索誘導という「配線の科学」
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
ヒトの脳には、1000億ともいわれる神経細胞(ニューロン)が集まり、たがいに正確につながって回路をつくっています。その配線は、生まれる前の脳の中で、1本1本の神経線維(軸索)が数ミリから数センチもの距離を旅して、正しい相手を探し当てることで完成します。この「神経の配線」を導くしくみが軸索誘導(アクソンガイダンス)です。軸索の先端にある成長円錐(せいちょうえんすい)が、まわりの環境から出る道しるべを読み取りながら進む道を決めていきます。この記事では、軸索誘導とは何か、どんな分子が道案内をしているのか、そしてROBO3やDCCといった遺伝子の変化が引き起こす遺伝性疾患や、脊髄損傷の再生医療との関わりまでを、遺伝医学の視点から解説します。
Q. 軸索誘導とは何ですか?まず結論だけ知りたいです
A. 軸索誘導(アクソンガイダンス)とは、発生中の神経細胞から伸びる軸索が、正しい相手の細胞へたどり着くために、まわりの「道しるべ分子」を読み取りながら進む方向を決めていくしくみのことです。軸索の先端にある成長円錐が、誘引(引き寄せ)と反発(押し返し)という2種類の合図を読み分け、進んだり向きを変えたりします。同じ分子でも、成長円錐がどんな受け皿(受容体)を持っているかによって、引き寄せにも押し返しにも働くのが大きな特徴です。この配線がうまくいかないと、ROBO3やDCCの変化による遺伝性疾患のように、神経回路に異常が生じることがあります。
- ➤主役 → 軸索の先端にある運動性の高い構造「成長円錐」が進路を決める
- ➤道しるべ → Netrin・Slit・Semaphorin・Ephrinという4大ファミリーが誘引と反発を伝える
- ➤文脈しだい → 同じ分子でも受容体の組み合わせで「引き寄せ」にも「押し返し」にもなる
- ➤疾患とのつながり → ROBO3変異は水平注視麻痺と側弯症、DCC変異は先天性鏡像運動などの原因になる
- ➤医療への応用 → 発生期の反発分子は、成人の脊髄損傷では再生を妨げる標的として研究が進む
🧬 軸索誘導の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | じくさくゆうどう/アクソンガイダンス(axon guidance)。軸索の道さがしを意味する「軸索パスファインディング(axon pathfinding)」とも呼ばれます |
| 意味 | 発生中の軸索が、まわりの道しるべ分子(ガイダンスキュー)を読み取りながら、正しい標的まで進路を決めていくしくみ |
| 進路を決める場所 | 軸索の先端にある成長円錐。手のひらのような形をした、動きの速い探索構造 |
| 主な道しるべ分子 | Netrin(ネトリン)、Slit(スリット)、Semaphorin(セマフォリン)、Ephrin(エフリン)の4大ファミリー[9] |
| 医療との関わり | 神経回路のつくられ方を知る基礎であり、ROBO3・DCCなどの遺伝性疾患や、脊髄損傷の再生医療とも深く関わります |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. 軸索誘導とは ─ 神経の「配線」を導くしくみ
神経細胞(ニューロン)は、細胞体から一本の長い突起である軸索を伸ばし、その先で別の神経細胞や筋肉とつながって信号をやり取りします。問題は、その相手が細胞体からとても遠い場所にいることです。たとえば目の網膜から脳へ伸びる軸索は、数ミリメートルからときにセンチメートル単位の距離を旅していきます。この長い道のりを、軸索が迷わず正確にたどることを可能にしているのが軸索誘導です。この配線がうまくいくかどうかは、脳の発達や、生まれつきの神経の病気の成り立ちに直結します。
軸索が進む姿を初めて生きたまま観察したのは、1910年のロス・ハリスン(Ross G. Harrison)でした。彼はカエルの胚の組織を体の外で培養する方法を編み出し、神経線維が自分自身の力で組織の中を前へ前へと押し進んでいく様子を記録しました[1]。それ以前にサンティアゴ・ラモン・イ・カハール(Ramón y Cajal)は、固定した標本のスケッチから、軸索の先端に円錐形のふくらみがあり、まるでアメーバのように動くらしいと見抜いていました。ハリスンの培養実験は、神経線維が生体外でも自律的に伸長することを直接観察し、軸索伸長の動的な性質を実験的に示しました[1]。
カハールは、軸索が決まった道を進んでいるときは単純な形をしているのに、進む方向を選ばなければならない「分かれ道」に来ると、先端が大きく広がって複雑な形に変わることに気づいていました。この特別な先端構造こそが成長円錐です。成長円錐は、まわりの環境をたえず探りながら、どちらへ進むかを自分で決めていく、いわば軸索の「先導役」です。
💡 用語解説:軸索(じくさく)と成長円錐(せいちょうえんすい)
ニューロンは、信号を受け取る「樹状突起(じゅじょうとっき)」、信号を送り出す一本の長い「軸索(じくさく)」、そして先端で相手とつながる「シナプス」からできています。発生中の軸索の先端には、成長円錐という手のひら状の構造があります。ここから「フィロポディア」と呼ばれる指のような細い突起がいくつも伸びたり縮んだりして、まわりの道しるべ分子を感じ取り、進む方向を決めています。
2. 成長円錐 ─ 進む方向を決める「探索の手」
成長円錐は、細胞外の環境を探り、進む向きを決め、その方向へ軸索を引っ張っていく、とても動きの速い構造です。先端にはシート状に広がった「ラメリポディア」があり、そこから細長い指のような「フィロポディア」がいくつも突き出しては引っ込む、という動きをくり返しています。この手探りするような動きで、まわりに漂う道しるべ分子や、足場となる相手の細胞をたえず感じ取っています。
この探索運動を支えているのが、細胞の骨組みである細胞骨格のすばやい組み替えです。とくに、繊維状のタンパク質であるアクチンと、レール状の管である微小管(びしょうかん)が中心的な役割を担います[2]。フィロポディアやラメリポディアの中でアクチンの繊維が伸び縮みし、軸索の本体から入り込んでくる微小管とやり取りすることで、成長円錐は形を変えたり前進したりします。微小管は先端で扇のように広がったり、途中で断片化したりしながら、軸索が枝分かれ(側枝の形成)したり方向を変えたりするのを支えています[2]。
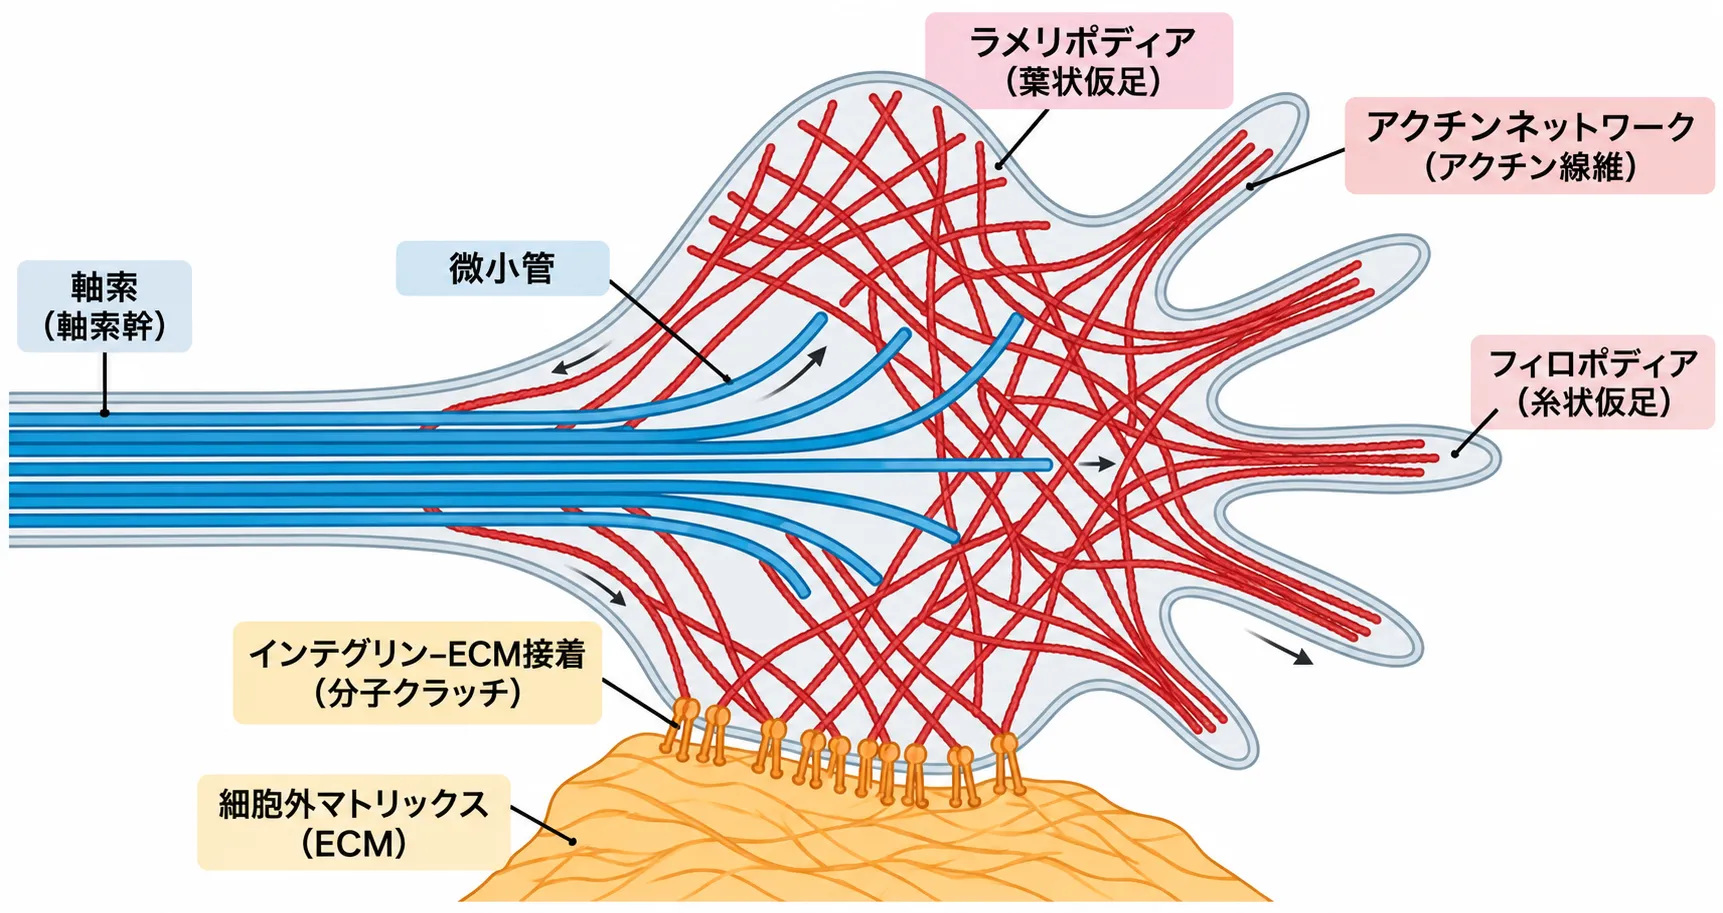
成長円錐の内部構造。軸索(軸索幹)から伸びる微小管(青)が先端へ入り込み、アクチン線維(赤)がシート状のラメリポディア(葉状仮足)と指状のフィロポディア(糸状仮足)をつくって周囲を探索します。先端下面ではインテグリンが細胞外マトリックス(ECM)に接着して分子クラッチを形成し、アクチンの後方への流れを前進する力へと変換します。
💡 用語解説:分子クラッチ(molecular clutch)
成長円錐が前へ進むしくみは、車のクラッチにたとえて「分子クラッチ」と呼ばれます。成長円錐の中ではアクチンが後ろ向きに流れ続けていますが、これだけでは前に進めません。細胞が足場(細胞外基質)に接着し、その接着分子が細胞骨格とつながって「クラッチ」がつながると、後ろ向きの流れが前進する力へと変換されます。この接着とクラッチのオン・オフによって、成長円錐はまわりの硬さや張り具合を、進む力に変えているのです。
成長円錐は、単純に「止まれ」「進め」という二択の合図で導かれているわけではありません。道の途中のあらゆる場所で、引き寄せる合図と押し返す合図、そして足場の物理的な性質を同時に受け取り、それらをまとめて計算しながら、自分の進む道を刻々と決めていきます。いわば、軸索の先端に置かれた小さな自律ナビゲーション装置のような存在です。カルシウムの信号や、CaMKII(カルシウム・カルモジュリン依存性プロテインキナーゼII)などの酵素も、この細胞骨格の組み替えに深く関わっています[2]。
🩺 院長コラム【100年以上前の観察が、いまの遺伝子診断につながる】
ハリスンやカハールが顕微鏡で軸索の先端を眺めていた時代には、そこに関わる遺伝子の名前など一つもわかっていませんでした。それでも彼らは、成長円錐が「分かれ道」で形を変えることを正確に見抜いていました。いまでは、その分かれ道での判断に関わる遺伝子が次々と特定され、その変化が特定の神経疾患を引き起こすことまでわかっています。
現在の医学的知見では、こうした基礎研究の積み重ねが、遺伝子検査結果を読み解く土台になっています。ある遺伝子の変化が体にどう影響しうるかを考えるとき、その遺伝子が発生のどの場面で働くのかを知ることは、大きな手がかりになります。
3. 4大ガイダンス分子 ─ 引き寄せと押し返しの道しるべ
成長円錐が読み取る道しるべ(ガイダンスキュー)は、大きく2種類に分けられます。ひとつは遠くまで漂って届く「分泌型」の分子で、引き寄せたり押し返したりします。もうひとつは相手の細胞の表面にくっついている「膜結合型」の分子で、触れることで合図を伝えます[9]。長年の研究で、進化を通じてよく保存された4つの主要な分子ファミリーが特定されてきました。まず全体像を図で見てみましょう。
Netrin(ネトリン)─ 引き寄せも押し返しもする両刀使い
Netrinは分泌型のタンパク質で、発生組織の中で局所的な分布や濃度差をつくり、軸索の進路を導きます。脊髄では、古典的に想定されていた「底板からの長距離拡散勾配」だけではなく、主に脳室帯の神経前駆細胞でつくられたNetrin-1が軸索経路に蓄積して働くことが示されています[24]。Netrinは受け皿しだいで引き寄せにも押し返しにもなります。成長円錐がDCC(Deleted in Colorectal Carcinoma/大腸がんで欠失する遺伝子、の意)という受容体を持っていると、軸索はNetrinの源へ強く引き寄せられます[3]。ところが、DCCに加えてUNC5という受容体も持っていると、同じNetrinが一転して押し返す合図に変わるのです[4]。1個のNetrin分子が2個のDCCと同時に結合するときは引き寄せ、UNC5がその一方に置き換わると押し返しになる——結晶構造の解析から、この切り替えのしくみが分子レベルで明らかにされています[3]。
💡 用語解説:濃度勾配(のうどこうばい)とは
ある物質が、ある場所では濃く、離れるにつれて薄くなる——この「濃い・薄いの傾き」を濃度勾配といいます。軸索誘導では、道しるべ分子が濃度勾配をつくることで、成長円錐に「どちらが源の方向か」を教えます。成長円錐は、この傾きを左右で比べて、濃い方(あるいは薄い方)へ向きを変えるのです。
Slit(スリット)─ 中央への侵入を防ぐ反発分子
Slitは、主に正中線(体の左右を分ける中央のライン)にあるグリア細胞や底板から分泌される、強力な押し返し(反発)の分子です。Slitは、その受け皿であるRobo(Roundabout/ラウンドアバウト)という受容体に結合し、成長円錐を押し返します[5]。この働きは、軸索が中央に不用意に入り込んだり、一度中央を越えた軸索がまた戻ってきたりするのを防ぎ、神経回路の左右対称性を保つのに欠かせません。
Semaphorin(セマフォリン)─ 成長円錐を縮ませる反発分子
Semaphorinは、分泌型と膜結合型の両方があり、主に軸索を押し返す働きをもつ大きなファミリーです。当初「コラプシン(collapsin=崩壊させるもの)」として見つかったSema3Aなどは、ニューロピリンとプレキシンという受容体の複合体に結合し、成長円錐の細胞骨格を再編して軸索を退縮させます[6]。Sema3Aは押し返しだけでなく、におい情報を伝える嗅覚系の地図づくりや、発生期の細胞の配置など、空間的な位置決めにも関わります。
Ephrin(エフリン)と Eph受容体 ─ 触れて伝える双方向の合図
Ephrinは細胞の膜に結合したリガンド(合図の分子)で、Eph受容体と結合して、触れることで合図を伝えます。このシステムの大きな特徴は双方向性シグナル伝達です。受容体を持つ細胞の中に合図が伝わるだけでなく、リガンドであるEphrinを持つ側の細胞にも逆向きに合図が返ります[7]。多くは押し返しに働きますが、状況によっては引き寄せにもなります。エフリンB1をつくるEFNB1遺伝子のように、この双方向シグナルが脳・顔・骨の発生を導く例も知られています。
近年は、もともと体づくりのパターンを決めると考えられていたモルフォゲン(Wnt、Sonic hedgehog〔Shh〕、BMPなど)も、軸索を直接導く分子として働くことがわかってきました[9]。限られた数の分子を、受け皿の組み合わせしだいで正反対の意味に使い分ける——これが、少ない道具で数百万本もの軸索を正確に配線するための、生き物ならではの巧みなやり方です。
4. 正中線の交差 ─ 引き寄せから押し返しへの見事な切り替え
軸索誘導のしくみが最もよく研究されてきた舞台のひとつが、脊髄における正中線の交差(せいちゅうせんのこうさ)です。体の左右をつなぐ多くの神経(交連ニューロン)は、反対側の相手につながる前に、体の中央を一度だけ横切ります。このとき成長円錐は、「引き寄せ」から「押し返し」へと受け皿の反応を切り替える、精巧な段取りに従って動きます。
交差する前 ─ 中央へ引き寄せられる
まず、軸索はNetrin-1などの腹側へ向かう誘導情報を受け取り、成長円錐のDCC受容体を介して正中線へ進みます。脊髄では、Netrin-1は底板からの長距離拡散勾配というより、主に脳室帯の神経前駆細胞に由来して軸索経路に蓄積する局所的な手がかりとして働くことが示されています[24]。ところがこのとき、中央にはすでに強力な反発分子であるSlitが存在しているのに、交差前の軸索ではSlitへの反発が抑えられています。これは、交差前の軸索がROBO3(旧称Rig-1)というRoboファミリー受容体を発現し、Robo1/2を介するSlit反発を抑制するためです[5]。ショウジョウバエ(キイロショウジョウバエ)では、Commという別のタンパク質がRoboの細胞表面への輸送を抑えるという、少し違うやり方が使われています。
中央を越える瞬間 ─ 反発が立ち上がる
軸索が中央を越えると、Robo受容体系の応答が切り替わります。交差前・交差中に多いRobo3.1はSlitへの反発を抑え、軸索が正中線へ進める状態をつくります。一方、交差後にはRobo3.2が現れ、Slit依存性の反発と協調して再交差を防ぐ方向に働きます[8]。この切り替えとRobo1/2を介するSlit応答の増強によって、成長円錐は正中線を越えた後に中央から離れる方向へ進みます[5]。引き寄せ優位から反発優位へ応答が切り替わることで、軸索は中央を一度だけ横切る配線を形成します。
💡 一方通行をつくる巧みなしくみ
もし引き寄せと押し返しの切り替えが少しでも狂うと、軸索は中央で立ち往生したり、中央を越えられなかったり、あるいは何度も行き来してしまいます。「越えるまでは引き寄せ、越えた瞬間に押し返し」という受け皿の切り替えこそが、神経の配線に一方通行のルールをつくり出しているのです。この段取りの遺伝子に変化が起きると、後で述べる遺伝性疾患につながります。
5. 視覚系の地図づくり ─ 化学親和性説とEphrinの勾配
目から脳へ、位置情報を保ったまま正確に伝えるしくみも、軸索誘導の代表例です。網膜の上で隣り合った細胞は、脳の視覚中枢でも隣り合うように配線されます。これをトポグラフィックマップ(地形図のような対応関係)といいます。1963年、ロジャー・スペリー(Roger Sperry)は、伸びる軸索と標的の細胞の両方が固有の「化学的な目印」を持っていて、その相性で点と点の正確な配線が決まる、という化学親和性説(かがくしんわせいせつ)を提唱しました[10]。
数十年後、この「化学的な目印」の正体が、EphrinとEph受容体の直交する(たがいに直角に交わる)濃度勾配であることがわかりました[11]。網膜の神経節細胞(RGC)の軸索が視蓋(しがい)や上丘(じょうきゅう)という脳の部位に投射するとき、前後の軸に沿ってエフリンAが「前で薄く、後ろで濃い」勾配をつくります。一方、網膜側では、EphA受容体が耳側で濃く、鼻側で薄いという勾配をもっています。エフリンAは押し返しとして働くため、受容体を多く持つ耳側の軸索は、リガンドの少ない前部までしか入れずに止まります。逆に受容体の少ない鼻側の軸索は、濃いエフリンAにも耐えられるため、後部まで深く進めるのです[11]。この「受容体の量と、好む濃度の関係」によって、網膜の各点が視蓋の対応する点へ正確に振り分けられます。
💡 用語解説:トポグラフィックマップ(地図のような配線)
網膜という「入力の面」の位置関係を、脳という「出力の面」でもそのまま保つ配線のことです。地図の東西・南北がそのまま脳に写し取られるイメージです。視覚だけでなく、触覚や聴覚でも同じような地図が作られており、Ephrin/Eph の勾配がその物差しとして働いています。
6. 成長円錐の自律性 ─ その場でタンパク質をつくる
成長円錐は、細胞体(核のある本体)からとても遠い場所にあります。もし環境の変化に応じて、いちいち核から指示を待っていたら、応答が間に合いません。そこで軸索誘導では、局所的なしくみが使われています。成長円錐がその場で、必要なタンパク質を自分でつくるのです。
実際、細胞体から物理的に切り離された軸索でも、道しるべの合図に対して数時間は正しく向きを変えられます。この能力は、タンパク質合成を止める薬を加えると消えてしまうことから、成長円錐が「その場でのタンパク質づくり(局所翻訳)」に頼って方向転換していることがわかります[12]。細胞体でつくられた設計図(メッセンジャーRNA、mRNA)は、ZBP1などのRNA結合タンパク質に包まれた「輸送のかたまり」の形で、翻訳が止められた状態のまま、微小管のレール上を運ばれます。この運搬には、ダイニンやキネシンという「運び屋」のタンパク質が働いています。
成長円錐がNetrin(引き寄せ)などの合図を受け取ると、抑えられていた翻訳が数分以内に解除され、とくにβ(ベータ)アクチンという細胞骨格の材料のmRNAが、その場で翻訳されます。新しくつくられたβアクチンは、細胞骨格を組み替えて、成長円錐の向きを変える動きを直接引き起こします[13]。実際、ZBP1を欠いたマウスの神経細胞では、Netrinに対する引き寄せの反応が失われることが確かめられており、この局所翻訳のしくみが軸索誘導に不可欠であることを示しています[13]。
さらに近年は、軸索の中でつくられたタンパク質が、逆向きに核まで運ばれて、遺伝子の働きを変える「連絡役」になることもわかってきました。神経が傷ついたときに軸索でつくられるSTAT3やインポーチンβ1といったタンパク質が、ダイニンに乗って核へ運ばれ、神経細胞の生存や再生に必要な大きな変化を引き起こします[14]。局所翻訳は、道案内だけでなく、神経の生き死にや再生にも深く関わっているのです。
7. 力を感じるPiezo1 ─ 硬さを読み取る機械センサー
軸索誘導は、化学的な合図だけで決まるわけではありません。まわりの組織の硬さや張り具合という物理的な性質も、成長円錐の動きに強く影響します。組織の硬さは、接着分子と細胞骨格をつなぐ「分子クラッチ」を通じて引っ張る力に変換され、成長円錐の動きを左右します。この「力を読み取る」しくみの中心にあるのが、機械受容イオンチャネルPiezo1(ピエゾ・ワン)です。
Piezo1は、細胞膜が引き伸ばされたり、まわりの硬さが変わったりといった機械的な刺激を感じ取り、カルシウムなどの陽イオンを細胞内へ流入させる機械受容イオンチャネルです。培養した後根神経節(DRG)ニューロンでは、Piezo1が成長円錐で足場の硬さを感知し、この力の情報をカルシウムを介して細胞骨格の動きへ変換し、軸索の再伸長を調節することが示されています[15]。具体的には、Piezo1→Ca2+→CaMKII→FAK→アクチンという流れが、硬さ依存性の軸索再伸長に関与します[15]。
Piezo1は、神経損傷後の軸索再生にも関わります。ショウジョウバエでは、損傷後にPiezoが成長円錐に集まり、カルシウム、一酸化窒素合成酵素(NOS)、PKGへ至る経路を介して軸索再生を抑えることが示されています[16]。哺乳類でも、培養ラット海馬ニューロンでPiezo1を薬理学的に活性化すると再伸長が軽度に低下し、マウスの感覚神経でPiezo1を条件付き欠失させると損傷後の再生が促進されました[16]。このため、Piezo1は神経修復との関連が研究されている標的の一つです。
💡 用語解説:機械受容イオンチャネル(きかいじゅようイオンチャネル)
細胞膜には、さまざまな刺激に応じて開く「イオンの通り道(チャネル)」があります。そのなかで、押す・引っ張る・膜が伸びるといった機械的な力に反応して開くものを、機械受容イオンチャネルといいます。Piezo1はその代表で、力を感じるとカルシウムなどを細胞内に流し込み、それが合図となって細胞の動きが変わります。触覚や血圧の感知など、体のいろいろな場面で働いています。
8. 軸索誘導と関連する遺伝性疾患
「配線を導く分子」に変化が起きると、神経回路そのものに異常が生じ、特徴的な病気につながります。こうした病気は、まとめて軸索誘導の障害(axon guidance disorders)と呼ばれます[17]。ここでは、これまで登場した分子と直接つながる代表的な遺伝性疾患を紹介します。いずれも希少な病気ですが、軸索誘導のしくみを知ると、なぜそうした症状が出るのかが理解しやすくなります。
🧬 軸索誘導に関わる代表的な遺伝性疾患
| 疾患名(読み) | 関わる遺伝子 | 軸索誘導との関係 |
|---|---|---|
| 水平注視麻痺を伴う進行性側弯症(すいへいちゅうしまひをともなうしんこうせいそくわんしょう/HGPPS) | ROBO3 | Roboファミリー受容体ROBO3の両アレル変異で、脳幹の軸索の正中線交差が障害されます。水平方向に目を動かせない注視麻痺と、進行する側弯症(背骨の曲がり)が特徴です[18] |
| 先天性鏡像運動(せんてんせいきょうぞううんどう) | DCC | Netrin受容体DCCの変化で、片手を動かすと反対の手も勝手に同じ動きをしてしまう症状が出ます。DCCの両アレル変異では、脳梁を含む交連が広く欠ける重い病態(発達性スプリットブレイン症候群)も報告されています[19] |
| L1症候群(エルワンしょうこうぐん) | L1CAM | 軸索の接着と伸長を助けるL1型細胞接着分子の変化で、水頭症や錐体路(運動の通り道)の交差異常、脳梁の形成不全などが生じます |
| カルマン症候群(Kallmann症候群) | ANOS1・FGFR1 など | においを伝える嗅索や、性ホルモンを司るGnRHニューロンの遊走・配線がうまくいかず、嗅覚の障害と思春期が来にくい性腺機能低下症を伴います[20] |
※いずれも希少疾患です。診断や検査については、症状や家族歴を踏まえて個別に検討する必要があります。
たとえば水平注視麻痺を伴う進行性側弯症(HGPPS)は、第4章で説明した「正中線の交差」がうまくいかない病気です。ROBO3が働かないために、本来なら中央を越えるはずの脳幹の軸索が交差できず、左右の情報の受け渡しに異常が生じます。その結果、水平方向の目の動きが障害され、背骨も進行性に曲がっていきます[18]。DCCの変化による先天性鏡像運動も、中央を越える軸索の配線異常という点で共通しており、片側の運動指令が反対側にも「もれて」しまうと考えられています[19]。
これらの疾患に関わる遺伝子や、原因遺伝子を調べる検査については、症状や家族歴に応じて個別に検討します。ミネルバクリニックでは、先天性鏡像運動の遺伝子検査や、カルマン症候群の遺伝子検査、脳の形成に関わる神経細胞遊走障害のNGSパネル検査など、神経発生に関わる遺伝子検査を行っています。
🩺 院長コラム【症状の理由を分子機序から考える】
希少な神経の病気では、診断名がつくまでに時間がかかることが少なくありません。原因がわからないまま検査を重ねる期間は、ご本人にもご家族にも負担の大きいものです。こうした診断困難な状況は、多くの遺伝性疾患やがんの診療に共通してみられます。
軸索誘導という視点は、一見バラバラに見える症状——目が動かない、背骨が曲がる、脳梁がない——が、じつは「配線の障害」という一つの原因でつながっていることを教えてくれます。臨床遺伝専門医として、こうした分子のしくみを踏まえて検査結果を読み解くことは、検査結果と症状の関係を医学的に整理するための材料になります。
9. 再生医療と最新研究 ─ 発生の道しるべを治療に活かす
成熟した哺乳類の中枢神経系(脳や脊髄)は、末梢神経とは違い、傷ついたあとの自己再生の力がとても限られています。その大きな理由のひとつが、損傷部位の周りに「再生を妨げる環境」ができることです。オリゴデンドロサイト由来のミエリン関連阻害因子や、傷あと(グリア瘢痕〔はんこん〕)に多いコンドロイチン硫酸プロテオグリカン(CSPG)が、成長円錐の再形成をじゃまします。
発生期には道案内をしていた分子が、成人の傷ついた組織では逆に再生を妨げる側にまわることがあります。そこで、これらの「妨げる合図」を打ち消して軸索の再生を促す治療の臨床開発が進められています。
💊 軸索誘導のしくみを応用した主な開発中の治療
| 開発中の薬(一般名など) | 標的分子 | 研究の現状 |
|---|---|---|
| エレザヌマブ(Elezanumab) | RGMa(反発性ガイダンス分子A) | RGMaを打ち消す抗体。サルの脊髄損傷モデルで運動機能の回復が示されました[21]。一方、多発性硬化症を対象とした第2相試験(RADIUS-R/RADIUS-P)では、安全性は確認されたものの主要評価項目は達成されませんでした[22] |
| NVG-291 | PTPσ(CSPGの受容体) | グリア瘢痕の阻害因子CSPGの受け皿PTPσを標的とするペプチド。慢性頸髄損傷を対象とした第1b/2a相試験では、企業発表のトップライン結果で、手の筋肉に対する運動誘発電位(MEP)振幅の改善がプラセボ群より有意で、NVG-291群ではベースラインから約3倍となったと報告されています[23][25]。2026年8月時点では、慢性四肢麻痺を対象とする第3相RESTORE試験のスクリーニング開始が2026年9月に予定されています[26] |
※これらは研究・開発段階の情報であり、確立した治療法ではありません。効果や適応は今後の試験で変わりうるため、治療に関する判断は主治医とご相談ください。
臨床試験の結果からわかるように、ひとつの分子だけを狙う介入で、すべての患者さんに劇的な回復をもたらすことは、まだ実現していません[22]。患者さんごとに損傷の程度やしくみが違うこと、治療に適した時期が短いこと、回復を客観的に測ることの難しさなど、乗り越えるべき課題が残っています。今後は、MRIや電気生理学的な指標を使って患者さんを的確に分類し、複数のアプローチを組み合わせていくことが重要だと考えられています。
ヒトの脳を再現する ─ 脳オルガノイドという新しい舞台
これまで軸索誘導の研究は、平面での細胞培養や、ショウジョウバエ・げっ歯類などの動物モデルに頼ってきました。しかし、ヒト特有の複雑な大脳の発生を正確に再現するには限界があります。そこで近年、ヒトのiPS細胞(人工多能性幹細胞)から立体的な脳の組織をつくる脳オルガノイドという技術が登場し、ヒト特有の神経発生を調べる新しい舞台となっています。
さらに、異なる脳の領域を別々に育ててから物理的に融合させる「アセンブロイド」という技術では、領域から領域へと軸索が長い距離を投射する様子を、体の外で再現できるようになりました。自閉症スペクトラム障害や統合失調症など、神経発達に関わる病気で、回路のレベルで何が起きているのかを直接調べる手がかりになると期待されています。微細な流路をもつデバイス(ブレイン・オン・ア・チップ)と組み合わせることで、軸索が進む方向を物理的な構造だけで一方向にそろえる試みも進んでいます。
10. よくある誤解
誤解①「引き寄せる分子と押し返す分子は決まっている」
そうとは限りません。Netrinのように、成長円錐が持つ受け皿(受容体)の組み合わせしだいで、引き寄せにも押し返しにもなる分子があります。同じ道しるべでも、読み手によって意味が変わるのです。
誤解②「軸索の進路は最初から決まっている」
実際には、成長円錐が道のあらゆる場所で合図を読み取り、その場で進路を決めています。中央を越えた瞬間に受け皿の顔ぶれを切り替えるように、判断はたえず更新されています。
誤解③「配線の異常は目に見える大きな奇形だけ」
ROBO3やDCCの変化のように、配線のわずかな取り違えが、目の動きの障害や鏡像運動といった特徴的な症状を生むことがあります。外からは見えにくい「つなぎ方」の問題です。
誤解④「発生の分子は大人になれば関係ない」
むしろ逆のことも起きます。発生期に道案内をした分子が、成人の傷ついた神経では再生を妨げる側にまわることがあり、それを打ち消す治療が研究されています。
まとめ ─ 軸索誘導という「配線の科学」
軸索誘導は、単に引き寄せる物質へ受け身で近づくことではなく、成長円錐という小さな自律装置が、化学的な合図と物理的な力を統合して進路を計算していく、精巧なしくみです。NetrinやShhのような一つの分子が、受け皿の組み合わせや時間的な切り替えによって、引き寄せにも押し返しにもなる——この文脈しだいの読み替えが、限られた分子で膨大な数の軸索を正確に配線することを可能にしています。
この基礎のしくみを知ることは、ROBO3やDCC、L1CAM、カルマン症候群といった遺伝性疾患を理解する土台になります。一見バラバラの症状が、「配線を導く分子の変化」という一つの原因でつながっていることが見えてくるからです。さらに、発生期の道しるべ分子は、成人の脊髄損傷では再生を妨げる標的として、また脳オルガノイドという新しい舞台では回路の病態を解き明かす手がかりとして、研究が進んでいます。軸索誘導の探究は、発生生物学の枠を越えて、遺伝医療と再生医療が交わる領域へと広がっています。
よくある質問(FAQ)
Q1. 軸索誘導(アクソンガイダンス)とは何ですか?
軸索誘導とは、発生中の神経細胞から伸びる軸索が、正しい相手の細胞へたどり着くために、まわりの道しるべ分子を読み取りながら進む方向を決めていくしくみのことです。軸索の先端にある成長円錐が、引き寄せ(誘引)と押し返し(反発)という2種類の合図を読み分けて進みます。この配線がうまくいかないと、神経回路に異常が生じ、特定の遺伝性疾患につながることがあります。
Q2. 成長円錐とは何ですか?
成長円錐とは、発生中の軸索の先端にある、手のひらのような形をした動きの速い構造です。ここから指のような細い突起(フィロポディア)を伸ばしたり縮めたりして、まわりの道しるべ分子や足場を感じ取り、進む方向を決めます。アクチンや微小管という細胞骨格の組み替えが、その動きを支えています。1910年にロス・ハリスンが、生きた状態でこの構造が動く様子を初めて記録しました。
Q3. 同じ分子が引き寄せにも押し返しにもなるのはなぜですか?
成長円錐がどんな受け皿(受容体)を持っているかで、合図の意味が変わるからです。たとえばNetrinは、DCCという受容体だけを持つ成長円錐を引き寄せますが、DCCに加えてUNC5という受容体を持つ成長円錐は押し返します。1個のNetrin分子への受け皿の組み合わせが変わることで、引き寄せと押し返しが切り替わることが、結晶構造の解析からわかっています。
Q4. 軸索誘導と関係する遺伝性疾患にはどんなものがありますか?
代表的なものに、ROBO3遺伝子の変化による水平注視麻痺を伴う進行性側弯症(HGPPS)、DCC遺伝子の変化による先天性鏡像運動や脳梁の形成不全、L1CAM遺伝子によるL1症候群、ANOS1やFGFR1などによるカルマン症候群があります。いずれも、軸索が正しく配線されないことが症状の背景にあります。診断や検査については、症状や家族歴を踏まえて個別に検討します。
Q5. 軸索誘導の研究は、けがや病気の治療に役立ちますか?
研究が進んでいます。発生期に道案内をする分子の一部は、成人の脊髄損傷では再生を妨げる側にまわることがわかっており、それを打ち消す薬(エレザヌマブ、NVG-291など)の臨床試験が行われています。ただし、いずれも研究・開発段階であり、確立した治療法ではありません。治療に関する判断は、必ず主治医とご相談ください。
🏥 神経の発生や遺伝子検査に関するご相談
神経の発生に関わる遺伝子や遺伝性の病気、遺伝子検査の結果の意味について
お考えの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] The outgrowth of the nerve fiber as a mode of protoplasmic movement. J Exp Zool. 1910. [Wiley 10.1002/jez.1400090405]
- [2] Cytoskeletal Dynamics and Transport in Growth Cone Motility and Axon Guidance. Neuron. 2003. [Cell Press]
- [3] The crystal structure of netrin-1 in complex with DCC reveals the bifunctionality of netrin-1 as a guidance cue. [PubMed 25123307]
- [4] A ligand-gated association between cytoplasmic domains of UNC5 and DCC family receptors converts netrin-induced growth cone attraction to repulsion. Cell. 1999. [PubMed 10399920]
- [5] The divergent Robo family protein rig-1/Robo3 is a negative regulator of slit responsiveness required for midline crossing by commissural axons. Cell. 2004. [PubMed 15084255]
- [6] Luo Y, Raible D, Raper JA. Collapsin: a protein in brain that induces the collapse and paralysis of neuronal growth cones. Cell. 1993;75(2):217-227. doi:10.1016/0092-8674(93)80064-L. PMID:8402908. [PubMed 8402908]
- [7] Structural Perspectives on Axon Guidance. Annu Rev Cell Dev Biol. [Annual Reviews]
- [8] Alternative splicing of the Robo3 axon guidance receptor governs the midline switch from attraction to repulsion. [PubMed 18466743]
- [9] Growth Factors as Axon Guidance Molecules: Lessons From in vitro Studies. Front Neurosci. 2021. [PMC8175860]
- [10] Revisiting chemoaffinity theory: Chemotactic implementation of topographic axonal projection (Sperry chemoaffinity hypothesis, 1963). PLoS Comput Biol. 2017. [PMC5562328]
- [11] Quantitative assessment of computational models for retinotopic map formation. [PMC4497816]
- [12] Local Translation Across Neural Development. Front Mol Neurosci. 2021. [PMC8380849]
- [13] Netrin-1-induced local β-actin synthesis and growth cone guidance requires zipcode binding protein 1. J Neurosci. 2011. [PubMed 21734271]
- [14] Axonal mRNA transport and translation at a glance. J Cell Sci. 2018. [J Cell Sci]
- [15] Piezo1 Regulates Stiffness-Dependent DRG Axon Regeneration via Modifying Cytoskeletal Dynamics. [PMC11653623]
- [16] The Mechanosensitive Ion Channel Piezo Inhibits Axon Regeneration. Neuron. 2019. [Cell Press]
- [17] Human disorders of axon guidance. [PubMed 22398400]
- [18] Mutation in ROBO3 Gene in Patients with Horizontal Gaze Palsy with Progressive Scoliosis Syndrome: A Systematic Review. [PMC7345006]
- [19] Biallelic mutations in human DCC cause developmental split-brain syndrome. Nat Genet. 2017. [Nature Genetics]
- [20] Neuronal guidance genes in health and diseases. Protein Cell. [Protein & Cell]
- [21] Elezanumab, a human anti-RGMa monoclonal antibody, promotes neuroprotection, neuroplasticity, and neurorecovery following a thoracic hemicompression spinal cord injury in non-human primates. Neurobiol Dis. 2021. [PubMed 33991647]
- [22] Randomized, Double-Blind, Placebo-Controlled, Multiple-Dose Studies to Assess the Safety and Efficacy of Elezanumab in Relapsing and Progressive Forms of Multiple Sclerosis. Ann Neurol. 2025. [Ann Neurol 10.1002/ana.27262]
- [23] Mikol DD, Toews J, Mulcahy S, et al. NVG-291 Phase 1 Results and Phase 1b/2a Study Design in Individuals with Spinal Cord Injury. Arch Phys Med Rehabil. 2024;105(4):e18. doi:10.1016/j.apmr.2024.02.049. [ScienceDirect]
- [24] Varadarajan SG, Kong JH, Phan KD, et al. Netrin1 Produced by Neural Progenitors, Not Floor Plate Cells, Is Required for Axon Guidance in the Spinal Cord. Neuron. 2017;94(4):790-799.e3. doi:10.1016/j.neuron.2017.03.007. PMID:28434801. [PubMed 28434801]
- [25] NervGen Pharma. Positive topline data from the chronic cohort of the Phase 1b/2a trial evaluating NVG-291 in spinal cord injury. 2025. [Company topline results]
- [26] NervGen Pharma. NervGen Reports Second Quarter 2026 Financial Results and Provides Business Updates. 2026 Aug 13. [Company update]






