

目次
- 1 1. SLIT-ROBOシグナルとは ─ 神経の「道案内」の仕組み
- 2 2. SLITとROBOの正体 ─ どんな分子なのか
- 3 3. 正中線を渡る仕組み ─ 「渡る」と「戻らない」の切り替え
- 4 4. ROBO3という例外 ─ SLITを受け取らない受容体
- 5 5. NELL2という鍵 ─ ROBO3が使う「もう一つの合図」
- 6 6. 2つのスプライス ─ ROBO3.1とROBO3.2
- 7 7. HGPPSとの関係 ─ ROBO3の異常が起こすヒトの病気
- 8 8. 進化と命名の注意 ─ 混同しやすいポイント
- 9 9. 遺伝診療との接点 ─ 用語の理解が臨床にどうつながるか
- 10 10. よくある誤解
- 11 まとめ ─ 「反発」を巧みに使い分ける配線の仕組み
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
脳や脊髄が正しく働くためには、無数の神経細胞から伸びる「軸索(じくさく)」が、迷わず正しい相手までたどり着く必要があります。この配線を空間的に導く仕組みのひとつが、SLIT-ROBO(スリット・ロボ)シグナルです。分泌されるSLITというタンパク質と、その受け手であるROBO受容体が組みになって、軸索を「そちらへ行ってはいけません」と押し返します。ところが、ROBOファミリーの中でROBO3だけは、哺乳類ではSLITを受け取らず、NELL2という別のリガンドを使うという、とても変わった振る舞いをします。この記事では、SLIT-ROBOの基本から、ROBO3の例外性、そしてROBO3の異常が起こすヒトの病気「HGPPS(水平注視麻痺と進行性側弯症)」までを、遺伝専門医の視点から解説します。
Q. SLIT-ROBOシグナルとは何ですか?まず結論だけ知りたいです
A. SLIT-ROBOシグナルとは、分泌タンパク質SLITと受容体ROBOが結びついて、発生中の神経細胞の軸索を反発させ、進む方向を決める仕組みのことです。とくに脳・脊髄の「正中線(せいちゅうせん/体の左右を分ける中央のライン)」を軸索がいつ渡り、渡ったあとは戻らないようにするかを制御しています。哺乳類ではSLITが主にROBO1とROBO2に結合しますが、同じ仲間のROBO3はSLITを結合せず、NELL2という別のリガンドを使う特殊な受容体です。ヒトでROBO3が働かないと、脳幹での神経の交叉がうまくいかず、HGPPSという病気が起こります。
- ➤基本の組 → 分泌タンパク質SLIT(1〜3)と受容体ROBO(1〜4)。SLITは主にROBO1/2に結合して軸索を反発させる
- ➤おもな役割 → 軸索が脳・脊髄の正中線をいつ渡り、渡った後は戻らないかを制御する
- ➤ROBO3の例外 → 哺乳類のROBO3はSLITを結合せず、NELL2を反発性リガンドとして使う
- ➤2つの顔 → ROBO3にはスプライスで生じるROBO3.1とROBO3.2があり、渡る前と渡った後で役割が入れ替わる
- ➤病気とのつながり → ROBO3遺伝子の両アレル変異は、水平注視麻痺と進行性側弯症(HGPPS)を起こす
🧬 SLIT-ROBOシグナルの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | スリット・ロボ。ROBOは「Roundabout(ラウンドアバウト)」の略。日本語では軸索ガイダンス(軸索誘導)分子のひとつ |
| 構成分子 | 分泌リガンドSLIT1〜3(大型の糖タンパク質)と、一回膜貫通型受容体ROBO1〜4 |
| 古典的な結合 | SLIT2の第2LRRドメインが、ROBO1の第1Ig(免疫グロブリン様)ドメインに結合する[4] |
| 主なはたらき | 軸索の反発による方向づけ。とくに神経系の正中線での「渡る・戻らない」の制御 |
| ROBO3の特殊性 | 哺乳類ROBO3はSLITを結合せず、NELL2を反発性リガンドとして使う[7] |
| 関連するヒト疾患 | ROBO3遺伝子(OMIM *608630)の両アレル変異による水平注視麻痺・進行性側弯症(HGPPS1/OMIM #607313)[3][11] |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. SLIT-ROBOシグナルとは ─ 神経の「道案内」の仕組み
脳や脊髄がつくられる時期には、たくさんの神経細胞から細い突起(軸索)が伸び出し、それぞれが決まった相手のところまで長い距離を移動します。この移動は、行き当たりばったりではありません。軸索の先端にある成長円錐(せいちょうえんすい)という部分が、周囲にまかれた化学的な目印を読み取りながら、進む向きを刻々と決めていきます。こうした目印を軸索ガイダンス(軸索誘導)の手がかりと呼びます。
手がかりには、軸索を引き寄せる「誘引(ゆういん)」の合図と、遠ざける「反発」の合図があります。SLIT-ROBOシグナルは、このうち反発を担う代表的な仕組みです。SLIT(スリット)という大きな分泌タンパク質が、細胞の外にまかれ、その受け手であるROBO(ロボ)という受容体をもつ軸索を押し返します。もともとはショウジョウバエの研究で、正中線を「何度もぐるぐる回るように横切ってしまう」変異体からROBO(Roundabout=環状交差点)という名前が付けられました。1999年には、哺乳類でもSLITがROBOに結合し、運動神経の軸索を反発させることが直接示され、この受容体とリガンドの組が脊椎動物でも働くことが確立しました[1]。
💡 用語解説:軸索・成長円錐・正中線
軸索は、神経細胞から伸びる長い電線のような突起で、信号を他の細胞へ送ります。その先端の手のような構造が成長円錐で、周囲の目印を触りながら進む方向を決めます。正中線は体を左右に分ける中央のラインのことで、脳や脊髄では、左右をつなぐ神経がここを渡る(交叉する)かどうかが、体の左右をまたいだ情報のやりとりを決める重要なポイントになります。
SLIT-ROBOが注目されるのは、単に「反発する分子」だからではありません。軸索が正中線を渡るときには、「まだ渡っていないときは反発を弱めて近づけるようにし、渡り終えたら反発を効かせて二度と戻らせない」という、時間差のある巧みな切り替えが必要です。SLIT-ROBOシグナルは、後で述べるROBO3やNELL2、そしてNetrin/DCCによる誘引の仕組みと組み合わさって、この切り替えを実現しています。
2. SLITとROBOの正体 ─ どんな分子なのか
SLITとは ─ 大きなモジュール型の分泌タンパク質
SLITは、細胞の外に分泌される大型の糖タンパク質です。LRR(ロイシンリッチリピート)と呼ばれる部品のかたまりや、EGF様リピート、ラミニンG様ドメイン、C末端のシスチンノットといった、いくつもの部品が数珠つなぎになったモジュール構造をしています。哺乳類にはSLIT1・SLIT2・SLIT3の3種類があります。
ここで実務的に大切なのは、SLIT2が体内で切断され、N末端側の大きな断片(SLIT2-N)とC末端側の断片(SLIT2-C)に分かれ、それぞれ違う相手や活性をもちうる、という点です。実際に研究用の組換えタンパク質でも、N末端側とC末端側は別々の製品として供給されています。つまり「SLIT2を使った」という一言だけでは、どの断片を指すのか特定できないのです。研究の再現性という観点からは、種(ヒト・マウス)、どのアミノ酸の範囲か、糖鎖の状態、といった条件まで記録することが望ましいといえます。
ROBOとは ─ 触媒をもたない一回膜貫通型受容体
ROBO(Roundabout)は、免疫グロブリンスーパーファミリーに属する一回膜貫通型の受容体です。神経で働くROBO1〜3の細胞外部分は、5個のIg様(免疫グロブリン様)ドメインと3個のフィブロネクチンIII型(FNIII)ドメインからなる「5+3」の八ドメイン構造をとり、続いて膜を貫く部分と、比較的長い細胞内の部分があります[8]。ROBO自体には、リン酸化酵素のような化学反応を起こす触媒部分はありません。代わりに、細胞内側にアダプターやRhoファミリーの低分子量Gタンパク質などを呼び寄せることで、成長円錐の骨組み(細胞骨格)を組み替える信号を出します。なお、ROBO4は他のメンバーより短い分岐型で、神経ではなく主に血管の分野で研究されています。
古典的なSLIT-ROBOの結合は、2007年に結晶構造として詳しく解かれました。ヒトSLIT2の第2LRRドメイン(D2)が、ROBO1の最初のIgドメイン(Ig1)に結合する様子が、1.70Å(オングストローム)という高い分解能で示されたのです[4]。この構造は、「SLITはROBOのどこにでも付く」という漠然としたイメージを退け、結合部位をD2とIg1という特定の場所に絞り込んだ点で、この分野の基準点になっています。この結晶構造の座標は、公開データベースにPDB ID「2V9T」として登録されています[12]。また、SLITと細胞表面のヘパラン硫酸との結合が、SLIT-ROBOの相互作用を調節することも知られています。
SLIT-ROBOと関連分子の関係(哺乳類)
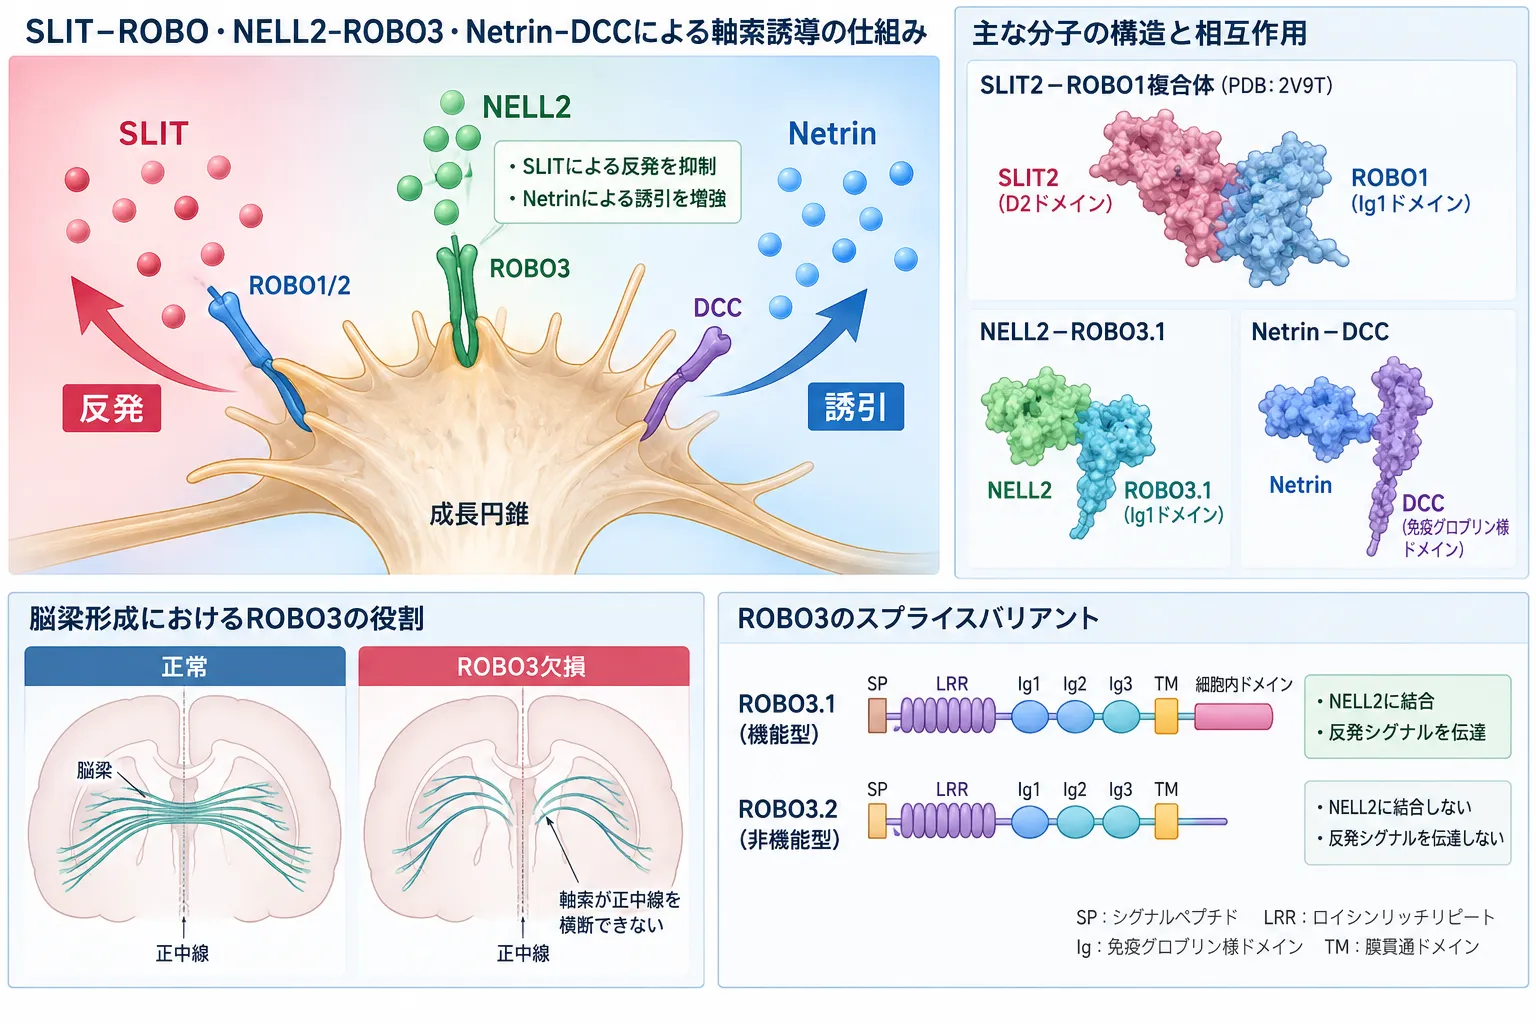
SLIT-ROBO、NELL2-ROBO3、Netrin-DCCは、発生中の神経軸索が正しい経路を進むための軸索ガイダンスに関与します。SLITは主にROBO1/2を介して反発を伝え、Netrin-1はDCCを介して正中線方向への誘引に働きます。哺乳類のROBO3はSLITを直接結合しない特殊なROBOファミリー受容体で、NELL2をリガンドとして利用するとともに、正中線交叉に必要なシグナル調節に関与します。ROBO3の機能異常は神経路の正中線交叉障害につながり、ヒトでは水平注視麻痺と進行性側弯症(HGPPS)の原因となります。
3. 正中線を渡る仕組み ─ 「渡る」と「戻らない」の切り替え
脊髄では、左右をつなぐ交連(こうれん)神経の軸索が、いったん腹側の正中線(底板)に引き寄せられて渡り、その後は反対側で次の目的地へ向かいます。ここで問題になるのが、正中線には反発物質であるSLITがまかれている、という点です。もし最初から軸索がSLITに反発してしまうと、そもそも正中線に近づけません。逆に、渡り終えたあともSLITに無反応のままだと、何度も正中線を行き来してしまいます。
この難題を、複数の仕組みが役割分担で解決しています。まずNetrin-1とその受容体DCCが、軸索を正中線へ引き寄せます。同時に、渡る前の軸索ではSLITへの反発が抑えられていて、近づくことができます。そして渡り終えると、今度はSLITへの反発がはたらいて、軸索を正中線から押し出し、逆戻りを防ぎます。この「渡る前は反発を抑え、渡った後は反発を効かせる」という切り替えの中心にいるのが、次に述べるROBO3です。
🩺 院長コラム【「タイミング」を制御する巧みさ】
SLIT-ROBOで重要なのは、同じ反発物質に対する感受性が、時間の流れの中でオン・オフされる点です。分子そのものの善しあしではなく、「いつ効かせ、いつ抑えるか」というタイミングの制御で、複雑な配線を成り立たせています。
遺伝子の働きを読むときも、これと同じ視点が役に立ちます。ある遺伝子が「ある・ない」だけでなく、「いつ・どこで・どの型で働くか」まで見て初めて、その意味が分かることが少なくありません。ROBO3のスプライスは、その好例です。
4. ROBO3という例外 ─ SLITを受け取らない受容体
ここが、この記事のいちばん大切なところです。名前が「ROBO」なので、ROBO3もSLITの受容体だと思われがちですが、哺乳類のROBO3はSLITを直接結合しません。この点は、古い教科書やメーカーの製品説明に残る「SLITはROBO1〜4に結合する」という一括りの記述とは食い違うため、とくに注意が必要です。最新の生化学・構造研究は、哺乳類ROBO3がSLIT非結合であることをはっきり示しています[7]。
ではROBO3は何をしているのでしょうか。2004年の研究で、ROBO3(別名Rig-1)は、他のROBOのような単純な反発受容体ではなく、SLITへの反発が早く効きすぎるのを抑える「負の調節役」であることが示されました[2]。ROBO3を失ったマウスでは、交連神経の軸索が正中線にまったく到達できず、同じ側だけに投射してしまう強い異常が起こります。つまりROBO3は、軸索が正中線を渡るために欠かせない受容体です。
さらにROBO3は、ひとつの受容体で複数の情報を統合する「多機能ハブ」でもあります。具体的には、①ROBO1/2によるSLIT反発を抑え、②Netrin-1自体には結合しないままDCCを介したNetrin誘引を後押しし、③後述するNELL2に対しては直接結合して反発を伝える、という3つの役割を同時に担います[7]。ひとつの分子が、抑える・後押しする・伝える、という異なる働きを束ねているのです。
⚠️ 誤解しやすいポイント
「ROBOという名前だから、ROBO3もSLITの受容体だろう」と考えるのは、哺乳類では正しくありません。ROBO1・ROBO2はSLITの古典的な受容体ですが、哺乳類のROBO3はSLITを結合せず、NELL2という別のリガンドを使います。試薬メーカーの製品ページは「試薬の仕様」を知るには有用ですが、ROBO3の最新のはたらきを判断する根拠としては、原著論文を優先すべきです。
5. NELL2という鍵 ─ ROBO3が使う「もう一つの合図」
では、ROBO3はどんなリガンドで反発を伝えるのでしょうか。2015年に、その答えとしてNELL2(neural EGF-like-like 2)という分泌タンパク質が同定されました。NELL2は、脊髄の腹側角(正中線の脇)から分泌され、ROBO3をもつ軸索を反発させて、正しい経路へ誘導します。この発見によって、それまで相手のわからない「みなしご受容体」だったROBO3に、正式なリガンドが与えられました[7]。
2020年には、NELL2とROBO3がどのように結合するのかが、結晶構造として原子レベルで明らかにされました[8]。古典的なSLIT-ROBOがLRRとIgドメインで結合するのに対し、NELL2-ROBO3はまったく別の面を使い、NELL2のEGF2・EGF3ドメインが、ROBO3のFN1ドメインを挟むように認識します。同じ「ROBOファミリー」でありながら、リガンドの選び方も結合のしかたも大きく異なる、というわけです。
結合の強さと反発の強さは、きれいに対応する
この2020年の研究は、結合の強さ(親和性)と、実際の軸索の反発の強さが、直接結びつくことも示しました。マウスの交連神経を使った実験では、NELL2の濃度を上げていくと反発が強まり、ピーク濃度およそ40 ng/mL付近で頭打ち(飽和)になりました[8]。さらに、結合をわずかに弱めた変異型NELL2(ROBO3への結合の強さが約1.7 µM)は依然として軸索を反発させたのに対し、結合を大きく壊した変異型(100 µM以上)では反発が検出されませんでした[8]。結合の強さという物理的な性質が、軸索の曲がり方という細胞レベルの結果に、そのまま反映されたのです。
💡 用語解説:親和性(結合の強さ)とNELL2
タンパク質どうしがどれくらい強く結びつくかを示す指標が親和性で、数値(解離定数)が小さいほど強く結合します。NELL2は、EGF様ドメインなどをもつ分泌タンパク質で、溶液の中では3つが集まった三量体(さんりょうたい)になっています。ROBO3はふだん単量体(ばらばらの1個)でいますが、三量体のNELL2が結合すると、ROBO3どうしが引き寄せられて集まり(オリゴマー化)、これが反発の信号を強めると考えられています。実際、NELL2とROBO3はおよそ3対3の割合で複合体をつくることが示されています[8]。
この「リガンドが集まって受容体を束ねることで信号を強める」という仕組みは、単に受容体が埋まる(占有される)だけでは説明できない重要な特徴です。三量体をつくれないように改変したNELL2は、ROBO3への結合の強さ自体はあまり変わらないのに、反発を起こす力が大きく落ちました[8]。つまり、創薬の観点からも、「結合するか」だけでなく「束ねられるか」まで見ないと、実際の効き目を見誤る可能性がある、ということです。
6. 2つのスプライス ─ ROBO3.1とROBO3.2
ROBO3の話には、もう一段の巧みさがあります。2008年に、ROBO3の遺伝子から選択的スプライシングによって、細胞内側のC末端が異なる2つの型――ROBO3.1とROBO3.2――がつくり分けられることが報告されました[5]。ROBO3.1は正中線を渡る前・渡っている最中の軸索に現れ、ROBO3.2は渡り終えた後の軸索に現れます。
💡 用語解説:選択的スプライシング
ひとつの遺伝子から、必要な部品(エクソン)の組み合わせを変えて、少しずつ違うタンパク質をつくり分ける仕組みを選択的スプライシングといいます。ROBO3の場合、細胞外側の部分は同じままで、細胞内側のいちばん端(C末端)だけが異なる2つの型がつくられます。1つの遺伝子から、役割の異なる2つの受容体が生まれるわけです。
2020年の詳しい実験は、この2つの型の役割分担をさらに精密にしました。ROBO3.1とROBO3.2は、細胞外側の部分がまったく同じで、どちらもNELL2を結合できます。ところが、NELL2による反発を実際に伝えられるのはROBO3.1だけで、ROBO3.2は細胞表面に出してもNELL2反発を伝えませんでした[8]。ROBO3が欠けた神経にROBO3.1を戻すと反発が回復し、ROBO3.2を戻しても回復しなかったのです。両者の違いは細胞内側のC末端配列にあるため、ROBO3.1のC末端だけに結合する特有のエフェクター(信号を伝える相棒分子)の存在が強く示唆されますが、その正体はまだ特定されていません。ROBO3.2が渡った後の軸索で何をしているのか、その分子的な仕組みも、現時点では明確なデータが示されていない未解決の問題として残されています。
7. HGPPSとの関係 ─ ROBO3の異常が起こすヒトの病気
ここまでは主にマウスやショウジョウバエの話でしたが、ROBO3はヒトの病気とも直接結びついています。2004年、水平注視麻痺と進行性側弯症(HGPPS)という病気の患者さんで、ROBO3遺伝子の変異が同定されました[3]。これによって、マウスで解き明かされてきた軸索ガイダンスの仕組みが、ヒトの疾患遺伝学と一本の線でつながったのです。
HGPPS(英語名:Horizontal Gaze Palsy with Progressive Scoliosis)は、まれな常染色体潜性(劣性)遺伝の病気です。生まれつき目を水平方向に動かせない(水平注視麻痺)ことと、子どものころから進行する背骨の側弯(側弯症)を特徴とし、脳幹(橋や小脳脚)の形成異常と、一部の神経路が正中線で交叉できないことが背景にあります[11]。認知機能は保たれるとされています。原因遺伝子ROBO3は第11番染色体長腕(11q24)にあり(OMIM *608630)、この病気はHGPPS1として登録されています(OMIM #607313)[10][11]。両親からそれぞれ変異を受け継いだ(ホモ接合または複合ヘテロ接合の)場合に発症します。
💡 用語解説:常染色体潜性(劣性)遺伝と複合ヘテロ接合
常染色体潜性(劣性)遺伝とは、2つで対になっている遺伝子の両方に変化があって初めて症状が出るタイプの遺伝形式です。片方だけに変化がある人(保因者)は、ふつう症状が出ません。両方の変化が同じ場合を「ホモ接合」、父方と母方で別々の変化を受け継いだ場合を「複合ヘテロ接合」と呼びます。HGPPSでは、どちらのパターンでも発症しうることが報告されています。
なお、HGPPSと同じような症状は、ROBO3以外の遺伝子の変化でも起こりうることが分かっています。たとえば、Netrin-1の受容体であるDCC遺伝子の変異による型は、HGPPS2(OMIM #617542)として区別されています[13]。同じような見た目の症状でも、原因となる遺伝子が異なることがあるという点は、正確な診断を考えるうえで重要です。HGPPSの診断では、特徴的な眼の所見と脳幹のMRI所見が手がかりとなり、ROBO3遺伝子の解析によって確定されます。
正中線での軸索の交叉がうまくいかない、という共通のテーマは、HGPPSだけでなく、左右の手が鏡のように同時に動いてしまう「先天性鏡像運動」など、他の神経発生の疾患とも通じています。先天性鏡像運動では、Netrin-1(NTN1)やその受容体DCCといった、軸索を正中線へ導く分子の変化が関わることが知られています。原因分子は異なっても、「軸索が左右をまたぐ配線をどう作るか」という視点で、これらの疾患は地続きにつながっています。
8. 進化と命名の注意 ─ 混同しやすいポイント
ROBO3を理解するうえで、避けて通れない「ややこしさ」がいくつかあります。臨床遺伝専門医として文献を読むときにも、ここは特に気をつける必要がある部分です。
哺乳類のROBO3と、他の生き物のROBO3は同じではない
1つめは、進化の問題です。哺乳類のROBO3はSLITを結合しませんが、これは進化の途中で獲得された性質です。2014年の研究では、哺乳類以外の脊椎動物ではROBO3がSLITを結合できる一方、哺乳類のROBO3ではIg1ドメインのアミノ酸置換によってSLIT結合能が失われたことが示されました[6]。つまり、「ROBO3はSLITに結合するか」という問いの答えは、どの生き物の話かによって変わるのです。
さらに、昆虫であるショウジョウバエのRobo3は、名前こそ同じでも哺乳類のROBO3とは別の働きをします。2025年に報告された研究では、ショウジョウバエRobo3が、SLITに依存しない形で、体の前後方向に走る軸索(縦走路)の配置を制御することが直接示されました[9]。哺乳類でのSLIT結合能の喪失とNELLリガンドの獲得、そして昆虫Robo3のSLIT非依存の働きを、どう進化的に結びつけるかは、今も重要な研究テーマです。「Robo3がSLITに結合する」という一文だけでは、どの生き物・どの年代の話か分からず、現代の哺乳類モデルでは誤りになりうる、という点は押さえておきたいところです。
Robo3A/Robo3Bと、ROBO3.1/ROBO3.2は別の分類
2つめは、命名の混乱です。古い文献には「Robo3A/Robo3B」という名称も登場しますが、これはN末端側の違いを含む別のアイソフォームの記述から生じた呼び名で、後で述べたC末端スプライスによる「ROBO3.1/ROBO3.2」という分類と、機械的に同じものと見なすべきではありません。文献を読み比べるときは、「Robo3A=ROBO3.1」のように単純に置き換えず、論文ごとに配列やエクソン、使われた構築物を確認する必要があります。こうした細かな用語の確認は地味ですが、情報を正しく統合するうえで欠かせません。
9. 遺伝診療との接点 ─ 用語の理解が臨床にどうつながるか
SLIT-ROBOやROBO3は、発生神経科学の基礎研究から生まれた概念ですが、遺伝診療の現場ともいくつかの点でつながっています。もっとも直接的なのは、ROBO3の両アレル変異がHGPPSという遺伝性疾患を起こす、という点です。ROBO3遺伝子の解析は、特徴的な眼の症状と脳幹のMRI所見を裏づけ、診断を確定するために用いられます。そして診断が確定すれば、眼科的な経過観察や、進行する側弯症への整形外科的な対応、そして遺伝カウンセリングにつなげることができます。
用語ページとしての本題からは少し広がりますが、SLIT-ROBOの考え方は、遺伝子の変化をどう読み解くかという姿勢とも地続きです。ROBO3のように、同じ遺伝子から役割の違う型(スプライスアイソフォーム)がつくり分けられる場合、「どの型が、いつ、どこで働くか」まで踏み込まないと、その変化の意味が見えてきません。これは、同じ遺伝子でも変異の性質によって解釈が変わりうるという、遺伝性疾患の診療における基本的な考え方とも通じるものです。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。話し合う内容は、検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、そしてどのような選択肢があるのか、といった点です。なお、SLIT-ROBOやNELL2そのものは基礎研究が中心の領域であり、日常の診療で直接検査する対象ではありません。ここでは、正中線での軸索の交叉に関わる遺伝性疾患(HGPPSなど)を理解するための土台として位置づけています。正確な診断に基づいて選択肢を検討できるよう、判断材料を中立の立場で整理します。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
10. よくある誤解
誤解①「ROBOという名前だからSLITの受容体」
ROBO1・ROBO2はSLITの受容体ですが、哺乳類のROBO3はSLITを結合しません。代わりにNELL2という別のリガンドを使います。名前だけで判断すると誤ります。
誤解②「Robo3はどの生き物でも同じ働き」
哺乳類以外の脊椎動物ではROBO3がSLITを結合し、昆虫のRobo3はSLITに依存しない別の役割をもちます。どの生き物の話かで意味が変わります。
誤解③「ROBO3.1とROBO3.2は同じもの」
細胞外側は同じでどちらもNELL2を結合しますが、NELL2反発を伝えるのはROBO3.1だけです。細胞内側のC末端の違いが、働きの違いを生みます。
誤解④「結合すれば必ず効く」
NELL2は3つ集まってROBO3を束ねることで反発を強めます。三量体をつくれないNELL2は、結合はしても反発の力が大きく落ちます。結合と効き目は同じではありません。
まとめ ─ 「反発」を巧みに使い分ける配線の仕組み
SLIT-ROBOシグナルは、分泌タンパク質SLITと受容体ROBOが組みになって、発生中の軸索を反発させ、神経系の配線を空間的に導く仕組みです。とくに正中線では、「渡る前は反発を抑え、渡った後は反発を効かせる」という時間差の切り替えによって、軸索が正しく左右をまたぎ、二度と戻らないように制御されています。
この物語の主役のひとつが、哺乳類ではSLITを結合しないという例外的なROBO3です。ROBO3はNELL2という別のリガンドを使って反発を伝え[7]、同時にSLIT反発を抑え、Netrin誘引を後押しするという、複数の情報を束ねる多機能ハブとして働きます。そのROBO3が働かないと、ヒトではHGPPSという病気が起こります[3]。基礎研究で解き明かされた分子の仕組みが、ヒトの疾患理解へとまっすぐつながっている――SLIT-ROBOは、その代表的な例のひとつだといえます。今後、より詳しい構造解析や、まだ特定されていないROBO3.1特有の相棒分子の同定が進めば、この配線の仕組みの理解はさらに深まっていくでしょう。
よくある質問(FAQ)
Q1. SLIT-ROBOシグナルとは何ですか?
SLIT-ROBOシグナルとは、分泌タンパク質SLIT(スリット)と受容体ROBO(ロボ)が結びついて、発生中の神経細胞の軸索を反発させ、進む方向を決める仕組みのことです。とくに脳や脊髄の正中線(体の左右を分ける中央のライン)を、軸索がいつ渡り、渡った後は戻らないようにするかを制御しています。哺乳類ではSLITが主にROBO1とROBO2に結合して反発を起こします。
Q2. ROBO3はなぜ特殊なのですか?
哺乳類のROBO3は、名前はROBOの仲間でありながら、SLITを直接結合しないためです。代わりにNELL2という別のリガンドを使って軸索を反発させます。さらにROBO3は、ROBO1/2によるSLIT反発を抑え、Netrin-1による誘引を間接的に後押しし、NELL2の反発を伝えるという、3つの役割を同時に担う多機能な受容体です。
Q3. ROBO3.1とROBO3.2はどう違うのですか?
どちらもROBO3遺伝子から選択的スプライシングでつくられる型で、細胞外側の部分は同じですが、細胞内側のC末端が異なります。ROBO3.1は正中線を渡る前・渡っている最中の軸索に、ROBO3.2は渡った後の軸索に現れます。両方ともNELL2を結合できますが、NELL2による反発を実際に伝えられるのはROBO3.1だけであることが、2020年の研究で示されています。
Q4. HGPPSとはどんな病気ですか?
HGPPS(水平注視麻痺と進行性側弯症)は、ROBO3遺伝子(OMIM *608630、第11番染色体)の両アレルの変異によって起こる、まれな常染色体潜性(劣性)遺伝の病気です。生まれつき目を水平方向に動かせないことと、子どものころから進行する背骨の側弯を特徴とし、脳幹の形成異常と、一部の神経路が正中線で交叉できないことが背景にあります。認知機能は保たれるとされています。診断は特徴的な眼の所見と脳幹のMRI、そしてROBO3遺伝子の解析によって確定されます。
Q5. SLIT-ROBOやROBO3は検査で調べられますか?
SLIT-ROBOやNELL2そのものは基礎研究が中心の分野で、日常の診療で直接検査する対象ではありません。一方、ROBO3の変異が疑われるHGPPSのような遺伝性疾患では、特徴的な症状やMRI所見を手がかりに、ROBO3遺伝子の解析によって診断が確定されることがあります。気になる症状や家族歴がある場合は、臨床遺伝専門医による遺伝カウンセリングの中で、どの検査が適切かを含めて相談することができます。
参考文献
- [1] Brose K, Bland KS, Wang KH, et al. Slit proteins bind Robo receptors and have an evolutionarily conserved role in repulsive axon guidance. Cell. 1999;96(6):795-806. doi:10.1016/S0092-8674(00)80590-5. [PubMed 10102268]
- [2] Sabatier C, Plump AS, Ma L, et al. The divergent Robo family protein rig-1/Robo3 is a negative regulator of slit responsiveness required for midline crossing by commissural axons. Cell. 2004;117(2):157-169. doi:10.1016/S0092-8674(04)00303-4. [PubMed 15084255]
- [3] Jen JC, Chan WM, Bosley TM, et al. Mutations in a human ROBO gene disrupt hindbrain axon pathway crossing and morphogenesis. Science. 2004;304(5676):1509-1513. doi:10.1126/science.1096437. [PubMed 15105459]
- [4] Morlot C, Thielens NM, Ravelli RBG, et al. Structural insights into the Slit-Robo complex. Proc Natl Acad Sci U S A. 2007;104(38):14923-14928. doi:10.1073/pnas.0705310104. [PubMed 17848514]
- [5] Chen Z, Gore BB, Long H, Ma L, Tessier-Lavigne M. Alternative splicing of the Robo3 axon guidance receptor governs the midline switch from attraction to repulsion. Neuron. 2008;58(3):325-332. doi:10.1016/j.neuron.2008.02.016. [PubMed 18466743]
- [6] Zelina P, Blockus H, Zagar Y, et al. Signaling switch of the axon guidance receptor Robo3 during vertebrate evolution. Neuron. 2014;84(6):1258-1272. doi:10.1016/j.neuron.2014.11.004. [PubMed 25433640]
- [7] Jaworski A, Tom I, Tong RK, et al. Operational redundancy in axon guidance through the multifunctional receptor Robo3 and its ligand NELL2. Science. 2015;350(6263):961-965. doi:10.1126/science.aad2615. [PubMed 26586761]
- [8] Pak JS, DeLoughery ZJ, Wang J, et al. NELL2-Robo3 complex structure reveals mechanisms of receptor activation for axon guidance. Nat Commun. 2020;11:1489. doi:10.1038/s41467-020-15211-1. [PMC7083938 / PMID 32198364]
- [9] Carranza A, Howard LJ, Brown HE, Ametepe AS, Evans TA. Slit-independent guidance of longitudinal axons by Drosophila Robo3. Dev Biol. 2025;521:14-27. doi:10.1016/j.ydbio.2025.01.017. [PubMed 39909366]
- [10] ROUNDABOUT GUIDANCE RECEPTOR 3; ROBO3. OMIM. [OMIM 608630]
- [11] GAZE PALSY, FAMILIAL HORIZONTAL, WITH PROGRESSIVE SCOLIOSIS 1; HGPPS1. OMIM. [OMIM 607313]
- [12] Morlot C, Cusack S, McCarthy AA. Complex between the second LRR domain of Slit2 and the first Ig domain from Robo1. RCSB Protein Data Bank. PDB ID: 2V9T. doi:10.2210/pdb2V9T/pdb. [PDB 2V9T]
- [13] Jamuar SS, Schmitz-Abe K, D’Gama AM, et al. Biallelic mutations in human DCC cause developmental split-brain syndrome. Nat Genet. 2017;49(4):606-612. doi:10.1038/ng.3804. [PubMed 28250456]






