

目次

📍 クイックナビゲーション
遺伝子と聞くと「その遺伝子が壊れると病気になる」というイメージを持たれる方が多いと思います。ところがNMT1(エヌ・エム・ティー・ワン)遺伝子は、少し違った意味で医学の最前線にいる遺伝子です。NMT1は、細胞の中で作られた無数のタンパク質に「あぶら(脂肪酸)」の小さなタグを付け、正しい場所へ運ぶ「N-ミリストイル化(エヌ・ミリストイルか)」という化学反応を担う酵素の設計図です。このはたらきは、がん・神経・感染症の研究や創薬標的として注目されています。
この記事では、NMT1がどんな遺伝子で、「タンパク質を細胞膜につなぐ」という役割がなぜそれほど大切なのか、そしてがん領域で臨床開発中のゼレニルスタットや、NMT阻害薬をペイロードに用いる次世代の抗体薬物複合体(ADC)といった最新の治療開発までを、一般の方にもわかる言葉で、遺伝専門医の立場から順を追ってお伝えします。
- ➤ NMT1遺伝子が作る酵素の役割——「タンパク質を膜につなぐ」しくみ
- ➤ リボソームの出口で起きる、精巧な酵素のバトンリレー
- ➤ がんがNMT1に依存する理由と「合成致死」というアキレス腱
- ➤ 記憶・シナプス、そしてウイルスやマラリアとの意外な関わり
- ➤ 経口薬ゼレニルスタットと、次世代ADCという新しい治療の流れ
🧬Q. NMT1遺伝子とは何ですか?
17番染色体にある遺伝子で、「N-ミリストイルトランスフェラーゼ1」という酵素の設計図です。この酵素は、たくさんのタンパク質に炭素14個の脂肪酸(ミリスチン酸)を付けて、細胞膜にくっつきやすくします。細胞が生きていくうえで欠かせない、いわば「縁の下の力持ち」の遺伝子です。
🩺Q. なぜ治療の標的になるのですか?
一部のがん細胞では、増殖シグナルやミトコンドリアの酸化的リン酸化がNMT活性に依存しています。NMTを阻害すると、NDUFAF4の低下を介して複合体Iの形成とミトコンドリア呼吸が障害されることが示され、新しい抗がん薬の標的として研究が進んでいます。
🌸Q. NMT1が原因の遺伝病はありますか?
現時点で、NMT1単独の変異が原因とはっきり確立した遺伝性疾患は知られていません。NMT1はむしろがん・感染症などに対する「創薬の標的」として重要視されている遺伝子です。
NMT1とは——タンパク質に「あぶらのタグ」を付ける酵素
17番染色体にある「必須遺伝子」
NMT1遺伝子は、正式にはN-ミリストイルトランスフェラーゼ1(N-myristoyltransferase 1)という酵素の設計図で、ヒトでは17番染色体の長腕(17q21.31)に位置しています[1]。国際的な遺伝子データベースでは、遺伝子番号(GeneID)4836、HGNC:7857、OMIM番号 160993 として登録されています[1]。作られる酵素は496個のアミノ酸からなり、酵母から魚類、ヒトに至るまで進化的に非常によく保存されています。進化的に保存された重要な酵素であることを示しています。
ヒトには、よく似た酵素がもう一つあります。NMT1の「きょうだい」にあたるNMT2で、アミノ酸配列は約77%が共通しています[1]。ただし、この2つは完全に役割が重なっているわけではありません。マウスの実験では、NMT1を完全に欠損させると胚発生の途中で致死となることが示されており、NMT1は発生に必須の遺伝子です。一方、培養がん細胞を用いた研究では、NMT2よりもNMT1の抑制が細胞増殖に強い影響を及ぼす例が報告されています。ただしNMT1とNMT2には重なる基質と異なる基質があり、役割が完全に同じではありません。
NMT1のタンパク質には、実は長さの違う複数の型(アイソフォーム)が存在します。全長型は496個のアミノ酸からなりますが、途中から翻訳が始まる短い型も知られています[1]。全長型は先頭側の余分な部分を使ってリボソームに結びつくと考えられており、これが「生まれたてのタンパク質にその場であぶらを付ける」という後述のしくみと深く関わっています。エクソンやアミノ酸の基本を押さえておくと、こうした「同じ遺伝子から少し違うタンパク質ができる」しくみも理解しやすくなります。
NMT1は、単球や中枢神経系、肝臓、消化管など、体のさまざまな組織で作られています[1]。マウスの研究では、骨髄の細胞が正常な単球へ育つためにNMT1が欠かせないことも示されており、遺伝子ノックアウト(人工的に働かなくする実験)を通じて、その必須性が確かめられてきました。こうした幅広い発現は、あぶら付けというしくみが特定の臓器だけでなく、体じゅうの細胞の基本的な運営に組み込まれていることを示しています。
タンパク質は、作られたあとにさまざまな「飾り付け」をされて機能が整えられます(これを翻訳後修飾といいます)。N-ミリストイル化は、その飾り付けの一つで、炭素が14個つながった脂肪酸「ミリスチン酸」を、タンパク質の先頭にあるグリシンというアミノ酸にくっつける反応です。あぶらは水になじまない性質なので、このタグが付くとタンパク質は細胞膜にくっつきやすくなります。N-ミリストイル化のしくみは、別ページでさらに詳しく解説しています。
数百種類のタンパク質を膜へ運ぶ「交通整理」役
では、なぜ「あぶらのタグを付ける」ことがそれほど大切なのでしょうか。細胞の中では、タンパク質が正しく機能するために「どこにいるか(局在)」が決定的に重要です。NMT1がミリストイル化するタンパク質は、細胞内の多数のタンパク質が対象となり、ヒトのプロテオームのおよそ0.5%前後がN-ミリストイル化を受けるとする推定もあります[1]。その中には、細胞の増殖シグナルを伝えるチロシンキナーゼの仲間であるSrc(サーク)、エネルギー状態を監視するAMPK、細胞内の情報伝達に関わるGタンパク質など、いずれも生命活動の要となるタンパク質が数多く含まれています[1]。
あぶらのタグが付くことで、これらのタンパク質は正しい膜に着地し、そこで初めて仕事を始められます。逆にいえば、NMT1のはたらきが止まると、多くのタンパク質が行き場を失い、機能できなくなるということです。NMT1が「縁の下の力持ち」であると同時に、創薬の標的として狙われる理由は、まさにこの「たくさんの重要タンパク質の運命を一手に握っている」という一点にあります。
ここで、遺伝子と病気の関係について少し整理しておきます。遺伝子の多くは、OMIM(遺伝性疾患のデータベース)に「この変異がこの病気を起こす」という形で登録されています。ところがNMT1については、現時点で単純な「原因遺伝子」として確立した単一遺伝子疾患は知られていません。NMT1が発生や細胞機能に重要な遺伝子であることは実験系で示されていますが、それだけを理由にヒトで遺伝性疾患が成立しないと断定することはできません。一方、後天的にがん細胞や病原体がNMTのはたらきを利用・依存する場面では、治療標的として研究されています。
NMT1は「壊れると病気になる遺伝子」というより、細胞にとって欠かせないはたらきをするからこそ、その活動を薬で狙うと病気の細胞を弱らせられる——そんなタイプの遺伝子です。この視点の切り替えが、NMT1を理解するうえでの入口になります。
はたらくしくみ——「二段構え」の精密な化学反応
決まった順番で材料を受け取る
NMT1の反応は、二つの材料を「決まった順番」で受け取る、きちんと段取りされた化学反応です。まず、あぶらを渡す側の材料であるミリストイルCoA(ミリスチン酸と補酵素Aが結びついたもの)が酵素にくっつきます。すると酵素の形がわずかに変わり、相手のタンパク質を受け入れるためのポケットが開きます。次に、標的となるタンパク質の先頭のグリシンがそこに入り、あぶらが受け渡されます。最後に、役目を終えた補酵素Aがまず離れ、続いてあぶらのタグが付いたタンパク質が出ていって、一つのサイクルが完結します。
では、NMT1はどのタンパク質を選んで飾り付けるのでしょうか。カギは、タンパク質の先頭に並ぶアミノ酸の「合言葉(コンセンサス配列)」です。典型的には、開始メチオニンの直後にグリシンがあり、その後に続く数残基の配列もNMTによる認識に影響します[5]。開始メチオニンは反応の前にメチオニンアミノペプチダーゼによって切り取られ、露出したN末端グリシンがミリストイル化の標的になります。
長いあいだ、N-ミリストイル化は先頭のグリシンに一度付いたら外れない「消せないタグ」だと考えられてきました。ところが近年、NMT1がタンパク質内部のリジンというアミノ酸にもあぶらを付けることが分かってきました[5]。代表例が、細胞内の物流を担うARF6というGタンパク質です。しかもこのリジンのタグは、サーチュイン(SIRT2)という酵素によって外すことができます[5]。つまり、付けたり外したりできる「消せるタグ」=スイッチとしても働いていたのです。
薬は酵素の「ポケット」に深く入り込む
NMT1の立体構造の研究が進んだことで、この酵素をピンポイントで止める薬の設計が可能になりました。開発された強力なNMT阻害薬(IMP-1088やDDD85646など、いずれも研究用の化合物です)は、NMTの基質結合ポケットに結合して酵素活性を阻害します。こうした化合物を用いた構造・薬理研究の積み重ねが、臨床開発中のNMT阻害薬につながっています。
近年、無機ポリリン酸がNMT2に結合して酵素活性を用量依存的に低下させることが報告されました[12]。ただし、この知見はNMT2について示されたものであり、NMT1にも同じ調節機構があるとは現時点では確認されていません。NMTファミリーの活性調節には未解明の点が残っており、今後の検証が必要です。
リボソームでの修飾——生まれたての瞬間に付くタグ
細胞の中でのN-ミリストイル化の大部分は、タンパク質がリボソーム(タンパク質を作る工場)で作られ、生まれたての鎖が出口から顔を出すまさにその瞬間に進みます。これを「共翻訳的(きょうほんやくてき)修飾」と呼びます。近年、この現場でどんなことが起きているのかが、クライオ電子顕微鏡による構造解析で詳しく示されました[2]。
酵素が「バトンリレー」で入れ替わる
タンパク質があぶらのタグを受け取るには、まず先頭のメチオニンが切り取られ、次のグリシンが顔を出さなければなりません。この切り取りを行う酵素(METAP1)と、あぶらを付けるNMT1は、リボソームの同じ場所に結合するため、同時に働くことができません[2]。そこで登場するのが、リボソームの出口に常駐している「新生ポリペプチド関連複合体(NAC)」という交通整理役です。NACがまずメチオニンを切る酵素を呼び、仕事が終わると、同じ場所に今度はNMT1を招き入れます。この精密なバトンリレーによって、露出したばかりのグリシンに、NMT1がすかさずあぶらのタグを付けるという段取りが成立しているのです[2]。
図1:リボソーム出口での「酵素バトンリレー」
① 鎖が出てくる
リボソームから生まれたての鎖が顔を出す
② Met切除
NACがMETAP1を招き、先頭メチオニンを切除
③ 入れ替え
METAP1が外れ、同じ場所にNMT1が結合
④ あぶら付加
露出したグリシンにミリスチン酸を付ける
NAC(交通整理役)が酵素を順番に招き入れることで、切除と修飾が滞りなく進む。
このしくみが乱れると、本来あぶらのタグを付けるべきタンパク質が正しく処理されず、細胞の中でタンパク質の品質管理(プロテオスタシス)が崩れてしまいます。NMT1は単なる「あぶら付け係」ではなく、新生タンパク質の適切な修飾に関わる因子としての側面も持っていることが、こうした研究から見えてきました[2]。
がんとの関わり——増殖とエネルギーの「二重の急所」
一部のがんではNMT活性への依存性が高まる
大腸がん、乳がん、肺がんなど、さまざまながんでNMT1の発現上昇や、臨床病理学的因子・予後との関連が報告されています[3]。その代表的な理由が、Srcという発がんに関わるチロシンキナーゼです。NMT1がSrcにあぶらのタグを付けると、Srcが細胞膜に移って活性化し、細胞の増殖と浸潤を強く後押しします[3]。さらにNMT1は、細胞の成長を調節するmTORC1の活性化にも関わっています。NMT1が阻害されると、mTORC1が働けなくなり、細胞内の掃除係であるオートファジーも停滞して、最終的にアポトーシス(細胞死)が引き起こされます[3]。
「合成致死」というがんのアキレス腱
血液がんに対するNMT阻害の研究で注目されている考え方の一つが、「合成致死性(ごうせいちしせい)」です[4]。合成致死とは、2つの遺伝子のうち片方が欠けても大丈夫だが、両方がそろって働けなくなると細胞が死ぬ、という関係のことです。合成致死性のくわしい説明は用語ページもご覧ください。
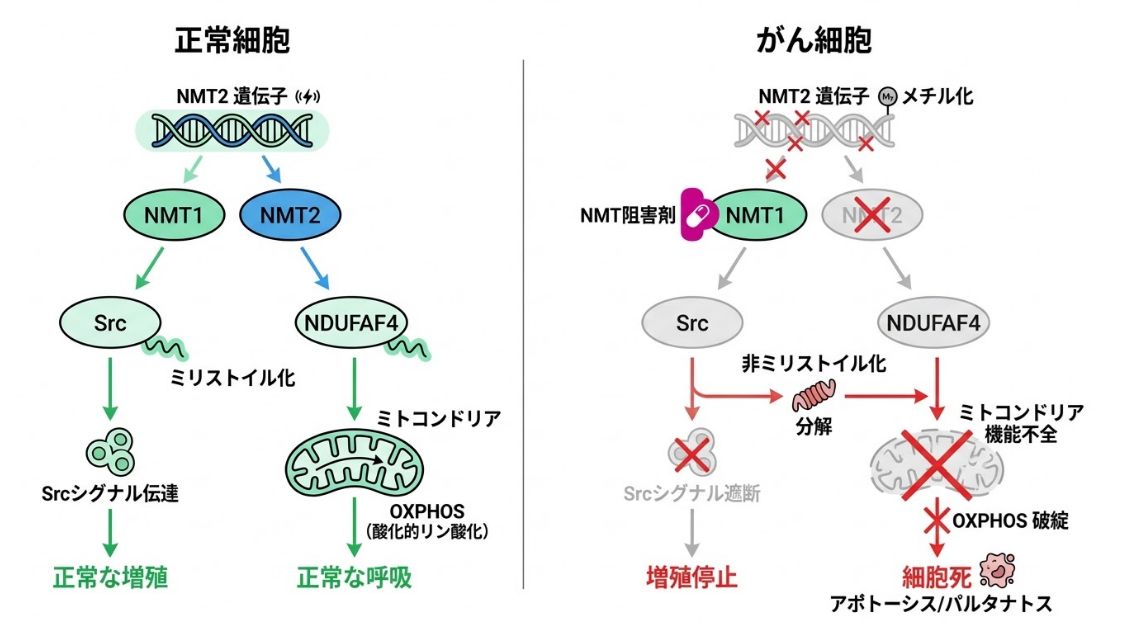
図:NMT2が抑制されたがん細胞では、NMT1への依存性が高まる。NMT阻害剤でNMT1を止めると、増殖シグナル(Src)とエネルギー産生(ミトコンドリアの複合体I/OXPHOS)の両方が同時に断たれ、がん細胞は「二重の兵糧攻め」の状態に陥って細胞死へと傾く。これがNMT1が有望な治療標的とされる理由である。
一部の血液がん、とくにリンパ腫などでは、きょうだい遺伝子であるNMT2の発現が低下していることがあり、リンパ腫ではDNAメチル化などのエピジェネティックな抑制がその一因として示されています[6]。こうしたNMT2低発現のがん細胞はNMT1への依存性が高く、NMT1とNMT2の両方を阻害するpan-NMT阻害薬PCLX-001に高い感受性を示すことが報告されています[4]。研究者らはこの選択性を「合成致死に類似した作用」として説明しており、NMT1とNMT2が古典的な意味で確立した合成致死遺伝子対であると断定するのは適切ではありません。
意外な急所は「ミトコンドリアの呼吸」だった
NMT阻害によるがん細胞死の機序を、CRISPRによる遺伝子解析と網羅的なタンパク質解析を組み合わせて調べた研究では、Srcなどの増殖シグナルに加えて、ミトコンドリアの酸化的リン酸化が大きく障害されることが示されました[6]。あぶらのタグが付かないタンパク質は、先頭のグリシンが目印になって速やかに分解されてしまいます。その影響を最も強く受けるのが、ミトコンドリアの複合体Iという発電装置を組み立てる「NDUFAF4」というタンパク質でした[6]。
図2:NMT1を止めると、がん細胞は「二重の兵糧攻め」になる
NMT1を阻害
あぶらのタグが付かなくなる
増殖シグナル低下
Srcなどが膜へ行けず活性化できない
呼吸が低下
NDUFAF4が減り複合体Iが崩れる
がん細胞死
エネルギー代謝が障害され細胞死に傾く
増殖の合図とエネルギー産生の両方を同時に断つのが、NMT1阻害の特徴です。
複合体Iが組み立てられなくなると、ミトコンドリアの酸化的リン酸化(ミトコンドリアでATPを産生する主要経路)が低下します[6]。増殖シグナルとエネルギー代謝の双方が障害されることが、NMT阻害による抗腫瘍作用の一部を説明すると考えられています[6]。どのがんがこの攻撃に弱いかを予測するため、54個の遺伝子からなる「MISS-54」という感受性の目印(バイオマーカー)も見つかっており、白血病・肺がん・卵巣がん・大腸がんなどで感受性が高いことが示されています[6]。
NMT1は、すべてのがんで一律に「悪玉」というわけではありません。一部の非小細胞肺がんでは、逆にNMT1・NMT2の発現が下がっている報告もあり、マイクロRNAによる調節が上皮間葉転換(EMT)に関わる可能性が指摘されています。がんの種類によってはたらきが変わるため、一律の阻害がすべての患者さんに有益とは限らない、という点は大切です。
神経・感染症——記憶づくりから病原体まで
記憶とシナプスを支えるあぶらのタグ
NMT1のはたらきは、がんや感染症だけでなく、記憶の形成にも関わっていることが分かってきました。脳の神経細胞では、記憶や学習の土台となる「長期増強(LTP)」という現象が起きるとき、DDHD2という酵素が細胞膜からミリスチン酸を切り出して供給します[7]。このミリスチン酸をNMT1とNMT2が使って、シナプスの可塑性に直結するタンパク質(NMDA受容体のGluN1、MAP2、GAS7など)にあぶらのタグ(リジンのミリストイル化)を付けます[7]。実際、動物モデルでこのしくみを薬でブロックすると、学習にともなう記憶の定着や、脳スライスでのLTPの成立が妨げられました[7]。
長期増強(long-term potentiation:LTP)は、神経細胞どうしのつながりであるシナプスが、繰り返し刺激を受けたあと長時間にわたって信号を伝えやすくなる現象です。学習や記憶を支える代表的な細胞メカニズムとして研究されています。
N-ミリストイル化は神経系でも重要なタンパク質修飾であり、近年は上記のようにシナプス可塑性や記憶形成との直接的な関係が実験的に示されています。一方、NMT1の異常がアルツハイマー病やハンチントン病などの神経変性疾患を直接引き起こすことや、NMT1そのものが神経変性疾患の確立した治療標的であることまでは示されていません。神経疾患との関係については、今後の基礎研究と検証が必要です。
ウイルスや寄生虫に「乗っ取られる」NMT1
多くのウイルスは自前のN-ミリストイル転移酵素を持たず、宿主細胞のNMTを利用してウイルスタンパク質を修飾します。たとえばHIV-1(ヒト免疫不全ウイルス1型)では、GagやNefのN-ミリストイル化がウイルスの増殖・病原性に重要で、NMT1とNMT2の両方が基質を修飾し得ることが示されています[11]。また、NMT1のノックダウンによりHIV-1産生が低下することも報告されています[8]。ラッサ熱ウイルスなどの一部のウイルスでも、宿主のNMT1が増殖に必要とされることが知られています。
マラリアを起こす原虫やリーシュマニアといった寄生虫は、自分専用のNMT遺伝子を持っており、これが生存に欠かせないため、有望な創薬標的とされてきました。寄生虫のNMTを止めると、原虫は自らの膜構造を正しく作れなくなり、死滅に向かいます。課題は、寄生虫のNMTとヒトのNMT1が、薬が結合する部分でほとんど同じ構造をしているため、ヒトに害を与えずに寄生虫だけを狙う化合物を設計するのが非常に難しいことです。
この難問に対して、近年はポケットのすぐ近くにあるごくわずかな構造の違いを手がかりに、寄生虫のNMTに強く、ヒトのNMT1には弱く結びつくよう分子を作り分ける研究が進んでいます。ヒトの酵素への結合をあえて下げることで、寄生虫だけを選んで攻撃する「選択性」を高めるという考え方です。寄生虫NMTとヒトNMTの構造差を利用して選択性を高める——この繊細な線引きが、抗マラリア薬などの開発における最大の腕の見せどころになっています。
最新の治療開発——経口薬と次世代ADC
経口NMT阻害薬「ゼレニルスタット」
NMT1の重要性の解明が進み、実際にヒトで試される薬が登場しました。カナダのパシレックス社が開発したゼレニルスタット(zelenirstat/開発コードPCLX-001)は、飲み薬として使えるNMT1/NMT2阻害薬です[9]。増殖の合図(Srcなど)とエネルギー(ミトコンドリアの複合体I)を同時に断つ、二つの作用を併せ持つ点が特徴です[9]。
進行した固形がんと、再発・難治性のB細胞リンパ腫を対象とした最初の第1相試験(29人が参加)では、1日20mgから280mgまで用量を上げて安全性が調べられました[9]。その結果、280mgでは下痢などの消化器症状が出やすく、推奨される用量は1日210mgと定められました[9]。治療の選択肢が尽きた患者さんのうち約28%で病状が安定し、210mgを飲んだグループでは、より低い用量のグループと比べて無増悪生存期間・全生存期間が良好だったと報告されています[9]。再発・難治性の急性骨髄性白血病(AML)を対象とした第1相試験(NCT06613217)もClinicalTrials.govに登録されています。ただし、いずれも研究段階の薬であり、まだ一般の診療で使える承認薬ではありません。
NMT阻害薬を「弾頭」に使う次世代ADC
もう一つの大きな流れが、NMT阻害薬を抗体薬物複合体(ADC)の「ペイロード(弾頭となる薬物)」として使うという発想です。ADCは、がん細胞をねらう抗体に薬物を結びつけ、がん細胞へピンポイントで届ける仕組みです。現在承認されているADCのペイロードは、微小管阻害薬やトポイソメラーゼI阻害薬など限られた種類にとどまっており、がんがこれらに耐性を獲得することが臨床の壁になってきました。
この課題に対し、英国のバイオ企業マイリックス社(Myricx Bio)は、強力なNMT阻害薬をペイロードに用いた「NMTi-ADC」を開発してきました。2026年7月、スイスの製薬企業ノバルティスがこのマイリックス社を買収することで合意したと発表しています[10]。ノバルティスの公式発表によれば、前払い金11億ドル、条件付きマイルストーン最大4億ドル(総額最大15億ドル)で、B7-H3やHER2を標的とする2つの主要なADC資産とNMTiペイロード基盤を取得する内容で、2026年後半のクロージングを見込むとされています[10]。NMT阻害が特定の単一経路だけに頼らない作用を持つことから、既存のペイロードに耐性を持ったがんにも有効となる可能性が期待されています[10]。
NMT1/NMT2を標的とする創薬は、現在経口薬から次世代ADCまで、複数の方向から治療開発が進む注目の標的になりました。一方で、これらはいずれも臨床試験や前臨床の段階にあり、日常診療で使える段階には至っていません。臨床的な有効性と安全性については、今後の試験結果を確認する必要があります。
よくある質問(FAQ)
🏥 遺伝子や遺伝性疾患について、正確な情報に基づくご相談を
遺伝子や遺伝性疾患、遺伝子検査の解釈に関するご相談は、臨床遺伝専門医が運営するミネルバクリニックへ。検査の設計から結果の説明、遺伝カウンセリングまで、終始責任をもって支援します。
🏥 ミネルバクリニックの特徴
臨床遺伝専門医が運営する、遺伝医療を専門的に提供する医療機関です
✓ 遺伝子検査の設計・結果説明・遺伝カウンセリングまで一貫対応
✓ 必要な検査をターゲット法で精度よく行うことを重視
✓ 生涯にかかわる情報だからこそ、スピードより「正確性」を最優先
「医学的根拠に基づく遺伝医療を提供します」
関連記事
参考文献
- [1] N-MYRISTOYLTRANSFERASE 1; NMT1. OMIM. [OMIM 160993]
- [2] Gamerdinger M, et al. Mechanism of cotranslational protein N-myristoylation in human cells. Mol Cell. 2025;85(14):2749-2758.e8. doi:10.1016/j.molcel.2025.06.015. [PubMed 40639378]
- [3] Wang H, Xu X, Wang J, et al. The role of N-myristoyltransferase 1 in tumour development. Ann Med. 2023;55(1):1422-1430. doi:10.1080/07853890.2023.2193425. [PMC10161948]
- [4] Beauchamp E, et al. Targeting N-myristoylation for therapy of B-cell lymphomas. Nat Commun. 2020;11:5348. doi:10.1038/s41467-020-18998-1. [PMC7582192]
- [5] Kosciuk T, et al. NMT1 and NMT2 are lysine myristoyltransferases regulating the ARF6 GTPase cycle. Nat Commun. 2020;11:1067. doi:10.1038/s41467-020-14893-x. [PMC7044312]
- [6] Beauchamp E, et al. Multiomics analysis identifies oxidative phosphorylation as a cancer vulnerability arising from myristoylation inhibition. J Transl Med. 2024;22:431. doi:10.1186/s12967-024-05150-6. [PubMed 38715059]
- [7] Matthews B, et al. Lysine myristoylation mediates long-term potentiation via membrane enrichment of synaptic plasticity effectors. EMBO J. 2025;44(15):4196-4221. doi:10.1038/s44318-025-00484-3. [PMC12316903]
- [8] Ohta H, Takamune N, Kishimoto N, Shoji S, Misumi S. N-Myristoyltransferase 1 enhances human immunodeficiency virus replication through regulation of viral RNA expression level. Biochem Biophys Res Commun. 2015;463(4):988-993. [PubMed 26074144]
- [9] Sangha R, et al. A first-in-human phase I trial of daily oral zelenirstat, a N-myristoyltransferase inhibitor, in patients with advanced solid tumors and relapsed/refractory B-cell lymphomas. Invest New Drugs. 2024;42(4):386-393. doi:10.1007/s10637-024-01448-w. [PMC11327210]
- [10] Novartis agrees to acquire Myricx Bio to advance next-generation antibody-drug conjugate innovation with a novel NMTi payload. Novartis Media Release. 2026. [Novartis]
- [11] Seaton KE, Smith CD. N-Myristoyltransferase isozymes exhibit differential specificity for human immunodeficiency virus type 1 Gag and Nef. J Gen Virol. 2008;89(Pt 1):288-296. doi:10.1099/vir.0.83412-0. [PubMed 18089753]
- [12] Martins I, Bailey K, Ge A, et al. N-Myristoyltransferase 2 Is Regulated by Polyphosphate-Driven Lysine Interactions. Biomolecules. 2026;16(8):1096. doi:10.3390/biom16081096. [DOI]






