

目次
- 1 1. ZPAとZRSはどう違うのか ─ 「組織」と「スイッチDNA」
- 2 2. 四肢の前後軸とSHH ─ 指の並びはどう決まるか
- 3 3. 約1Mbの遠隔制御 ─ 遠く離れたSHHをどう操作するのか
- 4 4. ZRSを動かす因子 ─ 複数の弱い入力の足し算
- 5 5. 親和性の「ちょうどよさ」 ─ 強すぎても病気になる
- 6 6. 三次元ゲノム ─ 離れた2点はどう出会うのか
- 7 7. 長距離専用の「暗号」 ─ 2025年の新しい発見
- 8 8. ZRSに関連する病気 ─ 多指症からウェルナー型まで
- 9 9. 進化と種間保存 ─ ヘビはなぜ脚を失ったのか
- 10 10. 遺伝診療との接点 ─ 非コード変異をどう捉えるか
- 11 よくある質問(FAQ)
- 12 参考文献
- 13 関連記事

📍 クイックナビゲーション
手の指が6本になる多指症(たしししょう)。その原因の多くが、指をつくるタンパク質そのものの設計図ではなく、「いつ・どこで・どれくらいそのタンパク質をつくるか」を決めるスイッチのDNAにあることをご存じでしょうか。そのスイッチの代表格が、この記事のテーマであるZRS(ZPA調節配列)です。名前がよく似たZPA(極性化活性帯)としばしば混同されますが、この2つは生物学的にまったく別のものです。この記事では、ZPAとZRSの違いから、約100万塩基(1Mb)も離れたSHH遺伝子を四肢だけでオンにする巧みな仕組み、そして多指症やウェルナー型中肢異形成症といった病気とのつながりまでを、臨床遺伝学の知見に基づいて解説します。
Q. ZRSとZPAは、まず何がどう違うのですか?
A. ZPA(極性化活性帯)は「組織」、ZRSは「DNAの配列」です。ZPAは、発生中の手足のもと(四肢芽)の後ろ側にある細胞の集まりで、指の並び順(前後の軸)を決める司令塔です。一方ZRSは、その司令塔でSHHという遺伝子をオンにするためのスイッチDNA(エンハンサー)です。ZRSはSHH遺伝子から約100万塩基も離れた別の遺伝子(LMBR1)の中にありますが、四肢の後ろ側でだけSHHをオンにします。このスイッチの機能を大きく失うと手足の遠位骨格が短縮し、逆に前側でも誤ってオンになると多指症が生じます。
- ➤ZPA → 手足のもとの後ろ側にある、指の配置を決める「組織(細胞の集まり)」
- ➤ZRS → そのZPAでSHHをオンにする「スイッチDNA(エンハンサー)」。LMBR1遺伝子の中にある
- ➤遠隔操作 → ZRSは約1Mb(100万塩基)離れたSHHを、四肢だけでオンにする
- ➤機能を失っても誤作動しても病気 → ZRSの機能を大きく失うと手足の遠位骨格が短縮し、前側で誤作動すると多指症
- ➤遺伝診療での意味 → 遺伝子本体ではなく非コード領域の変異のため、通常の検査で見逃されやすい
🧬 ZRS/ZPAの基本情報
| 項目 | 内容 |
|---|---|
| 読み方・正式名 | ZRS(ゼットアールエス)=ZPA regulatory sequence/ZPA調節配列。ZPA(ゼットピーエー)=zone of polarizing activity/極性化活性帯 |
| それぞれの正体 | ZPAは組織(細胞の集まり)、ZRSはDNAの配列(エンハンサー)。階層がまったく異なる |
| ZRSの場所 | LMBR1遺伝子のイントロン内。制御する相手のSHH遺伝子からは約0.8〜1Mb(80万〜100万塩基)離れている[1][2] |
| 主なはたらき | 四肢芽の後ろ側でだけSHHをオンにする。指の前後軸(親指側〜小指側の並び)を形づくる |
| 関連する病気 | 軸前性多指症(PPD)、三指節母指(TPT)、ウェルナー型中肢異形成症(WMS)、無手無足症(アカイロポディア)など[9] |
| 遺伝形式 | 多くは常染色体顕性(優性)遺伝。同じ変異でも1コピーと2コピーで重症度が変わることがある[9] |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査を勧めるものではありません。
1. ZPAとZRSはどう違うのか ─ 「組織」と「スイッチDNA」
この2つの用語は名前が似ているため混同されがちですが、生物学の階層がまったく違います。まずここをはっきりさせておくことが、以降の理解の土台になります。
ZPA(zone of polarizing activity/極性化活性帯)は、発生中の手足のもと(四肢芽=ししが)の後ろ側の縁にある、細胞の集まり(組織)です。古典的な実験で、このZPAの組織を別の四肢芽の前側に移植すると、指が鏡に映したように余分に増える(鏡像重複)ことが示され、指の並び順を決める「司令塔」として位置づけられました。つまりZPAは、手にとって触れられる細胞の領域です。
一方のZRS(ZPA regulatory sequence/ZPA調節配列)は、そのZPAでSHH遺伝子(ソニック・ヘッジホッグ)をオンにするためのDNAの配列(スイッチ)です。SHHはZPAから分泌され、指の配置を決めるシグナルの本体ですが、そのSHHを「四肢の後ろ側でだけ」つくらせる引き金がZRSなのです。1993年、リドルらは、SHHがニワトリの四肢芽のZPAに現れ、SHHを出す細胞を前側に移植するとZPA移植と同じように指が重複することを示しました。これにより、SHHがZPAの働き(polarizing activity)を担うシグナルであることが直接証明されました[3]。
💡 用語解説:エンハンサーとは
DNAには、タンパク質の設計図となる部分(遺伝子本体)のほかに、その設計図を「いつ・どこで・どれくらい使うか」を決めるスイッチの領域があります。その代表がエンハンサーで、遺伝子の発現(はたらき)を高めるDNA領域です。タンパク質の情報そのものは持たない「非コード領域」にあり、ときに数十万〜100万塩基も離れた遺伝子を操作します。ZRSは、このエンハンサーの中でも最もよく研究されてきた「教科書的な代表例」です[5]。
この関係を一言でまとめると、「ZRSがSHHの転写をオンにし、そのSHHがZPAという司令塔の働きを生む」という因果の流れになります。図で見てみましょう。
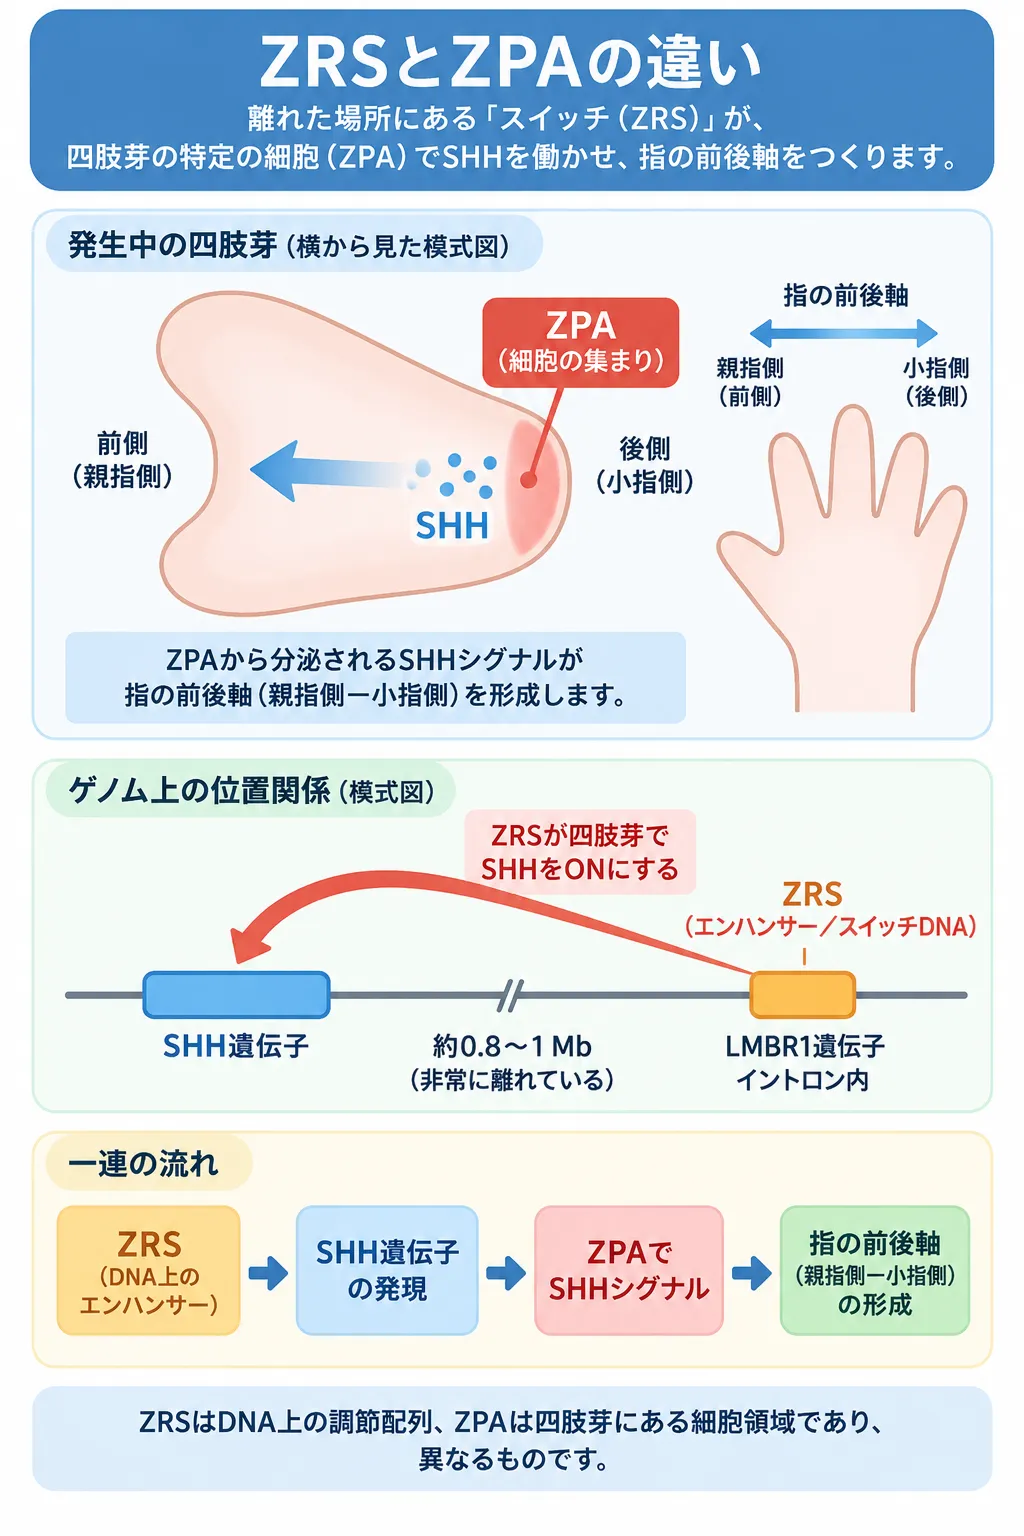
図:ZRSとZPAの違い。ZPA(極性化活性帯)は発生中の四肢芽後方にある細胞領域で、そこで発現するSHHシグナルが指の前後軸形成に重要な役割を果たします。一方、ZRS(ZPA regulatory sequence)はDNA上の調節配列で、SHH遺伝子から約0.8〜1Mb離れたLMBR1遺伝子のイントロン内に位置し、四肢芽でのSHH発現を制御する遠隔エンハンサーとして働きます。ZPAが「細胞の領域」であるのに対し、ZRSは「DNA上の調節配列」であり、両者は異なるものです。
重要なのは、ZRSは「ZPAそのもの」ではなく、ZPAでSHHを転写するためのDNA部品だという点です。マウスでZRSを取り除くと、SHH遺伝子は残っているのに、四肢芽でのSHHだけが消え、遠位の手足が大きく欠けます[4]。脳や脊髄など、他の場所でのSHHの働きはそのまま保たれます。この「四肢だけを狙い撃ちにする」性質こそが、ZRSが組織特異的なエンハンサーである何よりの証拠です。
2. 四肢の前後軸とSHH ─ 指の並びはどう決まるか
手足は、体幹に近い側から指先に向かって伸びるだけでなく、親指側(前)から小指側(後ろ)に向かう「前後の軸」を持っています。この前後軸を形づくる中心が、後ろ側にできるZPAと、そこから出るSHHです。ZPAの役割は、一本一本の指の名前を直接決めるというより、後ろから前への位置情報や、細胞の増殖・生存、ほかの発生シグナルとのやりとりを束ねて、手足全体のかたちを整えることにあります。
SHHが働く前の段階では、後ろ側という「場所の性質(後方アイデンティティ)」をつくる準備が進みます。マウスで発生初期にHOXD13などと連携する転写因子HAND2を失わせると、SHHや、その下流で働くPtch1が消え、その手足の骨格はSHHを失ったときとそっくりになります[6]。つまり、ZPAの確立は、SHHを出す前の準備段階と切り離せないのです。
SHHが後ろ側でつくられると、その濃度の勾配が前後軸に沿った情報として読み取られ、Hedgehogシグナルの応答(PTCH/GLI系)を通じて指や手のひらのパターンが決まっていきます。ここで大切なのは、後ろ側でSHHをオンにする力(活性化)と、前側でSHHを誤ってオンにさせない力(抑制)が釣り合っていることです。この抑制には、GLI3という因子のリプレッサー型(GLI3R)やETV4/ETV5などが関わります[6]。この後ろ側の活性化と前側の抑制のバランスが崩れると、前側でもSHHがつくられ、余分な指(多指症)が生じます。
🩺 院長コラム【「設計図」だけを見ていては足りない】
遺伝子検査というと、多くの方はタンパク質の設計図そのもの(遺伝子の中身)を調べるイメージをお持ちだと思います。けれども、体の形づくりでは、設計図を「いつ・どこで使うか」を決めるスイッチ側の情報が、同じくらい大切です。ZRSはそのことを鮮やかに示す例で、SHHという遺伝子は正常なのに、そのスイッチが1文字変わるだけで指の数が変わってしまいます。
遺伝医学では、「設計図が正常=遺伝学的な異常なし」とは限りません。原因が特定できない場合には、こうしたスイッチ側、つまり非コード領域まで解析対象を広げることが、原因の特定につながる場合があります。
3. 約1Mbの遠隔制御 ─ 遠く離れたSHHをどう操作するのか
ZRSの最大の特徴は、その「遠さ」です。ZRSはLMBR1という別の遺伝子のイントロン(遺伝子内部の、タンパク質にならない領域)の中にあり、制御する相手のSHHからは、DNA上でおよそ0.8〜1Mb(80万〜100万塩基)も離れています[1][2]。文献によって「約800kb」「約1Mb」と表現が分かれるのは、使う動物種やゲノムの基準、そしてZRSやSHHのどこを起点にするかの定義が違うためです。ZRSそのものの長さも、実験に使う構築物によって約0.8kb、1.3kb、1.7kbなどと幅があるので、「約800塩基の高度に保存された中心部を含む、約1〜1.7kbの領域」と理解しておくのが安全です。
この遠さは、単なる豆知識ではありません。2003年、レティスらは、LMBR1の中の高度に保存された領域が、四肢芽の後ろ側(ZPA様のパターン)でレポーター遺伝子をオンにできることを示し、ヒトの軸前性多指症の家系に見つかる点変異が、まさにこの領域に集中していることを結びつけました[5]。続いて2005年、サガイらがマウスでこの領域を丸ごと取り除くと、四肢に限ったSHHの発現が完全に消えることを示しました[4]。これにより、「レポーター実験でオンにできる」という段階から、「本来の場所(内在性)でSHHをオンにするために必要不可欠」という、より強い証拠へと進んだのです。
💡 用語解説:非コードDNAと「1文字の変異」
ヒトのゲノムのうち、タンパク質の設計図になるのはごく一部で、残りの大部分は非コードDNAと呼ばれます。かつては「役に立たない」と思われがちでしたが、ZRSのように、たった1文字(1塩基)の変化で指の数を変えてしまう強力なスイッチが、この非コード領域に隠れています。設計図そのものを調べるだけでは、こうした変異は見つけられません。
4. ZRSを動かす因子 ─ 複数の弱い入力の足し算
ZRSは、単純な「オン/オフの一つのボタン」ではありません。四肢芽の後ろ側で、たくさんの転写因子からの入力を束ねて、SHHのスイッチを入れています。現在のモデルでは、HAND2やHOXD13、ETSファミリー、複数のホメオドメイン因子などの活性化する入力と、GLI3リプレッサーやETV4/ETV5などの抑制する入力とのバランスで、SHHをつくる範囲を後ろ側の縁に限定していると考えられています。
💡 用語解説:転写因子とミスセンス変異
転写因子とは、DNAの特定の場所(結合部位)にくっついて、近くの遺伝子のスイッチを入れたり切ったりするタンパク質です。ZRSには、こうした転写因子がくっつく小さな目印(モチーフ)がいくつも並んでいます。なお、遺伝子本体で1つのアミノ酸が別のアミノ酸に置き換わる変化をミスセンス変異と呼びますが、ZRSで問題になるのは、こうしたタンパク質の変化ではなく、転写因子が「くっつく目印」側のDNAの変化です。
HAND2とHOXD13。ガリらは、遺伝子を後から切るコンディショナルノックアウトや、免疫沈降、ZRSをつないだルシフェラーゼアッセイ、クロマチン免疫沈降(ChIP)を組み合わせ、HAND2がHOXD13を含む複合体をつくり、HAND2を含むクロマチン複合体がZRSに集まることを示しました[6]。HAND2とHOXD13はZRSを介した発現を協力して高め、逆にGLI3リプレッサーはこの活性化を妨げました。この「後ろ側で高める因子」と「前側で抑える因子」のせめぎ合いが、ZRSが働く場所の選択をつくる大切な層と考えられます。
クロマチンの開閉。コヤノ・ナカガワらは、ETV2という因子がSHHの発現開始よりも先に働き、ETV2を失うとZRSを含む四肢のエンハンサー領域のDNAが開かず、SHHが消えることを示しました[7]。逆にETV2を過剰に働かせると、ZRSでヌクレオソーム(DNAの巻き取り単位)がずれて領域が開き、前側でのSHHの異所性発現と多指症が起きました。つまりETV2は、ZRSが働ける状態(開いた状態)をつくる先導役として機能し、著者らはETV2をSHH発現開始を制御するパイオニア転写因子と位置づけています。
5. 親和性の「ちょうどよさ」 ─ 強すぎても病気になる
近年、ZRSの理解を大きく更新したのが、2024年にリムらがNature誌に発表した研究です[8]。彼らは、ZRSの中にあるETS結合部位が、あえて「くっつく力(結合親和性)が弱い」配列になっていることを定量化しました。とりわけETS-Aと名づけた部位は、極端に低い親和性を持っていました。
2つのヒト変異と1つの人工的な変異は、このETS-Aの結合親和性を、最も強い配列を基準にした相対値で約15%から約25%へとわずかに引き上げるだけで、同じ浸透率と重症度の多指症を引き起こしました[8]。さらに親和性を高めると、より高い浸透率、より重い症状につながりました。つまりZRSは、「強ければ強いほど良い」のではなく、適切な親和性の範囲(窓)があるのです。この「弱く保たれた結合部位」を、変異が少しだけ最適化してしまうこと自体が、病気の原因になり得ます。
ETS-A部位の結合親和性と手足の帰結(U字型の最適点)
この考え方は、病気の原因となるDNA変化の見つけ方にも新しい視点を与えます。従来、非コード領域の変異が病気を起こすかどうかは、その配列が種を超えてどれくらい「保存されているか」で見積もられがちでした。しかしリムらの研究は、保存されているかどうかだけでなく、その変異が転写因子の結合親和性を「ちょうどよい範囲」から外していないかという、定量的な視点を加える価値を示しています[8]。
6. 三次元ゲノム ─ 離れた2点はどう出会うのか
約1Mbも離れたZRSとSHHが、どうやって相手に働きかけるのか。この謎を解く鍵が、DNAの折りたたみ(三次元構造)です。DNAはただの一本の紐ではなく、核の中で複雑に折りたたまれ、離れた場所どうしが立体的に近づくことがあります。
2016年、ウィリアムソンらは、FISH(蛍光を使ってDNAの場所を光らせる技術)や超解像顕微鏡、5C(DNAどうしの接触を測る技術)を用いて、SHHとZRSの距離を調べました[10]。すると、SHHを発現していない組織でも両者の距離は比較的短く、SHHとZRSを含むTAD(トポロジカル関連ドメイン)という「ご近所さんの区画」の中で、両者が優先的に接触していました。そして、ほぼ重なり合うほど非常に近い配置は、SHHを発現しているZPAで明らかに増えていました。つまり、「接触が発現のたびにゼロからつくられる」のではなく、あらかじめ近い配置(プリフォームド)の上に、活性化に伴うさらに近い接触が上乗せされるというモデルが合っています。
💡 用語解説:TADとループ押し出し
TADは、ゲノムの中で「同じ区画のご近所さん」としてまとまって折りたたまれる領域のことです。この区画づくりには、コヒーシンというタンパク質が、DNAを輪のように少しずつたぐり寄せる「ループ押し出し」という仕組みが関わります。区画の境界には、しばしばCTCFという「目印」タンパク質が配置されています。
では、この立体構造をつくるCTCFやコヒーシンは、どれくらい必須なのでしょうか。ここは意外と奥が深く、両者を「同じ必須度」で描かないことが大切です。2022年、ケインらは、マウスの胚性幹細胞でタンパク質を急に分解する実験と、人工的にエンハンサーを働かせる実験を組み合わせ、コヒーシンは遠く離れたエンハンサーからSHHを働かせるためには必要だが、プロモーターのすぐ近くや近距離のエンハンサーからの活性化には必須ではないことを示しました[11]。距離が遠いときにこそ、コヒーシンによる手繰り寄せが効いてくるのです。
一方でCTCFの役割は、実験系や遺伝的背景によって変わります。CTCFの目印を取り除くとSHHとZRSの接触は低下しますが、それだけでは手足の異常がはっきり出ないこともあります。しかし、弱められたZRSと組み合わさると、重いSHH機能低下と指の欠損が生じます。CTCFがつくる構造は、必須のスイッチというより、発現の頑健さ(ロバストネス)を確保する層として働くと考えられています。この「CTCFは単純に必須ではない」という結果と、ヒトで無手無足症(アカイロポディア)がCTCF部位の欠失で生じるという結果は、矛盾しません。ウシキらは、ブラジルの家系で、ZRS自体は残したまま約12kbを失う欠失を同定し、その領域にSHHとZRSの交信に関わるCTCF/コヒーシン部位があることを、4C-seqやDNA-FISH、ChIP-seqで示しました[12]。どのCTCF部位がどれほど重要かは、その場所の構造と動物種によって変わるのです。
7. 長距離専用の「暗号」 ─ 2025年の新しい発見
ZRSは約1Mbも離れた相手に働きかけるため、DNAの配列そのものだけでは仕組みは完結しません。2025年、バウアーらは、この問題をDNAの配列側から一段進める発見を報告しました[13]。彼らは、ZRSの中にある、種を超えて高度に保存された[C/T]AATTAというホメオドメイン結合の目印に注目しました。
この目印を変異させると、短距離のレポーター実験ではZRSのZPA特異的な活性は保たれたのに、本来の場所(内在性)から約1Mb離れたSHHを働かせる能力は失われ、マウスの手足はSHHやZRSを失ったときに近い重い短縮を示しました[13]。さらに、別の遺伝子(Sall1)の近くにある「レンジ・エクステンダー(REX、飛距離を伸ばす配列)」という外来の配列を加えると、長距離作用を部分的に取り戻すことができました。この研究は、「どの組織で働くかを決める配列」と「約1Mbを越えて作用できる配列」が、少なくとも部分的に別々に存在することを直接示す、重要な更新です。エンハンサーの「組織特異性」と「長距離到達性」は、切り離せる別々の性質だったのです。
💡 なぜこの発見が大切なのか
従来、非コード領域の変異が病気を起こすかどうかは、短距離のレポーター実験で活性が正常なら「無害だろう」と考えられがちでした。ところがZRSは、短距離では正常でも、本来の位置からの長距離作用だけが失われるという事態がありうることを示しています。エンハンサーの評価は、短距離の実験だけでは完結しないのです。
8. ZRSに関連する病気 ─ 多指症からウェルナー型まで
ヒトのZRSの病気の中心にある原理は、本来は後ろ側に限られるSHHを、前側(親指・橈骨側)の四肢の細胞でも発現させてしまう「機能獲得(ゲイン・オブ・ファンクション)」です[9]。その結果、親指側に余分な指ができやすくなり、軸前性多指症(PPD)、三指節母指(TPT)、三指節母指・多合指症症候群(TPTPS)などが生じます。一方、強さや範囲がさらに乱れる変異、2コピー(ホモ接合)の状態、コピー数の増加では、脛骨(けいこつ)の低形成や鏡像肢など、より重い状態へ移ることがあります。
🧬 ZRSの変化と主な病気(代表例)
| ZRSの変化 | 仕組みの解釈 | 主な病気・特徴 |
|---|---|---|
| ZRS全体の欠失 | 四肢のSHHスイッチが失われる(機能喪失) | マウスで四肢のSHHが完全に消失、遠位の骨格が重度に短縮[4] |
| 多数の点変異(SNV) | 前側での異所性のスイッチ入り(機能獲得) | ヒトで多指症に関連する31の一塩基変異が整理されている[8] |
| 402C>T(1コピー) | 用量に依存した機能獲得 | ヘテロ接合では三指節母指・多指症[14] |
| 402C>T(2コピー) | 同じ変異でも2コピーで重症化 | ホモ接合ではウェルナー型中肢異形成症(脛骨・橈尺骨の低形成を伴う)[14] |
| ZRSを含む微小重複 | スイッチのコピー数増加・用量の増加 | 三指節母指・多合指症症候群(TPTPS)[15] |
| CTCF部位を含む約12kb欠失 | ZRS自体ではなく三次元の交信の障害 | ヒトの無手無足症(アカイロポディア)。ZRSの配列は保たれている[12] |
※文中の「402」「404」などの番号は、各論文が採用したZRS基準配列に基づく古典的な番号です。現在のGRCh38によるHGVS座標とそのまま同一視できるものではありません。
とりわけ402C>Tのヘテロ接合とホモ接合の違いは、ZRS変異の用量効果(ドーズ効果)を考えるうえで重要です。ヴァンダーミーアらの報告では、同じ配列変化でも、1コピーでは三指節母指・多指症、2コピーではより重いウェルナー型中肢異形成症に達した家系がありました[14]。表現型を「変異があるかないか」だけで見るのではなく、対立遺伝子の用量や背景の影響と合わせて考える必要があることを示しています。
コピー数の変化についても同様です。クロポツキらは、ZRSを含む微小重複が三指節母指・多合指症症候群と関連することを示しました[15]。したがって、臨床でZRS関連の病気を調べる際は、一塩基変異や小さな挿入・欠失だけでなく、LMBR1のイントロン内のコピー数変化や、SHH周辺の構造の変化まで評価の対象にする必要があります。
9. 進化と種間保存 ─ ヘビはなぜ脚を失ったのか
ZRSは、脚を持つ哺乳類だけの配列ではありません。魚類(硬骨魚)を含む幅広い脊椎動物で相同な配列が見つかっており、これは、魚のひれと四足動物の手足に共通する「後ろ側でSHHを制御する仕組み」が、共通の祖先にまでさかのぼることを支持します[5]。ただし「高度に保存されている」ことは、「すべての動物で同じ強さ」を意味しません。
2016年、クヴォンらは、さまざまな脊椎動物のZRSを、マウスのレポーターやCRISPRによるゲノム置換で比べました[16]。すると、ヒトや魚(シーラカンス)のZRSはマウスの中でも四肢の発生をかなり正常に支えられた一方、ヘビのZRSは段階的に機能が失われていたことがわかりました。シーラカンスのZRSはヒトよりもニシキヘビに配列が近いにもかかわらず、正常な四肢発生を支えられました。ヘビの系統で失われた転写因子の結合情報を人工的に復元すると、エンハンサーの機能が回復したことから、ヘビの脚の消失とZRSの機能退化には実験的な因果関係があると考えられます。
💡 用語解説:高度に保存された配列
種を超えて(たとえば魚からヒトまで)ほとんど変わらずに受け継がれてきたDNAの配列を、高度に保存された配列と呼びます。長い進化の中で変わらなかったということは、その配列が生存に大切な役割を担っている証拠だと考えられます。ZRSはその代表例ですが、ヘビのように、あえてそれを失うことで体の形を変えた例もあるのです。
この結果は、ZRSを進化発生学(エボデボ)の非常に強いモデルにしています。つまり、SHHという遺伝子の中身(コード領域)を変えずに、組織特異的なエンハンサーの配列だけを変えることで、一つの器官系(この場合は四肢)の形だけを進化させることができるのです。SHHは脳・脊髄・顔面など他の組織でも必須の働きを持ちますが、ZRSだけを変えれば、それらの働きを保ったまま手足の形だけを変えられます。ZRSを取り除くと四肢のSHHだけが選択的に消えることも、この「部品ごとに独立している性質(モジュール性)」を裏づけています[4]。
10. 遺伝診療との接点 ─ 非コード変異をどう捉えるか
ここまで見てきたZRSの話は、基礎研究にとどまらず、遺伝子診断や遺伝カウンセリングの実務にも直接つながります。臨床遺伝専門医の視点から、いくつか押さえておきたい点を整理します。
第一に、ZRS変異は非コード領域にあるため、通常のエクソーム解析では見逃されやすいという点です。全エクソーム検査(WES)は、その名のとおりタンパク質の設計図となる部分(エクソン)を中心に読む検査です。ZRSのようにイントロンの奥深くにあるスイッチの変異は、こうした設計図中心の解析の網からこぼれることがあります。多指症のように四肢の形に一貫した特徴があり、かつ設計図側に原因が見つからない場合には、ZRSを含む非コード領域まで視野を広げる必要が出てきます。
第二に、遺伝形式と表現度の幅です。ZRS関連の多指症の多くは常染色体顕性(優性)遺伝の形をとりますが、先に見たように、同じ変異でも1コピーと2コピーで重症度が変わることがあります[14]。同じ家系の中でも、症状の程度に幅が出る(浸透率や表現度の差)ことも珍しくありません。こうした幅を前提に、家系の中での再発の可能性や、次の世代への伝わり方を丁寧に整理することが、遺伝カウンセリングの役割になります。
第三に、意義不明の変異(VUS)の解釈です。非コード領域に見慣れない変化が見つかったとき、それが病気に関係するのかどうかの判断は簡単ではありません。ここでZRSの研究が示してくれるのは、「保存されているか」という物差しだけでは足りず、その変化が転写因子の結合親和性を「ちょうどよい範囲」から外していないか、そして本来の場所からの長距離作用を保っているか、といった量的で立体的な視点が必要になる、ということです[8][13]。ZRSは、非コード変異の病原性を、保存性だけでなく定量的な親和性と内在性のDNA環境の中で評価すべき理由を、最も明快に示すモデルの一つです。
最後に、ZRSは、一つの用語の背後にどれだけ豊かな仕組みが隠れているかを教えてくれます。正常な四肢の形づくりには、ZRSの組織特異性、転写因子の適度に弱い結合、DNAの開閉、前側の抑制による境界、あらかじめ近い三次元構造、コヒーシンによる長距離の手繰り寄せ、CTCFなどによる頑健さ、そして長距離作用専用の配列情報が、同時に必要です。ZRSは、「単なるSHHの遠隔スイッチ」ではなく、発生の場所・量・時期・三次元の距離を同時に符号化する、複合的な制御の舞台なのです。こうした仕組みを正しく理解することは、検査結果を適切に解釈するための土台になります。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お知りになりたい方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談いただけます。
よくある質問(FAQ)
Q1. ZRSとZPAは何が違うのですか?
ZPA(極性化活性帯)は「組織」、つまり手足のもと(四肢芽)の後ろ側にある細胞の集まりで、指の並び順を決める司令塔です。一方ZRSは「DNAの配列」で、そのZPAでSHH遺伝子をオンにするためのスイッチ(エンハンサー)です。ZRSはLMBR1という別の遺伝子の中にあり、SHHから約1Mb(100万塩基)離れた場所から、四肢だけでSHHをオンにします。名前は似ていますが、生物学の階層がまったく異なります。
Q2. なぜ1文字の変異で指の数が変わるのですか?
ZRSは、複数の転写因子が「ちょうどよい弱さ」でくっつくことで、四肢の後ろ側でだけSHHをオンにしています。1文字の変異が、この結合の強さをわずかに強めたり、新しい結合の目印をつくったりすると、本来SHHがオフのはずの前側(親指側)でもSHHがオンになってしまいます。その結果、余分な指(多指症)が生じます。設計図そのものではなく、スイッチ側の微妙なバランスが崩れることが原因です。
Q3. ZRSの変異による多指症は遺伝しますか?
ZRS関連の多指症の多くは、常染色体顕性(優性)遺伝の形をとります。つまり、片方の親から変異を受け継ぐと症状が出ることがあります。ただし、同じ家系の中でも症状の程度に幅があったり、同じ変異でも1コピーと2コピーで重症度が変わったりすることが知られています。実際の遺伝の可能性や再発率については、家系の情報をもとに臨床遺伝専門医が個別に整理します。
Q4. ZRSの変異は普通の遺伝子検査で見つかりますか?
見つからないことがあります。全エクソーム検査(WES)などの一般的な解析は、タンパク質の設計図となる部分(エクソン)を中心に読むため、ZRSのようにイントロンの奥にあるスイッチの変異は網からこぼれることがあります。四肢の形に一貫した特徴があり、設計図側に原因が見つからない場合には、ZRSを含む非コード領域まで対象を広げた解析が検討されます。
Q5. ヘビに脚がないのもZRSと関係があるのですか?
関係があると考えられています。研究では、ヘビのZRSは進化の中で段階的に機能を失っており、ヘビのZRSをマウスに入れると手足が短くなることが示されました。逆に、ヘビで失われた結合情報を人工的に戻すと機能が回復しました。SHH遺伝子の中身を変えずに、四肢用のスイッチ(ZRS)だけを変えることで、脳や脊髄での働きを保ったまま手足の形だけを進化させられる、という点で、ZRSは進化を理解する重要なモデルになっています。
参考文献
- [1] Long range regulation of the sonic hedgehog gene. Curr Opin Genet Dev. 2014. [PubMed 24859115]
- [2] ZONE OF POLARIZING ACTIVITY REGULATORY SEQUENCE; ZRS. OMIM. [OMIM 620738]
- [3] Sonic hedgehog mediates the polarizing activity of the ZPA. Cell. 1993. [PubMed 8269518]
- [4] Elimination of a long-range cis-regulatory module causes complete loss of limb-specific Shh expression and truncation of the mouse limb. Development. 2005. [PubMed 15677727]
- [5] A long-range Shh enhancer regulates expression in the developing limb and fin and is associated with preaxial polydactyly. Hum Mol Genet. 2003. [PubMed 12837695]
- [6] Distinct roles of Hand2 in initiating polarity and posterior Shh expression during the onset of mouse limb bud development. PLoS Genet. 2010. [PubMed 20386744]
- [7] Etv2 regulates enhancer chromatin status to initiate Shh expression in the limb bud. Nat Commun. 2022. [PubMed 35864091]
- [8] Affinity-optimizing enhancer variants disrupt development. Nature. 2024. [PubMed 38233525]
- [9] TRIPHALANGEAL THUMB WITH POLYSYNDACTYLY; TPTPS. OMIM. [OMIM 190605]
- [10] Shh and ZRS enhancer colocalisation is specific to the zone of polarising activity. Development. 2016. [PubMed 27402708]
- [11] Cohesin is required for long-range enhancer action at the Shh locus. Nat Struct Mol Biol. 2022. [PubMed 36097291]
- [12] Deletion of CTCF sites in the SHH locus alters enhancer-promoter interactions and leads to acheiropodia. Nat Commun. 2021. [PubMed 33863876]
- [13] Range extender mediates long-distance enhancer activity. Nature. 2025. [PubMed 40604280]
- [14] A novel ZRS mutation leads to preaxial polydactyly type 2 in a heterozygous form and Werner mesomelic syndrome in a homozygous form. Hum Mutat. 2014. [PubMed 24777739]
- [15] A microduplication of the long range SHH limb regulator (ZRS) is associated with triphalangeal thumb-polysyndactyly syndrome. J Med Genet. 2008. [PubMed 18178630]
- [16] Progressive Loss of Function in a Limb Enhancer during Snake Evolution. Cell. 2016. [PubMed 27768887]






