

目次
- 1 1. デノボ合成とサルベージ経路とは ─ ヌクレオチドを用意する2つの道
- 2 2. プリンのデノボ合成 ─ 土台の上に環を組み立てる
- 3 3. ピリミジンのデノボ合成 ─ 環を先につくってから糖をつける
- 4 4. DNA用の材料への変換 ─ リボヌクレオチド還元酵素(RNR)
- 5 5. 葉酸と一炭素代謝 ─ 2つの合成を支える共通インフラ
- 6 6. 流れを調節する仕組み ─ 「律速酵素が1つ」ではない
- 7 7. サルベージ経路の重要性 ─ 「補助」にとどまらない重要な道
- 8 8. 関連する病気 ─ 代謝の「自然実験」としての先天代謝異常
- 9 9. 薬の標的として ─ 抗がん剤・免疫抑制薬との深い関わり
- 10 10. 遺伝診療との接点 ─ 代謝の理解が診断を支える
- 11 まとめ ─ 一つの需給ネットワークとして捉える
- 12 よくある質問(FAQ)
- 13 参考文献
- 14 関連記事

📍 クイックナビゲーション
わたしたちの体をつくる細胞は、増えるたびに大量のDNAとRNAを新しくつくります。その材料がヌクレオチドという部品です。ヌクレオチドを手に入れる方法には、糖やアミノ酸から一から組み立てる「デノボ合成(新規合成)」と、いったん使った塩基やヌクレオシドを回収して再利用する「サルベージ経路(再利用経路)」の2つがあります。この2つの経路は、葉酸(ようさん)やミトコンドリアの働きと深くつながり、レッシュ・ナイハン症候群のような遺伝性の病気や、抗がん剤・免疫を抑える薬の作用点とも結びついています。この記事では、デノボ合成とサルベージ経路のしくみを、一般の方と遺伝診療に関わる方の両方を対象に、遺伝専門医の視点から解説します。
Q. デノボ核酸合成とサルベージ経路とは何ですか?まず結論だけ知りたいです
A. どちらも、DNAやRNAの材料となる「ヌクレオチド」を用意するための経路です。デノボ合成は、糖・アミノ酸・葉酸などの単純な材料からヌクレオチドを一から組み立てる経路で、材料もエネルギーもたくさん使います。サルベージ経路は、分解された塩基やヌクレオシドを回収して再利用する、省エネの経路です。細胞はこの2つを使い分けており、デノボ合成が止まっても、サルベージの材料(ウリジンなど)を外から補えば回復できる病気があることもわかっています。この関係は、抗がん剤や免疫を抑える薬の作用のしかたにも深く関わっています。
- ➤2つの経路 → 一から組み立てる「デノボ合成」と、回収して再利用する「サルベージ経路」
- ➤2種類の材料 → 塩基にはプリン(A・G)とピリミジン(C・T・U)があり、つくり方の戦略が正反対
- ➤葉酸との深い関係 → 葉酸の一炭素代謝が、プリン合成とDNA用チミジル酸合成の両方を支える
- ➤病気とのつながり → HPRT1欠損(レッシュ・ナイハン症候群)、DHODH欠損(ミラー症候群)など
- ➤治療との接点 → メトトレキサートやDHODH阻害薬など、この代謝を狙う薬が数多くある
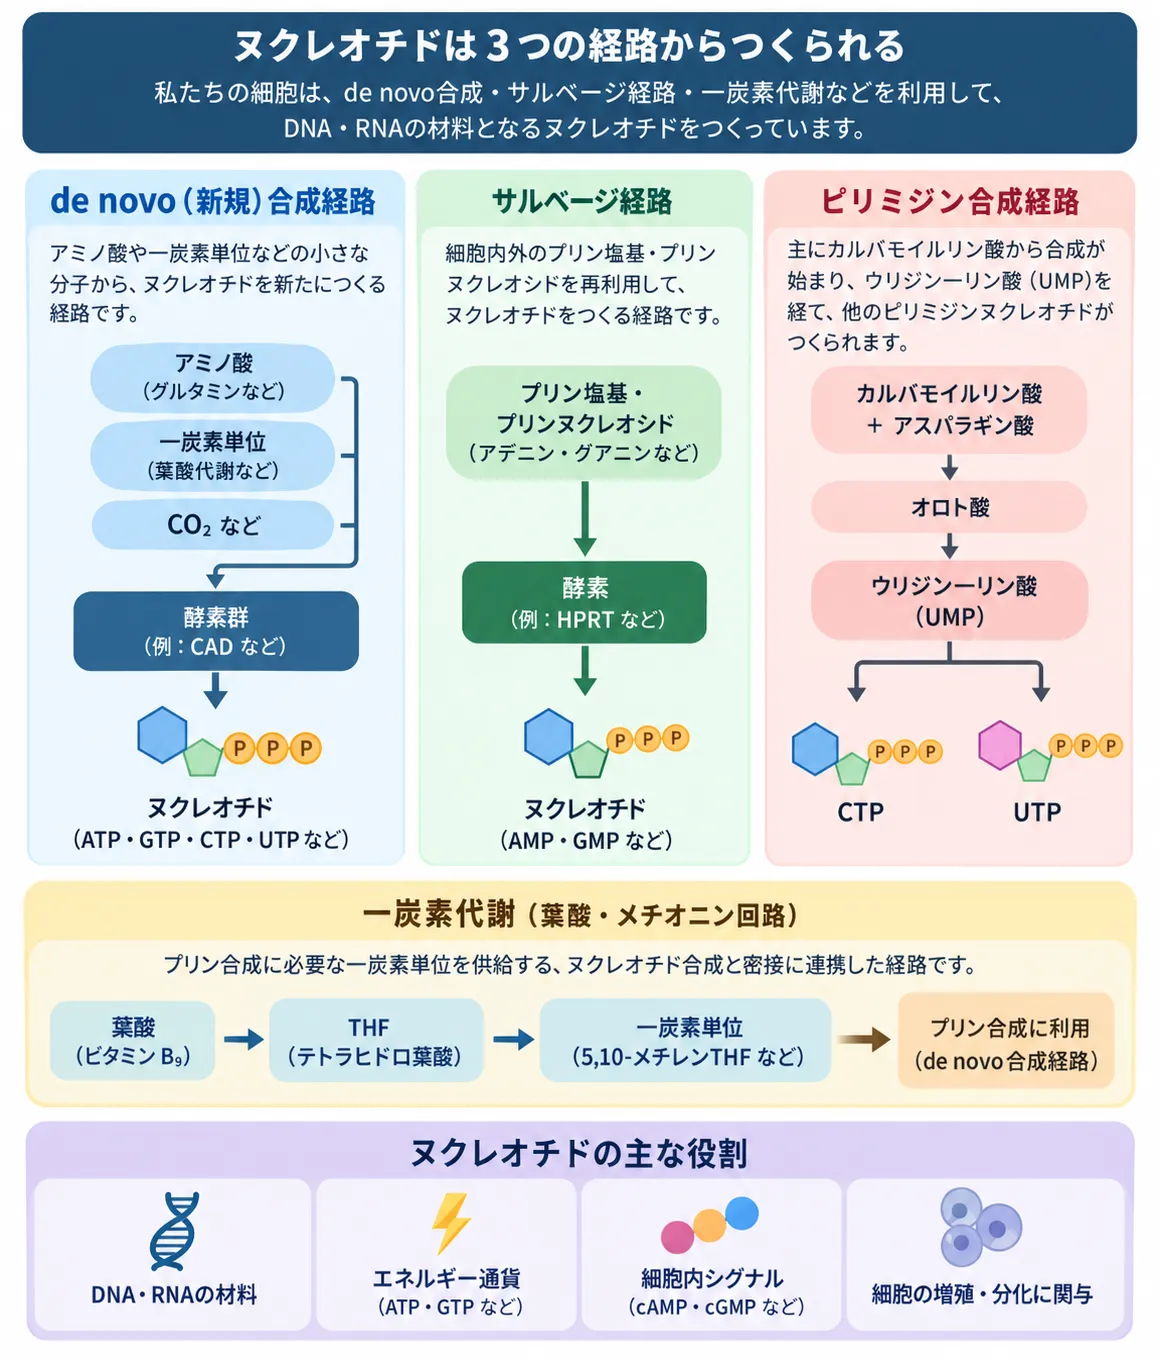
ヌクレオチドを供給するデノボ合成とサルベージ経路、およびピリミジン合成と葉酸を介した一炭素代謝の関係を示した模式図。ヌクレオチドはDNA・RNAの材料となるほか、ATP・GTPなどのエネルギー通貨や細胞内シグナルにも利用されます。
🧬 デノボ合成とサルベージ経路の基本情報
| 項目 | 内容 |
|---|---|
| 読み方・別名 | デノボ合成(de novo synthesis/新規合成)、サルベージ経路(salvage pathway/再利用経路) |
| つくる対象 | DNA・RNAの部品であるヌクレオチド(プリン系=アデニン・グアニン、ピリミジン系=シトシン・チミン・ウラシル) |
| デノボ合成とは | 糖(リボース)・アミノ酸・二酸化炭素・葉酸などから一から組み立てる経路。材料もエネルギーも多く必要 |
| サルベージ経路とは | 分解された塩基やヌクレオシドを回収して再利用する省エネの経路 |
| 医療との関わり | 先天代謝異常の原因になる一方、抗がん剤・免疫抑制薬・抗リウマチ薬などの重要な作用点になっている |
※本記事は一般の方と遺伝診療に関わる方の両方に向けた用語解説です。特定の検査や治療を勧めるものではありません。
1. デノボ合成とサルベージ経路とは ─ ヌクレオチドを用意する2つの道
はじめに、ここでいう「核酸合成」の意味をはっきりさせておきます。DNAやRNAそのものを直接つくる話ではなく、その部品であるヌクレオチドをつくる話です。ヌクレオチドは、糖(リボースまたはデオキシリボース)・リン酸・塩基という3つの部分からできた小さな部品で、これがたくさんつながってDNAやRNAという長い鎖になります。塩基の並び方や二重らせんの構造については、DNAの基本構造の解説ページもあわせてご覧ください。
細胞がヌクレオチドを手に入れる方法は、大きく2つに分かれます。1つめがデノボ合成(新規合成)で、糖・アミノ酸・二酸化炭素・葉酸といった単純な材料から、塩基を一から組み立てる方法です。2つめがサルベージ経路(再利用経路)で、DNAやRNAが分解されたときに出てくる塩基やヌクレオシドを回収し、もう一度ヌクレオチドに戻して使い回す方法です[2]。
💡 用語解説:塩基・ヌクレオシド・ヌクレオチド
塩基は、アデニン(A)・グアニン(G)・シトシン(C)・チミン(T)・ウラシル(U)といった、遺伝情報の「文字」にあたる部分です。この塩基に糖がついたものをヌクレオシド、さらにリン酸がついたものをヌクレオチドと呼びます。DNAやRNAは、ヌクレオチドが数珠つなぎになってできています。「デノボ」は「新たに・一から」という意味のラテン語で、遺伝の分野では新しく生じた変異を指す「デノボ変異(新生突然変異)」にも使われますが、ここでいうデノボ合成は「材料から新たに組み立てる」という意味で、変異の話とは別のものです。
なぜ、わざわざ2つの道が用意されているのでしょうか。デノボ合成は、材料さえあればゼロからヌクレオチドをつくれる頼もしい経路ですが、そのぶんエネルギー(ATP)や窒素、葉酸の一炭素単位をたくさん消費します。一方サルベージ経路は、すでにできあがっている塩基を回収して使うため、はるかに少ないコストでヌクレオチドを用意できます[2]。細胞は、増殖のスピードや置かれた栄養状態に応じて、この2つを巧みに使い分けているのです。
この使い分けは、細胞が活発に分裂するときにとくに重要になります。細胞が増えるためにはDNAを丸ごとコピーする必要があり、大量のヌクレオチドが要求されるからです。細胞分裂の周期や、増殖とがんの関係については細胞周期の解説ページで詳しく扱っています。増殖が速い細胞ほどデノボ合成への依存が強まり、この性質が、のちほど述べる抗がん剤の効き方にも関わってきます[14]。
デノボ合成がどれほどコストのかかる作業かを、数字でイメージしてみましょう。プリンの共通中間体であるIMPを1分子つくるだけでも、複数のATP(細胞のエネルギー通貨)を消費します。そのうえで、できたヌクレオチドを三リン酸の形(ATPやGTPなど、実際に使える形)にするには、さらにエネルギーが必要です。細胞がDNAを1回コピーするとき、材料をそろえるためだけに莫大な量のATPが使われる計算になります[2]。だからこそ、すでにある塩基を回収して使い回すサルベージ経路は、細胞にとって大きな節約になるのです。
もう一つ知っておきたいのは、この2つの経路がまったく独立して動いているわけではないという点です。デノボ合成もサルベージも、同じPRPP(後で説明する糖の土台)を材料として奪い合いますし、できあがったヌクレオチドの量は両方の経路にフィードバックをかけます。つまり、片方の経路の状態が、もう片方の働き具合にも影響するのです。この「つながり」を意識しておくことが、あとの章で病気や薬のしくみを理解するときの土台になります[2]。
塩基には、大きく2つのグループがあります。2つの環が組み合わさったプリン(アデニンとグアニン)と、1つの環でできたピリミジン(シトシン・チミン・ウラシル)です。この2グループは、デノボ合成のときの「組み立て戦略」がまったく異なります。次の章から、まずプリン、続いてピリミジンの順で、その違いを見ていきます。
2. プリンのデノボ合成 ─ 土台の上に環を組み立てる
プリン(アデニン・グアニン)のデノボ合成は、いわば「土台の上で環を少しずつ組み立てていく」方式です。まず糖の一種であるリボース-5-リン酸からPRPP(ホスホリボシル二リン酸)という活性化した土台をつくり、その上にアミノ酸や二酸化炭素、葉酸由来の炭素を継ぎ足していって、最終的にIMP(イノシン一リン酸)という共通の中間体を完成させます[2]。IMPは、そこからアデニン系(AMP)とグアニン系(GMP)に枝分かれしていきます。
ヒトでは、このPRPPからIMPまでの反応が10段階あり、それを6種類のタンパク質が担当します[1]。ヒトでは複数の反応を1つのタンパク質がまとめて受け持つ「融合」が進んでいて、10段階が6つのタンパク質に集約されています。さらにこの6つの酵素は、条件によっては細胞質の中で寄り集まって「プリノソーム(purinosome)」と呼ばれる集合体をつくることが、生きた細胞の観察から示されています[1]。
💡 用語解説:PRPP(ホスホリボシル二リン酸)
PRPPは、糖のリボースが活性化された状態のもので、ヌクレオチド合成の重要な出発点です。プリンのデノボ合成、ピリミジン合成の後半、さらにサルベージ経路まで、いろいろな経路が同じPRPPを取り合って使います。このため、PRPPは代謝全体の重要な分かれ道(分配点)になっています[2]。
プリンの環は、1つの材料からできるのではなく、グリシン・グルタミン・アスパラギン酸という3つのアミノ酸、二酸化炭素、そして葉酸由来の炭素を、あちこちから少しずつ集めて組み上げられます[2]。材料が多方面から供給されるため、プリン合成は、アミノ酸の代謝や、糖から材料を切り出す経路(ペントースリン酸経路)、ミトコンドリアの働きなど、さまざまな代謝の状態に敏感に反応します。この「多くの材料を束ねる」性質は、プリン合成が細胞の栄養状態を映す鏡のように働くことを意味します。
この10段階のうち2つの反応では、葉酸からつくられる「10-ホルミルTHF」という運び屋が炭素を1個ずつ供給します[3]。つまりプリンの環は、葉酸の力を借りなければ完成しません。この点は、のちほど葉酸代謝の章でくわしく取り上げます。葉酸を阻害する薬がプリン合成にも影響するのは、このためです。
完成したIMPは、そのまま使われるのではなく、2つの方向へ枝分かれします。片方はアスパラギン酸とGTPを使ってアデニン系(AMP)へ、もう片方はグルタミンとATPを使ってグアニン系(GMP)へと変換されます[2]。AMPをつくるにはGTPが、GMPをつくるにはATPが必要で、アデニンとグアニンが互いの合成を支え合う関係になっています。この巧みな設計によって、細胞は2種類のプリンをバランスよく供給できるのです。
プリンの環をつくる材料の内訳を見ると、二重の環に、グリシンが骨格の一部を、グルタミンが2つの窒素を、アスパラギン酸が1つの窒素を、二酸化炭素が1つの炭素を、そして葉酸が2つの炭素を提供します[2]。複数の業者から部品を取り寄せて1つの製品を組み立てるようなもので、この「多くの材料に依存する」性質こそが、プリン合成を細胞の栄養状態のセンサーのように働かせているのです。
3. ピリミジンのデノボ合成 ─ 環を先につくってから糖をつける
ピリミジン(シトシン・チミン・ウラシル)のデノボ合成は、プリンとは正反対の戦略をとります。プリンが「土台の上で環を組み立てる」のに対し、ピリミジンでは先に環(オロト酸)をつくり、あとからPRPPで糖をつけるのです[2]。この順序の違いは、2つの塩基グループの合成を理解するうえでの大きなポイントです。
ヒトのピリミジン合成では、はじめの3つの反応をCADという巨大な多機能タンパク質が1つでこなします。グルタミンと重炭酸から中間体をつくり、アスパラギン酸を加え、環を閉じるところまでを、CADがまとめて担当するのです。その後、DHODH(ジヒドロオロト酸脱水素酵素)という酵素がオロト酸をつくり、続いてUMPSという酵素がPRPPをつないでUMP(ウリジン一リン酸)を完成させます[2]。ここでも、5つの反応が3つのタンパク質(CAD・DHODH・UMPS)に集約されている点が、ヒトの特徴です。
💡 用語解説:DHODH(ジヒドロオロト酸脱水素酵素)
DHODHは、ピリミジン合成の中でもとくに重要な酵素です。ヒトのDHODHはミトコンドリアの内膜にあり、反応で生じた電子を、ミトコンドリアの呼吸鎖(エネルギーをつくる仕組み)へ渡します[7]。このため、ヒトのピリミジンのデノボ合成は、細胞の呼吸(酸素を使ったエネルギー産生)と直接つながっています。この性質が、のちほど述べる抗がん剤の作用点としてDHODHが注目される理由の一つになっています。
DHODHは、生き物の種類によって性質が大きく異なる酵素でもあります。ヒトのDHODHがミトコンドリア内膜に埋まって呼吸鎖と結びついているのに対し、出芽酵母(パンやお酒をつくる酵母)のDHODHは細胞質に溶けて存在し、呼吸鎖に頼らずにオロト酸をつくれます[2]。同じ反応を担う酵素でも、細胞がその反応をどのエネルギー系につなぐかという「設計思想」が、生き物ごとに違うのです。この違いは、なぜヒトのピリミジン合成が呼吸と結びつくのかを理解する助けになります。
ピリミジンの環では、アスパラギン酸というアミノ酸が骨格の炭素や窒素を大量に提供します。アスパラギン酸はミトコンドリアのTCA回路(クエン酸回路)と密接に関わるため、ピリミジン合成はミトコンドリアの働きに間接的に依存します[2]。プリンがおもに葉酸を通じてミトコンドリアとつながるのに対し、ピリミジンはDHODHとアスパラギン酸という2つの経路を通じてミトコンドリアと結びついている、と整理できます。
できあがったUMPは、そこからUDP・UTPへと変換され、さらにグルタミンとATPを使ってCTP(シトシン系のヌクレオチド)へと作り変えられます。このCTPをつくる酵素CTPS1は、とくに活性化したリンパ球が増えるときに重要であることが、ヒトの遺伝学から示されています。CTPS1が生まれつき欠けると、免疫の細胞がうまく増えられず、免疫不全が起こることが報告されているのです[14]。ここでも、特定のヌクレオチド合成酵素が、特定の細胞(この場合は免疫細胞)の増殖に不可欠であることがわかります。
なお、ヒトのように複数の反応を1つのタンパク質にまとめる「融合」は、すべての生き物に共通するわけではありません。大腸菌などの細菌では、対応する反応の多くが別々の遺伝子産物によって担われており、酵母はその中間的な構造を持っています[2]。同じ化学反応の並びが、生き物によって「1つの大きなタンパク質」にも「別々の小さなタンパク質」にも実装されているのです。基本的な反応の道すじは非常に古くから保存されている一方で、それを担うタンパク質の「まとめ方」には進化的な幅がある——これが、ヌクレオチド代謝を比較して見えてくる面白さの一つです。
4. DNA用の材料への変換 ─ リボヌクレオチド還元酵素(RNR)
ここまでで、プリンとピリミジンのリボヌクレオチドができました。DNAの材料にするには、リボヌクレオシド二リン酸(NDP)の糖の2′位の水酸基を還元してデオキシリボヌクレオシド二リン酸(dNDP)へ変換し、さらにリン酸化してdNTPにする必要があります。この還元反応を担う中心的な酵素がリボヌクレオチド還元酵素(RNR)です[2]。
RNRは、単に材料の総量を増やすだけの酵素ではありません。DNAをつくるには、4種類のデオキシヌクレオチド(dATP・dGTP・dCTP・dTTP)がバランスよくそろっている必要があります。どれか1つだけが多すぎても少なすぎても、DNAのコピーにまちがい(変異)が起こりやすくなってしまうのです。RNRは、ATPやdATPなどによる巧妙な調節を組み合わせて、この4種類の比率を精密に保っています[2]。「たくさんつくる」だけでなく「正しい割合でつくる」ことが、RNRの重要な役割です。
💡 なぜ「バランス」が大切なのか
DNAをコピーするとき、材料であるdNTPの割合がかたよっていると、正しい塩基の代わりにまちがった塩基が取り込まれやすくなります。これはDNAの変異の原因になり得ます。RNRが4種類のdNTPの比率を厳密に管理しているのは、遺伝情報を正確に受け渡すための、いわば品質管理のしくみなのです。がん細胞ではこの需要が高まるため、RNRは正確な塩基対形成を支える重要な酵素として、薬の標的にもなっています[14]。
とくに特別なのが、DNAだけに使われるチミン(正確にはdTMP)の合成です。dTMPは、TYMS(チミジル酸合成酵素)という酵素が、材料に葉酸由来の一炭素単位を加えることでつくられます。この反応では葉酸が消費されて酸化された形(DHF)になるため、DHFR(ジヒドロ葉酸還元酵素)という酵素が葉酸を元の形(THF)に戻す必要があります[3]。つまり、DNA用のチミンをつくる場所は、ピリミジン経路と葉酸サイクルが化学的に直接つながる、いわば「乗り換え駅」になっています。抗がん剤メトトレキサートがDHFRを止めることでDNA合成を広く妨げるのは、このためです。
5. 葉酸と一炭素代謝 ─ 2つの合成を支える共通インフラ
ここまで何度か「葉酸」が登場しました。じつは葉酸(正確にはその活性型であるテトラヒドロ葉酸=THF)は、ヌクレオチド合成を語るうえで欠かせない共通インフラです。葉酸は「一炭素単位(炭素を1個ずつ)」を運ぶ運び屋として働き、次の3か所で決定的な役割を果たします[3]。
1つめと2つめがプリン合成です。プリンの環を組み立てる10段階のうち2か所で、葉酸由来の「10-ホルミルTHF」が炭素を1個ずつ供給します。3つめがDNA用チミジル酸(dTMP)の合成で、こちらは「5,10-メチレンTHF」が炭素と還元力を供給します[3]。このため、葉酸が不足したり葉酸代謝が障害されたりすると、プリンとDNA用チミンの両方が同時につくれなくなるのです。
💡 用語解説:一炭素代謝とホモシステイン
「一炭素代謝」とは、炭素を1個ずつやりとりする代謝のネットワークで、葉酸がその中心的な運び屋です。この経路はヌクレオチド合成だけでなく、アミノ酸のメチオニンをつくり直す反応ともつながっており、その途中でホモシステインという物質が生じます。葉酸やビタミンB12の代謝がうまくいかないと、ホモシステインが体にたまることがあります。関連する代謝異常についてはコバラミン・ホモシステイン・メチオニン代謝の解説もご覧ください。
葉酸を使った一炭素の受け渡しは、細胞の中で2つの部屋(コンパートメント)に分かれて行われます。ミトコンドリアの中では、アミノ酸のセリンを材料に、SHMT2やMTHFD2といった酵素が働いて「ギ酸(ホルメート)」という一炭素の材料をつくり、細胞質へ送り出します。細胞質では、送られてきたギ酸から10-ホルミルTHFがつくり直され、プリン合成に使われます[3]。この分業のしくみは、単なる推定ではなく、標識をつけた分子の流れを追跡する実験によって確かめられています[3]。
この葉酸と一炭素代謝の重要性は、遺伝診療や周産期の分野でもよく知られています。妊娠を計画する時期に葉酸をとることが勧められるのは、細胞が活発に分裂する胎児の発生において、ヌクレオチド合成を支える葉酸が特に重要になるからです。葉酸の働きや摂取については葉酸の働きと食品の解説ページでくわしく扱っています。ここでは、葉酸が「ヌクレオチド合成の土台」でもあることを押さえておいてください。
🩺 院長コラム【一つの経路だけを見ない、という視点】
ヌクレオチド代謝を勉強していて印象的なのは、「デノボ合成」「サルベージ」「葉酸」「ミトコンドリア」といった経路を、別々のものとして切り離して考えてはいけない、ということです。これらはPRPPやギ酸、アスパラギン酸といった共通の材料を通じて、一つの大きな需要と供給のネットワークをつくっています。
臨床遺伝専門医として文献を読んでいても、この「つながり」を意識できるかどうかで、遺伝子の変化がなぜ特定の臓器に強く影響するのかの理解が変わってきます。一つの酵素の名前を覚えることよりも、その酵素がどの経路とどこでつながっているかを地図として持っておくこと。それが、複雑な代謝を読み解くときの助けになります。
6. 流れを調節する仕組み ─ 「律速酵素が1つ」ではない
ヌクレオチド合成の流れ(フラックス)は、どのように調節されているのでしょうか。教科書ではしばしば「律速酵素」という言葉が使われますが、実際のヌクレオチド代謝では、たった1つの酵素だけで流れが決まるわけではありません。PRPPの供給量、グルタミンやアスパラギン酸の量、葉酸・ギ酸の量、ミトコンドリアの呼吸、そしてサルベージの材料があるかどうか——これらが同時に調節点として働いています[2]。
古くから知られている基本的なしくみが、最終産物によるフィードバックです。できあがったヌクレオチドが十分にたまると、それが上流の酵素にくっついて働きを抑え、つくりすぎを防ぎます。たとえばピリミジン合成の入り口であるCADは、最終産物に近いUTPによって抑えられ、材料であるPRPPによって活性化される、というように、複数の分子からの信号を統合しています[2]。
さらに哺乳類では、細胞の成長シグナルが、ヌクレオチド合成の速さを直接コントロールしていることがわかっています。細胞の成長を司る司令塔であるmTORC1という仕組みが活性化すると、その下流のS6K1という酵素がCADに直接リン酸という目印をつけ、ピリミジン合成の流れを素早く増やします[4]。この発見は、標識をつけた分子の流れを実際に測ることで、成長シグナルと代謝の速さを結びつけた重要な研究です[4]。
同じmTORC1は、プリン合成も後押しします。ただし、そのやり方はピリミジンとは異なります。mTORC1は、ATF4という因子を介してミトコンドリアの葉酸サイクル(MTHFD2など)を活発にし、プリン合成に必要な一炭素単位の供給を増やすのです[5]。つまりmTORC1は、ピリミジンではCADを直接動かし、プリンでは葉酸を介して間接的に後押しする、という2通りのやり方で、細胞の成長にあわせてヌクレオチド供給を高めています[5]。
💡 用語解説:mTORC1という「成長の司令塔」
mTORC1は、細胞のまわりに栄養や成長の信号が十分にあるかを感じ取り、あれば「増えてよい」という指令を出す司令塔のような仕組みです。この指令には、タンパク質をつくる、脂質をつくる、そしてヌクレオチドをつくる、といった「増えるための準備」が含まれます。ヌクレオチド合成がmTORC1の管理下にあることは、細胞が無秩序に増えないよう、材料の生産が成長信号と連動していることを示しています。
こうした「素早い調節」に加えて、細胞にはもっとゆっくりとした調節もあります。それが、ヌクレオチド代謝の酵素そのものを「たくさんつくる/減らす」という、遺伝子の発現レベルでの調節です。がんに関わる増殖のプログラム(たとえばMYCという因子)が働くと、複数のヌクレオチド代謝の遺伝子がまとめて活発になり、酵素の量そのものが増えます[2]。つまり細胞は、「酵素をどれだけ持つか(長期的な量)」と「持っている酵素をどれだけ働かせるか(短期的な活性)」という二段構えで、ヌクレオチド供給を高い状態に保っているのです。この二層構造が、活発に増える細胞で大量のヌクレオチドを供給し続けることを可能にしています。
細菌でも、栄養状態とヌクレオチド供給を結びつける独自のしくみがあります。栄養が枯渇した大腸菌では、(p)ppGppという警報物質がつくられ、プリン代謝の複数の酵素を直接抑えます。これは単なる遺伝子の抑制ではなく、代謝酵素への多点的なブレーキによって、限られたPRPPなどの資源を、生き延びるために本当に必要な生合成へ振り向けるしくみだと明らかにされました[6]。同じヌクレオチド代謝でも、ヒトと細菌では調節のやり方が大きく異なるのです。この違いは、細菌だけがもつしくみを狙えば、ヒトに影響を与えずに細菌の増殖を抑えられる可能性——つまり抗菌薬の設計——にもつながる視点です。
7. サルベージ経路の重要性 ─ 「補助」にとどまらない重要な道
サルベージ経路は、しばしば「デノボ合成の補助」のように紹介されますが、実際にはそれ自体が生理的に重要な経路です。分解された塩基やヌクレオシドを回収して再利用することで、デノボ合成にかかる大きなエネルギー・窒素・葉酸のコストを節約できます[2]。
プリンのサルベージでは、HPRT1という酵素が、ヒポキサンチンやグアニンにPRPPをつけてIMPやGMPをつくり直します。またAPRTという酵素は、アデニンからAMPをつくり直します[9]。これらの酵素が欠けると、はっきりとしたヒトの病気が起こることが、サルベージが生理的に重要であることを示しています。
プリンのサルベージには、このほかにもアデノシンキナーゼ(アデノシンからAMPをつくる)など複数の酵素が関わり、ヌクレオシドや塩基のプールを互いに変換・調節しています。HPRT1・APRTに加え、プリンを分解する側のADAやPNPが欠けてもそれぞれ明確なヒトの病気が生じることは、サルベージと分解のバランス全体が生理的に重要であることを示しています[9]。サルベージは、単に材料を節約するだけでなく、プリンのプール全体を適切に保つ役割も担っているのです。
ピリミジンのサルベージでは、哺乳類は塩基に直接PRPPをつけるよりも、ヌクレオシドキナーゼという酵素の経路を多く使います。たとえばウリジンからUMPをつくる、チミジンからdTMPをつくる、といった具合です[2]。この「ウリジンを回収する」経路が、後で述べるように、ある種の重い病気の治療に直接結びついています。なお、どの塩基やヌクレオシドを入り口にするかは生き物によって異なり、細菌や酵母では塩基に直接PRPPをつける経路がより目立つなど、サルベージの「入口」にも種差があります[2]。
💡 サルベージが治療のカギになる
デノボ合成が薬や遺伝子変異で止まってしまっても、サルベージの材料を外から補えば、下流のヌクレオチドを回復できることがあります。たとえばピリミジンのデノボ合成が止まっても、ウリジンを補給すればUMPをつくり直せます。この「上流が詰まっても下流から迂回する」という考え方は、DHODHを狙う薬の研究や、CAD欠損症という病気の治療で、実際に確かめられています[12]。
このデノボとサルベージの関係は、薬の効き方を考えるうえでとても重要です。デノボ合成を狙う薬の効果は、その細胞がどれだけサルベージで迂回できるかに左右されます。血液や周囲の組織からウリジンなどを十分に取り込める細胞では、デノボ合成を止めてもある程度回避できてしまいます。逆に、サルベージの力が弱く、増殖が速い細胞ほど、デノボ合成への依存があらわになり、薬が効きやすくなるのです[14]。
8. 関連する病気 ─ 代謝の「自然実験」としての先天代謝異常
ヌクレオチド代謝の酵素が生まれつき欠けると、さまざまな遺伝性の病気(先天代謝異常)が起こります。これらは、特定の酵素が働かないと体に何が起こるかを教えてくれる、いわば「自然の実験」でもあります。代表的なものを見ていきましょう。
プリンのサルベージ・分解にかかわる病気
プリンのサルベージ酵素HPRT1が欠けると、レッシュ・ナイハン症候群(Lesch-Nyhan syndrome)が起こります。ヒポキサンチンやグアニンを再利用できなくなり、尿酸が過剰にたまるとともに、重い神経・行動の症状(強い不随意運動や自傷行動など)があらわれます[9]。HPRT酵素がこの病気の原因であることは1967年に同定され、サルベージ経路がヒトの生理にとっていかに重要かを確立した歴史的な発見でした[9]。同じプリンサルベージのAPRTが欠けると、アデニンが結石をつくる別のタイプの病気になります。
プリンの分解・代謝にかかわるADA(アデノシンデアミナーゼ)が欠けると、毒性のある物質がたまって重症複合免疫不全症(ADA-SCID)という重い免疫の病気になります[14]。ADA欠損症については専用の解説ページや重症複合免疫不全症(SCID)の遺伝子検査もご覧ください。同じくプリン代謝のPNPが欠けても、免疫の病気が起こります。これらは、サルベージや分解の障害が、神経系や免疫系に特に強く影響することを示しています。
プリンのデノボ合成にかかわる病気
プリンのデノボ合成の酵素が欠ける病気も知られています。ADSLが欠けると神経発達の障害が起こり、ATICが欠けるとAICA-リボシド尿症(AICA-ribosiduria)という重い神経疾患が起こります。ATICの変異は2004年に、重い神経障害と先天的な視覚障害をもつ女児の症例で報告されました[10]。これらは、プリンを一から組み立てる経路の障害が、主に神経系に強くあらわれることを示す例です。
ピリミジンのデノボ合成にかかわる病気
ピリミジン側では、いくつかの重要な病気が知られています。DHODHが欠けるとミラー症候群(Miller syndrome)という、顔や手足の形成異常をともなう病気になります。DHODHの変異がこの病気の原因であることは、2010年に「エクソーム解析」という新しい手法によって同定されました。これは、まれな遺伝病の原因を網羅的な遺伝子解析で突き止めた、遺伝学の歴史でも記念碑的な研究です[11]。
CADが欠けると、ウリジン応答性のてんかん性脳症(CAD欠損症)という重い病気になりますが、この病気はウリジンの補充によって症状が改善しうることが知られています[12]。デノボ合成が止まっても、サルベージの材料であるウリジンを外から補うことで、下流のヌクレオチドを回復できるためです。20人の患者を集めた研究では、そのうち10人にウリジン、ウリジン一リン酸またはウリジントリアセテートの補充が行われ、安全性が確認され、多くの治療例で明らかな臨床的改善につながったと報告されています[12]。
また、ピリミジン合成の最後の酵素UMPSが欠けると、遺伝性オロト酸尿症という、まれな病気になります。オロト酸がたまり、治療しないと貧血や発達の遅れをきたしますが、こちらもウリジンの補充が有効です[13]。近年では、新生児スクリーニングで無症状のうちに見つかる例も報告されるようになりました[13]。
💡 用語解説:バリアント(遺伝子の変化)と遺伝形式
これらの病気の多くは、両親からそれぞれ受け継いだ遺伝子の両方に変化(バリアント)があるときに起こる「常染色体潜性(劣性)遺伝」の形をとります。一方、HPRT1のようにX染色体上にある遺伝子では、主に男の子に症状が出る「X連鎖潜性遺伝」となります。遺伝形式の違いについては遺伝形式の解説ページもご覧ください。CAD欠損症のように、原因となる変化が「意義不明のバリアント(VUS)」と判定されがちで、見逃されやすい病気もあります[12]。
これらの病気の対比は、とても示唆に富んでいます。CADやUMPSの欠損は、「デノボ合成が止まっても、サルベージの材料を下流へ供給できれば回復しうる」という代謝回路の方向性を、臨床の場で実証しています。一方でHPRT1やADAの欠損では、サルベージや分解の経路そのものが障害されるため、神経系や免疫系に強い臓器選択性をもった症状が生じます。同じヌクレオチド代謝の異常でも、どの経路のどこが詰まるかによって、あらわれ方が大きく変わるのです。
🩺 院長コラム【「治療できる」を見逃さないために】
ヌクレオチド代謝の病気の中で、私がとくに重要だと感じるのは、CAD欠損症や遺伝性オロト酸尿症のように、ウリジンの補充で症状が改善しうる「治療可能な」病気が含まれていることです。原因がわからないまま検査を重ねる期間は、多くのまれな遺伝性疾患に共通する経過ですが、その先に「治療につながる診断」がある場合、正確に診断へたどり着くことの意味はとても大きくなります。
一方で、こうした病気では原因となる遺伝子の変化が「意義不明」と判定されがちで、見逃されやすいという課題もあります。臨床遺伝専門医として文献を踏まえると、代謝経路の全体像を持っておくことが、検査結果を読み解き、治療可能な病気を見落とさないための助けになると考えています。
9. 薬の標的として ─ 抗がん剤・免疫抑制薬との深い関わり
ヌクレオチド代謝は、医療のなかでもとくに「薬にしやすい」代謝系です。細胞が増えるためにはヌクレオチドが欠かせないため、その合成を止めれば、活発に増える細胞(がん細胞や免疫細胞など)の増殖を抑えられるからです[14]。実際に、この代謝を狙う薬が数多く実用化されています。
葉酸をねらう薬(抗葉酸薬)
代表格がメトトレキサートです。この薬はDHFRを阻害し、葉酸を再生できなくすることで、プリン合成にもDNA用チミン合成にも必要な葉酸を枯渇させます。その結果、DNAやRNAの材料合成が広く妨げられます[3]。葉酸代謝をがん治療に利用する原理は、1948年にファーバーらが葉酸拮抗薬で小児白血病の一時的な改善を報告したことにさかのぼる、歴史ある戦略です。
より新しい抗葉酸薬であるペメトレキセドは、複数の葉酸依存酵素を同時に狙う多標的の薬で、とくにTYMS(チミジル酸合成酵素)を主な標的としつつ、プリン合成の酵素にも作用します[15]。この薬が「プリンの薬」でも「ピリミジンの薬」でもなく両方に効くのは、葉酸代謝が2つの合成系に共通するインフラだからです。葉酸代謝の障害に関わる遺伝子についてはテトラヒドロ葉酸代謝の遺伝子パネルもご参照ください。
DHODHをねらう薬
DHODHは、現在のヌクレオチド代謝をめぐる創薬で重要な標的の一つです。ヒトのDHODHはミトコンドリア内膜にあって呼吸鎖と結びつくため、ピリミジン合成と細胞の呼吸状態の両方にアクセスできる、いわば薬の効きやすい「ボトルネック」になっています[14]。関節リウマチや多発性硬化症に使われるレフルノミド/テリフルノミドは、活性化したリンパ球がピリミジンのデノボ合成に強く依存する性質を利用した薬です。
がんの分野でも、DHODHは再評価されています。2016年には、DHODHを阻害すると、急性骨髄性白血病(AML)の細胞が未熟なまま止まっている状態(分化ブロック)を解除できることが報告され、大きな注目を集めました[8]。それまでDHODHの阻害が白血病細胞の「分化」に影響するとは考えられておらず、この発見はDHODH阻害薬への臨床的な関心を一気に高めました[8]。また、DHODHが呼吸鎖と結びついてピリミジン合成を駆動する性質は、がんの増殖と呼吸を結ぶ経路として、腫瘍モデルでも確かめられています[7]。この研究では、ミトコンドリアの働きが失われたがん細胞が、呼吸を回復させることでDHODHを再び動かし、増殖できるようになることが示されました[7]。
その他の重要な標的
このほかにも、免疫を抑える薬ミコフェノール酸はIMPDHという酵素を阻害してグアニン系ヌクレオチドを減らし、ヒドロキシウレアは先ほど述べたRNRを阻害してDNAの材料供給を直接抑えます[14]。これらはいずれも、ヌクレオチド代謝の異なる場所を狙うことで、増える細胞にブレーキをかける薬です。
薬の効き方や耐性を考えるうえで大切な原則は、デノボ合成を狙う薬の効果は、細胞のサルベージ能力に左右されるということです。周囲からウリジンなどを十分取り込める細胞では、デノボ合成を止めても部分的に迂回できてしまいます。したがって、標的となる酵素の量だけから薬の効きやすさを予測するのではなく、取り込み・サルベージ・デノボ合成を一体として評価する必要があるのです[14]。
💊 ヌクレオチド代謝を狙う主な薬
| 薬(薬のグループ) | 主な標的 | 経路上の結果 |
|---|---|---|
| メトトレキサート | DHFR | 葉酸が枯渇し、プリンとDNA用チミンの両方を抑える |
| ペメトレキセド | TYMS中心(複数の葉酸酵素) | 葉酸依存の合成を複数箇所で攻撃 |
| テリフルノミド/レフルノミド | DHODH | ピリミジンのデノボ合成を低下(免疫調節) |
| ミコフェノール酸 | IMPDH | グアニン系ヌクレオチドを選択的に低下(免疫抑制) |
| ヒドロキシウレア | RNR | DNA用材料(dNTP)の供給を直接制限 |
※薬の適応・効果・安全性は国や時期により異なり、今後も更新されます。治療に関する判断は必ず主治医とご相談ください。ここでは代謝のしくみを理解するための一例として紹介しています。
10. 遺伝診療との接点 ─ 代謝の理解が診断を支える
ヌクレオチド代謝の知識は、遺伝診療の現場でも役立ちます。ここまで見てきたように、この代謝系の酵素の変化は、レッシュ・ナイハン症候群やミラー症候群、CAD欠損症など、さまざまな遺伝性疾患の原因になります。そして、そのなかにはウリジンの補充などで治療しうるものも含まれています[12]。だからこそ、代謝のしくみを理解しておくことは、「どの検査を考えるべきか」「見つかった変化がどういう意味を持つか」を考えるうえで、確かな判断材料になります。
とくにCAD欠損症のように、原因となる遺伝子の変化が「意義不明のバリアント」と判定されがちで、治療可能であるにもかかわらず見逃されやすい病気があることは、重要な教訓です[12]。診断名がつくまでに時間がかかることは、多くのまれな遺伝性疾患に共通する経過です。原因がわからないまま検査を重ねる期間は、ご本人にもご家族にも負担の大きいものです。臨床遺伝専門医として文献を踏まえると、代謝経路の全体像を持っておくことは、こうした状況で手がかりを見つける助けになります。
当院では、遺伝子や染色体に関わる検査の前後で、臨床遺伝専門医が遺伝カウンセリングを行っています。検査で何が分かり何が分からないのか、見つかった変化がご本人やご家族にとってどういう意味を持つのか、どのような選択肢があるのか——こうした点を、中立の立場で一緒に整理します。ヌクレオチド代謝そのものは基礎研究が中心の分野であり、日常の診療で直接検査する対象ではありませんが、遺伝子の働きをどう読み解くかという理解の土台として、こうした知識は生きてきます。正確な診断に基づいて選択肢を検討するために、専門医による整理をご活用ください。
まとめ ─ 一つの需給ネットワークとして捉える
デノボ合成とサルベージ経路は、DNAやRNAの材料であるヌクレオチドを用意するための、2つの補い合う道です。プリンは土台の上に環を組み立て、ピリミジンは環を先につくってから糖をつける——という正反対の戦略をとりながら、どちらもPRPP・葉酸・アミノ酸・ミトコンドリアという共通の資源を分け合っています[2]。
この記事でもっとも大切な考え方は、デノボ合成・サルベージ・葉酸の一炭素代謝・ミトコンドリアの呼吸を、別々の経路として切り離さないことです。これらはPRPPやギ酸、アスパラギン酸を介して、一つの大きな需要と供給のネットワークを形づくっています[2]。近年は、酵素が集まってプリノソームという集合体をつくる現象や、その集合が代謝の状態に応じて変わることも示され、酵素の量だけでなく、空間的な組織化そのものが流れを左右する要素になりうることがわかってきました[1]。
このネットワークの理解は、レッシュ・ナイハン症候群やCAD欠損症といった遺伝性疾患の成り立ちを読み解く助けになり、メトトレキサートやDHODH阻害薬といった治療の作用点を理解する土台にもなります。遺伝子の働きを「一つの反応」だけで判断せず、経路全体のつながりのなかで捉えること——それが、複雑なヌクレオチド代謝を臨床に生かすための鍵だと言えます[14]。
よくある質問(FAQ)
Q1. デノボ核酸合成とサルベージ経路の違いは何ですか?
どちらもDNA・RNAの材料であるヌクレオチドを用意する経路ですが、方法が異なります。デノボ合成(新規合成)は、糖・アミノ酸・二酸化炭素・葉酸などの単純な材料からヌクレオチドを一から組み立てる経路で、エネルギーや材料を多く使います。サルベージ経路(再利用経路)は、分解された塩基やヌクレオシドを回収してもう一度ヌクレオチドに戻す、省エネの経路です。細胞は、増殖の速さや栄養状態に応じてこの2つを使い分けています。
Q2. プリンとピリミジンで、つくり方はどう違うのですか?
大きく異なります。プリン(アデニン・グアニン)は、PRPPという糖の土台の上に、アミノ酸や二酸化炭素、葉酸由来の炭素を継ぎ足して環を組み立て、IMPという共通中間体をつくります。一方ピリミジン(シトシン・チミン・ウラシル)は、先に環(オロト酸)をつくってから、あとでPRPPを付けて糖をつなぎます。「土台の上で組み立てる」プリンと「環を先につくる」ピリミジンで、順序が正反対なのが特徴です。
Q3. なぜ葉酸がヌクレオチド合成に関係するのですか?
葉酸(活性型のテトラヒドロ葉酸)は、炭素を1個ずつ運ぶ「運び屋」として働くからです。プリンの環を組み立てる2か所と、DNA用のチミン(dTMP)をつくる反応で、葉酸由来の一炭素単位が使われます。このため、葉酸が不足したり葉酸代謝が障害されたりすると、プリンとDNA用チミンの両方が同時につくれなくなります。抗がん剤のメトトレキサートは、この葉酸の再生を止めることで効果を発揮します。
Q4. ヌクレオチド代謝の異常で、どんな病気が起こりますか?
さまざまな遺伝性疾患(先天代謝異常)が知られています。プリンのサルベージ酵素HPRT1が欠けるとレッシュ・ナイハン症候群(尿酸過剰と神経・行動の症状)、プリン分解のADAが欠けると重症複合免疫不全症(ADA-SCID)が起こります。ピリミジン側では、DHODHが欠けるとミラー症候群、CADやUMPSが欠けると、ウリジンの補充で改善しうるタイプの病気になります。どの経路のどこが詰まるかによって、症状のあらわれ方が変わります。
Q5. なぜヌクレオチド代謝が抗がん剤の標的になるのですか?
細胞が増えるためには、DNAをコピーするための大量のヌクレオチドが必要だからです。その合成を止めれば、活発に増えるがん細胞や免疫細胞の増殖にブレーキをかけられます。メトトレキサート(葉酸をねらう)、DHODH阻害薬(ピリミジン合成をねらう)、ヒドロキシウレア(RNRをねらう)などが実用化されています。ただし、これらの薬の効果は、細胞がサルベージ経路でどれだけ迂回できるかにも左右されます。治療に関する判断は必ず主治医とご相談ください。
🏥 遺伝子や染色体に関わる検査のご相談
遺伝子の働きや遺伝性の病気、遺伝子検査の結果の意味について
お悩みの方は、臨床遺伝専門医が在籍する
ミネルバクリニックにご相談ください。
参考文献
- [1] Reversible compartmentalization of de novo purine biosynthetic complexes in living cells. Science. 2008. [PubMed 18388293]
- [2] Regulation of mammalian nucleotide metabolism and biosynthesis. Nucleic Acids Res. 2015. [PMC4344498]
- [3] One-Carbon Metabolism in Health and Disease. Cell Metab. 2017. [PMC5353360]
- [4] Stimulation of de novo pyrimidine synthesis by growth signaling through mTOR and S6K1. Science. 2013. [PubMed 23429703]
- [5] mTORC1 induces purine synthesis through control of the mitochondrial tetrahydrofolate cycle. Science. 2016. [PubMed 26912861]
- [6] ppGpp Coordinates Nucleotide and Amino-Acid Synthesis in E. coli During Starvation. Mol Cell. 2020. [PubMed 32857952]
- [7] Reactivation of Dihydroorotate Dehydrogenase-Driven Pyrimidine Biosynthesis Restores Tumor Growth of Respiration-Deficient Cancer Cells. Cell Metab. 2019. [PubMed 30449682]
- [8] Inhibition of Dihydroorotate Dehydrogenase Overcomes Differentiation Blockade in Acute Myeloid Leukemia. Cell. 2016. [PubMed 27641501]
- [9] Hypoxanthine-guanine phosphoribosyltransferase (HPRT) deficiency: Lesch-Nyhan syndrome. Orphanet J Rare Dis. 2007. [PMC2234399]
- [10] AICA-ribosiduria: a novel, neurologically devastating inborn error of purine biosynthesis caused by mutation of ATIC. Am J Hum Genet. 2004. [PubMed 15114530]
- [11] Exome sequencing identifies the cause of a mendelian disorder. Nat Genet. 2010. [PubMed 19915526]
- [12] Expanding the clinical and genetic spectrum of CAD deficiency: an epileptic encephalopathy treatable with uridine supplementation. Genet Med. 2020. [Genetics in Medicine]
- [13] Hereditary orotic aciduria identified by newborn screening. Front Genet. 2023. [PMC10043439]
- [14] Nucleotide metabolism: a pan-cancer metabolic dependency. Nat Rev Cancer. 2023. [PubMed 36973407]
- [15] Pemetrexed: biochemical and cellular pharmacology, mechanisms, and clinical applications. Mol Cancer Ther. 2007. [PubMed 17308042]






