

目次

📍 クイックナビゲーション
神経の細胞どうしが情報をやり取りするとき、送り手の細胞は「神経伝達物質」という小さな粒を、ほんの1000分の1秒より短い時間で、しかもタイミングをぴたりとそろえて放出しています。この「合図が来た瞬間に、いっせいに放つ」という離れわざを可能にしているのが、SYT1という遺伝子がつくるシナプトタグミン1(synaptotagmin-1)というタンパク質です。カルシウムの流入をきっかけに引き金を引く、いわば神経の「発射スイッチ」の役割を担っています。
この記事では、SYT1がどんな遺伝子で、シナプトタグミン1が脳の中でどう働いているのか、そしてこの遺伝子に生まれつきの変化(新生突然変異)が起きると、なぜベーカー・ゴードン症候群という神経発達症になるのかを整理します。さらに、ヒトiPS細胞を用いた病態研究と、アンチセンス核酸(ASO)を応用する場合の将来的な考え方まで、現在わかっていることを解説します。
- ➤ SYT1(シナプトタグミン1)が神経の「発射スイッチ」として働くしくみ
- ➤ カルシウムを感じ取る2つのC2ドメインと、放出を止める・放つの切り替え
- ➤ SYT1・SYT2・SYT7という「仲間の遺伝子」の役割分担
- ➤ ベーカー・ゴードン症候群の症状が、年齢とともにどう変化するか
- ➤ 病態を直接ねらう治療研究と、ASOを応用する場合の将来的な考え方
🧬Q. SYT1遺伝子とは何をする遺伝子ですか?
神経の情報伝達を担うシナプトタグミン1というタンパク質の設計図です。神経の末端でカルシウムの流入を感じ取り、神経伝達物質を「合図の瞬間に、いっせいに」放出させる引き金として働きます。
🩺Q. この遺伝子が変化するとどうなりますか?
SYT1に生まれつきの変化(新生突然変異)が起きると、ベーカー・ゴードン症候群という神経発達症になります。乳児期の筋緊張の低さ、発達の遅れ、不随意運動、特徴的な脳波などがみられる、とてもまれな病気です。
🌸Q. 治療法はありますか?
今のところ根本的な治療法はなく、症状に対するケアが中心です。ヒトiPS細胞を用いた病態研究は進んでいます。一方、変化した側の遺伝子だけを狙って静かにさせるASO(アンチセンス核酸)は、ドミナント・ネガティブ型変異に対して理論上考えられる将来戦略の一つですが、SYT1関連疾患で確立した治療法ではありません。
SYT1遺伝子とは——神経伝達の「発射スイッチ」の設計図
12番染色体にある、シナプトタグミン1の設計図
SYT1遺伝子は、ヒトの12番染色体の長腕(12q21.2)に位置し、シナプトタグミン1というタンパク質をつくる設計図です[1]。このタンパク質は、神経細胞の末端にある小さな袋「シナプス小胞」の膜に埋め込まれていて、袋の中には神経伝達物質がぎっしり詰まっています。神経に電気的な合図(活動電位)が届くと、末端にほんの一瞬だけカルシウムイオンが流れ込みます。このカルシウムの流入を感じ取り、袋を細胞膜と融合させて中身をいっせいに放出させる引き金が、シナプトタグミン1の最大の仕事です[1]。
神経回路が正確に働くためには、合図が届いてから中身を放つまでを、1000分の1秒より短い時間で、しかもぴったりタイミングをそろえて行う必要があります。シナプトタグミン1は、この「速さ」と「そろい」の両方を実現するために進化してきた、いわば精密な発射スイッチです。しかもその役割は「放つ」ことだけではありません。合図がないときには袋が勝手に融合してしまわないようブレーキ(クランプ)もかけ、放出が終わったあとには袋の膜を回収するリサイクルにも関わる、という何役もこなすタンパク質です[6]。
シナプトタグミン1は422個のアミノ酸からできた、シナプス小胞の主要な部品です。カルシウムを「感じる」センサーであると同時に、放出のタイミングを「そろえる」指揮者でもあります。この精密なスイッチがわずかに狂うだけで、脳全体の情報処理に大きな影響が及ぶことが、後で述べる病気からわかってきました。
なぜ「速さ」がそこまで大切なのか
わたしたちが物を見て手を動かす、言葉を聞いて理解する、といった脳のはたらきは、無数の神経細胞がシナプスという接続部で、正確なタイミングで信号をやり取りすることで成り立っています。もし放出のタイミングがばらついたり、合図がないのに漏れ出したりすると、受け手の細胞は雑音にさらされ、正しい情報が伝わりません。シナプトタグミン1は、この「信号対雑音比」を高く保つ番人でもあるのです[1]。だからこそ、この一つのタンパク質のわずかな不具合が、脳のネットワーク全体に波及していきます。
シナプトタグミン1がどれほど根幹的なはたらきをしているかは、動物での実験からもわかります。マウスでSYT1を完全に失わせると生後まもなく命を落とし、培養した海馬の神経では速い同期的放出がほぼ完全に消えてしまいます[2]。これは、シナプトタグミン1が「あってもなくてもよい補助部品」ではなく、神経の情報伝達になくてはならない中心部品であることを示しています。だからこそ、ヒトでこの設計図に変化が起きると、脳の発達全体に深く影響するのです。
構造としくみ——2つの「カルシウムセンサー」
C2AとC2B——2つの手でカルシウムをつかむ
シナプトタグミン1は、大きく分けて、シナプス小胞の膜を1回だけ貫く部分(膜貫通ドメイン)と、そこから細胞の内側へ伸びる2つの「C2ドメイン」(C2AとC2B)からできています[1]。この2つのC2ドメインこそが、カルシウムを感じ取るセンサーの本体です。それぞれが8本のひも(βストランド)が折り重なった「βサンドイッチ」という頑丈な構造をしていて、その先端にある柔らかいループの部分にカルシウムイオンが結合します[12]。
生化学的な解析によると、C2Aは3個、C2Bは2個のカルシウムイオンを、負に帯電したアスパラギン酸というアミノ酸を介してつかまえます[12]。カルシウムがループに結合すると、ループ全体の電気的な性質が変わり、隠れていた「油になじむ部分」が表に出ます。この部分が向かい側の細胞膜(原形質膜)の脂質に深く刺さり込み、膜を局所的に湾曲させることで、膜と膜が融合しやすくなる、というのが放出の引き金の正体です[16]。
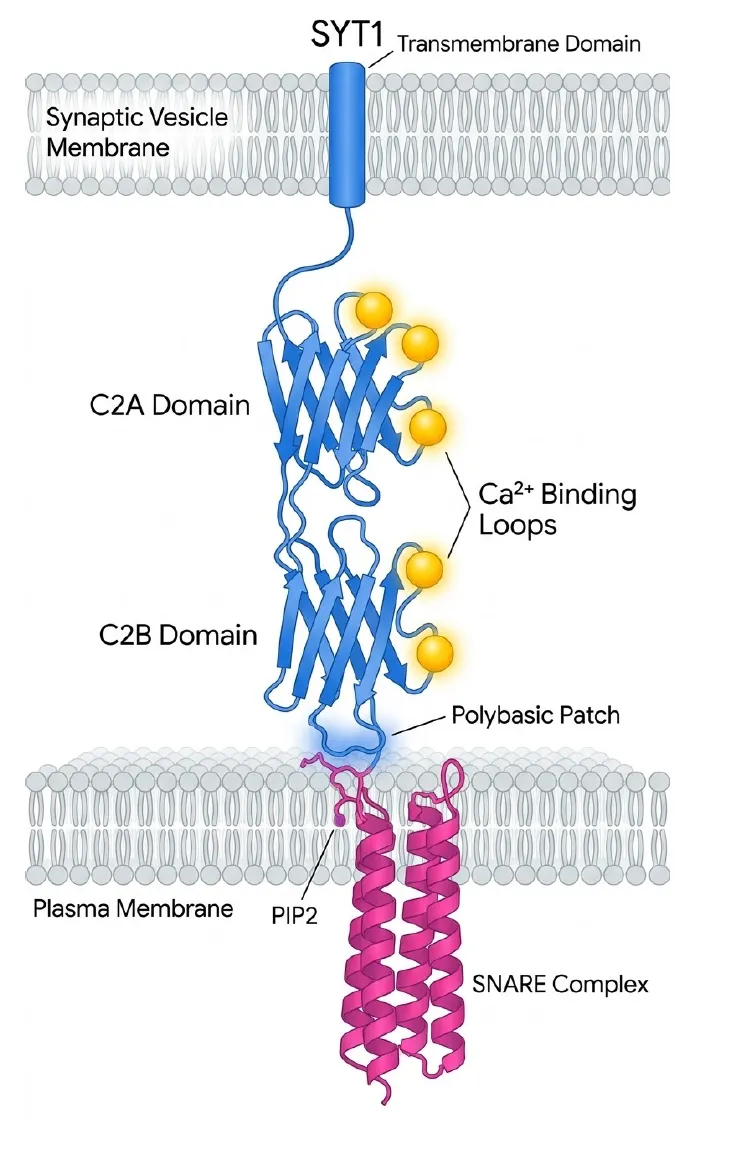
C2ドメインとは、もともと多くのタンパク質に見られる「脂質やカルシウムと結びつく部品」のことです。シナプトタグミン1の場合、この部品がカルシウムを感じる高感度センサーに特化しています。2つ並んだC2ドメイン(C2A・C2B)のうち、とくにC2Bが放出の実行や、後で述べる「ブレーキ」役として中心的にはたらきます。C2ドメインを持つタンパク質はほかにもたくさんあり、細胞のさまざまな膜のやり取りに関わっています。
C2Bの「プラスの帯」が小胞を定位置につなぎ止める
C2Bドメインには、カルシウムを感じる働きに加えて、もう一つ大切なしかけがあります。それは、リジンという塩基性(プラスに帯電した)アミノ酸が集まった「ポリ塩基性パッチ(プラスの帯)」です[2]。この帯は、細胞膜の内側にたくさんあるPIP2という脂質(マイナスに帯電)と、磁石のように引き合います。この結びつきはカルシウムが流れ込む前の安静時から生じていて、シナプス小胞を放出に向けた正しい位置につなぎ止める(ドッキング)役割を果たします[2]。
さらにC2Bは、膜融合を実際に行うSNARE(スネア)複合体とも直接結びつきます[2]。SNAREは、小胞側と細胞膜側のタンパク質が「ファスナー」のようにかみ合って膜どうしを引き寄せる装置です。シナプトタグミン1は、このファスナーのすぐそばに陣取ることで、カルシウムが来た瞬間に、遅れなく融合を完了させる空間的な準備を整えているのです。
このC2BのプラスとPIP2のマイナスの引き合いには、もう一つ大切な意味があります。小胞をあらかじめ膜の近くに引き寄せておくことで、シナプトタグミン1が見かけ上カルシウムに反応しやすくなり、放出の起こりやすさ(放出確率)が高まるのです[2]。プラスの帯を構成するリジン残基(研究ではK326・K327として知られています)を人工的に変えると、放出がうまく起こらなくなることも示されており、この小さな帯が放出全体の効率を左右する要であることがわかります[2]。つまりシナプトタグミン1は、カルシウムを「感じる」前から、放出の舞台をていねいに整えているのです。

3つの放出モードを「止める・放つ」で切り替える
神経末端からの神経伝達物質の放出には、大きく3つのモードがあります。合図がなくても少しずつ漏れ出す自発的放出、合図と同時にいっせいに放つ同期的放出、そして合図から少し遅れてだらだらと続く非同期的放出です。シナプトタグミン1は、この3つを空間的・時間的にうまく調整する、いわば司令塔として働いています。
図1:神経伝達物質の3つの放出モードとSYT1の役割
① 自発的放出(安静時)
- 合図がなくても起こる小さな漏れ
- SYT1がブレーキ(クランプ)をかけて抑える
- 脳の「静けさ」を保つはたらき
② 同期的放出(合図の瞬間)
- カルシウム流入で一気に放つ
- SYT1が主役の引き金
- 正確な情報伝達の中心
③ 非同期的放出(遅れて)
- 合図の後もだらだら続く放出
- 主に仲間のSYT7が担当
- SYT1はこれを抑えぎみに調整
※SYT1は「①を抑え、②を引き起こし、③を抑えぎみに調整」することで、放出のメリハリを作ります。
安静時は「輪っか」を作って漏れを止める
合図がないとき、神経伝達物質が際限なく漏れ出してしまうと、受け手の細胞は雑音だらけになります。シナプトタグミン1は、この自発的な漏れを抑える「クランプ(ブレーキ)機能」を持っています[3]。構造・生化学研究からは、このブレーキ機構を説明するモデルの一つとして、シナプトタグミン1どうしが組み合わさって作るリング状の集合体(オリゴマー)が提案されています[4]。
細胞膜にPIP2やATPがある条件で、シナプトタグミン1はC2Bドメインを介して隣の分子と結びつき、直径およそ30ナノメートル、十数〜二十数個の分子からなる頑丈なリングを形づくります[4]。このモデルでは、リングがシナプス小胞と細胞膜のあいだで物理的なスペーサーとして働き、SNAREのファスナーが最後まで閉じきってしまうのを立体的に抑えると考えられています[3]。そこにカルシウムが流れ込むとリング構造が不安定化して脱クランプが起こり、同期的放出へ進むという機構が提案されています[4]。
合図の瞬間は「相棒」コンプレキシンと連携する
シナプトタグミン1がSNAREと連携して同期的放出を引き起こすしくみには、複数の「結合面」が関わることが構造解析からわかっています。一つは、C2BがSNARE複合体の中心付近に直接くっつく一次インターフェースで、これはカルシウムがなくても形成され、小胞を放出準備状態に整える(プライミング)のに欠かせません[2]。もう一つは、シナプトタグミン1・SNARE・コンプレキシンという3者が組み合わさる三者間インターフェースで、これが不意の融合を防ぐ強力な「バネ仕掛け」のブレーキとして働きます[5]。
カルシウムが流れ込むと、シナプトタグミン1はこれらの結合面から完全に離れるのではなく、SNAREに対する向き(角度)を大きく変えると考えられています。この配置換えによって、抑えられていたSNAREのファスナーが一気に閉じるのと同時に、シナプトタグミン1のカルシウム結合ループがPIP2を含む膜へ深く刺さり込み、融合の穴(フュージョンポア)を開いて素早く広げます[16]。こうして、伝達物質の放出が1000分の1秒より短い精度でそろうのです。
発達での役割と、「仲間の遺伝子」たち
シナプスができる前から働いている
シナプトタグミン1の役割は、完成したシナプスでの伝達だけにとどまりません。脳ができていく過程で、シナプスがまだ形づくられる前の段階から、すでに働き始めていることがわかっています。培養した前脳の神経細胞を使った研究では、シナプトタグミン1を増やすと軸索の細い突起(糸状仮足)や枝分かれが著しく増え、逆に減らすと枝分かれが減ることが示されました[7]。つまりシナプトタグミン1は、放出という本来の仕事を始める前から、神経回路の配線そのものを整える発生上の役割も担っているのです。
放出と回収は「表と裏」——エンドサイトーシスも調整
神経が繰り返し働き続けるには、放出した小胞の膜成分をすばやく回収して、また使えるようにする必要があります。この回収をエンドサイトーシスといいます。驚くことに、シナプトタグミン1は放出(エキソサイトーシス)を引き起こすだけでなく、この回収も両方向に調整するカルシウムセンサーとして働きます[6]。ていねいで小さな回収(クラスリン介在性エンドサイトーシス)は促進する一方、過剰な刺激で起こる大ざっぱで大きな回収(バルクエンドサイトーシス)は抑える、というように、小胞の質とサイズを一定に保つ番人の役割も果たしています[6]。
SYT1・SYT2・SYT7——役割分担する3きょうだい
シナプトタグミンには、哺乳類で17種類もの仲間(アイソフォーム)があり、脳の場所や細胞のタイプによって使い分けられています[1]。なかでも高速の同期的放出を担う主役がSYT1とSYT2です。SYT1は大脳皮質や海馬などの前脳の興奮性神経で圧倒的に多く働き[9]、SYT2は脳幹・脊髄や神経筋接合部といった、よりタイミングの精度が求められる場所で主役を務めます。SYT2遺伝子については、SYT2遺伝子のページで個別に解説しています。
一方、SYT7はSYT1やSYT2よりもカルシウムへの感度が高く、反応がゆっくりです。連続した合図で細胞内のカルシウムがじわじわ高まったときに見られる「遅れて続く放出(非同期的放出)」や、繰り返し刺激で放出が増えていく短期の促通を担うのがSYT7です[8]。SYT1が失われた神経では、同期的放出が消える一方で、SYT7による非同期的放出が過剰に増えることが観察されており、両者が互いを補いながらタイミングを分担していることがうかがえます[8]。SYT7遺伝子の詳細はSYT7遺伝子のページをご覧ください。
同じ「シナプトタグミン」でも、SYT1は速い同期放出、SYT7はゆっくりした非同期放出と、はっきり役割が分かれています。前脳ではSYT1とSYT7が力を合わせて、放出できる小胞の「在庫(RRP)」を保つことも報告されています[9]。1種類が欠けると別の種類が肩代わりしようとしますが、完全には補いきれません。
このアイソフォームの使い分けは、放出の「速い・遅い」を決めるだけではありません。カルシウムへの感度も、細胞内での居場所も異なります。SYT1とSYT2がシナプス小胞そのものに埋め込まれて低感度・高速のセンサーとして働くのに対し、SYT7はカルシウム感度が高く反応がゆっくりで、繰り返しの刺激で残ったカルシウムに応じてじわじわ働きます[9]。こうした性質の違いが、単発の合図には鋭く、連続した合図には粘り強く応じる、という神経のしなやかな情報処理を支えています。どのアイソフォームがどこでどれだけ働くかは、脳の領域や神経のタイプ、そして発達の段階によって厳密に調整されているのです[1]。
同じ細胞でも「場所」でセンサーが違う——ドーパミン神経の例
運動の調節や「やる気」に関わる中脳のドーパミン神経は、一般的な神経とは少し変わった放出のしかたをします。線条体へ伸びる軸索の末端からの速いドーパミン放出には、グルタミン酸の放出と同じくSYT1が主要なカルシウムセンサーとして働いていることが確認されています[10]。ところが、同じ神経でも細胞体や樹状突起からのドーパミン放出には、SYT1ではなくSYT4やSYT7など別のセンサーが関わることが、最新の研究でわかってきました[11]。一つの細胞の中でも、軸索と樹状突起という「場所」によって、使われるしくみがきれいに分かれているのです。これは神経科学として、とても興味深い知見です。
ベーカー・ゴードン症候群——SYT1変異で起こる神経発達症
どんな病気か
SYT1遺伝子の大切さは、基礎研究だけでなく、ヒトの病気からもはっきり示されています。SYT1の変異は2015年に初めて重い神経発達症の原因として報告され[13]、のちにベーカー・ゴードン症候群(Baker-Gordon syndrome:BAGOS、OMIM #618218)と名づけられました。SYT1関連神経発達症とも呼ばれます。有病率はおよそ100万人に1人と推定される、とてもまれな病気で、これまでに世界で数十例が報告されています[1]。当院の疾患解説ではベイカー・ゴードン症候群のページで詳しくご紹介しています。
遺伝のしかたと「ドミナント・ネガティブ効果」
ベーカー・ゴードン症候群は常染色体顕性(優性)遺伝の形をとりますが、親から受け継ぐのではなく、患者さんのほぼ全員で新生突然変異(de novo変異)として起こります[12]。つまり、両親には変異がなく、お子さんに初めて偶然生じた変化です。これらの変異は、SYT1のC2AまたはC2Bドメインの、カルシウム結合や膜との相互作用に直接関わる、進化的にとても大切に保たれてきたアミノ酸に集中しています[12]。
ミスセンス変異とは、遺伝子の設計図が一文字変わって、タンパク質のアミノ酸が別のものに置き換わる変化のことです。ミスセンス変異の詳しい説明はこちら。
ドミナント・ネガティブ効果(優性阻害効果)とは、変異したタンパク質が単に働かないだけでなく、正常なタンパク質の働きまで邪魔してしまう現象です。ベーカー・ゴードン症候群では、変異したシナプトタグミン1が小胞へは正常に運ばれるものの、正常なタンパク質やSNAREと異常な関わり方をして、細胞全体の放出のしくみを妨げてしまうと考えられています[17]。
代表的な変異として、M303K、D304G、D366E、I368T、N371KなどがC2Bドメインのカルシウム結合ポケット周辺に集中して報告されているほか[12]、D310EやP401Lといった変異も見つかっています[15]。変異の種類によって影響のしかたは少しずつ異なります。たとえばI368Tは、カルシウムに反応して膜へ侵入する動きを妨げて同期的放出を大きく遅らせます[13]。一方でP401Lは、同期的放出そのものは比較的保たれるものの、安静時のブレーキ機能だけが選択的に壊れ、自発的な漏れが5倍以上に増えるという、別のタイプの異常を示すことが報告されています[14]。
症状は年齢とともに「かたち」を変える
ベーカー・ゴードン症候群の症状は重く、しかも年齢(発達段階)に応じて表れ方が大きく変わっていくという、はっきりした経過をたどります[16]。乳児期には著しい筋緊張の低さ(フロッピーインファント)がみられ、運動発達の遅れが目立ちます。ところが成長にともなってこの筋緊張の低さは軽くなり、代わって不随意運動(舞踏運動やジストニアなどの多動性の運動障害)や運動失調が現れて悪化していきます[16]。
図2:年齢とともに変化する主な症状のイメージ
乳児期
筋緊張の低さが目立つ。運動発達の遅れ。哺乳や睡眠の困りごと。
小児期
筋緊張は改善に向かう一方、不随意運動が出現。睡眠障害が増える。
思春期・成人期
運動障害がほぼ全例に。自傷を含む行動面の課題や睡眠障害が続く。
※乳児期の低緊張はやわらぎ、代わって運動障害・睡眠障害・自傷が前面に出てくる経過が報告されています[16]。
全年齢を通じて、眼科的な異常(大脳皮質性の視覚障害、斜視、眼振など)や、中等度から最重度の知的障害、言葉の獲得の乏しさが高い頻度でみられます[12]。行動面では、穏やかな状態から突然の興奮へ切り替わる情動の不安定さや、手を噛むなどの激しい常同行動・自傷が特徴的です[12]。また、明らかなてんかん発作がなくても、脳波(EEG)では特徴的な異常が高頻度で記録されます。40例規模をまとめた最近の解析では、EEG異常が約93%、MRI異常が約45%で認められたと報告されています[16]。
よく似た病気との見分け(鑑別)
重い知的障害に運動異常やてんかん様の脳波を伴う神経発達症は、ベーカー・ゴードン症候群のほかにもいくつもあります。たとえば、シナプス小胞の放出に関わる別の遺伝子による病気とは症状が重なることがあり、区別には遺伝子解析が役立ちます。同じくシナプスの調節に関わるSTXBP1遺伝子や、シナプスの足場をつくるSHANK3遺伝子、小胞の回収に関わるDNM1遺伝子など、シナプスに関わる遺伝子群は「シナプス病(シナプトパチー)」と総称され、症状が部分的に似通います。正確な診断のためには、こうした複数の遺伝子をまとめて調べる網羅的な解析と、臨床所見をあわせた総合的な判断が欠かせません。
診断と、原因に迫る最新の治療研究
診断はゲノム解析(トリオ解析)が中心
ベーカー・ゴードン症候群は症状だけで確定するのが難しいため、診断の中心になるのは遺伝子解析です。実際の報告例の多くが、全エクソーム解析(体の設計図のうちタンパク質をつくる部分をまとめて調べる方法)によって、SYT1の新生突然変異が見つかっています[12]。新生突然変異かどうかを確かめるには、お子さんとご両親の3人をあわせて調べるトリオ解析が有用です。まれな染色体の組み換えがSYT1を分断して同様の症状を起こした例も報告されており[15]、必要に応じて染色体レベルの検査も検討されます。症状が重なりやすい他の神経発達症との区別のためにも、一つの遺伝子だけを見るのではなく、関連する複数の遺伝子を同時に調べておくことが、遠回りのようでいて確実な診断への近道になります。診断がついた後は、お子さんの発達段階に応じて必要な支援が変わっていくため、医療・療育・教育をつなぐ長い伴走が大切になります。
ベーカー・ゴードン症候群は新生突然変異が主体のため、同じご両親から次のお子さんに再発する確率は一般に低いと考えられています。ただし、ごくまれに親の生殖細胞にだけ変異がまじっている「生殖細胞モザイク」の可能性はゼロではありません。ご家族の見通しや次の妊娠に関する不安は、遺伝カウンセリングで一つずつ整理していくことができます。
iPS細胞とゲノム編集で「病気を再現する」
現在、ベーカー・ゴードン症候群に対する根本的な治療法はなく、症状をやわらげる対症療法が中心です。しかし、病気のしくみの解明が進み、原因に迫る研究が加速しています。従来のマウスモデルに加えて近年主流になっているのが、CRISPR-Cas9というゲノム編集技術とヒトiPS細胞(人工多能性幹細胞)を組み合わせる方法です。2026年の研究では、ヒトiPS細胞をCRISPR-Cas9で編集してSYT1ノックアウト細胞を作り、そこから誘導した神経細胞でSYT1変異体の機能が調べられました[17]。さらに、正常SYT1が存在するヒト誘導神経細胞にベーカー・ゴードン症候群関連変異体を発現させる、患者さんのヘテロ接合状態に近い実験条件では、複数の変異体が神経伝達物質の放出効率を低下させ、ドミナント・ネガティブ効果を示すことが確認されました[17]。これはヒト神経細胞モデルで病態機序を検証した重要な研究ですが、患者由来iPS細胞そのものを用いた研究ではありません。
「変異した側だけ」を静かにさせるASO治療という考え方
ベーカー・ゴードン症候群のように、変異したタンパク質が正常なタンパク質の働きまで妨げるドミナント・ネガティブ型の病態では、将来的な治療設計として、アンチセンスオリゴヌクレオチド(ASO)などを用いて「変異アレル由来のRNAを選択的に抑える」という考え方が理論上成り立ちます。変異したSYT1から作られるRNAだけを十分な選択性で減らすことができれば、有害な変異タンパク質の産生を抑えつつ、正常アレル由来のシナプトタグミン1を残すことが目標になります。ただし、SYT1関連疾患でこの方法の有効性が確立しているわけではなく、現段階では将来の研究戦略として位置づけるのが適切です。
ここで強調しておきたいのは、変異選択的ASOは、ベーカー・ゴードン症候群に対して承認された治療でも、臨床的有効性が確認された治療でもないということです。一方、ASOという核酸医薬そのものは別の疾患ですでに実用化されており、脊髄性筋萎縮症(SMA)に対するヌシネルセンは髄腔内投与される承認ASOです[19]。また、筋萎縮性側索硬化症(ALS)では、TDP-43機能低下に伴うSTMN2 RNAの異常なスプライシングをASOで補正する前臨床研究で概念実証が得られ[18]、STMN2発現回復を目指すASOの臨床試験も登録されています[20]。こうした先行例は、RNAを標的にした治療設計が神経疾患で実現可能であることを示しますが、SYT1関連疾患への応用には変異選択性、脳内送達、安全性などの検証が必要です。遺伝子治療の全体像もあわせてご覧ください。
よくある質問(FAQ)
🏥 ネットの情報に疲れたら、一度専門医の話を聞きに来ませんか?
発達の遅れや神経発達症、遺伝のご相談は、臨床遺伝専門医が運営するミネルバクリニックへ。遺伝子検査の設計から結果の解釈、遺伝カウンセリングまで、終始責任をもって支援します。一人で抱え込まないでください。
🏥 ミネルバクリニックの特徴
臨床遺伝専門医が運営する、稀有な医療機関です
✓ 遺伝子検査の設計・結果説明・遺伝カウンセリングまで一貫対応
✓ 必要な検査をターゲット法で精度よく行うことを重視
✓ 生涯にかかわる情報だからこそ、スピードより「正確性」を最優先
「患者のための医療を実現することを貫いています」
関連記事
参考文献
- [1] SYT1-Associated Neurodevelopmental Disorder: A Narrative Review. Children (Basel). 2022. [PMC9601251]
- [2] Ca2+-dependent release of synaptotagmin-1 from the SNARE complex on phosphatidylinositol 4,5-bisphosphate-containing membranes. eLife. 2020. [PMC7498268]
- [3] Synaptotagmin 1 oligomers clamp and regulate different modes of neurotransmitter release. Proc Natl Acad Sci U S A. 2020. [PNAS]
- [4] Ring-like oligomers of Synaptotagmins and related C2 domain proteins. eLife. 2016. [PMC4977156]
- [5] Synergistic roles of Synaptotagmin-1 and complexin in calcium-regulated neuronal exocytosis. eLife. 2020. [eLife 54506]
- [6] Synaptotagmin-1 is a bidirectional Ca2+ sensor for neuronal endocytosis. Proc Natl Acad Sci U S A. 2022. [PMC9171800]
- [7] Synaptotagmin-1 promotes the formation of axonal filopodia and branches along the developing axons of forebrain neurons. Dev Neurobiol. 2013. [PubMed 22589224]
- [8] Synaptotagmin-1 and Synaptotagmin-7 Trigger Synchronous and Asynchronous Phases of Neurotransmitter Release. Neuron. 2013. [Neuron]
- [9] Synaptotagmin-1 and -7 Are Redundantly Essential for Maintaining the Capacity of the Readily-Releasable Pool of Synaptic Vesicles. PLoS Biol. 2015. [PLoS Biology]
- [10] Synaptotagmin-1-dependent phasic axonal dopamine release is dispensable for basic motor behaviors in mice. Nat Commun. 2023. [PMC10336101]
- [11] Implication of synaptotagmins 4 and 7 in activity-dependent somatodendritic dopamine release in the ventral midbrain. Open Biol. 2022. [PMC8889187]
- [12] SYT1-associated neurodevelopmental disorder: a case series. Brain. 2018. [PMC6113648]
- [13] Identification of a human synaptotagmin-1 mutation that perturbs synaptic vesicle cycling. J Clin Invest. 2015. [PMC4396464]
- [14] A de novo missense mutation in synaptotagmin-1 associated with neurodevelopmental disorder desynchronizes neurotransmitter release. Mol Psychiatry. 2024. [PMC11371641]
- [15] Expanding the genotype and phenotype spectrum of SYT1-associated neurodevelopmental disorder. Genet Med. 2022. [PMC8986325]
- [16] Norwitz SG, Eck J, Winston JS, Baker K. Age-Related Characteristics of SYT1-Associated Neurodevelopmental Disorder. Ann Clin Transl Neurol. 2026;13(5):875-887. [PMC13161886]
- [17] Fenske P, Hosseini H, Bouazza-Arostegui B, et al. Baker-Gordon Syndrome-Associated Synaptotagmin-1 Mutations Reduce Synaptic Strength in Mouse Primary and Human-Induced Neuronal Culture Models. J Neurosci. 2026;46(4):e0762252025. [PMC12853263]
- [18] Baughn MW, Melamed Z, López-Erauskin J, et al. Mechanism of STMN2 cryptic splice/polyadenylation and its correction for TDP-43 proteinopathies. Science. 2023;379(6637):1140-1149. [PMC10148063]
- [19] U.S. Food and Drug Administration. Nusinersen (Spinraza) prescribing/approval information. Initial U.S. approval 2016. [FDA]
- [20] ClinicalTrials.gov. A Study Evaluating the Safety and Tolerability of QRL-201 in ALS (ANQUR), NCT05633459. [ClinicalTrials.gov]






